Este protocolo descreve o isolamento, purificação e cultivo de células mieloides/microglia humanas altamente puras a partir de tecido cerebral post mortem obtido por autópsia rápida de pessoas com e sem vírus da imunodeficiência humana-1 (HIV-1). Ele fornece uma plataforma ex vivo robusta para investigar a biologia das células mieloides/microgliais, reservatórios cerebrais de HIV, neuroinflamação e estratégias de cura para o HIV.
Artigo de método
Isolamento de microglia cerebral para estudar a persistência do vírus da imunodeficiência humana 1
* These authors contributed equally
Neste artigo
Resumo
Resumo
Estabelecemos e otimizamos um protocolo robusto para isolar, cultivar e estudar células mieloides cerebrais humanas primárias (BrMCs) a partir de tecidos cerebrais post mortem obtidos por autópsia rápida de pessoas com ou sem HIV-1 (HIV), nos quais >97,3% das BrMCs são micróglias cerebrais (MG). Por isso, referimo-nos a essas BrMCs isoladas como MG ou BrMCs/MG para representar melhor as populações celulares. Este método permite uma investigação abrangente ex vivo da biologia da micróglia, incluindo seus papéis na manutenção de reservatórios de HIV no cérebro, mediação da neuroinflamação e contribuição para lesão neuronal, bem como a avaliação de estratégias de cura para o HIV.
Para preservar a viabilidade celular e a integridade de RNA/proteínas, os tecidos cerebrais foram coletados dentro de 6 h após a morte, seguindo uma necropsia de pesquisa rápida. Múltiplas regiões, incluindo os córtices frontal, parietal e occipital, o hipocampo e os gânglios basais, foram processadas utilizando digestão enzimática e dissociação mecânica controlada, seguidas por centrifugação em gradiente de densidade para gerar suspensões celulares únicas viáveis com remoção eficiente de detritos de mielina e lise de eritrócitos. As BrMCs/MG foram então purificadas usando uma abordagem de isolamento em duas etapas, consistindo na eliminação de células T CD3⁺ seguida pelo enriquecimento magnético com microesferas CD11b⁺ para garantir pureza e especificidade.
Células mieloides purificadas foram cultivadas em condições definidas suplementadas com M-CSF para manter a viabilidade e a integridade funcional durante o cultivo prolongado ex vivo. Esta plataforma otimizada fornece uma base confiável e escalonável para análises moleculares, imunológicas e virológicas subsequentes de reservatórios cerebrais de HIV e mecanismos relacionados em BrMCs/MG.
Introdução
As células mieloides cerebrais (BrMCs)/micróglias são as principais células imunes inatas no sistema nervoso central (SNC)1,2,3. Em condições saudáveis, elas monitoram constantemente o cérebro e auxiliam em tarefas como a poda sináptica, a remoção de detritos e o suporte aos neurônios4,5,6. Na presença de doença, as micróglias são ativadas imunologicamente, levando à neuroinflamação, que desempenha um papel essencial na neurodegeneração em diversas doenças do SNC7,8,9. Durante a infecção pelo HIV-1 (HIV), as BrMCs/micróglias são o principal reservatório do HIV no cérebro, juntamente com os linfócitos T do SNC e possivelmente os astrócitos; estes últimos provavelmente têm um papel secundário nos reservatórios de HIV no SNC. As micróglias abrigam DNA proviral integrado do HIV com infecção latente, mas mantêm uma expressão de RNA do HIV em baixo nível, apesar da terapia antirretroviral eficaz (TARV)10,11,12. A infecção persistente pelo HIV nas BrMCs/micróglias leva a uma inflamação crônica e está associada ao transtorno neurocognitivo associado ao HIV (HAND), mesmo com a TARV moderna, evidenciado por sintomas cognitivos, comportamentais e motores em até 50% das pessoas vivendo com HIV (PWH)13,14,15,16. Assim, compreender a função das micróglias persistentemente infectadas pelo HIV é uma das chaves para entender os mecanismos moleculares da infecção e latência pelo HIV, a comunicação entre micróglias e astrócitos e outras células do SNC, os danos neuronais e o processo da doença HAND, o que é fundamental para identificar alvos terapêuticos contra o neuroHIV11,12,17.
No entanto, existem desafios técnicos no estudo de micróglia utilizando tecido cerebral humano pós-mortem. O alto teor de mielina, especialmente na substância branca, pode aprisionar células e entupir filtros, o que reduz o rendimento celular, a menos que a mielina seja removida antes da seleção imunomagnética18,19. Após a morte de pessoas que vivem com HIV (PWH), marcadores de superfície celular, como TMEM119 e P2RY12, podem ser degradados, dificultando a identificação precisa da micróglia20,21. Além disso, as células mieloides presentes no cérebro de indivíduos infectados pelo HIV incluem monócitos periféricos e macrófagos residentes nos tecidos, os quais compartilham alguns marcadores comuns com a micróglia; portanto, são necessárias etapas adicionais para enriquecer a população pura de células mieloides cerebrais (BrMCs), particularmente a micróglia22,23.
As abordagens atuais para o isolamento de micróglia humana não funcionam bem com tecidos post-mortem infectados pelo HIV. A triagem de células ativada por fluorescência fornece resultados abrangentes, mas exige equipamentos caros, consome mais tempo e produz baixo rendimento celular a partir de pequenas quantidades de tecidos cerebrais humanos valiosos24,25. A imunopaneização é específica, mas não consegue processar amostras de diversas regiões cerebrais simultaneamente e exige um longo tempo de incubação, o que não é adequado para tecidos post-mortem que precisam de processamento rápido após transporte noturno26,27. Além disso, nenhum desses métodos permite a recuperação de linfócitos T e células mieloides a partir da mesma amostra, o que é necessário para obter um perfil imunológico completo das células do SNC infectadas pelo HIV17,28.
Este protocolo fornece uma abordagem reprodutível, confiável e eficiente para o isolamento e enriquecimento de micróglia e outras células imunes do SNC a partir de tecidos cerebrais humanos postmortem infectados pelo HIV. A dissociação mecânica controlada combinada com digestão enzimática suave (por exemplo, TrypLE Express e DNase I) pode preservar amplamente os antígenos de superfície e minimizar a agregação celular29,30. A mielina é removida por meio de centrifugação em gradiente de densidade de Percoll, seguida pela separação imunomagnética de células T CD3⁺ e células mieloides CD11b⁺31,32. Importante, o uso de condições enzimáticas suaves preserva marcadores mieloides essenciais, incluindo CD11b e CD68, bem como biomarcadores específicos da micróglia, como TMEM119 e P2RY12, permitindo-nos caracterizar com precisão as células do SNC e realizar análises de vias de sinalização downstream33. A abordagem de seleção em duas etapas também gera uma fração altamente pura de células T CD3⁺ adequada para estudos virológicos e imunológicos, o que é particularmente relevante para a NeuroHIV, dada a função das células T no reservatório viral no SNC e na lesão neurológica associada ao HIV após a infiltração de células T no cérebro34,35.
No geral, essa abordagem sequencial em duas etapas — esgotamento inicial de células T CD3⁺ seguido pelo enriquecimento de células mieloides CD11b⁺ a partir da fração negativa para CD3 — melhora tanto a pureza celular quanto o rendimento de células do SNC, ao mesmo tempo em que maximiza o uso dessas amostras teciduais preciosas, limitadas e valiosas. As células isoladas são adequadas para uma ampla gama de aplicações downstream, incluindo sequenciamento de RNA em bulk e em nível de única célula, citometria de fluxo, ensaios funcionais e análises virológicas, incluindo a quantificação de DNA/RNA do HIV e ensaios de reativação viral para determinação dos reservatórios virais com capacidade de replicação dentro das células imunes residentes no SNC17,36,37.
Este protocolo é compatível com laboratórios equipados para processamento de tecido cerebral pós-mortem sob condições BSL-2+, pois muitos PVI estão sob supressão TARV ou com apenas breve interrupção do TARV no final da vida. Além disso, exige apenas plataformas padrão de separação imunomagnética e citometria de fluxo para validar a especificidade de BrMCs/microglia após o isolamento. Com pequenas modificações, também pode ser adaptado para o estudo de doenças do SNC, como doença de Alzheimer, esclerose múltipla, COVID longa, e lesão cerebral traumática38,39,40. Este protocolo também foi otimizado para o isolamento de células cerebrais de primatas não humanos (PNHs) infectados com SIVmac251 ou SIVmac23912,41, bem como modelos de camundongos humanizados de infecção ou latência pelo HIV, fornecendo um modelo fisiologicamente relevante da infecção pelo HIV no cérebro. Diferentemente dos cérebros humanos, esses modelos animais são mais acessíveis e oferecem um recurso complementar valioso para estudos mecanicistas e translacionais da infecção pelo HIV, latência pelo HIV e neuroHIV associada.
Protocolo
OBSERVAÇÃO: Manipule todos os tecidos humanos e de primatas não humanos (PNH) sob condições de BSL-2. Utilize equipamento de proteção individual apropriado, incluindo jaleco, luvas, máscara e protetor facial, durante o tratamento com Percoll, tampão ACK e DMSO. Descarte resíduos químicos e biológicos de acordo com as diretrizes institucionais. Enxágue todo o material descartável utilizado durante a dissociação tecidual, como bisturis, pipetas e placas de Petri, em água sanitária a 10% antes de descartá-los em sacos para resíduos biológicos. Enxágue o material reutilizável, como pinças e tesouras, com SDS a 10% antes de lavar e autoclavar.
1. Coleta de tecido cerebral
- Amostras humanas
NOTA: As amostras de tecido humano utilizadas neste estudo foram obtidas sob protocolos aprovados pelo Comitê de Ética em Pesquisa (IRB) da Universidade da Califórnia, San Diego (UCSD; IRB No. 160563)12. Os doadores humanos eram indivíduos vivendo com HIV que recebiam terapia antirretroviral (ART). As características principais dos doadores, incluindo idade, sexo, intervalo postmortem (PMI) e status de ART, são brevemente resumidas aqui, e essas características já foram descritas com cuidado em publicação anterior12.- Coletar os tecidos em até 6 h após a morte para preservar a viabilidade celular e a integridade do RNA e enviá-los ao laboratório de processamento em até 24 h.
- Amostras de primatas não humanos (NHP)
NOTA: Macacos-rajás (Macaca mulatta) foram mantidos no Centro Nacional de Pesquisa em Primatas de Emory (ENPRC, PROTO201700286) ou no Centro Nacional de Pesquisa em Primatas da Califórnia (CNPRC, UCD IACUC #22832). O cuidado com os animais e os procedimentos experimentais foram conduzidos de acordo com as regulamentações dos respectivos Comitês Institucionais de Ética no Uso de Animais (IACUCs) e cumpriram as diretrizes institucionais e federais. Todas as instalações de cuidado animal são credenciadas pelo Departamento de Agricultura dos Estados Unidos e pela Associação para Avaliação e Credenciamento de Cuidados com Animais de Laboratório Internacional (AAALAC).- Coletar os tecidos imediatamente após a necropsia12.
- Coleta de tecido
NOTA: Realizar todo o manuseio em recipientes de pesagem pré-resfriados sobre gelo.- Coletar 2–20 g por região cerebral (por exemplo, córtex frontal, parietal, occipital, hipocampo, gânglios basais), dependendo da disponibilidade do tecido.
- Colocar os tecidos em DMEM/F12 gelado suplementado com ART: 100 nM Nevirapina, 200 nM Raltegravir, 25 nM Darunavir. Manter os tecidos a 4 °C.
- Condições de transporte
- Armazenar as amostras em tubos herméticos a 4 °C sobre gelo.
- Transportar os tubos com pessoal certificado sob as regulamentações da Categoria B UN337312. Enviar por entrega expressa sobre gelo ao laboratório de processamento.
2. Preparação do tecido
- Transfira o tecido para tubos de 50 mL. Lave o tecido 10–15 vezes invertendo suavemente os tubos com 20–40 mL de HBSS frio com DNase (10 U/mL) até que o sobrenadante fique claro.
NOTA: Isso remove sangue, detritos e contaminantes; certifique-se de que o volume seja suficiente para que os pedaços de tecido se movam livremente durante a lavagem. - Remova e descarte as meninges e os grandes vasos usando pinças estéreis.
- Transfira o tecido para um novo recipiente de Petri e registre o peso do tecido (excluindo o recipiente) por região cerebral.
- Desintegre o tecido em fragmentos de aproximadamente 1–2 mm usando um par de pinças estéreis em cerca de 10 mL de HBSS + DNase I (10 U/mL).
NOTA: A picagem pode ser realizada no recipiente de Petri usando um bisturi.
3. Digestão enzimática
- Prepare a mistura de digestão misturando 10 mL de enzima de dissociação celular recombinante 1x e DNase I (concentração final de 10 U/mL).
- Pré-aqueça o agitador rotativo a 37 °C e a enzima de dissociação celular recombinante com DNase I (concentração final de 10 U/mL) em um incubador a 37 °C.
- Transfira o tecido na mistura de digestão do passo 3.1 para frascos (T150 para volumes > 50 mL; frascos menores se <50 mL) e incube em agitadores rotativos nas seguintes condições: 37 °C, 150 rpm, 30 min.
- Triture suavemente usando pipetas de 10 mL e depois de 5 mL, pipetando para cima e para baixo.
NOTA: Evite pipetagem brusca. - Incube por 5 min à temperatura ambiente para permitir que o tecido sedimente.
- Coleção de células
- Colete o sobrenadante em um tubo de 50 mL; este é o Coletado #1. Adicione 10% de SBF ao sobrenadante coletado para inativar a atividade da enzima.
- Resuspenda o tecido restante em HBSS + DNase I (10 U/mL) + 10% de SBF (10 mL/g de tecido). Triture suavemente e filtre através de peneiras de 70–100 µm.
NOTA: Se a digestão enzimática for adequada, todo o tecido passará pela peneira. - Centrifugue a 500 × g, à temperatura ambiente, por 10 min; este é o Coletado #2.
NOTA: Para maximizar a recuperação, deixe a suspensão sedimentar e transfira apenas o sobrenadante para um novo tubo.
- Processamento final
- Centrifugue os coletados (C1 e C2) a 500 × g por 10 min.
- Descarte os sobrenadantes. Reúna os pellets celulares de C1 e C2 em um único tubo.
4. Remoção de detritos de mielina (gradiente de Percoll)
- Prepare o Percoll isotônico (SIP) misturando 9 partes de Percoll com 1 parte de HBSS 10x. Prepare quantidade suficiente para obter aproximadamente 2,5 mL/g de tecido.
- Prepare uma solução de Percoll a 35% misturando 3,5 mL de SIP com 5,5 mL de HBSS 1x. Prepare quantidade suficiente para obter aproximadamente 4,5 mL/g de tecido.
- Separação por densidade
- Resuspenda o pellet celular obtido na Etapa 3.7.2 em Percoll a 35%. Utilize aproximadamente 4,5 ml de Percoll a 35% por grama do peso original do tecido (ou seja, peso do tecido medido antes da dissociação).
- OBSERVAÇÃO: Ressuspenda as células com Percoll a 35% em um tubo de 50 mL (máximo de 30 mL por tubo). Se os tecidos forem grandes, divida as células em múltiplos tubos de 50 mL.
- Sobrepor cuidadosamente cada tubo com 10 mL de HBSS 1x. Incubar por 5 min no gelo ou a 4 °C.
- Centrifugue a 800 × g, 45 min, 4 °C (sem freio durante a desaceleração).
- Recuperação da camada
- Descarte cuidadosamente o sobrenadante e a camada de mielina sem perturbar a fase intermédia inferior.
- Coletar o pellet e a fase intermédia (abaixo da camada de mielina, contendo células cerebrais mistas e a fração de Percoll) em um novo tubo cônico de 50 mL para evitar a contaminação por detritos.
- Diluição e lavagem
- Adicione HBSS na proporção de 3:1 (por exemplo, 30 mL de HBSS para cada 10 mL de suspensão coletada) para diluir o Percoll (~3 vezes de diluição).
- Centrifugue a 1.000 × g, 10 min em 4 °C (use freio e aceleração completos).
- Remova completamente o sobrenadante.
- Lise de hemácias e contagem de células
- Trate a placa celular do Passo 4.5.3 com tampão ACK (5 mL, 10 min, 37 °C).
- Conte as células viáveis utilizando azul de tripano.
- OBSERVAÇÃO: Rendimento esperado: ~0,1–1 × 10⁶ células do SNC/g de tecido, dependendo da condição dos tecidos.
- Adicione 10 mL de PBS para inativar o tampão de lise ACK. Centrifugue por 500 × g por 5 min.
OBSERVAÇÃO: Parada opcional: As células podem ser cultivadas durante a noite antes da triagem, numa densidade de 0,5–1 × 10⁶ células/mL de meio (DMEM/F-12, suplemento de glutamina com piruvato de sódio (500 mL), 10% FBS inativado pelo calor, solução tampão 1x HEPES, antibiótico-antimicótico 1x (5,5 mL do estoque 100x), 10 ng/mL MCSF (estoque 1000x).
Após a conclusão das etapas descritas acima de dissociação tecidual, lise de hemácias, contagem de células e cultura opcional durante a noite, CD3+ e CD11b+ populações de células foram isoladas utilizando kits comerciais de isolamento celular de acordo com as instruções do fabricante. Informações detalhadas sobre os kits, reagentes e procedimento completo de isolamento são fornecidas no Tabela de Materiais, com uma breve visão geral do fluxo de trabalho de isolamento fornecida a seguir.
5. Isolamento de linfócitos T CD3⁺ (seleção positiva)
OBSERVAÇÃO: Isole os CD3+ da suspensão simples de células preparada primeiro, utilizando um kit de seleção positiva imunomagnética no formato de liberação para CD3 (consulte a Tabela de Materiais). Retenha ambas as frações CD3+ e CD3- produzidas nesta etapa. A fração CD3- é necessária para a Etapa 6.
- Prepare o tampão de liberação.
- Prepare o tampão de liberação 1x diluindo o concentrado de tampão de liberação 40x em tampão de separação celular no dia do uso e mantenha-o a 4–6 °C ou sobre gelo.
NOTA: Prepare 2,5 mL de tampão de liberação 1x para cada amostra a ser processada.
- Prepare o tampão de liberação 1x diluindo o concentrado de tampão de liberação 40x em tampão de separação celular no dia do uso e mantenha-o a 4–6 °C ou sobre gelo.
- Prepare a amostra celular e marque com o coquetel de seleção.
- Resuspenda o pellet celular do passo 4.6.3 a 1 × 10⁸ células/mL em tampão de separação celular em um tubo de poliestireno redondo de 5 mL.
- Adicione o coquetel de seleção CD3 à amostra na proporção de 100 µL por mL de amostra. Misture suavemente a amostra e incube por 3 min à temperatura ambiente.
- Marque a amostra com partículas magnéticas.
- Vortexe as partículas magnéticas por 30 s imediatamente antes do uso. Adicione as partículas magnéticas à amostra na proporção de 100 µL por mL por amostra. Misture suavemente a amostra e incube por 3 min à temperatura ambiente.
- Complete o volume total da amostra para 2 mL com tampão de separação celular e misture pipetando suavemente a suspensão para cima e para baixo duas ou três vezes.
- Isole a reação CD3+ por separação magnética.
- Coloque o tubo descapado da amostra no separador celular magnético e incube por 5 min à temperatura ambiente.
- NOTA: As células ligadas às partículas magnéticas constituem a fração CD3+ e permanecem aderidas à parede do tubo dentro do campo magnético; o sobrenadante não ligado constitui a fração CD3-.
- Sem remover o tubo do separador magnético, pipete o sobrenadante para um tubo cônico de 15 mL limpo e rotulado, designado para a fração CD3-.
- Remova o tubo do separador magnético e ressuspenda suavemente as células retidas em 2 mL de tampão de separação celular.
- Repita os passos 5.4.1 a 5.4.3 por um total de três separações magnéticas de 5 min, reunindo todos os sobrenadantes no mesmo tubo da fração CD3-.
- Libere a fração CD3+ das partículas magnéticas.
- Adicione 2,5 mL de tampão de liberação 1x (preparado no passo 5.1.2) às células retidas e misture pipetando suavemente a suspensão para cima e para baixo duas a três vezes. Incube a suspensão por 3 min à temperatura ambiente.
- Coloque o tubo descapado no separador celular magnético e incube por 5 min à temperatura ambiente.
- Sem remover o tubo do separador magnético, pipete o sobrenadante para um tubo cônico de 15 mL limpo e rotulado, designado para a fração CD3+.
NOTA: O tampão de liberação desliga as partículas magnéticas das células marcadas: o sobrenadante resultante é a fração CD3+ purificada, enquanto as partículas magnéticas residuais permanecem ligadas à parede do tubo no campo magnético e são descartadas.
- Contagem celular e criopreservação
- Conte as células e armazene a alíquota CD3+ congelando rapidamente as alíquotas a -80 °C após criopreservar as células restantes em uma mistura de criopreservação (90% FBS + 10% DMSO) por 24 h em um meio de congelamento à base de isopropanol e, em seguida, transfira a amostra para nitrogênio líquido.
6. Isolamento de células mieloides CD11b⁺ (da fração CD3⁻)
OBSERVAÇÃO: A fração CD3- retida da etapa 5.4.4 foi submetida a um segundo passo de seleção imunomagnética positiva para isolar células mieloides CD11b+ utilizando microesferas magnéticas anti-CD11b e um separador magnético em formato de coluna (consulte a Tabela de Materiais).
- Prepare o tampão de separação e determine o número de células.
- Prepare o tampão de separação baseado em BSA 1x diluindo a concentração 20x em solução salina isotônica e mantenha o tampão preparado frio (4–8 °C) até o uso.
- Determine o número total de células na fração CD3 utilizando um hemocitômetro ou contador automatizado de células.
- Marque as células com microesferas magnéticas anti-CD11b.
- Centrifugue a suspensão celular a 300 × g durante 10 min e aspire completamente o sobrenadante.
- Resuspenda o pellet celular em 80 µL de tampão de separação baseado em BSA 1x por 1 × 10⁷ células totais.
- Adicione 20 µL de microesferas magnéticas anti-CD11b por 1 × 10⁷ células totais, homogeneíze bem e incube por 15 min a 4–8 °C.
- NOTA: Incubar em gelo úmido em vez de geladeira pode exigir um tempo de incubação mais longo. Incubar em temperaturas mais altas ou por mais tempo que o recomendado pode aumentar o risco de marcação celular inespecífica.
- Lave as células marcadas adicionando 1 mL de tampão de separação 1x por 1 × 10⁷ células, centrifugue a 300 × g por 10 min e aspire completamente o sobrenadante.
- Resuspenda até 1 × 10⁸ células totais em 500 µL de tampão de separação.
- Realize a separação magnética com coluna.
- Posicione uma coluna de separação magnética no separador magnético e equilibre-a lavando com 500 µL de tampão de separação 1x para coluna de pequeno volume ou 1 mL de tampão de separação 1x para coluna de grande volume; descarte o efluente do lavado.
NOTA: Utilize coluna de pequeno volume quando a amostra contiver poucas células totais. Utilize coluna de grande volume para amostras com alto número total de células, como preparações derivadas de baço ou preparações imunes combinadas. - Posicione um tubo de poliestireno redondo e limpo de 5 mL sob a coluna equilibrada e aplique a suspensão celular marcada (500 µL para coluna de pequeno volume ou 1 mL para coluna de grande volume) na parte superior da coluna.
- Após a amostra ter penetrado completamente na coluna, lave a coluna três vezes, adicionando 500 µL de tampão de separação 1x por lavagem para coluna de pequeno volume ou 1 mL por lavagem para coluna de grande volume. Adicione cada lavagem subsequente somente após o esvaziamento completo do reservatório da coluna.
NOTA: O efluente combinado coletado nas etapas 6.3.2 e 6.3.3 constitui a fração não marcada, CD11b-. - Remova a coluna do separador magnético e posicione-a sobre um tubo de poliestireno de 5 mL limpo e rotulado, designado para a fração CD11b+.
- Pipete 1 mL (coluna de pequeno volume) ou 2 mL (coluna de grande volume) de tampão de separação 1x na parte superior da coluna e imediatamente elua as células marcadas para o tubo de coleta pressionando firmemente o êmbolo fornecido com a coluna.
- Posicione uma coluna de separação magnética no separador magnético e equilibre-a lavando com 500 µL de tampão de separação 1x para coluna de pequeno volume ou 1 mL de tampão de separação 1x para coluna de grande volume; descarte o efluente do lavado.
- Quantificação e processamento posterior das frações CD11b+
- Conte as células de ambas as frações (CD11b+ e CD11b-) e armazene a alíquota CD11b- por congelamento rápido a -80 °C após criopreservar as células restantes em uma mistura crioprotetora (90% FBS + 10% DMSO) por 24 h em meio de congelamento baseado em isopropanol e, em seguida, transfira a amostra para nitrogênio líquido.
- Utilize as células CD11b+ para experimentos subsequentes.
Resultados
O fluxo de trabalho otimizado descrito neste protocolo permite o isolamento reprodutível de linfócitos T viáveis e altamente enriquecidos, bem como de BrMCs/microglia, a partir de tecidos cerebrais humanos pós-mortem infectados pelo HIV. A execução bem-sucedida do protocolo é confirmada por meio de uma série de pontos de controle de qualidade, incluindo avaliação da viabilidade celular, quantificação do rendimento e caracterização imunofenotípica em etapas-chave. Os resultados representativos de um experimento bem-sucedido são descritos abaixo.
Dissociação do tecido e recuperação de células
Conforme esquematizado na Figura 1A, após dissociação mecânica e centrifugação em gradiente de densidade, uma amostra bem processada deve gerar um pellet visualmente claro com quantidade mínima de detritos de mielina após a centrifugação em Percoll. Em experimentos representativos utilizando tecidos cerebrais de necropsia rápida de PWH, o rendimento total de células antes da seleção imunomagnética geralmente varia de 8,0 × 10⁴ a 1,0 × 10⁶ células por grama de tecido cerebral, o que é substancialmente menor do que os rendimentos obtidos a partir de tecidos esplênicos (~5 × 10⁷ células/g) (Tabela 1), refletindo diferenças biológicas inerentes entre esses tecidos.
Rendimentos mais baixos ou viabilidade reduzida estão frequentemente associados a intervalos post mortem prolongados (>24 h), condições subótimas de armazenamento do tecido ou força mecânica excessiva durante a homogeneização. Nesses casos, a camada de mielina após a centrifugação em gradiente de Percoll aparece mais espessa e difusa, e a interfase contendo as células do SNC é menos bem definida. A remoção incompleta da camada de mielina (passo 4.4 do protocolo) pode levar à contaminação por detritos de mielina, que podem ser confundidos com células mortas durante a contagem com exclusão de azul de tripano. Essa contaminação também pode prejudicar a marcação com anticorpos em etapas subsequentes, comprometendo assim a eficiência da separação magnética. Caso se suspeite de arraste de mielina, recomenda-se uma etapa adicional de centrifugação em gradiente de Percoll antes da seleção imunomagnética.
Fração de células T CD3+
O passo de seleção positiva de células T CD3⁺ tem uma finalidade dupla: enriquecer a fração de células T para análises paralelas de células do SNC, ao mesmo tempo em que esgota linfócitos T infiltrantes da fração enriquecida em mieloides, excluindo assim uma possível contaminação por células T nas células mieloides isoladas. Em experimentos representativos, a fração CD3⁺ representou aproximadamente 2–8% do total de células isoladas (cerca de 1 × 10⁴ células/g de tecido) (Tabela 1), o que está de acordo com relatos anteriores indicando níveis limitados e baixos de infiltração de células T em tecidos do SNC infectados pelo HIV.
Enriquecimento, caracterização e cultura ex vivo de BrMC CD11b⁺
Após o esgotamento de CD3⁺, a fração CD3⁻ foi submetida à seleção de CD11b⁺ utilizando microesferas magnéticas. Conforme relatado anteriormente(12), este procedimento permitiu-nos enriquecer os BrMCs CD11b⁺ até 95,2%, em comparação com 28,4% na fração pré-seleção. A RT-qPCR altamente sensível para o marcador de células T CD3E (capaz de detectar uma célula T em um milhão de BrMCs) não detectou células T nos BrMCs/microglia isoladas(12), confirmando sua alta pureza e descartando qualquer contaminação por células T.
Os BrMCs CD11b⁺ purificados foram então cultivados em meio para células microgliais por até 2 semanas para permitir a recuperação celular e a adesão, iniciando o crescimento celular. Conforme mostrado na Figura 1B, os BrMCs humanos isolados formaram uma monocamada já no 5º dia após o isolamento e exibiram morfologia bipolar. Essas células estão agora prontas para medições ex vivo, caracterização e ensaios funcionais subsequentes. A análise representativa da pureza baseada em citometria de fluxo da fração CD11b⁺ isolada do cérebro de primatas não humanos (PNH) é mostrada na Figura 2A, demonstrando que 97,3% das células coexpressaram CD11b e TMEM119. A pureza de preparações de BrMCs tanto humanos quanto de outros PNHs já foi descrita anteriormente12. Nessas análises, a fração CD11b⁺ foi enriquecida de 28,4% para 95,5%, com células TMEM119⁺ representando até 95,9% da população isolada de amostras humanas. Referimo-nos a essas células como microglia, embora uma pequena proporção possa representar outras populações de células mieloides residentes no cérebro.
Um procedimento semelhante também pode ser aplicado para isolar células T CD3⁺ do baço e células mieloides CD11b⁺ (SMCs) (Tabela 1). A avaliação da pureza demonstrou cerca de 98,9% de células CD3+ e 99,3% de células CD11b+ (Figura 2B,C). Essas populações de células viáveis (Figura 2E,F) podem ser mantidas em cultura, permitindo análises comparativas pareadas com células do SNC isoladas (Figura 2D).
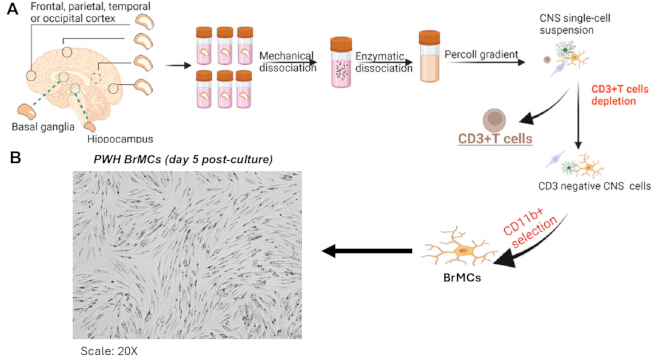
Figura 1. Um procedimento de isolamento sequencial em dois passos para purificar BrMCs. (A) Esquema do procedimento de isolamento celular do SNC em dois passos para purificar BrMCs CD11b⁺. (B) A morfologia das BrMCs (aumento de 100x) após 5 dias em cultura mostra a adesão bem-sucedida das MG ao recipiente. Abreviaturas: BrMCs = células mieloides cerebrais; SNC = sistema nervoso central; MG = micróglia. Clique aqui para visualizar uma versão maior desta figura.
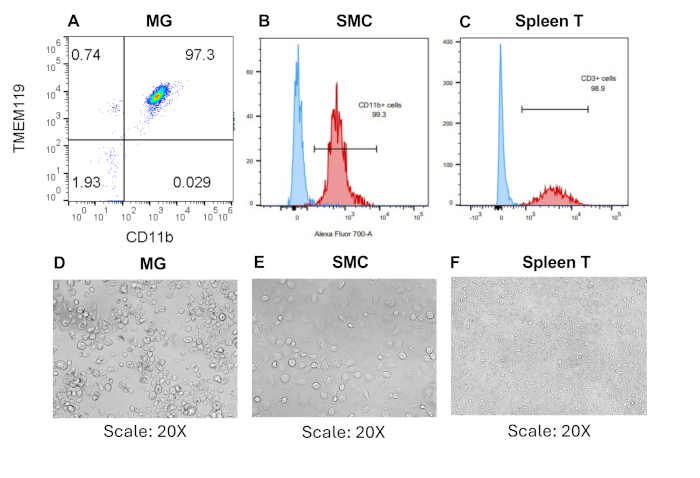
Figura 2. Isolamento bem-sucedido de células T e mieloides do baço. (A-C) Análise por citometria de fluxo das frações CD3⁺ e CD11b⁺ utilizando os anticorpos indicados. (D-F) Imagens representativas (abaixo) mostram micróglia, células T CD3⁺ e células mieloides esplênicas 7 dias após o cultivo, após isolamento do cérebro e do baço (Escala: 20x). Abreviações: SMCs = células mieloides do baço; MG = micróglia. Clique aqui para visualizar uma versão maior desta figura.
| Região | Peso do tecido (g) | Pré-isolamento | Células T CD3+ | BrMCs/SMC CD11b+ | |||
| PWH | células viáveis | células/g de tecido | células viáveis | células/g de tecido | células viáveis | células/g de tecido | |
| FCP | 18,25 | 8,82E+06 | 4,83E+05 | 7,30E+05 | 1,33E+04 | 2,82E+06 | 1,55E+05 |
| PCT | 4,1 | 3,53E+05 | 8,61E+04 | 1,20E+05 | 2,93E+04 | ||
| TCX | 16 | 4,15E+06 | 2,59E+05 | 2,79E+06 | 1,74E+05 | ||
| OCC | 4,24 | 1,75E+06 | 4,13E+05 | 4,50E+05 | 1,06E+05 | ||
| CRB | 11,4 | 4,15E+06 | 3,64E+05 | 2,64E+06 | 2,32E+05 | ||
| H | 1 | 1,23E+06 | 1,23E+06 | 6,00E+04 | 6,00E+04 | ||
| SPL | 5,25 | 2,82E+08 | 5,37E+07 | 2,98E+07 | 5,68E+06 | 9,60E+06 | 1,83E+06 |
Tabela 1: O rendimento de cada tipo celular após o isolamento em duas etapas de células do SNC.
Discussão
Para coletar dados reprodutíveis com este protocolo, é importante seguir cuidadosamente cada etapa. Omitir ou acelerar qualquer parte pode reduzir o rendimento, a viabilidade e a pureza celular. O fator mais crítico antes da análise é a rapidez com que os tecidos são processados após a morte42. O tecido cerebral humano deve ser manipulado o mais rápido possível, idealmente dentro de 6–12 h. Esperar mais tempo faz com que antígenos de superfície das micróglias, como TMEM119 e P2RY12, se degradem e reduz a viabilidade celular20. Para evitar isso, é fundamental garantir que os tecidos sejam transferidos prontamente e armazenados imediatamente a 4 °C em HBSS com DNase I.
A dissociação mecânica deve ser ajustada cuidadosamente43. A homogeneização excessiva rompe as células e libera DNA, o que causa agregação e reduz tanto o rendimento quanto a eficiência da coluna44. Se os tecidos não forem suficientemente homogeneizados, células vivas permanecerão aprisionadas dentro dos fragmentos teciduais. A adição de DNase I ao meio de dissociação ajuda a prevenir a agregação45. Utilizar de três a quatro ciclos de moagem com lavagens entre eles geralmente funciona bem. Para a centrifugação em gradiente de densidade de Percoll, é importante seguir exatamente as configurações da centrífuga e não usar o freio, pois isso misturará as camadas e comprometerá a separação das células45. Ao adicionar HBSS à suspensão de Percoll, o HBSS deve ser vertido lentamente ao longo da parede do tubo para manter as camadas separadas. Se os pesquisadores forem novos nesse procedimento, é aconselhável praticar com soluções coloridas antes de usar tecidos valiosos. Durante a separação magnética em coluna CD11b+, as células e todos os tampones devem ser mantidos a 4–8 °C. Se a temperatura aumentar acima desse intervalo durante a incubação com microesferas, pode ocorrer marcação inespecífica, capa de anticorpos e captação de esferas, tudo o que reduzirá significativamente a pureza e a eficiência de seleção33.
Este protocolo pode ser ajustado para se adequar a diferentes tipos de tecidos ou configurações de laboratório. Se o tecido contiver muitas hemácias, como quando a perfusão cardíaca for incompleta, um passo de lise com ACK pode ser adicionado antes da centrifugação em gradiente de Percoll para removê-las e melhorar a separação46. A incubação com ACK não deve ser realizada por longos períodos, pois isso pode comprometer a viabilidade dos leucócitos47. Se os rendimentos permanecerem baixos, os detritos retidos no filtro devem ser examinados ao microscópio estereoscópico. Se houver uma grande quantidade de tecido viável, o número de ciclos de trituração pode ser aumentado ou os fragmentos de tecido podem ser cortados menores que 0,5 g por filtro. Ao recuperar a partir do gradiente de Percoll, é ideal deixar uma pequena quantidade de Percoll acima do pellet, em vez de correr o risco de perder a interfase. Se a coluna entupir durante a separação MACS, isso geralmente indica que um número excessivo de células foi carregado ou que ainda há detritos na suspensão.
Embora este protocolo tenha sido desenvolvido para tecidos cerebrais humanos infectados pelo HIV, existem algumas limitações importantes a serem consideradas na interpretação dos resultados. A dissociação mecânica sempre induz estresse celular, o que pode alterar temporariamente a expressão gênica das micróglias e ativar vias inflamatórias33,48. Outra limitação é o uso do CD11b como marcador principal de seleção. O CD11b está presente em muitas células mieloides do SNC, não apenas nas micróglias, e também é encontrado em monócitos e macrófagos infiltrantes, que são mais comuns em tecidos infectados pelo HIV devido à neuroinflamação49. Para distinguir micróglias residentes de células infiltrantes, é necessária uma análise adicional utilizando marcadores específicos de micróglias, como TMEM119, P2RY12 e SALL120,50. Uma terceira limitação é a disponibilidade de tecido e as diferenças entre os doadores. Amostras cerebrais humanas post-mortem não podem ser substituídas, tornando extremamente difícil otimizar o protocolo utilizando réplicas técnicas do mesmo doador. Além disso, existem variações entre os tecidos quanto ao rendimento, viabilidade e ativação das micróglias, especialmente em pessoas vivendo com HIV (PWH), cujo status neurocognitivo, histórico de terapia antirretroviral (ART) e outros problemas de saúde variam amplamente. Essas diferenças devem ser cuidadosamente registradas e controladas nos experimentos.
Em comparação com outros métodos, o isolamento baseado em FACS utilizando anticorpos contra CD11b, CD45, TMEM119 ou P2RY12 alcança alta pureza, mas exige equipamentos caros, é demorado e aumenta o estresse celular33,51. Também resulta em menor recuperação celular do que os métodos baseados em microesferas magnéticas52. A imunoplaca é muito específica, mas igualmente demorada, requer preparação especializada do substrato e não é eficaz para processar tecido de múltiplas regiões53. Os kits comerciais de dissociação enzimática podem melhorar o rendimento de células únicas e reduzir o estresse mecânico, mas são mais caros e podem alterar marcadores de superfície celular pela atividade de proteases, reduzindo assim a eficiência de marcação em etapas subsequentes de imunomagnetismo ou citometria de fluxo54,55. Assim, este protocolo inclui digestão enzimática suave durante a etapa principal de dissociação para preservar antígenos de superfície, o que é especialmente importante para marcadores sensíveis como CD11b, CD68 e TMEM119. A abordagem passo a passo de esgotamento e enriquecimento imunomagnético utilizada aqui, com esgotamento de linfócitos T CD3+ seguido de seleção positiva de CD11b+, oferece uma vantagem real no fluxo de trabalho em comparação com protocolos de única etapa. Isso permite a recuperação de linfócitos T para estudos imunológicos paralelos, ao mesmo tempo que maximiza a pureza da fração mieloide. Essa recuperação dupla é especialmente útil na pesquisa sobre reservatórios de HIV, onde tanto as células T quanto as células mieloides no SNC são importantes para o estudo.
As células CD11b+ isoladas podem ser utilizadas para diversas aplicações de pesquisa. Para o estudo de reservatórios virais, esta fração é adequada para a medição do antígeno p24 do HIV, do número de cópias de DNA/RNA do HIV por PCR digital em gotas e ensaios de crescimento viral ex vivo56,57. Todos esses métodos exigem células mieloides viáveis e enriquecidas, sendo importantes para compreender o reservatório no SNC que persiste apesar da TARV58. Para estudos transcriptômicos, as células preparadas com este protocolo são adequadas tanto para sequenciamento de RNA em massa quanto em nível de única célula59,60. Isso permite aos pesquisadores estudar a ativação da micróglia, assinaturas de micróglia relacionadas à doença e as respostas da micróglia à infecção pelo HIV em nível de única célula61. Com pequenas alterações, como o uso de diferentes kits de seleção e o ajuste dos volumes do gradiente, este fluxo de trabalho pode ser aplicado a outras doenças neurológicas, incluindo Alzheimer, esclerose múltipla, COVID de longa duração e lesão cerebral traumática, nas quais a análise da micróglia em tecido post-mortem também é necessária49,62.
Em resumo, este protocolo fornece um método confiável, escalável, flexível e reprodutível para o isolamento de células mieloides/microglia a partir de tecidos cerebrais humanos e animais. Como funciona com diversas plataformas downstream e permite a recuperação de múltiplos tipos de células imunes a partir de uma única amostra de tecido, é uma ferramenta valiosa para pesquisadores em neuroimunologia, virologia e neuropatologia.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
We thank Dr. Sara Gianella from the “Last Gift” cohort at UC San Diego for collecting human tissues. We also thank Dr. Ann Chahroudi at the Emory National Primate Research Center, Dr. Afam Okoye at Oregon Health & Science University, and Dr. Satya Dandekar at the University of California, Davis, for providing rhesus macaque tissues. This work was supported by R21MH128034, R01MH136852, R21AI167709, R01MH139446, and R01AI186609. The funders had no role in study design, data collection and analysis, decision to publish, or preparation of the manuscript.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| seringas de 10 mL | VWR | Cat# 76837-040 | |
| Pipetas serológicas de 25 mL | VWR | Cat# 76201-710 | |
| tampão de lise ACK | Thermo Fisher Scientific | Cat# A1049201 | |
| Antibiótico-Antimicótico (100x) | Thermo Fisher Scientific | Cat# 15240112 | |
| Solução de Lavagem autoMACS | Miltenyi Biotec | Cat# 130-091-222 | |
| Cápsula de segurança biológica (NBL-2) | |||
| CD11b MicroBeads, humano e murino – linfofilizado | Miltenyi Biotec | Cat# 130-097-142 | |
| CD11b MicroBeads, primata não humano | Miltenyi Biotec | Cat# 130-091-100 | |
| CD3 MicroBead Kit, primata não humano | Miltenyi Biotec | Cat# 130-092-012 | |
| Lâminas para contagem de células | Thermo Fisher Countess | Cat# C10312 | Alternativa VWR, Cat# 10228-0050 |
| Clorox bleach germicida | Essendant | Cat# 50371500 | |
| Placas de Cultura Não Tratadas Corning | Thermo Fisher Scientific | Cat# 08-772-32 | |
| Macaco Cynomolgus M-CSF | Kingfisher Biotech | Cat# RP1612Y-100 | |
| Seringas descartáveis com pontas Luer-Lok | BD | Cat# 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | Cat# 11320082 | |
| DNase I, recombinante, livre de RNase | Roche | Cat# 4716728001 | |
| Tampão EasySep | STEMCELL Technologies | Cat# 20144 | |
| EasySep FITC Positive Selection Kit II | STEMCELL Technologies | Cat# 17682 | |
| EasySep Liberação Humana CD3 Kit de Seleção Positiva | STEMCELL Technologies | Cat# 17751 | |
| Filtros Celulares Falcon, 70 µm e 100 µm | Corning | Cat. nº 21008-950 | |
| Soro bovino fetal (SBF) | VWR | Cat#97068-091 | |
| Pinça curva fina | VWR | Cat# 82027-410 | |
| Gentamicina | Thermo Fisher Scientific | Cat# 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | Cat# 11875-119 | |
| HBSS, 1x sem cálcio, magnésio e vermelho de fenol | Thermo Fisher Scientific | Cat# 14175103 | |
| HBSS, 10x com cálcio, magnésio, vermelho de fenol | Thermo Fisher Scientific | Cat# 14060040 | |
| Hemocitômetro ou contador automático de células | |||
| Fator estimulador de colônias de macrófagos humano | PeproTech | Cat# 300-25 | Cat# alternativo 78057 |
| Solução isotônica de lavagem/diluição para separação magnética | Miltenyi Biotec | 130-091-222 | |
| L-Glutamina (200 mM) | Thermo Fisher Scientific | Cat# 25030-061 | |
| Solução estoque de BSA MACS (20x) | Miltenyi Biotec | Cat# 130-091-376 | |
| Sistema de separação magnética | EasySep ou MACS | ||
| Colunas MS | Miltenyi Biotec | Cat# 130-042-201 | |
| Penicilina-Estreptomicina | Thermo Fisher Scientific | Cat# 15140122 | |
| Percoll | Cytiva/GE Healthcare, | Cat# GE17-0891-01 | |
| Jalecos de proteção | Kappler ProVent | Cat# 17-988-497B | |
| Centrífuga refrigerada | |||
| Piruvato de Sódio (100 mM) | Thermo Fisher Scientific | Cat# 11360070 | |
| Pinça para espécimes | VWR | Cat# 82027-440 | Cat# Alternativo 82027-438 |
| Lâminas descartáveis estéreis | Cardinal Health | Cat# 11213-237 | Alternativa VWR Nº do Cat. 89140-800 |
| Enzima TrypLE Express (1x), vermelho de fenol | ThermoFisher | Cat# 1250510 |
Referências
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.