Este protocolo descreve procedimentos passo a passo para avaliar a resistência de organismos inteiros ao estresse térmico, estresse oxidativo, estresse do retículo endoplasmático e estresse mitocondrial. Também fornece métodos para avaliar se os neurônios desempenham um papel na resistência ao estresse.
Artigo de método
Métodos para Medir a Resistência a Múltiplos Estresses em Caenorhabditis elegans
Neste artigo
Resumo
Resumo
Os organismos são expostos a uma variedade de estressores ambientais e celulares ao longo de suas vidas. A capacidade de resistir a diferentes estressores está fortemente correlacionada com o período de saúde e a longevidade dos organismos. Caenorhabditis elegans (C. elegans) é um organismo modelo ideal para a medição da resistência ao estresse, facilitando a pesquisa sobre mecanismos moleculares conservados que sustentam essa resistência. C. elegans também possui um sistema nervoso simplificado, fundamental para compreender a base neural da resistência ao estresse. Aqui, apresentamos métodos para medir a resistência ao estresse em C. elegans sob quatro condições diferentes de estresse: estresse térmico, estresse do retículo endoplasmático (RE), estresse mitocondrial e estresse oxidativo. Grupos de vermes são colocados em placas de ágar sólido e expostos a temperaturas desafiadoras para induzir estresse térmico, ou a ágar contendo diferentes doses de compostos que induzem estresse do RE, mitocondrial ou oxidativo. Estabelecemos doses crescentes de cada estresse e titulamos a dose ideal para determinar as diferenças na resistência ao estresse em uma linhagem com ablação dos neurônios RIC em comparação com a linhagem selvagem, como exemplo. Sob condições de estresse, a sobrevivência de C. elegans é monitorada hora a hora ou diariamente, e curvas de sobrevivência são traçadas e comparadas para identificar diferentes níveis de resistência ao estresse em diversas linhagens de C. elegans. Isso fornece uma abordagem reprodutível para avaliar a resistência a múltiplos estressores em diferentes doses e escalas de tempo em C. elegans selvagens, mutantes ou com manipulação neuronal, além de auxiliar na descoberta dos mecanismos moleculares e neurais subjacentes a múltiplos estressores.
Introdução
Os organismos enfrentam uma variedade de estresses ambientais ao longo de suas vidas. A maioria dos estressores, incluindo calor, hipóxia, radiação, estresse oxidativo, estresse osmótico e estresse patogênico, causa disfunção celular e desequilíbrios na homeostase, desencadeando respostas intracelulares ao estresse. Os organismos desenvolvem vias de resposta ao estresse altamente conservadas para lidar com desafios e estressores ambientais dinâmicos. Essas vias conservadas de resposta ao estresse incluem a resposta ao choque térmico (HSR)1, as respostas a proteínas desdobradas (UPR) no retículo endoplasmático (ER) e nas mitocôndrias2, e a resposta ao estresse oxidativo3. Os reguladores principais de diferentes vias de resposta ao estresse, geralmente fatores de transcrição, induzem a expressão de genes responsivos para restaurar a proteostase e promover a sobrevivência celular4. Essas respostas incluem a síntese de chaperonas que refazem o dobramento de proteínas mal dobradas e a remoção de proteínas danificadas por meio da degradação proteica4. A falha na ativação das respostas ao estresse resulta no acúmulo de proteínas danificadas no citoplasma ou em organelas, levando à disfunção celular e tecidual. O desequilíbrio na resposta celular ao estresse tem sido associado a diversas doenças crônicas, que vão desde neurodegeneração até síndrome metabólica5,6. Em contraste, a ativação adequada das vias de resposta ao estresse leva à melhoria do período de saúde e a uma significativa extensão da longevidade7. Portanto, é importante investigar os mecanismos moleculares da resistência ao estresse para aproveitar a resposta protetora ao estresse com o objetivo de melhorar a saúde. Assim, é necessário estabelecer métodos e técnicas reprodutíveis para quantificar com precisão a resistência ao estresse em animais vivos.
Descobertas nos últimos 15 anos demonstraram um papel da sinalização neural na melhoria da resistência ao estresse em múltiplas espécies8. As descobertas iniciais mostraram que a RSH e a RUP do RE em neurônios são suficientes para ativar a resposta ao estresse em tecidos não neuronais, estabelecendo o conceito de regulação não autônoma celular da resistência ao estresse8,9,10. Desde essa descoberta inicial, evidências crescentes têm mostrado que múltiplas vias de resistência ao estresse respondem a estímulos ambientais e promovem a resistência ao estresse por meio da sinalização neural. Especificamente, a RSH10,11, a RUP do RE12,13, a resposta ao estresse mitocondrial de proteínas desdobradas (RUPmt)14,15 e a resposta ao estresse oxidativo3, cada uma promove a resistência ao estresse de forma não autônoma celular por meio dos neurônios. O mecanismo de regulação não autônoma celular da resistência ao estresse é conservado entre organismos, incluindo a mosca-das-frutas D. melanogaster16,17,18,19 e camundongos20,21.
Para facilitar pesquisas que estudam o papel dos neurônios na resistência ao estresse sob múltiplos estressores, apresentamos aqui um protocolo sistemático para testar a resistência frente a quatro estressores regulados neuronalmente: estresse térmico, estresse do retículo endoplasmático, estresse mitocondrial e estresse oxidativo. C. elegans, um organismo modelo de fácil manipulação, foi utilizado para medir a resistência ao estresse frente a esses quatro estressores. O uso de C. elegans em ensaios de resistência ao estresse permite não apenas estudar a ativação das respostas ao estresse no nível celular, mas também no nível do organismo inteiro.
As vias de resposta ao estresse ativadas pelo estresse térmico, estresse do retículo endoplasmático, estresse mitocondrial e estresse oxidativo são conservadas e funcionalmente importantes em organismos, incluindo humanos22,23,24,25. O estresse térmico leva ao mau dobramento e agregação de proteínas e ativa a resposta ao choque térmico, que é essencial para manter a homeostase proteica26. A temperatura ambiental fisiológica de C. elegans é 20 °C e temperaturas superiores a 25 °C induzem estresse térmico em C. elegans27. Induzimos estresse térmico em três temperaturas elevadas desafiadoras: 30 °C, 35 °C e 37 °C.
O retículo endoplasmático (RE) é o local primário para a síntese e dobramento de proteínas28. O acúmulo de proteínas desdobradas ou mal dobradas dentro da luz do RE ativa respostas à proteína desdobrada para restaurar a proteostase29. O estresse no RE pode ser induzido por um agente químico, a tunicamicina, que bloqueia a glicosilação N-ligada e provoca o acúmulo de proteínas mal dobradas na luz do RE30. O aumento da resistência ao estresse por desdobramento proteico na luz do RE indica uma sobrevida aumentada12. Exponhamos os vermes a diferentes doses de tunicamicina (25–200 µg/mL) e avaliamos sua sensibilidade medindo sua sobrevivência.
As mitocôndrias são o centro metabólico celular e as "usinas de energia" da célula. Espécies reativas de oxigênio (ERO) e proteínas desdobradas nas mitocôndrias desencadeiam respostas a proteínas desdobradas mitocondriais e induzem estresse mitocondrial31. O estresse mitocondrial pode ser induzido por antimicina A, um inibidor do complexo III mitocondrial que bloqueia a transferência de elétrons e provoca a produção de ERO32. Utilizamos diferentes doses de antimicina A (5–80 µg/mL) para identificar uma dose ideal para o ensaio de resistência ao estresse mitocondrial.
O estresse oxidativo é geralmente induzido por toxinas ambientais e por radicais livres celulares produzidos pelo metabolismo. O estresse oxidativo causa danos a proteínas, lipídios e DNA em todos os organismos33. O paraquat, um herbicida que transfere elétrons para o oxigênio e gera uma quantidade excessiva de radicais superóxido, é um potente indutor de estresse oxidativo34. Aplicamos quatro doses crescentes de paraquat (2,5–20 mM) e demonstramos uma faixa de sobrevida máxima que varia de 3 a 12 dias em C. elegans.
Essas quatro condições de estresse são simples de produzir resultados altamente reprodutíveis de resistência ao estresse em C. elegans. Métodos de resistência ao estresse já foram relatados anteriormente35,36,37,38,39,40. Em comparação com uma revisão publicada anteriormente que resume diferentes agentes estressores e análises de sobrevivência35, este artigo estabelece protocolos passo a passo detalhados e viáveis para realizar ensaios de estresse reprodutíveis e consistentes. Vários protocolos publicados anteriormente enfocavam um ensaio de estresse específico, como choque térmico36 ou estresse oxidativo38; enquanto este protocolo demonstra os quatro diferentes ensaios de estresse: térmico, do retículo endoplasmático, mitocondrial e oxidativo. Protocolos de ensaio de estresse relatados anteriormente também apresentam um ensaio final com repórteres fluorescentes, tais como repórteres transcricionais fluorescentes específicos para vias do estresse do retículo endoplasmático, mitocondrial e oxidativo40, ou da resposta ao choque térmico39; enquanto este protocolo utiliza ensaios de sobrevivência para medir efetivamente a saúde geral de C. elegans. Importante ressaltar que este protocolo apresenta a titulação de doses para os quatro ensaios, fornecendo referências para a faixa de dose eficaz que pode ser selecionada para os ensaios de estresse; este protocolo otimizou a escala de tempo (de horas a dias) em diferentes ensaios de estresse; além disso, apresentamos um novo papel de um neurônio na regulação de múltiplas respostas ao estresse, como exemplo para testar se neurônios regulam a resistência ao estresse.
O desenvolvimento de um ensaio de resistência ao estresse requer a seleção de um agente estressante apropriado e de uma métrica de avaliação confiável. Os ensaios de sobrevivência em C. elegans têm sido ferramentas poderosas para medir processos fisiológicos, incluindo longevidade, resistência ao estresse e infecções patológicas. Uma vantagem fundamental do uso de C. elegans em ensaios de sobrevivência é que vermes sincronizados de mesma idade são fáceis de preparar e testar, devido à sua autofecundação, grande tamanho da prole e curto ciclo de desenvolvimento de três dias, do ovo até adultos jovens. Machos são raros em populações naturais de C. elegans cultivados e, portanto, geralmente não são utilizados em ensaios de sobrevivência, incluindo este protocolo, sendo empregados principalmente em cruzamentos genéticos35. Em comparação com outros métodos de avaliação final (por exemplo, repórteres fluorescentes, acúmulo de proteínas e lipídios), os ensaios de sobrevivência são eficazes para medir a saúde geral de C. elegans e levam um tempo relativamente curto para serem concluídos, geralmente de horas a várias semanas, dependendo da dose dos agentes estressantes. Utilizamos as taxas de sobrevivência como indicador principal de resistência ao estresse em diferentes linhagens de C. elegans. A sobrevivência é determinada pela motilidade e pela resposta a uma estimulação mecânica suave; a ausência de resposta à estimulação é utilizada para definir a mortalidade nos ensaios de estresse em C. elegans. Os ensaios de sobrevivência em C. elegans podem ser realizados em meio sólido ou líquido com alimento bacteriano35. No entanto, o meio líquido não é o habitat natural dos vermes, e eles são forçados a se agitar constantemente no cultivo líquido, o que resulta em uma curva de sobrevivência mais curta41. Aqui, utilizamos o meio sólido para avaliar os efeitos de diferentes concentrações de agentes estressantes sobre a sobrevivência de vermes selvagens e mutantes com ablação neuronal. Esses dados de titulação por concentração podem fornecer orientação para outros pesquisadores que realizam ensaios comparáveis de resistência ao estresse.
Protocolo
Os experimentos envolvendo C. elegans foram conduzidos na Universidade Estadual do Kansas, em Manhattan, KS, EUA, de acordo com as diretrizes institucionais de biossegurança e de laboratório. Como C. elegans é um organismo modelo invertebrado, a aprovação do comitê de ética em pesquisas com animais vertebrados não foi necessária para este estudo. Os detalhes de todos os reagentes, equipamentos, softwares e linhagens utilizados estão listados na Tabela de Materiais.
1. Prepare placas de NGM (Meio de Crescimento para Nematoides) e cultive Escherichia coli OP50
- Preparar placas de NGM
- Pese 3 g de NaCl, 17 g de ágar (em pó) e 2,5 g de peptona, adicione 900 mL de água desionizada ultrapura (dd) H2O e complete o volume final para 1 L, esterilizando em autoclave. Resfrie o meio até aproximadamente 60 °C em banho-maria a 60 °C.
- Adicione 1 mL de CaCl2 1 M (preparado em ddH2O e esterilizado por filtração), 1 mL de colesterol 5 mg/mL (preparado em etanol e esterilizado por filtração), 1 mL de MgSO4 1 M (preparado em ddH2O e esterilizado por filtração) e 25 mL de tampão KP 1 M.
Para preparar o tampão KP, misture 130 mL de K2HPO4 1 M com 870 mL de KH2PO4 1 M preparados em ddH2O. Após misturar completamente, ajuste o pH para 6,0. Após a preparação, o pH medido geralmente está próximo de 6,0 e nenhum ajuste adicional é necessário. A faixa aceitável de pH para o tampão KP é de 5,8 a 6,2, com pH alvo de 6,0. Verifique se o pH final está aproximadamente em 6,0 antes do uso. Se necessário, ajuste para pH 6,0 utilizando K2HPO4 1 M ou KH2PO4 1 M. - Misture bem e despeje o meio (NGM) nas placas (placas de Petri). Para placas de 60 mm, despeje 10 mL de meio NGM por placa; para placas de 35 mm, despeje 3 mL de meio NGM por placa. Deixe as placas de ágar NGM em temperatura ambiente (22–25 °C) sobre uma bancada plana por pelo menos 24 h antes de semear a comida bacteriana.
CAUTION: Ao preparar e despejar ágar NGM fundido, use luvas resistentes ao calor e EPIs laboratoriais apropriados para prevenir queimaduras e exposição ao líquido quente.
- Preparar alimento bacteriano Escherichia coli OP50 para Caenorhabditis elegans
- Estrie bactérias Escherichia coli OP50 em uma placa de ágar Luria-Bertani (LB) e incube a 37 °C durante a noite (placas de ágar LB: adicione 1 g de NaCl, 1 g de triptona, 0,5 g de extrato de levedura e 1,5-2,0 g de pó de ágar a 100 mL de ddH2O, esterilize em autoclave por 20 min, resfrie a 50-60 °C e despeje o meio nas placas. Coloque sobre uma bancada limpa e plana e deixe secar).
- Inocule uma colônia isolada em 100 mL de meio LB líquido (meio LB: adicione 1 g de NaCl, 1 g de triptona e 0,5 g de extrato de levedura a 100 mL de ddH2O, esterilize em autoclave por 20 min. Resfrie abaixo de 37 °C antes da inoculação).
- Cultive as bactérias em incubadora com agitação a 37 °C até que a suspensão bacteriana atinja uma densidade óptica a 600 nm (OD600) de aproximadamente 0,3 em uma diluição 10 vezes da suspensão bacteriana (100 µL de suspensão bacteriana misturados com 900 µL de meio LB). Recolha e armazene a suspensão bacteriana a 4 °C. O alimento bacteriano pode ser armazenado por até uma semana antes de ser semeado em placa de NGM40.
- Utilize uma pipeta repetidora para semear as bactérias OP50 nas placas de NGM. Semeie 200 µL para placas de ágar de 60 mm e 100 µL para placas de ágar de 35 mm. Deixe as placas de NGM semeadas em temperatura ambiente (~22–25 °C) sobre uma bancada plana por pelo menos 24 h antes do uso. Não deixe as placas em temperatura ambiente por mais de 48 h. Organize as placas semeadas em uma caixa plástica limpa e armazene-as a 4 °C.
NOTE: Se estiver usando placas não ventiladas, pode ser necessário mais tempo para secagem do OP50 semado.
CAUTION: Manipule culturas de E. coli OP50 utilizando práticas microbiológicas apropriadas e use jaleco laboratorial, luvas e proteção ocular. Desinfete superfícies de trabalho e descarte resíduos bacterianos de acordo com os procedimentos institucionais de biossegurança.
2. Manutenção e sincronização de C. elegans
O fluxo de trabalho desta seção é resumido na Figura 1A.
- Mantenha os vermes a 20 °C em placas de NGM semeadas com OP50, transferindo adultos para novas placas de NGM semeadas com OP50 duas vezes por semana para evitar a inanição dos vermes. Coloque 20–40 vermes adultos grávidos em uma placa fresca de NGM semeadas com OP50 usando uma alça de platina, e remova quaisquer larvas e ovos que forem transferidos junto com os adultos grávidos da placa original. O uso de um número conhecido de vermes grávidos facilita o registro preciso e garante a remoção completa deles na etapa posterior (seção 1.2).
NOTA: Um total de 20–40 vermes grávidos é suficiente para produzir 80–120 ovos em 2 h, com base na condição de uma linhagem selvagem (N2). A postura de ovos está em sua janela ideal quando os adultos grávidos estão no primeiro dia (dia 1) da fase adulta. Para linhagens com fecundidade menor ou maior, ajuste o número de vermes grávidos conforme necessário. O objetivo desta etapa é obter ovos suficientes que se desenvolverão em vermes sincronizados para ensaios de estresse subsequentes. - Após aproximadamente 2 h, remova os vermes grávidos da placa. Conte o número de vermes grávidos removidos nesta etapa e confirme que todos os 20–40 vermes grávidos colocados na placa foram removidos.
- Incube as placas contendo ovos a 20 °C até que os vermes atinjam o estágio L4 tardio para os ensaios de estresse. Sincronize os vermes ao estágio L4 para minimizar a variabilidade introduzida pelas diferenças na idade adulta e no estado reprodutivo12,35,37,38,40,42,43. A 20 °C, os vermes atingem o estágio L4 tardio uniformemente sincronizado aproximadamente 54–58 h após a postura dos ovos em placas de ágar sólido na linhagem selvagem (nossa observação e 36,40).
NOTA: Para linhagens com desenvolvimento atrasado, ajuste o tempo de sincronização ao estágio L4 tardio de acordo com suas taxas de desenvolvimento específicas.
CAUTELA: Manipule C. elegans utilizando práticas microbiológicas apropriadas e use jaleco e luvas de laboratório para minimizar a exposição a material biológico e prevenir contaminação.
3. Condição de estresse e coleta de dados
- Ensaio de estresse térmico
Fluxo de trabalho desta seção é resumido na Figura 1B.- Sincronize os vermes até o estágio L4 tardio (seção 2) e mantenha-os a 20 °C. Transfira os vermes sincronizados no estágio L4 para placas NGM de 35 mm semeadas com OP50 (seção 1), utilizando 4 placas por grupo como réplicas técnicas, com 30–35 vermes por placa. Consulte a seção 4 para a configuração de réplicas biológicas.
- Coloque as placas com vermes no estágio L4 tardio em um incubador a 30, 35 ou 37 °C. Certifique-se de que o incubador atinja a temperatura definida antes de colocar as placas com os vermes a serem testados. A sobrevivência média de vermes selvagens sob 30, 35 ou 37 °C varia de aproximadamente 4 h a 3 dias (Figura 2B–D) em comparação com uma sobrevivência média fisiologicamente não estressada de cerca de 20 dias (Figura 2A).
ETAPA CRÍTICA: Coloque todas as placas do ensaio com o lado do ágar voltado para baixo, em uma única camada, no incubador a 35 °C, para permitir uma equilibração térmica rápida e uniforme.
NOTA: Durante os ensaios de estresse térmico a 30, 35 ou 37 °C, a maioria dos vermes não põe ovos. Nos raros casos em que ovos são postos, nenhum deles é observado eclodindo. Portanto, não é necessário transferir os vermes para placas novas. - Conte o número de vermes mortos em cada ponto de tempo de cada placa de réplica técnica e registre o número em uma planilha de pontuação. A sobrevivência dos vermes é avaliada a cada hora sob estresse térmico a 35 °C ou 37 °C e uma vez por dia sob estresse térmico a 30 °C. A avaliação é realizada sob microscópio estereoscópico à temperatura ambiente. Durante a avaliação, remova apenas a placa que está sendo examinada do incubador; todas as outras placas devem permanecer na temperatura designada de estresse térmico para minimizar interrupções na exposição ao estresse térmico. Essa prática ajuda a manter condições experimentais consistentes em todas as amostras.
ETAPA CRÍTICA: Para minimizar a interrupção da exposição ao estresse térmico, mantenha cada placa fora do incubador por não mais de 3 min durante cada sessão de avaliação. Dependendo da sobrevivência dos vermes em diferentes pontos de tempo durante o ensaio de estresse, avaliar uma placa à temperatura ambiente geralmente leva de aproximadamente 30 s a 3 min. A ordem de avaliação é importante considerando o tempo gasto na avaliação manual. Recomendamos uma ordem de avaliação em que se analise uma réplica técnica de cada condição até que todas as réplicas técnicas sejam concluídas em todas as condições. Por exemplo, em três condições/grupos (A, B e C) com 4 placas de réplica técnica, organize a ordem de avaliação como: A1, B1, C1 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - Avalie a sobrevivência dos vermes com base na presença ou ausência de resposta de movimento a uma leve estimulação física. Verme que se movimenta ativamente é considerado vivo, e nenhuma estimulação física é necessária. Para vermes que não exibem movimento espontâneo, estimule suavemente tocando duas vezes a região posterior do corpo com uma alça de fio de platina. A ausência de resposta de movimento é registrada como morte, e o verme morto é removido da placa após o registro. Aproximadamente 2 s de observação após cada toque são suficientes para determinar se há resposta de movimento. Recomenda-se o uso de um contador manual para registrar o número de vermes vivos e mortos durante a contagem e reduzir erros. Para garantir que todos os vermes sejam contados uma única vez e não repetidamente, coloque uma folha plástica transparente com grade sob a placa ou desenhe uma grade na parte inferior da placa para dividir a placa em seções para contagem.
NOTA: Retorne as placas imediatamente ao incubador com a condição térmica após a avaliação. - Monitore a sobrevivência dos vermes em intervalos regulares até que todos os animais estejam mortos ou censurados de acordo com os critérios pré-definidos. Compile os dados de sobrevivência registrados e utilize-os para gerar curvas de sobrevivência para análise subsequente.
- Ensaio de estresse no retículo endoplasmático (RE)
Fluxo de trabalho desta seção é resumido na Figura 1C.- Prepare placas de meio para o ensaio de estresse no RE. Adicione solução estoque de tunicamicina (10 mg/mL em dimetilsulfóxido (DMSO), armazenada a –20 °C) ao meio NGM líquido (da seção 1.1.2) para obter uma concentração final de 25, 50, 100 ou 200 µg/mL. Por exemplo, para 1 L de meio para ensaio de estresse no RE, adicione 2,5, 5, 10 ou 20 mL da solução estoque de tunicamicina (10 mg/mL em DMSO) para alcançar uma concentração final de 25, 50, 100 ou 200 µg/mL de tunicamicina nas placas de meio. Se um controle não tratado for incluído no ensaio, adicione a mesma quantidade de DMSO (2,5, 5, 10 ou 20 mL) ao meio controle correspondente.
ETAPA CRÍTICA: Resfrie o meio NGM autoclavado até aproximadamente 55 °C sob agitação e adicione a tunicamicina até a concentração final desejada. Misture bem antes de despejar 3 mL do meio NGM com tunicamicina em cada placa de 35 mm. Semee cada placa de ágar de 35 mm com 100 µL de bactérias OP50 (seção 1.2). Placas NGM semeadas com OP50 contendo tunicamicina podem ser armazenadas a 4 °C por até uma semana antes do uso.
ADVERTÊNCIA: A tunicamicina é perigosa e deve ser manipulada em uma cabine de segurança química, usando jaleco de laboratório, luvas e proteção ocular. Evite inalação e contato com a pele ou os olhos. - Sincronize os vermes até o estágio L4 tardio (seção 2) e mantenha-os a 20 °C. Transfira os vermes sincronizados no estágio L4 para placas NGM de 35 mm semeadas com OP50 contendo tunicamicina, utilizando 4 placas por grupo como réplicas técnicas, com 30–35 vermes por placa. Consulte a seção 4 para a configuração de réplicas biológicas.
- Incube todas as placas a 20 °C. Registre diariamente o número de vermes mortos. A sobrevivência média de vermes selvagens sob 25, 50, 100 ou 200 µg/mL de tunicamicina varia de aproximadamente 8 a 11 dias (Figura 2E,F) em comparação com uma sobrevivência média fisiologicamente não estressada de cerca de 20 dias (Figura 2A).
NOTA: No ensaio de estresse no RE induzido por tunicamicina, há postura de ovos, mas eles não eclodem em placas de ágar contendo tunicamicina. Portanto, não é necessário transferir os vermes para placas novas. - Conte diariamente o número de vermes mortos em cada placa de réplica técnica e registre o número em uma planilha de pontuação. A avaliação é realizada manualmente sob microscópio estereoscópico na bancada à temperatura ambiente. Verme que se movimenta ativamente é considerado vivo e nenhuma estimulação física é necessária. Para vermes que não exibem movimento espontâneo, estimule suavemente tocando duas vezes a região posterior do corpo com uma alça de fio de platina. A ausência de resposta é registrada como morte e o verme morto é removido da placa após o registro. Recomenda-se o uso de um contador manual para garantir contagem precisa. Para assegurar que todos os vermes sejam contados uma vez e não repetidamente, coloque uma folha plástica transparente com grade sob a placa ou desenhe uma grade na parte inferior da placa para dividir a placa em seções para contagem.
NOTA: Retorne as placas imediatamente ao incubador após a avaliação. Mantenha os vermes no incubador por aproximadamente 24 h antes da próxima avaliação. - Monitore diariamente a sobrevivência dos vermes até que todos os animais estejam mortos ou censurados de acordo com os critérios pré-definidos. Compile os dados de sobrevivência registrados e utilize-os para gerar curvas de sobrevivência para análise subsequente.
- Prepare placas de meio para o ensaio de estresse no RE. Adicione solução estoque de tunicamicina (10 mg/mL em dimetilsulfóxido (DMSO), armazenada a –20 °C) ao meio NGM líquido (da seção 1.1.2) para obter uma concentração final de 25, 50, 100 ou 200 µg/mL. Por exemplo, para 1 L de meio para ensaio de estresse no RE, adicione 2,5, 5, 10 ou 20 mL da solução estoque de tunicamicina (10 mg/mL em DMSO) para alcançar uma concentração final de 25, 50, 100 ou 200 µg/mL de tunicamicina nas placas de meio. Se um controle não tratado for incluído no ensaio, adicione a mesma quantidade de DMSO (2,5, 5, 10 ou 20 mL) ao meio controle correspondente.
- Ensaio de estresse mitocondrial
Fluxo de trabalho desta seção é resumido na Figura 1D.- Prepare placas de meio para o ensaio de estresse mitocondrial. Adicione solução estoque de antimicina A (5 mg/mL em DMSO, armazenada a –20 °C) ao meio NGM líquido (da seção 1.1.2) para obter uma concentração final de 5, 10, 20, 40 ou 80 µg/mL. Por exemplo, para 1 L de meio para ensaio de estresse mitocondrial, adicione 1, 2, 4, 8 ou 16 mL da solução estoque de antimicina A (5 mg/mL em DMSO) para obter uma concentração final de 5, 10, 20, 40 ou 80 µg/mL de antimicina A nas placas de meio. Se um controle não tratado for incluído no ensaio, adicione a mesma quantidade de DMSO (1, 2, 4, 8 ou 16 mL) ao meio controle correspondente.
ETAPA CRÍTICA: Resfrie o meio NGM autoclavado até aproximadamente 55 °C sob agitação e adicione a antimicina A até a concentração final desejada. Misture bem antes de despejar 3 mL do meio NGM com antimicina A em cada placa de 35 mm. Semee cada placa de ágar de 35 mm com 100 µL de bactérias OP50 (seção 1.2). Placas NGM semeadas com OP50 contendo antimicina A podem ser armazenadas a 4 °C por até uma semana antes do uso.
ADVERTÊNCIA: A antimicina A é perigosa e deve ser manipulada em uma cabine de segurança química, usando jaleco de laboratório, luvas apropriadas e proteção ocular. Evite inalação e contato com a pele ou os olhos. - Sincronize os vermes até o estágio L4 tardio (seção 2) e mantenha-os a 20 °C. Transfira os vermes sincronizados no estágio L4 para placas NGM de 35 mm semeadas com OP50 contendo antimicina A, utilizando 4 placas por grupo como réplicas técnicas, com 30–35 vermes por placa. Consulte a seção 4 para a configuração de réplicas biológicas.
- Incube todas as placas a 20 °C. Registre diariamente o número de vermes mortos.
ETAPA CRÍTICA: Devido a problemas de eclosão de ovos e desenvolvimento de larvas, transfira os vermes para placas novas a cada dois dias durante os primeiros 10 dias. Interrompa as transferências quando não forem mais observadas larvas ou ovos novos na placa. Todas as réplicas técnicas devem passar pelo mesmo número de transferências. Por exemplo, quando apenas uma placa necessitar de transferência, todas as placas nesta réplica biológica precisam ser transferidas ao mesmo tempo. A sobrevivência média de vermes selvagens sob 5, 10, 20, 40 ou 80 µg/mL de antimicina A varia de aproximadamente 1,5 a 5 dias (Figura 2G,H) em comparação com uma sobrevivência média fisiologicamente não estressada de cerca de 20 dias (Figura 2A).
NOTA: O ensaio de estresse mitocondrial induzido por antimicina A exige a transferência dos vermes para placas novas a cada dois dias durante os primeiros 10 dias. As transferências são realizadas para evitar superlotação e inanição e para distinguir os vermes experimentais de sua prole. - Conte diariamente o número de vermes mortos em cada placa de réplica técnica e registre o número em uma planilha de pontuação. A avaliação é realizada manualmente sob microscópio estereoscópico na bancada à temperatura ambiente. Verme que se movimenta ativamente é considerado vivo e nenhuma estimulação física é necessária. Para vermes que não exibem movimento espontâneo, estimule suavemente tocando duas vezes a região posterior do corpo com uma alça de fio de platina. A ausência de resposta é registrada como morte e o verme morto é removido da placa após o registro. Recomenda-se o uso de um contador manual para garantir contagem precisa. Para assegurar que todos os vermes sejam contados uma vez e não repetidamente, coloque uma folha plástica transparente com grade sob a placa ou desenhe uma grade na parte inferior da placa para dividir a placa em seções para contagem.
NOTA: Retorne os vermes imediatamente ao incubador após a avaliação. Mantenha os vermes no incubador por aproximadamente 24 h antes da próxima avaliação. - Monitore diariamente a sobrevivência dos vermes até que todos os animais estejam mortos ou censurados de acordo com os critérios pré-definidos. Compile os dados de sobrevivência registrados e utilize-os para gerar curvas de sobrevivência para análise subsequente.
- Prepare placas de meio para o ensaio de estresse mitocondrial. Adicione solução estoque de antimicina A (5 mg/mL em DMSO, armazenada a –20 °C) ao meio NGM líquido (da seção 1.1.2) para obter uma concentração final de 5, 10, 20, 40 ou 80 µg/mL. Por exemplo, para 1 L de meio para ensaio de estresse mitocondrial, adicione 1, 2, 4, 8 ou 16 mL da solução estoque de antimicina A (5 mg/mL em DMSO) para obter uma concentração final de 5, 10, 20, 40 ou 80 µg/mL de antimicina A nas placas de meio. Se um controle não tratado for incluído no ensaio, adicione a mesma quantidade de DMSO (1, 2, 4, 8 ou 16 mL) ao meio controle correspondente.
- Ensaio de estresse oxidativo
Fluxo de trabalho desta seção é resumido na Figura 1E.- Prepare placas de meio para o ensaio de estresse oxidativo. Adicione solução estoque de paraquat (0,5 M em ddH2O, armazenada a –20 °C) ao meio NGM líquido (da seção 1.1.2) para obter uma concentração final de 2,5, 5, 10 ou 20 mM.
ETAPA CRÍTICA: Resfrie o meio NGM autoclavado até aproximadamente 55 °C sob agitação e adicione o paraquat até a concentração final desejada. Misture bem antes de despejar 3 mL do meio NGM com paraquat em placas de 35 mm. Semee cada placa de ágar de 35 mm com 100 µL de bactérias OP50 (seção 1.2). As bactérias OP50 podem ser semeadas 2–3 dias antes do ensaio. Placas NGM semeadas com OP50 contendo paraquat podem ser armazenadas a 4 °C por até uma semana antes do uso.
ADVERTÊNCIA: O paraquat é altamente tóxico e deve ser manipulado em uma cabine de segurança química com luvas apropriadas, jaleco de laboratório e proteção ocular. Evite inalação, ingestão e contato com a pele ou os olhos. - Sincronize os vermes até o estágio L4 tardio (seção 2) e mantenha-os a 20 °C. Transfira os vermes sincronizados no estágio L4 para placas NGM de 35 mm semeadas com OP50 contendo paraquat, utilizando 4 placas por grupo como réplicas técnicas, com 30–35 vermes por placa. Consulte a seção 4 para a configuração de réplicas biológicas.
- Incube todas as placas a 20 °C. Registre diariamente o número de vermes mortos. A sobrevivência média de vermes selvagens sob 2,5, 5, 10 ou 20 mM de paraquat varia de aproximadamente 2,5 a 5 dias (Figura 2I,J), em comparação com uma sobrevivência média fisiologicamente não estressada de cerca de 20 dias (Figura 2A).
NOTA: No ensaio de estresse oxidativo induzido por paraquat, não é necessário transferir os vermes para placas novas. Um número limitado de larvas está presente nas placas com paraquat e permanece estagnado no estágio de desenvolvimento no ou antes do estágio L2 durante todo o ensaio. Elas não interferem na identificação dos grupos sincronizados nem causam inanição. Considerando o estresse físico que pode ser introduzido pela transferência dos vermes, não é recomendado transferi-los durante o ensaio. - Conte diariamente o número de vermes mortos em cada placa de réplica técnica e registre o número em uma planilha de pontuação. A avaliação é realizada manualmente sob microscópio estereoscópico na bancada à temperatura ambiente. Verme que se movimenta ativamente é considerado vivo e nenhuma estimulação física é necessária. Para vermes que não exibem movimento espontâneo, estimule suavemente tocando duas vezes a região posterior do corpo com uma alça de fio de platina. A ausência de resposta é registrada como morte e o verme morto é removido da placa após o registro. Recomenda-se o uso de um contador manual para garantir contagem precisa. Para assegurar que todos os vermes sejam contados uma vez e não repetidamente, coloque uma folha plástica transparente com grade sob a placa ou desenhe uma grade na parte inferior da placa para dividir a placa em seções para contagem.
NOTA: Retorne os vermes imediatamente ao incubador após a avaliação. Mantenha os vermes no incubador por aproximadamente 24 h antes da próxima avaliação. - Monitore diariamente a sobrevivência dos vermes até que todos os animais estejam mortos ou censurados de acordo com os critérios pré-definidos. Compile os dados de sobrevivência registrados e utilize-os para gerar curvas de sobrevivência para análise subsequente.
- Prepare placas de meio para o ensaio de estresse oxidativo. Adicione solução estoque de paraquat (0,5 M em ddH2O, armazenada a –20 °C) ao meio NGM líquido (da seção 1.1.2) para obter uma concentração final de 2,5, 5, 10 ou 20 mM.
4. Análise de dados
- Registre o número de vermes mortos em cada placa de replicata técnica em cada ponto temporal. Os dados de mortalidade são registrados em uma planilha de pontuação organizada por ponto temporal (horas ou dias após a indução da condição de estresse), grupo experimental (diferentes linhagens ou diferentes condições de tratamento) e replicata técnica (placa 1, 2, 3 ou 4). Em cada intervalo de avaliação (horário ou diário, conforme o ensaio), o número de vermes mortos é registrado separadamente para cada placa, e a mortalidade cumulativa é acompanhada até a conclusão do ensaio.
- Insira os dados de mortalidade de cada ponto temporal de pontuação no OASIS 2 (aplicativo online para análise de sobrevida 2)44 para a geração da curva de sobrevida de Kaplan-Meier e análise estatística de log-rank. Alternativamente, a mortalidade pode ser calculada como a porcentagem de vermes mortos em pontos de tempo individuais e comparada entre grupos utilizando o teste t de Student não pareado bicaudal teste t (para dois grupos) ou ANOVA de um fator seguida pelo teste de comparações múltiplas de Tukey (para três ou mais grupos).
OBSERVAÇÃO: Vermes que apresentam ruptura ou eclosão matricida (formação de bolsa) são contabilizados como mortos no momento em que são observados, a fim de refletir a sobrevivência geral. Vermes rompidos e vermes com formação de bolsa foram incluídos nas curvas de sobrevivência apresentadas nos resultados representativos abaixo. Os números de vermes censurados provenientes de diferentes condições foram registrados em Tabela Suplementar 1. Vermes que escapam da placa de ensaio, desidratam na parede da placa ou estão ausentes durante a pontuação são tratados como observações censuradas e excluídos da análise subsequente de sobrevida. Animais que exibem movimento prejudicado, mas apresentam resposta a um toque suave, são classificados como vivos. Vermes que exibem defeitos na postura de ovos antes do início do ensaio são excluídos da análise de sobrevida. - Realize todos os ensaios de estresse em pelo menos três réplicas biológicas independentes realizadas em dias diferentes. Cada réplica biológica consiste em quatro placas com réplicas técnicas contendo vermes. Os dados das réplicas técnicas dentro de uma réplica biológica são agrupados para gerar uma única curva de sobrevivência. Réplicas biológicas independentes são analisadas separadamente e apresentadas como conjuntos de dados individuais, e não agrupados. Cada réplica biológica é realizada utilizando meios preparados independentemente e novos lotes de compostos indutores de estresse. Os protocolos descritos acima são etapas para gerar uma réplica biológica para cada ensaio de estresse. Machos são excluídos, e apenas hermafroditas são incluídos e analisados neste protocolo.
OBSERVAÇÃO: A umidade dos incubadores neste protocolo não é controlada, enquanto a temperatura do incubador é rigorosamente mantida na temperatura experimental. Os experimentos relatados aqui não foram realizados sob condições cegas, e o pesquisador estava ciente do genótipo e das condições de tratamento durante a análise. Recomenda-se o mascaramento (cegamento) do genótipo e das condições de tratamento sempre que viável, a fim de minimizar possíveis vieses na análise.
Resultados
Utilizando os protocolos descritos acima, utilizamos primeiramente vermes selvagens (WT) N2 para examinar a sobrevivência dos vermes sob uma faixa crescente de doses dos quatro estressores: calor, estresse do retículo endoplasmatico, mitocondrial e oxidativo. Em seguida, utilizamos uma linhagem com ablação de neurônios para testar o papel do interneurônio RIC na resistência ao estresse em comparação com vermes WT.
Titulação da dose de estresse térmico e comparação da resistência ao estresse térmico na linhagem com ablação de RIC
Na temperatura fisiológica de 20 °C, vermes selvagens (WT) apresentam uma longevidade média de 20,67 dias (Figura 2A). Seguindo os passos do ensaio de estresse térmico apresentados na seção 3.1, medimos a sobrevivência de vermes WT sob temperaturas elevadas de 30, 35 e 37 °C como doses crescentes de estresse térmico. Os dados mostraram que vermes WT apresentam uma longevidade média de 3,11 dias a 30 °C (Figura 2B); e vermes WT sobrevivem em média 5,36 h a 35 °C e 4,89 h a 37 °C (Figura 2C). Esses resultados indicaram uma diminuição significativa na sobrevivência sob temperaturas mais altas. As análises estatísticas e os valores de P são apresentados em detalhes na Tabela Suplementar 2 e nas legendas das figuras. Esses dados fornecem informações confiáveis para que pesquisadores escolham uma temperatura de estresse e escala de tempo ideais ao planejar um ensaio de estresse térmico. Os pesquisadores podem usar 30 °C para examinar a sobrevivência dos vermes ao longo de vários dias, enquanto utilizam 35 °C ou 37 °C para obter uma avaliação mais rápida da sobrevivência dos vermes em algumas horas.
Em seguida, utilizamos 35 °C como condição de estresse térmico para avaliar o efeito da ablação dos neurônios RIC na sobrevivência em comparação com animais WT. Essa temperatura proporciona um nível intermediário de estresse térmico, evitando a severidade extrema de 37 °C enquanto produz uma resposta mais acentuada do que 30 °C, resultando em um ensaio completo de sobrevivência em aproximadamente 12 h.
Os neurônios RIC são um par de interneurônios octopaminérgicos localizados na região da cabeça de C. elegans9,10. A linhagem com ablação dos neurônios RIC foi gerada pela expressão do gene caspase-3 sob controle do promotor do gene tbh-1 e já foi utilizada anteriormente45. Resumidamente, o promotor tbh-1 foi inserido nos plasmídeos doadores mec-18p::caspase-3 (p12)::nz e mec-18p cz::caspase-3 (p17) para substituir o promotor mec-18. Três construtos, tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) e tbh-1p::GFP (20 ng/µL, como marcador dos neurônios RIC para indicar se esses neurônios foram ablatados), foram coinjetados juntamente com o marcador fluorescente de coinjeção myo-3p::GFP (5 ng/µL) na linhagem selvagem N2 para gerar linhagens com ablação genética dos neurônios RIC. Três linhagens injetadas independentemente foram mantidas como linhagem com ablação dos neurônios RIC. As linhagens transgênicas foram mantidas selecionando-se os vermes que apresentavam o marcador fluorescente myo-3p::GFP. Os resultados de cada ensaio de estresse foram validados por duas ou três linhagens independentes. A ablação bem-sucedida dos neurônios RIC foi verificada pela ausência de fluorescência de tbh-1p::GFP na linhagem com ablação dos neurônios RIC, enquanto a expressão de GFP foi observada nos neurônios RIC da linhagem controle com o repórter tbh-1p::GFP (Figura Suplementar 1).
Utilizando as etapas do ensaio de estresse térmico apresentadas na seção 3.1, examinamos a sobrevivência das cepas selvagem e com ablação de neurônios RIC sob estresse térmico de 35 °C (Figura 2D). Utilizando as etapas de análise de dados apresentadas nas seções 4.1–4.3, os resultados mostraram que nenhuma diferença significativa foi encontrada entre a cepa com ablação de neurônios RIC e o grupo controle selvagem N2 sob estresse térmico de 35 °C (Figura 2D).
Todos os resultados representativos dos ensaios de estresse térmico foram realizados com três réplicas biológicas independentes conduzidas em dias diferentes (Figura Suplementar 2). O número de animais (valor de n indicado nas legendas das figuras) que contribuiu para a curva de sobrevivência mostrada nos resultados representativos e nas figuras suplementares corresponde ao número totalizado a partir das quatro réplicas técnicas em uma única réplica biológica.
Titulação da dose de estresse do retículo endoplasmático e comparação da resistência ao estresse do retículo endoplasmático na linhagem com ablação de RIC
Utilizando os passos do ensaio de estresse do retículo endoplasmático apresentados na seção 3.2, medimos a sobrevivência do tipo selvagem sob 25, 50, 100 ou 200 µg/mL de tunicamicina como doses crescentes de estresse do retículo endoplasmático (Figura 2E). Em comparação com uma sobrevivência média fisiologicamente não estressada de cerca de 20 dias (Figura 2A), a sobrevivência média de vermes do tipo selvagem é de 10,74 dias a 25 µg/mL, 9,13 dias a 50 µg/mL, 9,3 dias a 100 µg/mL e 8,93 dias a 200 µg/mL de tunicamicina (Figura 2E). O aumento da dose de tunicamicina não alterou significativamente a sobrevivência nessas doses. As análises estatísticas e os valores de P são apresentados em detalhes na Tabela Suplementar 2 e nas legendas das figuras. Esses dados fornecem informações confiáveis para que pesquisadores escolham uma dose ótima de tunicamicina em um ensaio de estresse do retículo endoplasmático.
Em seguida, utilizamos 50 µg/mL de tunicamicina, uma dose intermediária entre as doses testadas, como condição de estresse do retículo endoplasmático para avaliar o efeito da ablacão de neurônios RIC na sobrevivência em comparação com animais WT. Utilizando os passos do ensaio de estresse do retículo endoplasmático apresentados na seção 3.2, examinamos a sobrevivência de ambas as linhagens, WT e com neurônios RIC ablatados, sob estresse do retículo endoplasmático induzido por 50 µg/mL de tunicamicina (Figura 2F). Utilizando os passos de análise de dados apresentados nas seções 4.1–4.3, a curva de sobrevivência da linhagem com neurônios RIC ablatados exibiu um deslocamento significativo para a direita em relação ao controle WT N2, indicando uma sobrevivência prolongada sob estresse do retículo endoplasmático. Esse resultado sugere que a ablacão dos neurônios RIC aumenta a resistência ao estresse do retículo endoplasmático (Figura 2F).
Todos os resultados representativos dos ensaios de estresse do retículo endoplasmático foram realizados com três réplicas biológicas independentes conduzidas em dias diferentes (Figura Suplementar 3). O número de animais (valor de n indicado nas legendas das figuras) que contribuiu para a curva de sobrevida mostrada nos resultados representativos e nas figuras suplementares corresponde ao número agrupado das quatro réplicas técnicas em uma única réplica biológica.
Titulação da dose de estresse mitocondrial e comparação da resistência ao estresse mitocondrial na linhagem com ablação de RIC
Utilizando os passos do ensaio de estresse mitocondrial apresentados na seção 3.3, medimos a sobrevivência de organismos selvagens (WT) sob 5, 10, 20, 40 ou 80 µg/mL de antimicina A como doses crescentes de estresse mitocondrial (Figura 2G). As curvas de sobrevivência de vermes WT mostraram alterações significativas de maneira dependente da dose. Em comparação com uma sobrevivência média fisiologicamente não estressada de cerca de 20 dias (Figura 2A), a sobrevivência média de vermes selvagens é de 4,96 dias a 5 µg/mL, 3,77 dias a 10 µg/mL, 2,68 dias a 20 µg/mL, 1,65 dias a 40 µg/mL e 1,4 dias a 80 µg/mL de antimicina A (Figura 2G). As análises estatísticas e os valores de P são apresentados em detalhes na Tabela Suplementar 2 e nas legendas das figuras. Esses dados fornecem informações confiáveis para que pesquisadores escolham uma dose ideal de antimicina A e uma escala de tempo ao planejar um ensaio de estresse mitocondrial. Os pesquisadores podem optar por 5 µg/mL para avaliar a sobrevivência dos vermes ao longo de aproximadamente 10 dias, ou usar concentrações mais altas de antimicina A para obter resultados de sobrevivência em alguns dias. Observe que concentrações mais elevadas aceleram a mortalidade, enquanto concentrações mais baixas produzem uma diminuição mais gradual da sobrevivência, permitindo que diferenças sutis entre linhagens sejam mais facilmente identificadas.
Em seguida, utilizamos 5 µg/mL de antimicina A, que provocou uma diminuição mais gradual na sobrevivência entre as doses testadas, como condição de estresse mitocondrial para avaliar o efeito da ablação dos neurônios RIC na sobrevivência em comparação com animais WT. Utilizando os passos do ensaio de estresse mitocondrial apresentados na seção 3.3, examinamos a sobrevivência tanto de linhagens WT quanto com ablação de RIC sob estresse mitocondrial induzido por 5 µg/mL de antimicina A (Figura 2H). Utilizando os passos de análise de dados apresentados nas seções 4.1–4.3, a curva de sobrevivência da linhagem com ablação dos neurônios RIC exibiu um deslocamento significativo para a direita em relação ao controle WT N2, indicando uma sobrevivência prolongada sob estresse mitocondrial. Esse resultado sugere que a ablação dos neurônios RIC aumenta a resistência ao estresse mitocondrial (Figura 2H).
Todos os resultados representativos dos ensaios de estresse mitocondrial foram realizados com três réplicas biológicas independentes conduzidas em dias diferentes (Figura Suplementar 4). O número de animais (valor de n indicado nas legendas das figuras) que contribuiu para a curva de sobrevida mostrada nos resultados representativos e nas figuras suplementares corresponde ao número agrupado das quatro réplicas técnicas em uma única réplica biológica.
Titulação da dose de estresse oxidativo e comparação da resistência ao estresse oxidativo na linhagem com ablação de RIC
Utilizando os passos do ensaio de estresse oxidativo apresentados na seção 3.4, medimos a sobrevivência do tipo selvagem sob 2,5, 5, 10 ou 20 mM de paraquat como doses crescentes de estresse oxidativo (Figura 2I). As curvas de sobrevivência de vermes do tipo selvagem mostraram alterações significativas de maneira dependente da dose. Em comparação com uma sobrevivência média fisiologicamente não estressada de cerca de 20 dias (Figura 2A), a sobrevivência média de vermes selvagens é de 4,92 dias a 2,5 mM, 3,81 dias a 5 mM, 2,93 dias a 10 mM e 2,81 dias a 20 mM de paraquat (Figura 2I). As análises estatísticas e os valores de P são apresentados em detalhes na Tabela Suplementar 2 e nas legendas das figuras. Esses dados fornecem informações confiáveis para que pesquisadores escolham uma dose ótima de paraquat e uma escala de tempo adequada ao planejar um ensaio de estresse oxidativo. Os pesquisadores podem optar por 2,5 mM para avaliar a sobrevivência dos vermes ao longo de aproximadamente 10 dias, ou usar concentrações mais altas de paraquat para obter resultados de sobrevivência em alguns dias. Observe que concentrações mais altas (10 mM e 20 mM) aceleram a mortalidade, enquanto concentrações intermediárias e mais baixas (2,5 mM e 5 mM) produzem uma diminuição mais gradual na sobrevivência, permitindo que diferenças sutis entre linhagens sejam mais facilmente identificadas.
Em seguida, utilizamos 5 mM de paraquat, uma dose intermediária entre as doses testadas, como condição de estresse oxidativo para avaliar o efeito da ablação dos neurônios RIC na sobrevivência em comparação com animais WT. Utilizando os passos do ensaio de estresse oxidativo apresentados na seção 3.4, examinamos a sobrevivência das linhagens WT e com ablação dos neurônios RIC sob estresse oxidativo induzido por 5 mM de paraquat (Figura 2J). Utilizando os passos de análise de dados apresentados nas seções 4.1–4.3, os resultados mostraram que nenhuma diferença significativa foi encontrada entre a linhagem com ablação dos neurônios RIC e o grupo controle selvagem N2 sob estresse oxidativo induzido por 5 mM de paraquat (Figura 2J).
Todos os resultados representativos dos ensaios de estresse oxidativo foram realizados com três réplicas biológicas independentes conduzidas em dias diferentes (Figura Suplementar 5). O número de animais (valor de n indicado nas legendas das figuras) que contribuiu para a curva de sobrevida mostrada nos resultados representativos e nas figuras suplementares corresponde ao número agrupado proveniente das quatro réplicas técnicas em uma única réplica biológica.
Solução de problemas
Um problema recorrente em ensaios de estresse oxidativo induzido por paraquat é que os vermes escapam das placas de ágar, levando à perda de animais e à redução do número de vermes disponíveis para análise. Um ácido palmítico uma barreira ou outra "cerca" pode ser adicionada às placas do ensaio para suprimir parcialmente esse comportamento de fuga46,47, embora a melhoria seja modesta e não elimine completamente o problema. Nenhuma diferença significativa foi observada na saúde e no tempo de vida útil de C. elegans após o tratamento com ácido palmítico48. A barreira de ácido palmítico atua como um agente aversivo "cerca" em placas NGM para prevenir C. elegans de escapar devido ao estresse, inanição ou patógenos. Para minimizar a fuga dos vermes, aplique 30 µL de 10 mg/mL de ácido palmítico em etanol (adicione 0,5 g de ácido palmítico a 50 mL de EtOH 100%) à borda da placa de ensaio de 35 mm e gire suavemente a placa para formar um anel contínuo. Após a evaporação do etanol, o ácido palmítico o anel atua como uma barreira física e química para reduzir a fuga dos vermes. Vermes que morrem em contato com o anel de ácido palmítico são censurados e excluídos da análise de sobrevivência.
ATENÇÃO: O ácido palmítico e suas soluções devem ser manipulados com EPIs laboratoriais apropriados, incluindo luvas, jaleco laboratorial e proteção ocular, e deve-se ter cuidado para evitar contato com a pele e os olhos.
DISPONIBILIDADE DE DADOS
Os dados de sobrevivência que fundamentam a Figura 2 e as figuras suplementares, incluindo dados de todas as réplicas biológicas e resultados estatísticos, estão nas Figuras Suplementares 1–5, Tabelas Suplementares 1–2 e Arquivo Suplementar 1.
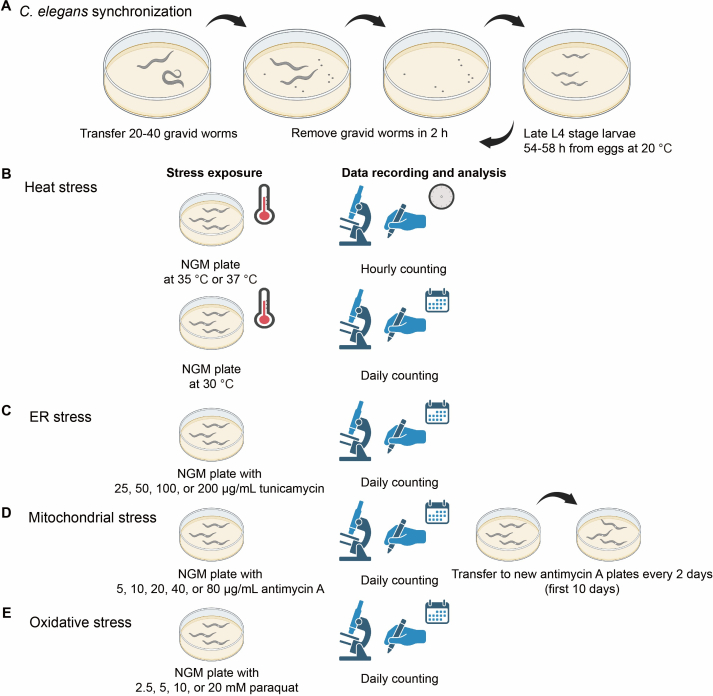
Figura 1: Fluxo de trabalho dos ensaios de estresse. (A) Vermes sincronizados são obtidos coletando ovos postos em um período de 2 h por vermes grávidos. Os vermes sincronizados são utilizados em todos os ensaios de estresse e são transferidos para placas ou condições de estresse no estágio L4 tardio, após 54–58 h de desenvolvimento a partir dos ovos a 20 °C. (B) No ensaio de estresse térmico, vermes sincronizados são transferidos para placas de NGM em um incubador a 35 °C ou 37 °C, e os vermes mortos são contabilizados a cada hora. Para o ensaio de estresse térmico em um incubador a 30 °C, os vermes mortos são contabilizados diariamente. (C) No ensaio de estresse do retículo endoplasmático, vermes sincronizados são transferidos para placas de NGM contendo 25, 50, 100 ou 200 µg/mL de tunicamicina. Os vermes mortos são contabilizados diariamente. (D) No ensaio de estresse mitocondrial, vermes sincronizados são transferidos para placas de NGM contendo 5, 10, 20, 40 ou 80 µg/mL de antimicina A, e a sobrevivência é avaliada por contagem diária. Para evitar interferência da prole, os vermes são transferidos para placas frescas contendo antimicina A a cada dois dias durante os primeiros 10 dias do ensaio. (E) No ensaio de estresse oxidativo, vermes sincronizados são transferidos para placas de NGM contendo 2,5, 5, 10 ou 20 mM de paraquat, e a sobrevivência é avaliada por contagem diária. A resistência ao estresse é avaliada comparando as curvas de sobrevivência de Kaplan–Meier geradas a partir de cada ensaio. Clique aqui para visualizar uma versão maior desta figura.
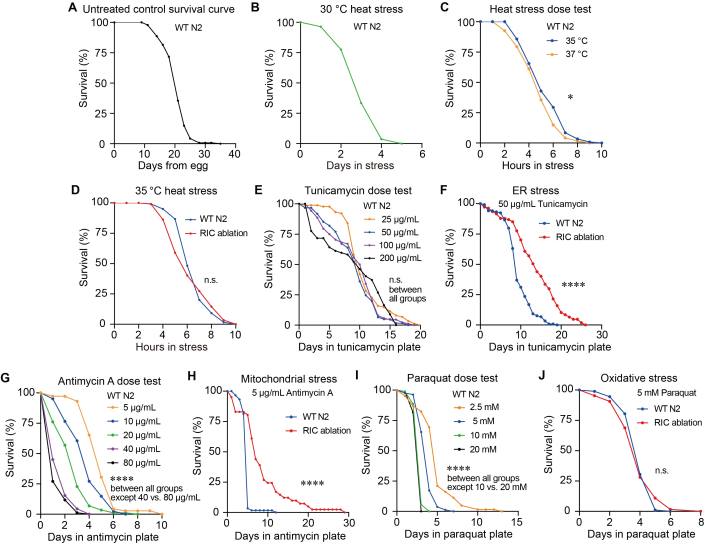
Figura 2: Titulação da dosagem de calor, estresse do retículo endoplasmático, mitocondrial e oxidativo e comparação da resistência ao estresse em neurônios RIC ablados estirpe (A) Curva representativa de sobrevida de Kaplan-Meier da linhagem WT N2 em condições não estressantes (n = 141, sobrevida média = 20,67 dias). (B) Representativo Curva de sobrevida de Kaplan-Meier da linhagem WT N2 sob 30 °C estresse térmico (n = 111, sobrevida média = 3,11 dias). (CCurva representativa de sobrevida de Kaplan-Meier da linhagem WT N2 sob 35 °C e 37 °C estresse térmico (n = 119, 121); teste log-rank, P = 0,0244, * indica P < 0.05. (DCurva representativa de sobrevida de Kaplan–Meier de linhagens WT N2 e com ablação de neurônios RIC 35 °C estresse térmico (n = 117, 120); teste log-rank, P = 0,4972, n.s. indica ausência de diferença significativa. WT N2 foi utilizado como controle. (ECurvas de sobrevivência dose-resposta da linhagem selvagem N2 sob concentrações crescentes de tratamento com tunicamicina (n = 88, 61, 88, 67); teste log-rank, P = 0.6472 (25 µg/mL v.s. 100 µg/mL), P = 0.1473 (25 µg/mL versus 50 µg/mL), P = 0.6581 (50 µg/mL c.s. 200 µg/mL), P = 1 (25 µg/mL c.s. 200 µg/mL; 50 µg/mL versus 100 µg/mL; 100 µg/mL v.s. 200 µg/mL), n.s. indica ausência de diferença significativa. (FCurva representativa de sobrevida de Kaplan-Meier de WT N2 e RIC linhagem com neurônios ablatados sob 50 µg/mL estresse do retículo endoplasmático induzido por tunicamicina (n = 119, 107); teste log-rank, **** indica P < 0.0001. (GCurvas representativas de sobrevida de Kaplan-Meier da linhagem WT N2 tratada com concentrações crescentes de antimicina A (n = 72, 81, 88, 91, 85); teste log-rank, P = 0.000038 (5 µg/mL versus 10 µg/mL), P = 0.00002 (10 µg/mL c.s. 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL c.s. 40 µg/mL), P < 0.0001 (5 µg/mL versus 20 µg/mL; 5 µg/mL versus 40 µg/mL; 5 µg/mL c.s. 80 µg/mL; 10 µg/mL c.s. 40 µg/mL; 10 µg/mL versus 80 µg/mL; ou 20 µg/mL versus 80 µg/mL), P = 0.189 (40 µg/mL versus 80 µg/mL), **** indica P < 0.0001. (HCurva representativa de sobrevida de Kaplan–Meier de linhagens WT N2 e com ablação de neurônios RIC 5 µg/mL estresse mitocondrial induzido por antimicina A (n = 59, 41); teste log-rank, P = 3,2 × 10⁻9, **** indica P < 0.0001. (ICurvas representativas de sobrevida de Kaplan-Meier da linhagem WT N2 sob diferentes doses de paraquat (n = 62, 81, 88, 93); teste log-rank, P = 1.80 × 10⁻7 (2,5 mM versus 5 mM), P < 0,0001 (2,5 mM vs. 10 mM; 2,5 mM vs. 20 mM; 5 mM vs. 10 mM; 5 mM vs. 20 mM) P = 0,1445 (10 mM versus 20 mM), **** indica P < 0.0001. (JCurvas representativas de sobrevida de Kaplan-Meier de linhagens WT N2 e com ablação de neurônios RIC sob estresse oxidativo induzido por paraquat 5 mM (n = 92, 64); teste log-rank, P = 0,9817, n.s. indica ausência de diferença significativa. Todos os experimentos foram realizados com três réplicas biológicas independentes. Resultados representativos de uma réplica biológica são apresentados nesta figura. Cada replicata biológica consiste em quatro placas com réplicas técnicas contendo vermes. Número de animais (n) contribuinte ao gráfico de sobrevida nesta figura corresponde ao número agrupado das quatro réplicas técnicas em uma única réplica biológica. Réplicas biológicas independentes foram analisadas separadamente, em vez de agrupadas, e apresentadas como conjuntos de dados individuais nas Figuras Suplementares 2–5. A significância foi avaliada utilizando um teste log-rank para comparar as distribuições de sobrevida. Estatísticas detalhadas P valores, sobrevida média e erro padrão entre réplicas técnicas estão incluídos na Tabela Suplementar 2. Clique aqui para visualizar uma versão maior desta figura.
Figura Suplementar 1: Ausência de fluorescência de tbh-1p::GFP na linhagem com ablação dos neurônios RIC, enquanto a expressão de GFP foi observada nos neurônios RIC da linhagem controle com o repórter tbh-1p::GFP. (A) Imagens de fluorescência da linhagem com ablação dos neurônios RIC tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP e de uma linhagem controle com repórter tbh-1p::GFP, OH16150 tbh-1p::GFP; tdc-1p::mCherry. Vermes em estágio L4 tardio foram analisados usando excitação em 488 nm com tempo de exposição de 800 ms para o canal GFP e tempo de exposição de 176 ms para o canal de campo claro. As setas amarelas indicam a localização dos neurônios RIC na linhagem controle com repórter tbh-1p::GFP ou a localização esperada dos neurônios RIC, ausente na linhagem com ablação dos neurônios RIC. O sinal de tbh-1p::GFP não foi detectado na posição dos neurônios RIC na linhagem com ablação dos neurônios RIC, enquanto o sinal de tbh-1p::GFP foi observado nos neurônios RIC da linhagem controle com repórter tbh-1p::GFP OH16150. A fluorescência dos músculos da parede corporal na linhagem com ablação dos neurônios RIC é proveniente de myo-3p::GFP, um marcador de co-injeção. (A) n = 14 para OH16150; n = 20 para a linhagem com ablação dos neurônios RIC. (B, C) Resultados representativos de outros dois replicados biológicos. Vermes em estágio L4 tardio foram analisados usando excitação em 488 nm com tempo de exposição de 1007 ms (B) ou 1998 ms (C) para o canal GFP e tempo de exposição de 176 ms (B e C) para o canal de campo claro. (B) n = 8 para OH16150; n = 17 para a linhagem com ablação dos neurônios RIC. (C) n = 14 para OH16150; n = 13 para a linhagem com ablação dos neurônios RIC. Clique aqui para baixar este arquivo.
Figura Suplementar 2: Réplicas biológicas das curvas de sobrevivência em condições sem estresse ou sob estresse térmico. (A, B) Curvas de sobrevivência de Kaplan-Meier de duas réplicas biológicas independentes em condições sem estresse. (A) n = 123, sobrevivência média = 20,52 dias; (B) n = 130, sobrevivência média = 22,74 dias. (C, D) Curvas de sobrevivência de Kaplan-Meier da linhagem WT N2 sob estresse térmico de 30 °C. Os dados são de duas réplicas biológicas independentes. (C) n = 130, sobrevivência média = 3,72 dias. (D) n = 98, sobrevivência média = 3,77 dias. (E, F) Curvas de sobrevivência de Kaplan-Meier sob condições de estresse térmico de 35 °C ou 37 °C. Os dados são de duas réplicas biológicas independentes. (E) n = 118, 121; teste log-rank, P = 0,0409, * indica P < 0,05; (F) n = 122, 120; teste log-rank, P = 0,0251, * indica P < 0,05. (G, H) Curvas de sobrevivência de Kaplan-Meier das linhagens WT N2 e com ablação dos neurônios RIC sob condições de estresse térmico de 35 °C. Os dados são de duas réplicas biológicas independentes. (G) n = 79, 76; teste log-rank, P = 0,2217, n.s. indica ausência de diferença significativa. (H) n = 77, 81; teste log-rank, P = 0,1881, n.s. indica ausência de diferença significativa. A significância foi avaliada utilizando o teste log-rank para comparar as distribuições de sobrevivência. Valores detalhados de P estatísticos, sobrevivência média e erro padrão (S.E.) entre réplicas técnicas estão incluídos na Tabela Suplementar 2. Clique aqui para baixar este arquivo.
Figura Suplementar 3: Réplicas biológicas das curvas de sobrevivência sob condições de estresse do retículo endoplasmático. (A, B) Curvas de sobrevivência de Kaplan-Meier da linhagem WT N2 sob diferentes concentrações de tratamento com tunicamicina. Os dados são provenientes de duas réplicas biológicas independentes. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. Os valores de P estatísticos entre os diferentes grupos (A e B) estão indicados na Tabela Suplementar 2. (C, D) Curvas de sobrevivência de Kaplan-Meier da linhagem WT N2 e da linhagem com ablação dos neurônios RIC sob condições de estresse do retículo endoplasmático induzido por tunicamicina a 50 µg/mL. Os dados são provenientes de duas réplicas biológicas independentes. (C) n = 104, 55; teste log-rank, P = 0,012, * indica P < 0,05; (D) n = 85, 109; teste log-rank, P = 0,0001, *** indica P < 0,001. A significância foi avaliada utilizando o teste log-rank para comparar as distribuições de sobrevivência. Valores detalhados de P estatísticos, sobrevivência média e erro padrão (S.E.) entre réplicas técnicas estão incluídos na Tabela Suplementar 2. Clique aqui para baixar este arquivo.
Figura Suplementar 4: Réplicas biológicas das curvas de sobrevivência sob condições de estresse mitocondrial. (A, B) Curvas de sobrevivência de Kaplan-Meier da linhagem WT N2 sob diferentes concentrações de tratamento com antimicina A. Os dados são provenientes de duas réplicas biológicas independentes. (A) n = 71, 80, 81, 88, 90. (B) n = 71, 85, 83, 88, 87. Os valores de P estatísticos entre os diferentes grupos (A e B) estão indicados na Tabela Suplementar 2. (C, D) Curvas de sobrevivência de Kaplan-Meier da linhagem WT N2 e da linhagem com ablação dos neurônios RIC sob estresse mitocondrial induzido por antimicina A. Os dados são provenientes de duas réplicas biológicas independentes. (C) n = 105, 78; teste log-rank, P = 0,000004, **** indica P < 0,0001. (D) n = 89, 73; teste log-rank, **** indica P < 0,0001. A significância foi avaliada utilizando o teste log-rank para comparar as distribuições de sobrevivência. Valores detalhados de P estatístico , sobrevivência média e erro padrão (S.E.) entre réplicas técnicas estão incluídos na Tabela Suplementar 2. Clique aqui para baixar este arquivo.
Figura Suplementar 5: Réplicas biológicas das curvas de sobrevivência sob condições de estresse oxidativo. (A, B) Curvas de sobrevivência de Kaplan-Meier da linhagem WT N2 sob diferentes concentrações de tratamento com paraquat. Os dados são de duas réplicas biológicas independentes. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Os valores de P estatísticos entre os diferentes grupos (A e B) estão indicados na Tabela Suplementar 2. (C, D) Curvas de sobrevivência de Kaplan-Meier da linhagem WT N2 e da linhagem com ablação de neurônios RIC sob condições de estresse oxidativo induzido por paraquat 5 mM. Os dados são de duas réplicas biológicas independentes. (C) n = 87, 82; teste log-rank, P = 0,2629, n.s. indica diferença não significativa. (D) n = 116, 118; teste log-rank, P = 0,1184, n.s. indica diferença não significativa. A significância foi avaliada utilizando o teste log-rank para comparar as distribuições de sobrevivência. Valores detalhados de P estatístico , sobrevivência média e E.P. entre réplicas técnicas estão incluídos na Tabela Suplementar 2. Clique aqui para baixar este arquivo.
Tabela Suplementar 1: Resumo do número de vermes incluídos em todas as curvas de sobrevida. A tabela resume o número inicial de vermes e os números de vermes rompidos, encapsulados e censurados. Clique aqui para baixar este arquivo.
Tabela Suplementar 2: Análises estatísticas detalhadas de todas as curvas de sobrevida, incluindo valores de P, sobrevida média e erro padrão. Clique aqui para baixar este arquivo.
Arquivo Suplementar 1: Dados que apoiam os achados deste estudo.
Inclui a verificação da ablação bem-sucedida dos neurônios RIC e os resultados de todas as réplicas biológicas que fundamentam os dados apresentados nas figuras principais. Clique aqui para baixar este arquivo.
Discussão
Aqui descrevemos etapas padronizadas para ensaios de estresse reprodutíveis sob estresse térmico, do retículo endoplasmático, mitocondrial e oxidativo em C. elegans (Figura 1). Analisamos uma faixa de doses crescentes dos quatro estressores sobre a sobrevivência de vermes selvagens (Figura 2). Também apresentamos um exemplo de investigação do papel de um interneurônio na resistência ao estresse frente aos quatro estressores, utilizando uma linhagem com ablação de neurônios (Figura 2).
Para empregar com sucesso o protocolo de ensaio de estresse apresentado aqui, várias considerações importantes precisam ser observadas no processo. Devido à variabilidade entre laboratórios decorrente de diferenças como o tipo de pó de ágar, meio de cultura, temperatura ambiente e umidade, recomenda-se titular cada concentração de agente estressante ou composto indutor de estresse seguindo a titulação e os passos descritos nas seções Protocolo e Resultados. Uma condição de estresse adequada deve produzir uma resposta de sobrevivência reprodutível e intermediária em vermes selvagens controle, permitindo uma faixa dinâmica suficiente para detectar tanto aumento quanto diminuição na resistência ao estresse. Devem-se evitar condições que resultem em sobrevivência quase completa ou letalidade quase total. Em seguida, é essencial garantir que os vermes estejam sincronizados no mesmo estágio de desenvolvimento para todas as réplicas biológicas e técnicas. A sincronização dos vermes pode ser alcançada utilizando o procedimento descrito nas seções 2.1–2.3. Recomenda-se a sincronização no estágio L4 tardio. Iniciar os ensaios de estresse no estágio L4 é uma prática bem estabelecida na área de pesquisa da resposta ao estresse em C. elegans, e inúmeros estudos utilizaram animais sincronizados no estágio L4 para ensaios de resistência ao estresse oxidativo42, térmico40,43 e outros tipos de estresse35. Começar no estágio L4 assegura sincronização do desenvolvimento, ao mesmo tempo que minimiza a variabilidade introduzida por diferenças na idade adulta e no estado reprodutivo, incluindo o início da produção de ovos e a retenção de embriões, fatores que podem influenciar as medidas de resistência ao estresse12,37,38,40. Como todos os grupos experimentais em nosso estudo foram sincronizados e tratados de maneira idêntica, essa abordagem fornece uma base consistente e apropriada para comparar a resistência ao estresse. Por fim, se os vermes forem submetidos à inanição ou estresse antes do início do ensaio, sua prole deve ser recuperada por várias gerações em condições alimentadas e sem estresse antes de ser utilizada como vermes grávidos para gerar prole sincronizada para os ensaios de estresse.
A variabilidade entre experimentos independentes utilizando réplicas biológicas pode surgir de diferenças no preparo e armazenamento das placas, incluindo a duração do armazenamento das placas contendo compostos indutores de estresse a 4 °C e o momento do plantio bacteriano com OP50. Para melhorar a reprodutibilidade entre experimentos realizados em dias diferentes, os passos críticos de preparo das placas devem ser padronizados seguindo o protocolo descrito para a confecção de placas NGM na seção 1.1, placas de estresse do retículo endoplasmático induzido por tunicamicina na seção 3.2.1, placas de estresse mitocondrial induzido por antimicina A na seção 3.3.1 e placas de estresse oxidativo induzido por paraquat na seção 3.4.1. Especificamente, as placas de ágar devem ser secas em temperatura ambiente por aproximadamente 24 h após o preparo e, em seguida, semeadas com OP50 assim que o ágar tiver solidificado completamente. As placas NGM semeadas com OP50 devem ser deixadas secar por mais 24 h em temperatura ambiente antes de serem armazenadas a 4 °C. O tempo ideal de secagem pode variar dependendo do uso de placas com ou sem ventilação e das condições ambientais locais, como temperatura e umidade. Portanto, cada laboratório deve otimizar este passo de acordo com suas condições específicas e manter um tempo de secagem consistente em todas as réplicas biológicas independentes para garantir reprodutibilidade. As placas para ensaios de estresse devem ser utilizadas dentro de uma semana após o preparo, a fim de minimizar a degradação dos compostos indutores de estresse e o crescimento bacteriano excessivo, ambos os quais podem afetar a consistência do ensaio.
Este protocolo também apresentou um exemplo de investigação do papel de um interneurônio na resposta ao estresse frente aos quatro estressores, utilizando uma linhagem com ablação neuronal (Figura 2). O promotor de um gene expresso especificamente em um neurônio pode ser usado para induzir a expressão da caspase-3 e ablar o neurônio-alvo. Aqui, utilizamos o promotor tbh-1, que direciona a expressão gênica especificamente aos neurônios RIC, para a ablação desses neurônios. O promotor tbh-1 já foi amplamente validado para manipulação genética direcionada aos neurônios RIC e é rotineiramente empregado para expressão celular específica, resgate funcional, imageamento de cálcio e silenciamento neuronal45,49,50. Em consonância com a caracterização previamente descrita para tbh-1, observamos expressão de tbh-1p::GFP restrita aos neurônios RIC, sem detecção de fluorescência em outros tecidos (Figura Suplementar 1). Não examinamos especificamente o tamanho da prole nem a morfologia da linhagem germinativa na linhagem com ablação dos neurônios RIC; contudo, não observamos defeitos fisiológicos evidentes nessa linhagem. Relatos anteriores indicam que o repórter tbh-1 pode apresentar expressão adicional em células somáticas da bainha gonadal, que são células somáticas do sistema reprodutivo51,52. Embora não possamos excluir completamente a possibilidade de expressão em níveis baixos fora dos neurônios RIC, consideramos improvável que a expressão de tbh-1 em células não-RIC explique a resistência aumentada ao estresse observada nos animais com ablação dos neurônios RIC. Embora este método seja bem estabelecido49,50, ele é limitado pela possível expressão em células fora do neurônio-alvo. São necessárias outras metodologias para confirmar o papel de um neurônio, por exemplo, monitorar a atividade neuronal em resposta aos estressores ou avaliar o papel dos neurotransmissores liberados por esse neurônio em ensaios de estresse.
Ensaios de sobrevivência de C. elegans são ferramentas poderosas para medir resistência ao estresse devido à vida relativamente curta dos vermes (aproximadamente 20 a 30 dias, Figura 2) e à mortalidade rápida induzida por múltiplos estressores, que geralmente ocorre em horas a dias (Figura 2). No entanto, uma limitação dos ensaios de sobrevivência é que eles utilizam um ponto final binário vivo/morto e, portanto, não capturam a declínio fisiológico progressivo que ocorre durante a exposição ao estresse. Ensaios complementares, como ensaios de agitação ou medições automatizadas de locomoção (velocidade) realizadas em múltiplos pontos temporais, podem fornecer informações adicionais sobre a perda gradual da função neuromuscular durante o estresse. Outra limitação é que a morte é determinada pela ausência de resposta a uma estimulação física suave, o que pode subestimar a viabilidade em animais com locomoção gravemente comprometida. Além disso, a pontuação manual introduz variabilidade dependente do observador e potencial viés. Para minimizar esses efeitos, toda pontuação dentro de uma réplica biológica independente deve ser realizada pelo mesmo pesquisador, que deve estar cego quanto ao genótipo e às condições experimentais. Condições consistentes de pontuação, incluindo o uso da mesma ampliação do microscópio e configurações de iluminação em cada ponto temporal, também são importantes para reduzir a variabilidade entre placas e entre experimentos. Nos resultados representativos, apresentamos um exemplo em que uma linhagem com ablação dos neurônios RIC mostrou resistência aumentada ao estresse do retículo endoplasmático e mitocondrial, mas não ao estresse térmico e oxidativo, em comparação com vermes selvagens (Figura 2). Uma diferença de sobrevivência sob dois dos quatro estressores não estabelece por si só um papel específico da via para o neurônio; a conclusão biológica neste manuscrito é apresentada como uma demonstração do método e da observação, e não como uma afirmação mecanicista.
Além dos ensaios de sobrevivência sob estresse descritos aqui, várias plataformas automatizadas foram desenvolvidas para medir a sobrevivência de C. elegans. A pontuação automatizada aumenta substancialmente a produtividade, permite o monitoramento contínuo ou de alta frequência e reduz o viés dependente do observador e o trabalho associado à pontuação manual53,54,55. Esses sistemas são particularmente vantajosos para telas genéticas ou químicas em larga escala. No entanto, a maioria dos métodos automatizados infere a morte a partir da cessação do movimento, o que pode resultar na classificação incorreta de vermes que estão quiescentes ou apresentam locomoção gravemente comprometida sob estresse, dependendo do algoritmo de imagem e do limiar de detecção. A detecção automatizada também pode ser afetada por fatores ambientais, incluindo temperatura, condensação, contaminação fúngica ou bacteriana e variações nas condições de cultivo, todos os quais podem interferir na detecção dos vermes e influenciar as medidas de sobrevivência. Em contraste, a pontuação manual permite que o pesquisador identifique fenótipos anormais, como formação de bolsas ("bagging"), eclosão interna ou animais rompidos, que podem exigir critérios específicos de pontuação ou censura. Embora a pontuação manual seja mais trabalhosa e sujeita à variabilidade entre observadores, essas limitações podem ser minimizadas mediante pontuação cega, critérios padronizados de pontuação e pontuação consistente realizada pelo mesmo pesquisador. Consequentemente, os ensaios manuais e automatizados de sobrevivência possuem vantagens e limitações distintas, e a escolha do método deve ser orientada pelos objetivos experimentais, pela produtividade necessária e pela natureza do paradigma de estresse.
Em conjunto, os métodos descritos aqui fornecem um framework padronizado e reprodutível para avaliar as respostas de C. elegans a múltiplos estressores ambientais, incluindo estresse térmico, mitocondrial, do retículo endoplasmático (ER) e estresse oxidativo. Avaliar a resistência a diversos estressores é essencial porque perturbações genéticas ou fisiológicas podem aumentar a resistência a um tipo de estresse enquanto aumentam a suscetibilidade a outro, revelando assim mecanismos tanto específicos ao estressor quanto compartilhados na adaptação ao estresse. Esses ensaios permitem comparações quantitativas da resistência ao estresse entre diferentes genótipos e condições experimentais e podem ser facilmente aplicados para investigar os papéis de genes, neurônios e vias metabólicas na manutenção da resistência ao estresse e da homeostase fisiológica. De forma mais ampla, esses métodos fornecem uma plataforma robusta para identificar mecanismos que promovem a saúde e a sobrevivência do organismo sob condições ambientais adversas.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
A pesquisa relatada nesta publicação foi apoiada pela Rede de Excelência em Pesquisa Biomédica do Kansas (K-INBRE, P20 GM103418), Centro de Excelência em Pesquisa Biomédica (COBRE, P20 GM113109) e Centro de Pesquisa sobre o Câncer Johnson da Universidade Estadual do Kansas (Prêmio de Expansão em Pesquisa sobre o Câncer), com financiamento concedido a S.H.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Tunicamicina | Sigma-Aldrich | T7765 | indutor do estresse do retículo endoplasmático |
| Antimicina A | Sigma-Aldrich | A8674 | Indutor de estresse mitocondrial |
| Cloreto de metilviólogeno diidratado (paraquat) | Sigma-Aldrich | 856177 | Indutor de estresse oxidativo |
| Ácido palmítico | MP Biomedicals, LLC | 100905 | Suprimir C. elegans escapar comportamento |
| Colesterol | MP Biomedicals, LLC | 101382 | Para NGM |
| Cloreto de cálcio | Thermo Fisher Scientific Inc. | C79-500 | Para NGM |
| Sulfato de magnésio anidro | Mallinckrodt Pharmaceuticals plc | 6070 | Para NGM |
| Ágar | Apex Chemicals Co., Ltd | 20-273 | Para NGM |
| Peptona | Apex Chemicals Co., Ltd | 20-260 | Para NGM |
| Fosfato monobásico de potássio | Thermo Fisher Scientific Inc. | P285-3 | Para NGM |
| Cloreto de sódio | Thermo Fisher Scientific Inc. | S640-3 | Para NGM |
| Fosfato de potássio dibásico | Allied Chemical, Divisão Geral de Produtos Químicos | Código 2131 | Para NGM |
| Placas de Petri (35 mm) | Genesee Scientific, LLC | 32-103 | Placas para ensaio de estresse |
| Placas de Petri (60 mm) | Genesee Scientific, LLC | 32-105 | Manter C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC Agitador Incubador Refrigerado | Eppendorf / New Brunswick Scientific | C24KC | 37 °C incubadora |
| DigiTherm® Incubadora de aquecimento/resfriamento de 38 litros | Tritech Research Inc. | DT2-MP-47L | 35 °C incubadora |
| Incubadora de Baixa Temperatura Fisher Scientific Isotemp | Fisher Scientific | 146E | 30 °C incubadora |
| Incubadora Refrigerada SHELab SRI20P | Sheldon Manufacturing Inc. | SRI20P | 20 °C incubadora |
| Microscópio Estereoscópico de Pesquisa Leica M165 FC | Leica Microsystems | M165 FC | Microscópio para imageamento |
| Microscópio Estéreo de Zoom ACCU-SCOPE 3075-DIA | ACCU-SCOPE Inc. | 3075-DIA | Microscópio para manipulação e análise de vermes |
| Microsoft Excel 2019 | Microsoft Corporation | Representação gráfica dos dados brutos | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Visualização de dados | |
| OASIS 2 | POSTECH, PMID: 27528229 | Análise estatística | |
| BioRender | Science Suite Inc. | Ilustração esquemática | |
| ImageJ | Institutos Nacionais de Saúde (NIH) | Processamento de imagens | |
| Adobe Illustrator 2021 | Adobe Inc. | Montagem da figura layout | |
| tipo selvagem | Centro de Genética Caenorhabditis, CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | feito em casa | Ablação de RIC | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. Neurônios RIC marcados com GFP e mCherry | Centro de Genética Caenorhabditis, CGC | OH16150 |
Referências
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve