Duas abordagens de co-cultivo sem contato são descritas para avaliação qualitativa e quantitativa das respostas morfológicas fúngicas durante interações interespecíficas. O protocolo demonstra como fatores intrínsecos influenciam o crescimento de hifas, utilizando um ensaio interespecífico de Candida como exemplo. Esses métodos podem ser facilmente adaptados para investigar a comunicação microbiana interespecífica em diversos organismos.
Artigo de método
Ensaios de Cocultura Sem Contato para Estudos Morfométricos Durante Interações Interespecíficas em Fungos
Neste artigo
Resumo
Resumo
O comportamento celular e a morfologia são geralmente influenciados por diversos fatores intra- e extracelulares em uma comunidade microbiana. Diferentes abordagens disponíveis para estudar a comunicação microbiana podem ser trabalhosas e/ou exigir instalações especializadas e expertise. Aqui, são descritas duas abordagens complementares de co-cultivo sem contato: o ensaio de co-cultivo em placa de poços com inserto de membrana e o ensaio baseado em Sobrenadante Livre de Células (CFS), que se fundamentam na transição morfológica como resposta mensurável para investigar o papel de diversos fatores em uma determinada interação interespecífica. O sistema de placa de poços com inserto de membrana, embora permita a difusão de moléculas extracelulares, possibilita a interação em tempo real entre espécies fisicamente separadas. Em comparação, o ensaio baseado em CFS oferece uma abordagem simplificada e escalonável para avaliar respostas a meios condicionados. O protocolo aqui apresentado inclui procedimentos padronizados para preparação de culturas, geração de sobrenadantes condicionados, montagem do ensaio, microscopia, aquisição de imagens, análise morfométrica quantitativa utilizando o Fiji e avaliação estatística. Isso foi demonstrado com um exemplo de resposta morfológica fúngica a fatores intrínsecos e extrínsecos. Os métodos aqui apresentados oferecem ferramentas alternativas acessíveis e adaptáveis para o estudo de novas interações microbianas em uma comunidade, podendo ser facilmente estendidos para investigar os mecanismos subjacentes à coexistência de múltiplas espécies em um mesmo ambiente.
Introdução
Em ecossistemas naturais e clínicos, os microrganismos geralmente residem em comunidades polimicrobianas estruturadas, regidas por redes complexas de interações intra- e interespécies comunicação1Esses consórcios utilizam diversos sinais químicos, incluindo moléculas de quorum-sensing, compostos orgânicos voláteis e peptídeos e proteínas secretórios, para coordenar comportamentos em nível populacional2. Mapear essas dinâmicas de comunicação é fundamental, pois interações nichadas cooperativas, competitivas ou predatórias alteram significativamente o metabolismo microbiano, a arquitetura espacial e a adaptação ao estresse3. Clinicamente, essas redes polimicrobianas (como consórcios bacterianos-fúngicos de duas espécies ou fúngicos intraspécies) frequentemente exibem virulência sinérgica, colonização acelerada de tecidos e resistência antimicrobiana elevada, em comparação com culturas monoculturais4,5. Decifrar os determinantes moleculares das comunicações microbianas é, portanto, essencial para superar os modelos tradicionais e desenvolver estratégias anti-infecciosas inovadoras capazes de interromper a estabilidade da comunidade6.
Para dissecar modos distintos de comunicação microbiana, os pesquisadores utilizam diversas configurações experimentais, principalmente empregadas na biologia de células de mamíferos, imunologia e oncologia7,8,9. Por exemplo, modelos de co-cultivo com contato direto servem como padrão para investigar sinalização juxtacrina e interações físicas célula a célula10. Configurações semelhantes, com modificações, também são usadas para estudar interações físicas entre microrganismos, compreendendo a inibição cruzada entre micróbios ou a resposta a fármacos9,11,12. No entanto, é difícil distinguir os mecanismos subjacentes, pois sinais dependentes de contato e sinais difusíveis contribuem para a resposta observada. Embora ensaios tradicionais baseados em contato possam fornecer informações espaciais, eles são trabalhosos e/ou exigem marcação distinta de cepas, o que pode ser tedioso em organismos não-modelo. Por outro lado, ensaios Transwell (placas de poços com inserções de membrana) são utilizados, principalmente em estudos com mamíferos, para diferenciar as contribuições de sinais dependentes de contato e sinais difusíveis13,14,15,16. Este método é particularmente útil quando a comunicação celular é mediada por moléculas secretadas, permitindo a análise em tempo real da dinâmica de sinalização entre populações celulares17. Além disso, ensaios sem contato oferecem a vantagem da separação por membrana, que também pode integrar experimentos com modelos computacionais para rastrear dinamicamente micróbios que métodos tradicionais não detectam18. Essa abordagem é ocasionalmente usada para estudar simultaneamente a cinética de desenvolvimento de diferentes espécies bacterianas19.
Uma alternativa mais barata e de alto rendimento ao ensaio em placa de poços com inserto de membrana é o ensaio baseado em sobrenadante livre de células (SFC) ou em meio condicionado. Sabe-se que esse método é utilizado na medicina regenerativa e na biologia vascular para isolar secretomas necessários para compreender a reparação tecidual mediada por células-tronco e/ou a angiogênese induzida por tumores20. De forma semelhante, em estudos microbianos, as abordagens baseadas em SFC têm sido úteis para decifrar a competição polimicrobiana. Por exemplo, filtrados bacterianos (como Pseudomonas aeruginosa ácidos homosserina lácticos acilados ou Lactobacillus metabólitos) têm sido usados para modular a maturação de biofilmes fúngicos21,22. Mais recentemente, plataformas microfluídicas permitiram uma biomimética fisiológica de alta fidelidade por meio de tecnologias do tipo órgão-em-chip23,24. Embora sistemas microfluídicos tenham sido implementados para detecção simultânea da resposta da comunidade microbiana frente aos seus secretomas, eles exigem instrumentação e expertise especializadas e podem não ser facilmente implementados em todos os ambientes25,26,27. Assim, os ensaios com placa de poços com inserto de membrana e os baseados em SFC prometem ser os métodos preferenciais na maioria dos casos. A escolha entre esses dois ensaios dependerá da natureza da molécula secretora. Se a molécula secretora for instável, ou seja, de meia-vida curta, e exigir a medição de atividade em tempo real, o ensaio com placa de poços com inserto de membrana é mais adequado. Por outro lado, se a molécula secretora for estável e o experimento for em larga escala, um ensaio baseado em SFC será mais econômico.
O objetivo principal deste protocolo é apresentar uma metodologia passo a passo de rastreamento qualitativo e quantitativo para avaliação de características morfológicas, utilizando as plataformas de placa de poços com inserto de membrana e CFS (Figura 1). Aqui, demonstrou-se com o exemplo de comunicação mediada por fatores secretados entre Candida albicans e Candida glabrata. Além disso, essas ferramentas também podem quantificar os efeitos de variáveis genéticas intrínsecas (ploidia e estado do locus de acasalamento) na alteração do desenvolvimento geométrico absoluto (comprimento, volume e diâmetro) dos filamentos de C. albicans , quando expostos a moléculas sinalizadoras secretórias. Este protocolo estabelecido fornece uma plataforma simples e acessível sem contato, adequada para o estudo da dinâmica de sinalização entre espécies.
Protocolo
Ambos C. albicans e C. glabrata são classificados como patógenos oportunistas humanos do Nível de Biossegurança 2 (NB-2). Todas as etapas experimentais devem ser realizadas dentro de Cabines de Segurança Biológica certificadas, com rigorosa adesão às Boas Práticas Microbiológicas (BPM) e aos procedimentos institucionais de contenção. Equipamentos de proteção individual (EPI), incluindo jalecos laboratoriais, luvas duplas e proteção ocular, devem ser utilizados durante todo o tempo. Todos os materiais descartáveis contaminados, utensílios plásticos e culturas líquidas devem passar por autoclavagem validada (121 °C, 15 psi, por 20 min) ou desinfecção química com solução recém-preparada de hipoclorito de sódio a 10% antes da eliminação final (Recomendado: Guia de Descarte de Resíduos dos Institutos Nacionais de Saúde (NIH) 2022). Todos os reagentes padrão, produtos químicos grau analítico e equipamentos utilizados ao longo desta metodologia são descritos na Tabela de Materiais. As características das linhagens fúngicas e os genótipos de referência estão detalhados na Tabela 1. A lista dos meios utilizados neste estudo, com suas composições, encontra-se no Arquivo Suplementar 1.
1. Preparação do Sobrenadante Livre de Células (SLC)
- Iniciação e incubação do cultivo
- Usando um alça plástica estéril, isole uma única colônia de C. glabrata CBS138 cultivada recentemente em uma placa de ágar de Meio Mínimo com Glicose (GMM) 28. Inocule a colônia em um tubo de vidro estéril contendo 10 mL de caldo padrão Yeast Peptone Dextrose (YPD) (1% p/v extrato de levedura, 2% p/v peptona, 2% p/v D-glucose)29.
- Fixe o tubo dentro de um incubador com agitação orbital. Incube o cultivo a uma temperatura fixa de 37 °C com agitação contínua a 200 rpm por 18 h.
- Verifique se o cultivo entrou uniformemente na fase final da fase estacionária do crescimento, conferindo se a densidade óptica (OD600) está dentro de uma faixa estável entre 12,0 e 14,0. Examine as células ao microscópio para garantir que estejam na forma de levedura e livres de contaminação. Esta janela de desenvolvimento é necessária para assegurar a acumulação ideal de componentes estáveis do secretoma extracelular.
- Separação celular e filtração
- Transfira assépticamente o cultivo líquido de C. glabrata de 18 h para um tubo cônico de centrífuga de polipropileno estéril de 15 mL.
- Equilibre os tubos e centrifugue o cultivo a 5.000 x g por exatamente 5 min a uma temperatura ambiente controlada de 25 °C, para comprimir a biomassa em um pellet compacto.
- Decante o sobrenadante líquido bruto em uma seringa plástica estéril limpa de 20 mL. Fixe cuidadosamente a seringa a um filtro de membrana de Poliéter Sulfona (PES) com baixa ligação a proteínas, estéril e de 0,22 µm.
- Aplicar pressão mecânica constante para fazer o líquido passar pelo filtro PES para um tubo coletor estéril de 15 mL, gerando o Sobrenadante Livre de Células (CFS) de trabalho. Se for sentida resistência durante a filtração, não aplique pressão excessiva, pois isso pode causar a ruptura da membrana. Nesses casos, utilize uma membrana de filtro nova.
NOTA: Não submeta o CFS recém-obtido a ciclos rápidos de congelamento-descongelamento ou a temperaturas de armazenamento abaixo de 4 °C antes de montar o ensaio, pois a precipitação a frio pode desestabilizar fatores proteicos de baixa abundância. - Retenha o pellet celular comprimido alvo no tubo coletor inicial, caso vá prosseguir diretamente para o experimento de co-cultivo em placa de poços com inserto de membrana (Passo 4).
2. Preparação do inóculo de Candida albicans para ensaios de indução de hifas
- Preparação e manutenção do inóculo
- Retire as cepas-alvo de C. albicans (consulte a Tabela 1 para os genótipos) diretamente dos estoques mestres de glicerol de longa duração armazenados a -80 °C. Estrie as células em placas sólidas de GMM (base de nitrogênio para levedura 0,67% p/v sem aminoácidos, D-glucose 2% p/v, ágar 2% p/v) para estabelecer colônias de trabalho.
- Para cepas diploides (SC5314, RBY1132, RBY1133): inocular uma única colônia em 5 mL de meio líquido GMM. Incubar o tubo por 12 h a 37 °C sob agitação constante a 200 rpm.
NOTA: O uso de meio mínimo (GMM) para a preparação noturna de células diploides é essencial para suprimir a autofilamentação espontânea que ocorre frequentemente em meios ricos em nutrientes. - Para cepas haploides (GZY896, GZY803): inocular uma colônia isolada em 5 mL de caldo YPD suplementado com 0,1 mg/mL de uridina (YPDU). Incubar o tubo por 12 h a 37 °C com agitação contínua a 200 rpm.
- Para preservar a estabilidade morfológica e garantir consistência, limitar o número de subcultivos líquidos consecutivos a um máximo de três passagens. Se a autofilamentação ou o agrupamento pseudohifal exceder 2% na população inicial controle, descartar a cepa e reativar células frescas a partir dos estoques congelados mestres.
- Normalização
- Aliquotar 1 mL das culturas líquidas noturnas em cubetas estéreis. Medir a absorbância exata em 600 nm (OD600) utilizando um espectrofotômetro UV-Visível calibrado, empregando caldo GMM ou YPDU fresco como controle de branco.
NOTA: A OD600 (densidade celular) das culturas líquidas noturnas, especialmente aquelas cultivadas em YPDU, excederá a faixa de sensibilidade do espectrofotômetro. Nessas situações, diluir adequadamente as culturas (10–20 vezes) antes de realizar as medições. - Calcular o volume de cultura densa necessário para gerar uma suspensão padronizada-alvo. Diluir as células com meio líquido GMM pré-aquecido (37 °C) em um tubo estéril para estabelecer um inóculo de trabalho de 1 mL ajustado a uma OD600 final absoluta = 0,1.
- Aliquotar 1 mL das culturas líquidas noturnas em cubetas estéreis. Medir a absorbância exata em 600 nm (OD600) utilizando um espectrofotômetro UV-Visível calibrado, empregando caldo GMM ou YPDU fresco como controle de branco.
3. Ensaio de indução de hifas baseado em CFS (formato de placa de 96 poços)
- Configuração do ensaio
- Utilize uma placa de microtitulação estéril de 96 poços, de fundo plano e transparente, feita de poliestireno.
- Configuração dos poços de teste: Adicione 45 µL do CFS de C. glabrata recém-filtrado (do Passo 1.2.4) diretamente nos poços designados para teste. Acrescente 45 µL de caldo GMM estéril (ou caldo YPDU, se estiver avaliando cepas alvo haploides).
- Controles negativos de meio: Adicione 90 µL de caldo GMM em poços controle. Adicionalmente, em um poço separado, misture 45 µL de caldo GMM estéril com 45 µL de caldo YPD não inoculado (branco) para monitorar os componentes de fundo do meio.
- Controles positivos de indução: Adicione 80 µL de caldo GMM combinado com 10 µL de soro bovino fetal (FBS; concentração final de 10% v/v).
- Inoculação: Adicione exatamente 10 µL do inóculo de trabalho padronizado com OD600 = 0,1 de C. albicans (do Passo 2.2.2) em 90 µL do meio apropriado em todos os poços experimentais e controles.
- Incubação e coleta de dados
- Cubra a placa de 96 poços com sua tampa de plástico ajustada para minimizar a evaporação. Coloque a placa em um incubador estático mantido a 37 °C por exatamente 3 h. Evite movimentar ou agitar a placa durante este período para permitir uma filamentação estável.
- Após a incubação, posicione a placa de múltiplos poços verticalmente sobre a platina de um microscópio óptico invertido equipado com óptica de campo claro e um módulo de câmera digital CCD integrado.
- Capture sistematicamente imagens automáticas ou manuais em pelo menos cinco campos distintos por poço.
- Realize esta configuração de ensaio com duplicatas técnicas claras para cada condição, em pelo menos três repetições biológicas totalmente independentes preparadas em dias separados.
4. Ensaio de co-cultivo em placa de poços com insertos de membrana
- Configuração do compartimento abluminal (inferior)
- Utilize uma placa estéril de cultura tecidual de 24 poços.
- Adicione exatamente 1,0 mL da suspensão celular de C. albicans normalizada com OD600 = 0,1 (proveniente do Passo 2.2.2) nos compartimentos inferiores abluminais.
- Configuração do compartimento luminal (superior)
- Recupere o pellet celular de C. glabrata reservado durante o Passo 1.2.5. Re-suspenda o pellet em 1 mL de caldo GMM estéril, centrifugue a 5000 x g durante 3 min e descarte o sobrenadante. Repita este passo de lavagem duas vezes para remover componentes nutricionais residuais ou elementos do meio antigo.
- Re-suspenda o pellet final lavado em caldo GMM fresco e ajuste a densidade óptica final para um valor altamente concentrado de OD600 = 5,0.
- Utilizando pinças estéreis, pegue um inserto estéril de membrana com membrana de policarbonato com poros de 0,4 µm fabricados por irradiação. Introduza suavemente o corpo do inserto no poço ocupado da placa de 24 poços, fixando suas abas superiores nas posições das ranhuras centrais.
- Adicione exatamente 750 µL da cultura concentrada de C. glabrata com OD600 = 5,0 no compartimento superior luminal do inserto.
NOTA: Manter uma proporção inicial de células de aproximadamente 1:50 (C. albicans para C. glabrata) através da barreira da membrana fornece acúmulo suficiente de ligantes sinalizadores, ao mesmo tempo que evita artefatos de retroalimentação localizados.
- Incubação e aquisição de imagens
- Cubra o conjunto montado da placa com insertos de membrana e incube de forma estática ou com agitação orbital suave (30 rpm) a 37 °C por exatamente 3 h.
- Após a incubação, utilize pinças estéreis para levantar e remover cuidadosamente o inserto luminal superior de cada poço. Descarte os insertos em resíduo biológico perigoso.
NOTA: A remoção completa do inserto superior com membrana antes da aquisição de imagens é necessária para eliminar sombras refrativas, padrões de dispersão de luz e artefatos de grade de fundo durante a análise microscópica de alta resolução. - Posicione a placa de 24 poços no estágio do microscópio invertido para avaliação morfológica. Neste estudo, foi utilizado um microscópio invertido equipado com objetivas de 10x/0,30NA, 20x/0,50NA ou 40x/0,60NA com distância de trabalho extra longa, juntamente com um conjunto de filtro DIC.
5. Microscopia de alta resolução e análise digital de imagens
- Aquisição de imagem digital
- Analise os fundos dos poços utilizando uma lente objetiva de baixa potência (10x) para verificar a distribuição uniforme das células e identificar eventuais erros localizados de rastreamento ou agrupamentos celulares anômalos.
- Capture no mínimo 10 campos de visão separados utilizando uma lente objetiva calibrada de 20x. Essas imagens formam o conjunto principal de dados para o rastreamento padrão da contagem de filamentos e distribuições populacionais.
- Para análise fenotípica detalhada e medições precisas dos contornos celulares, capture micrografias utilizando uma configuração de lente objetiva de 40x com distância de trabalho extra longa. Salve todos os arquivos de imagem brutos.
- Pipeline quantitativo de fenotipagem (Fiji)
- Inicie o software de processamento Fiji (versão 1.54p ou superior). Abra a micrografia-alvo navegando até Arquivo > Abrir ou arrastando o arquivo diretamente para o painel de controle do Fiji.
- Rastreamento do Comprimento do Filamento (L): Clique com o botão direito no ícone de seleção de linha na barra de ferramentas principal do Fiji e selecione a Ferramenta de Linha Segmentada no menu suspenso. Posicione o cursor no ponto exato de junção onde o filamento em movimento emerge da borda da parede celular da levedura-mãe.
- Clique com o botão esquerdo continuamente para traçar ao longo do eixo longitudinal central do hifa, posicionando pontos de ancoragem para ajustar curvas ou dobras, e finalize a linha na sua ponta apical absoluta. Clique em Medir para registrar o comprimento em micrômetros (µm). Pressione Ctrl+M (Windows) ou Cmd+M (Mac OS) para registrar o comprimento total (L) em micrômetros (µm) na janela de Resultados.
- Para evitar medições duplicadas do mesmo filamento, utilize a ‘Ferramenta Pincel’ integrada para destacar cada célula já analisada.
- Perfil da célula-mãe leveduriforme: Localize o corpo da célula-mãe leveduriforme associado ao filamento hifal previamente rastreado. Utilize a Ferramenta de Linha Segmentada para traçar uma linha reta ao longo do eixo longitudinal máximo do corpo celular, medindo seu eixo longitudinal máximo (eixo maior, definido como a variável ‘a’) e execute o comando Medir.
- Trace uma linha secundária estritamente perpendicular ao eixo maior, atravessando a maior extensão transversal do corpo celular, para medir seu eixo transversal correspondente (eixo menor, definido como a variável ‘b’) e execute o comando Medir.
- Calcule o volume total da célula-mãe leveduriforme (CV, expresso em micrômetros cúbicos, µm3) aplicando o modelo geométrico padrão de um esferoide prolato, utilizando as variáveis registradas ‘a’ e ‘b’: CV = 4/3 π ab2.
- Espessura Estrutural do Hifa (d): Selecione a Ferramenta de Linha Segmentada. Meça a distância da parede externa à parede oposta ou seja, uma linha traçada perpendicularmente ao eixo do comprimento. Realize essas medições em três pontos distintos e igualmente espaçados ao longo do comprimento do filamento, para considerar variações estruturais naturais, registrando cada medição via o comando Medir.
- Calcule a média aritmética desses três pontos de dados distintos para determinar um valor médio preciso de espessura (d). Divida esse valor médio calculado por dois para obter o raio estrutural (r = d/2).
- Calcule o volume total do filamento hifal (HV, expresso em µm3) tratando o filamento como um cilindro geométrico regular e não ramificado. Aplique o comprimento do filamento rastreado (L) e o raio estrutural derivado (r) ao seguinte modelo de cálculo: HV = π r2 L.
6. Planejamento estatístico
- Replicatas biológicas
- Realize todos os ensaios individuais em pelo menos três repetições biológicas independentes, utilizando culturas inicias frescas e preparadas separadamente.
- Em cada ensaio biológico, atribua no mínimo duas réplicas técnicas idênticas por condição para levar em conta efeitos locais nas bordas dos poços ou variações no pipetamento.
- Definição da unidade experimental: Para garantir a validade estatística e evitar artefatos, inclua no mínimo três repetições técnicas para cada experimento. Células individuais medidas dentro de um único poço constituem subamostras técnicas; analogamente, três desses poços corresponderiam a três réplicas técnicas. Da mesma forma, recomenda-se a realização de três réplicas biológicas (experimentos independentes) para cada amostra (N = 3).
- Para cada condição distinta dentro de um experimento biológico, meça aleatoriamente entre 50 e 100 células individuais em múltiplos campos de visão. Para cada replicata biológica, calcule o valor médio ou mediano dessas medições celulares. Utilize esses valores médios ou medianos provenientes das réplicas biológicas para todos os testes estatísticos comparativos subsequentes.
- Perfilagem de distribuição e teste de hipóteses
- Submeta os conjuntos de dados das réplicas biológicas à avaliação de normalidade utilizando os testes de Shapiro-Wilk ou de D’Agostino-Pearson antes de aplicar métodos paramétricos (por exemplo, comparação de médias).
- Comparações entre dois grupos: Ao comparar um único grupo experimental diretamente com um único grupo controle de referência (por exemplo, selvagem) C. albicans crescimento em meio puro versus crescimento em isolado C. glabrata CFS), aplique um teste t de Student não pareado, bicaudal teste t, desde que o conjunto de dados siga a distribuição normal.
- Se os dados apresentarem desvios significativos em relação a uma distribuição normal, recorra a uma alternativa não paramétrica, como o teste Mann-Whitney U (teste da soma de postos de Wilcoxon), que compara os valores medianos de dados classificados e não depende dos valores absolutos dos dados. Sabe-se que os testes não paramétricos também são isentos de viés em relação a valores discrepantes.
- Avaliações com múltiplos grupos: Ao avaliar simultaneamente três ou mais linhagens genéticas ou combinações de tratamentos (por exemplo, acompanhando variações morfológicas ao longo de) MATa/a, MATα/α, e MATa/α cepas), realize uma Análise de Variância padrão de um fator (ANOVA) seguida do teste post hoc de Tukey para comparações múltiplas aos pares. Se a hipótese de normalidade não for atendida, substitua a abordagem paramétrica por um teste não paramétrico de Kruskal-Wallis, seguido da análise de comparações múltiplas post hoc de Dunn.
- Representação gráfica e visualização de dados: Realize todas as análises estatísticas e representações gráficas utilizando softwares estatísticos e de geração de gráficos.
OBSERVAÇÃO: Softwares equivalentes podem ser utilizados para realizar análises estatísticas e preparar representações gráficas. Os dados provenientes da placa de poços com insertos de membrana e os ensaios de CFS podem ser representados por meio de gráficos de colunas com dispersão, gráficos violino com dispersão ou gráficos box plot com dispersão, que ilustram a mediana (linha central) e o IC 95% (utilizado neste estudo), ou a mediana (linha central) e os primeiro e terceiro quartis (linhas inferior e superior, respectivamente). - Definir o limiar para significância estatística formal no nível alfa de p < 0,05. Mantenha as configurações convencionais de notação em todas as figuras e tabelas geradas de dados. Por exemplo: ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
Resultados
Ensaios de co-cultivo sem contato para explorar interações entre espécies
Moléculas sinalizadoras extracelulares solúveis e de baixa abundância frequentemente medeiam eventos-chave de comunicação durante a coabitação microbiana mista. Essas dinâmicas foram avaliadas utilizando dois sistemas celulares acoplados sem contato, projetados para analisar os padrões de interação entre C. albicans e C. glabrata, ao mesmo tempo que evitam o contato físico direto célula a célula. A primeira configuração utilizou um sistema de cultura de placas com poços e insertos de membrana integrados, no qual as duas populações foram fisicamente separadas por uma membrana inerte de policarbonato poroso de 0,4 µm, permitindo a difusão bidirecional não impedida de moléculas secretadas através da barreira. O segundo sistema monitorou o crescimento de células leveduriformes de C. albicans cultivadas diretamente em placas de microtitulação contendo sobrenadante livre de células obtido de culturas de C. glabrata em fase estacionária (CgCFS).
Conforme observado nas telas anteriores30, células diploides heterozigotas do tipo selvagem de C. albicans (SC5314) desenvolveram prontamente hifas verdadeiras em resposta a células de C. glabrata separadas pelo inserto de membrana ou ao CgCFS filtrado. Por outro lado, células mantidas em meio negativo controle puro (GMM ou YPD) permaneceram predominantemente na forma de levedura brotante e pseudohifal (Figura 2A). As análises comparativas demonstraram consistência entre os dois sistemas de ensaio. Ambos os ensaios geraram valores comparáveis em todas as métricas estruturais, incluindo comprimento, volume e espessura dos filamentos (Figura 2). A diferença nos parâmetros morfológicos foi considerada significativa se o valor de p proveniente dos testes estatísticos apropriados, seguidos por testes pós-hoc para comparações múltiplas, atingisse o critério de 0,05. Essas observações mostraram que as células de C. albicans não apresentaram diferença significativa no comprimento das hifas verdadeiras induzidas por células de C. glabrata no sistema de placa de poços com inserto de membrana (39,66 µm ± 6,81 µm) ou quando expostas ao CgCFS filtrado (37,13 µm ± 6,50 µm; Figura 2B). Da mesma forma, os volumes desses filamentos induzidos no sistema de placa de poços com inserto de membrana (112,10 µm3 ± 22,59 µm3) também não diferiram significativamente dos observados no meio condicionado com CgCFS (109,78 µm3 ± 34,69 µm3; Figura 2C). Além disso, as medidas do diâmetro dos filamentos confirmaram que a espessura média das hifas permaneceu consistente entre os dois sistemas, com valores de 1,89 ± 0,10 µm para a configuração de placa de poços com inserto de membrana e de 1,92 µm ± 0,23 µm para o tratamento com CgCFS (Figura 2D).
Estados de ploidia e configurações de tipo de acasalamento alteram as dimensões morfológicas in vitro
Os papéis dos níveis de ploidia e das arquiteturas do loco de acasalamento na orientação das transições dimórficas já foram estabelecidos em diferentes sistemas modelo de fungos. Aqui, o fluxo de trabalho analítico de rastreamento foi aplicado para quantificar métricas de filamentação, especificamente o comprimento do hifa, volume estrutural, espessura e o volume correspondente da célula mãe leveduriforme, em um painel de cepas haploides (MATa ou MATα) e diploides (MATa/a, MATα/α ou MATa/α) de C. albicans.
O perfil estrutural revelou que, após exposição ao secretoma indutivo de CgCFS ou ao controle positivo de soro, a linhagem diploide homozigótica alfa (MATα/α) formou filamentos com eixos significativamente mais longos (45,56 µm ± 9,24 µm e 46,62 µm ± 9,07 µm) e maior volume (125,24 µm3 ± 39,94 µm3 e 119,45 µm3 ± 37,32 µm3), em comparação com a linhagem diploide homozigótica MATa/a (Figura 3A,C). Embora isolados clínicos padrão de C. albicans existam predominantemente como diploides heterozigóticos, a linhagem de referência MATa/α exibiu filamentos mais longos e volumes maiores em relação à linhagem MATa/a após indução (especialmente com soro). No entanto, esses valores foram significativamente menores do que os da linhagem homozigótica MATα/α (Figura 3B,D).
Concomitantemente, as linhagens haploides exibiram um padrão inverso, no qual a linhagem haploide MATa apresentou um aumento significativo no comprimento hifal em comparação com a linhagem haploide MATα sob ambas as condições de indução (CgCFS: 22,06 µm ± 5,41 µm versus 17,58 µm ± 4,12 µm; Soro: 23,71 µm ± 6,59 µm versus 21,00 µm ± 5,29 µm; Figura 4A). Curiosamente, esse aumento no comprimento no contexto haploide se traduziu em um aumento no volume hifal (38,84 µm3 ± 19,58 µm3 versus 34,25 µm3 ± 19,62 µm3) apenas em resposta ao CgCFS (Figura 4B). Essas medidas iniciais in vitro sugerem uma interação complexa entre estados de ploidia e configurações do locus de tipo de acasalamento, indicando que os loci MATa e MATα provavelmente contribuem de maneira distinta para a dinâmica de filamentação.
Para estudar as relações estatísticas entre essas métricas estruturais em todos os conjuntos de dados combinados, foram realizadas análises de correlação de postos de Spearman (ρ) e de regressão linear de Pearson (R2), abrangendo todas as variantes testadas de ploidia e tipo de acasalamento. Foram observadas correlações positivas em todos os pares analisados: comprimento hifal versus volume hifal, comprimento hifal versus espessura hifal, comprimento hifal versus volume da célula mãe e volume hifal total versus volume da célula leveduriforme mãe (Figura 5, Tabela Suplementar 1 e Tabela Suplementar 2).
A relação mais forte foi observada entre o comprimento hifal e o volume hifal calculado (ρ = 0.91; Figura 5A). Por outro lado, a correlação mais fraca foi entre o volume inicial da célula mãe leveduriforme e o volume hifal emergente (ρ = 0.63; Figura 5C). Além disso, a espessura hifal não apresentou correlação tão forte com o comprimento hifal quanto o volume hifal (Figura 5A,D). O volume da célula mãe, o comprimento hifal e a espessura hifal não apresentaram diferenças estatisticamente significativas em suas correlações (Figura 5B,D). Essas distribuições geométricas sugerem que um volume inicial maior da célula mãe leveduriforme não precisa resultar em hifas mais longas ou em maior volume.
Em resumo, esses resultados demonstram a utilidade da placa de poços com insertos de membrana e dos ensaios baseados em CFS para visualizar e quantificar variações morfogenéticas em C. albicans sem qualquer contato físico. Os dados gerados por este protocolo revelam características morfológicas distintas em diferentes contextos de ploidia e configurações de tipo de acasalamento. Essas configurações de ensaio sem contato oferecem uma metodologia flexível e escalonável que pode ser adaptada para investigar a dinâmica de sinalização interespecífica em diversas combinações microbianas.
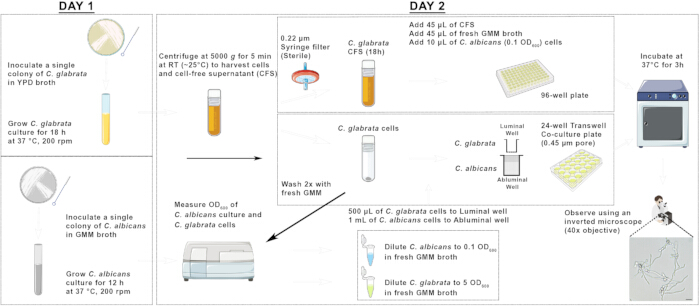
Figura 1: Representação esquemática do ensaio de cocultura em placa com poços com inserto de membrana e ensaios de indução de hifas baseados em CFS com espécies de Candida. Clique aqui para visualizar uma versão maior desta figura.
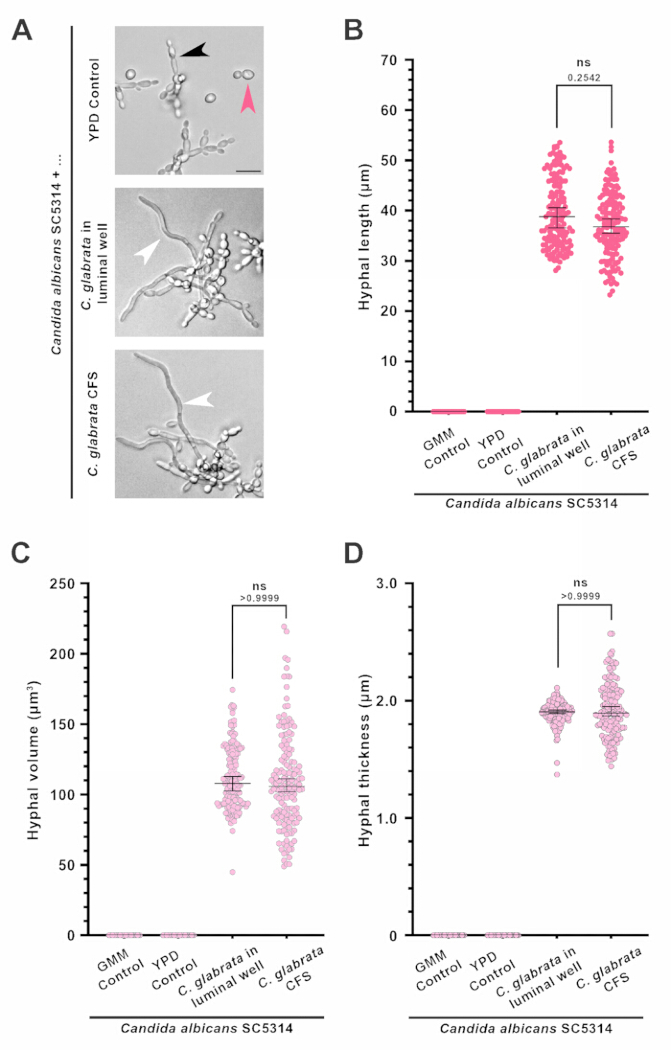
Figura 2: Comparação das morfologias hifais observadas entre o ensaio em placa de poços com inserto de membrana e os ensaios sem contato baseados em CFS. (A) Micrografias representativas em campo claro que mostram a resposta morfológica de C. albicans ao YPD (controle), C. glabrata em um sistema de placa de poços com inserto de membrana, ou ao meio condicionado com o sobrenadante livre de células de C. glabrata (CFS). As setas rosa, pretas e brancas indicam, respectivamente, levedura, pseudohifas e hifas verdadeiras. Barra de escala, 10 µm. Comprimentos hifais (B), volumes hifais (C) e espessura hifal (D) de uma linhagem diploide heterozigota de C. albicans (SC5314) observados em resposta a células de C. glabrata em um sistema de placa de poços com inserto de membrana ou ao CFS de C. glabrata. Os dados representam mediana ± intervalos de confiança de 95%, provenientes de três experimentos biológicos independentes, com n = 50 células. ns, não significativo: p > 0,05. Clique aqui para visualizar uma versão maior desta figura.
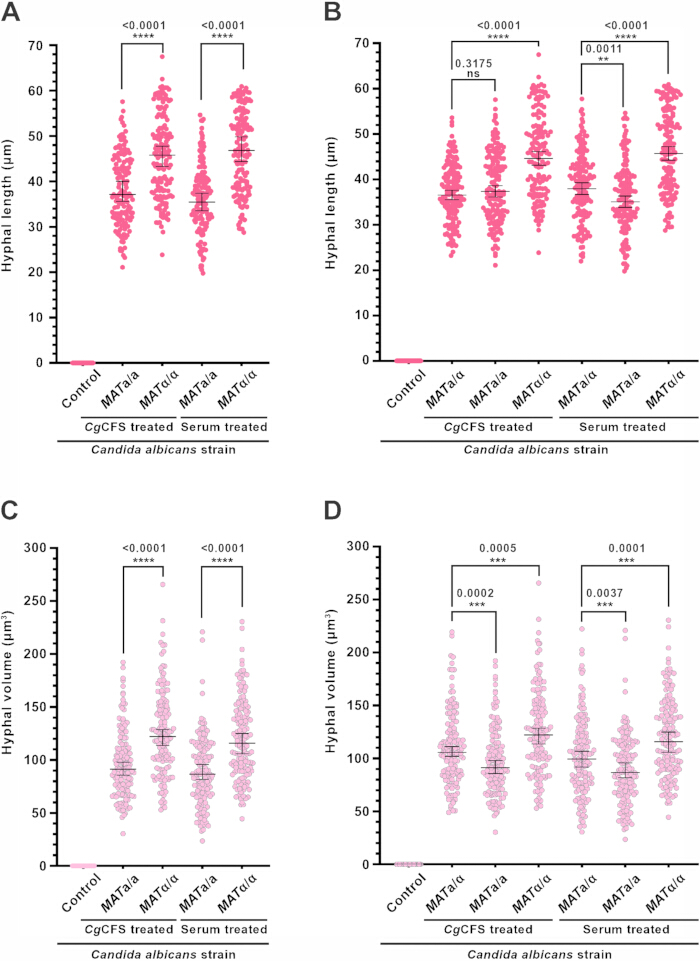
Figura 3: O tipo de acasalamento e a zigose têm efeitos significativos na morfologia hifal em diploides C. albicans. Gráficos que mostram os comprimentos comparativos de hifas, em resposta à molécula indutora indicada, entre diplóides homozigotos (A) e entre diplóides heterozigotos e homozigotos (B) de C. albicans. De forma semelhante, os volumes hifais comparativos, em resposta às moléculas indutoras mencionadas, são mostrados entre diplóides homozigóticos (C) e entre diplóides heterozigotos e homozigotos (D). Controle: YPD, o controle com meio não indutor de hifas. Os dados representam mediana ± intervalos de confiança de 95%, provenientes de três experimentos biológicos independentes, com n = 50 células. Os números indicados na parte superior do gráfico são p-valores, determinados por comparações com o teste de soma de postos de Wilcoxon. **: p < 0.01, ***: p < 0.001, ****: p < 0,0001, estatisticamente significativo; ns, não significativo p > 0.05. Clique aqui para visualizar uma versão maior desta figura.
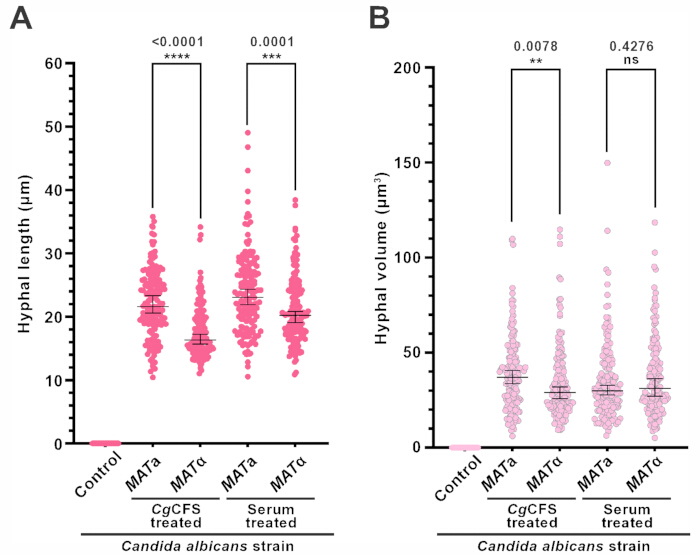
Figura 4: Características hifais em cepas haploides de C. albicans em resposta a diferentes indutores moleculares. Os gráficos mostram os comprimentos hifais (A) e os volumes hifais (B) em cepas haploides de C. albicans, em resposta ao indutor indicado. Controle: YPD, meio controle que não induz formação de hifas. Os dados representam mediana ± intervalo de confiança de 95%, provenientes de três experimentos biológicos independentes, com n = 50 células. Os números indicados denotam valores de p, determinados pelo teste de soma de postos de Wilcoxon. **: p < 0,01, ***: p < 0,001, ****: p < 0,0001, estatisticamente significativo; ns, não significativo: p > 0,05. Clique aqui para visualizar uma versão maior desta figura.
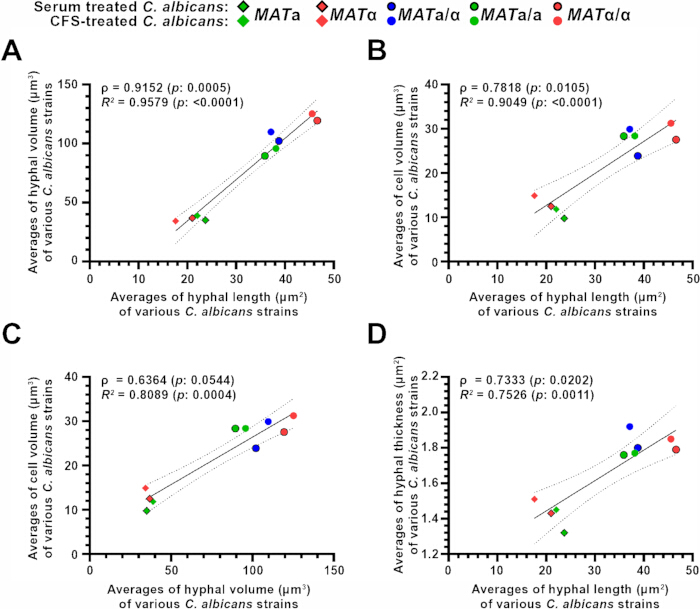
Figura 5: Correlação entre parâmetros morfológicos correspondentes à ploidia de C. albicans. Os gráficos mostram a correlação de Spearman e a regressão linear entre os parâmetros morfológicos utilizados neste estudo, ou seja, volume da hifa e comprimento da hifa (A), volume celular e comprimento da hifa (B), volume celular e volume da hifa (C) e espessura da hifa e comprimento da hifa (D). ρ: coeficiente de correlação de Spearman; R2: coeficiente de determinação da análise de regressão linear; p: valor de p. Clique aqui para visualizar uma versão maior desta figura.
| Estirpe | Espécie | Ploidia | Genótipo | Fonte |
| CBS138 | Candida glabrata | Haploide (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | Diploide (2n) | Heterozigoto (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Diploide (2n) | Homozigoto (MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Diploide (2n) | Homozigoto (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Haploide (1n) | Homozigoto (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Haploide (1n) | Homozigoto (MATα); his4 ura3Δ::HIS4 |
Tabela 1: Cepas de Candida albicans e Candida glabrata utilizadas neste estudo. A tabela descreve as designações, genótipos explícitos, estados de ploidia e zigose do tipo de acasalamento das cepas fúngicas avaliadas nos ensaios de co-cultivo em placa de poços com inserto de membrana sem contato e baseados em sobrenadante livre de células (CFS).
Tabela Suplementar 1: Dados das análises estatísticas realizadas em diversos parâmetros morfológicos de C. albicans. Clique aqui para baixar este arquivo.
Tabela Suplementar 2: Valores brutos de todas as réplicas biológicas dos diversos parâmetros morfológicos de C. albicans avaliados neste estudo.Clique aqui para baixar este arquivo.
Arquivo Suplementar 1: Lista dos meios utilizados neste estudo com suas composições.Clique aqui para baixar este arquivo.
Discussão
Relatos anteriores, utilizando uma placa de poços com insertos de membrana e ensaio baseado em CFS, mostraram que C. albicans desenvolve hifas em resposta a células de C. glabrata ou ao seu CFS. No entanto, essa resposta não foi induzida por outras leveduras, como Saccharomyces cerevisiae e Candida dubliniensis30. Além disso, essa resposta hifal não se restringiu apenas à linhagem de referência laboratorial C. albicans SC5314, mas também ocorreu em outros contextos genômicos, incluindo o isolado clínico WUM5A30. Neste protocolo, um fluxo de trabalho padronizado foi desenvolvido com base nesses achados para quantificar três métricas morfológicas: comprimento hifal, volume hifal e espessura hifal. Além disso, esses fatores morfológicos foram utilizados para avaliar como variações na ploidia e no status do locus de tipo de acasalamento afetam as características morfológicas de C. albicans em resposta a uma molécula indutora secretada.
As metodologias sem contato descritas aqui fornecem uma estrutura experimental simples para visualizar e analisar os resultados morfométricos de sinais solúveis entre espécies. Enquanto a placa de poços com inserto de membrana permite difusão bidirecional entre culturas ativas, o ensaio baseado em CFS oferece um formato escalável, pois os componentes indutores necessários são colhidos independentemente da cultura-alvo final. Manter uma proporção de aproximadamente 1:50 (C. albicans para C. glabrata) na configuração da placa de poços com inserto de membrana é necessário para garantir a consistência do ensaio. Esse gradiente de concentração assegura um fluxo adequado de moléculas indutoras solúveis através da barreira da membrana, ao mesmo tempo em que permanece abaixo dos limiares de acúmulo de inibidores endógenos de detecção de quórum, como o farnesol, que pode suprimir a cinética de filamentação de C. albicans31,32. Da mesma forma, uma etapa crítica no ensaio baseado em CFS é o período de incubação de 18 h necessário para que a cultura-fonte de C. glabrata alcance uniformemente a fase estacionária tardia do crescimento. Se o período de incubação da cultura de C. glabrata for inferior a 12 h ou superior a 24 h, o CFS colhido terá menor probabilidade de conter uma concentração ótima da molécula indutora específica estudada aqui, resultando em indução subótima de hifas. O estágio de crescimento apropriado para colher o CFS ou a proporção entre culturas precisa ser padronizado para qualquer novo objetivo experimental e/ou novas combinações de espécies microbianas.
Para maximizar a reprodutibilidade do ensaio em diferentes ambientes laboratoriais, recomenda-se a adoção das seguintes refinagens procedimentais. Recomenda-se o uso de Meio Mínimo com Glicose (GMM) para o cultivo noturno de todas as linhagens diploides de C. albicans. O uso do GMM suprime a autofilamentação de fundo frequentemente observada em meios ricos em nutrientes, como o meio YPD. Essa autofilamentação também foi observada em outros estudos, embora o mecanismo subjacente ainda não seja claro33. Também se recomenda a remoção física completa do inserto de membrana de policarbonato antes da aquisição das imagens, a fim de eliminar a dispersão da luz e aberrações ópticas que podem interferir durante a microscopia de campo claro com alta ampliação.
Embora essas configurações sem contato ajudem a separar os papéis dos componentes solúveis de sinalização, apresentam desafios experimentais específicos. Por exemplo, ensaios sem contato estão sujeitos a pequenos riscos, como ruptura da membrana devido a manuseio inadequado e, consequentemente, contaminação microbiana cruzada. Assim, deve-se prestar atenção ao posicionar as ponteiras de pipeta, tomando cuidado para que as ponteiras toquem as paredes da câmara dos insertos, e não a membrana, durante a coleta de amostras. Além disso, a contaminação física cruzada também pode ocorrer entre compartimentos devido a tamanhos de poros incorretos (maiores), o que pode ser facilmente resolvido utilizando insertos com tamanho de poro adequado na membrana. O crescimento excessivo de fungos ou deposição extensiva de biofilme pode cobrir a membrana porosa. Isso é evitado limitando as inoculações iniciais a uma DO600 = 0,1 e não incubando por mais de 12 h. Adicionalmente, os microrganismos podem não se distribuir homogeneamente dentro dos poços do dispositivo, frequentemente se agrupando ou aderindo próximo à membrana, o que pode levar a vieses inesperados nas medições de densidade óptica. Além disso, como esses sistemas separam fisicamente as duas populações, não conseguem replicar ou avaliar interações que dependem de contato físico direto entre células. Por exemplo, maturação de biofilme de espécies mistas, coagregação mecânica ou sinalização mediada por adesinas da parede celular ancoradas na superfície. Embora esses ensaios baseados em placas forneçam um instantâneo eficaz da cinética inicial da filamentação (aos 3 h), eles não capturam a dinâmica de crescimento a longo prazo nem o comportamento espacial. Para pesquisadores que necessitam de rastreamento contínuo em tempo real por períodos prolongados, canais de perfusão microfluídicos especializados ou câmaras automatizadas para imagem de células vivas podem oferecer uma alternativa mais adequada.
A geometria celular está fundamentalmente ligada à eficiência metabólica, sendo a razão entre área de superfície e volume (A/V) um fator determinante na aquisição de nutrientes e no transporte intracelular. Em fungos dimórficos e filamentosos, a transição para um morfotipo alongado, do tipo hifal, atua como uma adaptação estrutural para manter uma razão A/V otimizada. Isso permite a absorção distribuída de nutrientes ao longo da parede alongada do filamento, ao mesmo tempo que sustenta processos metabólicos direcionados à ponta da hifa34,35,36,37. No entanto, nosso estudo mostra que a escala morfométrica não é uniformemente proporcional entre diferentes estados de ploidia e configurações do locus de tipo de acasalamento.
Os conjuntos de dados morfométricos gerados por meio deste protocolo de rastreamento revelam tendências claras de escala estrutural correlacionadas com a ploidia, sendo que linhagens haploides exibem consistentemente valores absolutos menores em todas as métricas geométricas do que as linhagens diploides correspondentes (Figura 5). No contexto diploide, a configuração homozigótica MATα/α exibiu cinética de filamentação aprimorada (comprimento e volume) em relação às linhagens MATa/a ou MATa/α nessas condições in vitro. Dado que a filamentação aprimorada está frequentemente associada a uma capacidade de penetração aumentada, não é claro por que isolados clínicos de C. albicans são predominantemente isolados como diploides heterozigotos (MATa/α). É possível que, em um hospedeiro imunocompetente, o estado heterozigoto proporcione uma vantagem de aptidão mais ampla para a colonização comensal de longo prazo. Em outras palavras, as características estruturais do morfótipo MATa/α são otimizadas para a sobrevivência frente à vigilância imunológica do hospedeiro. Portanto, investigações futuras devem aproveitar esses sistemas padronizados de cocultivo para avaliar de forma sistemática a aptidão comparativa de diferentes homozigotos de tipo de acasalamento sob diferentes pressões seletivas.
Estudos anteriores documentaram que a morfologia vacuolar, a dinâmica fissão-fusão e a expansão estrutural desempenham papéis importantes no controle do volume interno e da pressão de turgor em hifas fúngicas em alongamento. Por exemplo, no patógeno do bolor do arroz Magnaporthe oryzae, transições distintas entre hifas vegetativas delgadas e estruturas invasivas bulbosas são rigorosamente coordenadas com alterações na organização vacuolar38,39,40. No entanto, o protocolo atual não monitorou diretamente a dinâmica vacuolar durante a filamentação de C. albicans; rastrear essas alterações nos organelos internos em relação ao volume estrutural total representa uma abordagem informativa para investigações futuras. Além disso, pesquisas adicionais são necessárias para determinar por que componentes específicos do secretoma derivados de fungos induzem cinéticas diferentes de escalonamento morfológico em comparação com indutores químicos derivados do hospedeiro, como o soro.
Os métodos de co-cultivo sem contato descritos neste protocolo podem ser adaptados para investigar interações entre espécies e entre reinos, como a dinâmica de sinalização entre populações bacterianas oportunistas e fungos dimórficos. Além disso, como esses formatos de 96 poços e 24 poços são escalonáveis, esta plataforma quantitativa pode ser utilizada para telas químicas. Exemplos incluem a identificação de inibidores de moléculas pequenas ou compostos antifúngicos novos capazes de interromper seletivamente vias de filamento estimuladas pelo secretoma, sem afetar diretamente a viabilidade celular basal.
Divulgações
Os autores declaram não haver interesses concorrentes ou conflitantes.
Agradecimentos
Este trabalho foi apoiado pela Bolsa Intermediária DBT-Wellcome Trust India Alliance (IA/I/19/1/504294) concedida a RNP. KBSS recebeu apoio da Bolsa Especial de Pesquisa da Universidade de Ahmedabad (AU/SRG/SAS/20-21/07_KS_03.25) e da Bolsa de Pesquisa Fundamental do SERB (URBSASE23A6/SERB/23-24/KS_02.27). Os ícones utilizados na Figura 1 foram adaptados do Servier Medical Art (https://smart.servier.com/), licenciados sob CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), e da BioArt Source, NIAID, NIH.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Filtro de seringa PES de 0,22 μm | Millipore (Merck) | SLGPR33RS | |
| Ágar-ágar | HiMedia | GRM666 | |
| Glicose | HiMedia | GRM016 | |
| Placa Porta-Nunc de 24 poços com Inserts para Cultura Celular (0,4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite Multicubeta de 96 poços, Tratada para Cultura Celular, Fundo Plano | Thermo Scientific | 130188 | |
| Proteose peptona | HiMedia | RM005 | |
| Uridina | Sigma | U6381 | |
| Extrato de levedura | HiMedia | RM027 | |
| Base de Nitrogênio para Levedura, com sulfato de amônio, sem aminoácidos | HiMedia | M878 |
Referências
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Reimpressões e permissões
