A reprogramação metabólica induz a angiogênese no PDAC por meio das vias HIF-1α, PKM2, KRAS, lactato e lipídios. Mecanismos compensatórios limitam a monoterapia, destacando a necessidade de estratégias racionalizadas de combinação.
Artigo de revisão
Regulação Metabólica da Angiogênese no Adenocarcinoma Ductal Pancreático
Neste artigo
Resumo
Resumo
O carcinoma ductal pancreático (PDAC) continua sendo altamente letal, com uma sobrevida de 5 anos de apenas 13%. Sua biologia agressiva e o diagnóstico tardio frequentemente levam à disseminação metastática na apresentação clínica. Esta revisão examina como a reprogramação metabólica regula a angiogênese no PDAC e explora as implicações terapêuticas desse acoplamento. Analisamos sistematicamente estudos publicados sobre alterações no metabolismo de glicose, aminoácidos e lipídios e sua interconexão com a neovascularização por meio do fator induzível por hipóxia-1α (HIF-1α), sinalização oncogênica e vias mediadas por metabólitos. Com base em uma síntese da literatura atual, o acoplamento metabólico-angiogênico parece operar por pelo menos três mecanismos interconectados: o eixo glicolítico-fator de crescimento endotelial vascular (VEGF) impulsionado pelo HIF-1α/quinase de piruvato M2 (PKM2); o lactato atuando como uma molécula sinalizadora que promove macrófagos associados ao tumor polarizados para o fenótipo M2 e estabiliza o HIF-1α; e metabólitos lipídicos — incluindo eicosanoides e proteína ligadora de ácidos graxos 4 (FABP4) — que modulam a função e a sobrevivência endoteliais. Além disso, intermediários derivados de glutamina sustentam a brotamento endotelial e a remodelação da matriz extracelular, enquanto as vias do triptofano e da serina influenciam o equilíbrio imuno-angiogênico. É importante destacar que vias compensatórias (por exemplo, angiogênese independente de HIF-1α por meio do acúmulo de glicogênio e ativação do receptor ativado por protease-2) limitam a eficácia de intervenções com agente único, destacando a necessidade de estratégias combinadas. O entendimento dessas redes metabólicas-angiogênicas fornece uma base racional para terapias guiadas por biomarcadores que visem simultaneamente o metabolismo tumoral e a vascularização. A integração de biomarcadores metabólicos e angiogênicos (por exemplo, VEGF, lactato desidrogenase A) com perfis metabólicos baseados em imagem pode melhorar a estratificação de pacientes e o monitoramento do tratamento no PDAC.
Introdução
O adenocarcinoma ductal pancreático (ADP) continua sendo uma das neoplasias sólidas mais letais. Para pacientes com doença metastática, a sobrevida média geral é de aproximadamente 6 a 11 meses, e mesmo aqueles com tumores localmente avançados ou ressecáveis enfrentam resultados a longo prazo extremamente pobres1,2. Nas últimas três décadas, a taxa de sobrevida em 5 anos melhorou apenas modestamente, de 4% para 13%, principalmente devido a avanços nas técnicas cirúrgicas e à centralização do atendimento, e não a avanços em terapias sistêmicas3,4. Do ponto de vista epidemiológico, espera-se que o câncer de pâncreas se torne a segunda principal causa de morte relacionada ao câncer nos Estados Unidos até 20305. Na China, a doença ocupa o 8º lugar em incidência e o 6º em mortalidade6, e sua incidência está aumentando entre adultos jovens7,8.
Apesar desse alto impacto, o progresso terapêutico tem sido frustrantemente lento, principalmente devido à acentuada heterogeneidade do tumor, disseminação sistêmica precoce e compreensão incompleta dos principais fatores que impulsionam sua biologia agressiva. A adaptação metabólica e as anormalidades vasculares no microambiente tumoral são consideradas centrais para a progressão do PDAC e para a resistência ao tratamento, embora as relações causais e a interação de sinalização entre esses dois processos permaneçam inadequadamente caracterizadas. Em particular, como as células cancerígenas moldam ativamente o nicho angiogênico por meio do reprogramamento metabólico, se os intermediários metabólicos atuam como moléculas sinalizadoras diretas sobre as células endoteliais e como esses mecanismos contribuem coletivamente à evasão terapêutica ainda não são compreendidos de forma sistemática9,10. Portanto, uma elucidação abrangente da rede de acoplamento metabólico-angiogênico possui grande importância teórica e clínica para revelar os mecanismos de progressão do PDAC e para o desenvolvimento de novas estratégias de intervenção. Contudo, até o momento, nenhuma revisão sistemática sintetizou os múltiplos mecanismos pelos quais o reprogramamento metabólico controla a angiogênese no PDAC, nem o potencial translacional dessas descobertas foi criticamente avaliado. Para preencher essa lacuna, a presente revisão tem como objetivo: sintetizar os mecanismos centrais pelos quais o reprogramamento da glicose, dos aminoácidos e dos lipídios regula a angiogênese no PDAC, com ênfase nos papéis centrais do fator induzível por hipóxia-1α (HIF-1α), sinais oncogênicos e intermediários metabólicos; avaliar criticamente a utilidade clínica de biomarcadores metabólicos e angiogênicos com base nas evidências disponíveis; e discutir as perspectivas e desafios das terapias combinadas que visam simultaneamente as vias metabólicas e vasculares. Ao integrar esses dados multilaminares, buscamos fornecer uma estrutura conceitual para o diagnóstico e tratamento preciso do PDAC. Importante ressaltar que, embora a elucidação desses mecanismos de acoplamento possa oferecer uma base teórica para a identificação de biomarcadores e o desenvolvimento de terapias direcionadas, o valor translacional dessas descobertas aguarda validação em estudos clínicos prospectivos bem delineados, e a força das evidências para cada aplicação proposta será criticamente examinada nas seções subsequentes desta revisão.
Revisão e perspetiva
O adenocarcinoma ductal pancreático (ADP) desenvolve-se em um microambiente singularmente hostil, caracterizado por desmoplasia densa, hipóxia acentuada e reprogramação metabólica aberrante. A vasculatura tumoral que emerge desse ambiente não é meramente um conduto passivo, mas uma participante ativa na progressão da doença, moldada pela convergência de sinalização oncogênica, adaptação metabólica e interações com o estroma. Conforme ilustrado na Figura 1, entradas metabólicas provenientes das vias da glicose, dos aminoácidos e dos lipídios convergem sobre reguladores centrais — o fator indutível por hipóxia-1α (HIF-1α), o KRAS mutante (presente em cerca de 93% dos ADP) e o complexo mTOR 1 (mTORC1) — para coordenar saídas angiogênicas transcricionais e pós-traducionais. A vasculatura resultante é caracteristicamente hipovascular, permeável e imatura, composta por quatro modos distintos de vascularização: angiogênese por brotamento, interussusceptiva e coalescente, além da mimetização vasculogênica (MV). Compreender essa heterogeneidade mecanicista é essencial para interpretar a falha das monoterapias antiangiogênicas e para o desenvolvimento de estratégias racionalmente combinadas.
Visão geral básica da angiogênese no câncer pancreático
Modos de angiogênese
A angiogênese por brotamento é o modo predominante de neovascularização no CPAD, desencadeada pela hipóxia, lesão tecidual ou sinalização oncogênica e regulada por múltiplos mediadores pró-angiogênicos11. O fator de crescimento endotelial vascular (VEGF), secretado por células tumorais, constitui o fator regulador mais crítico. Ao se ligar ao VEGFR2, o VEGF ativa as vias PI3K/AKT e MAPK/ERK: a PI3K fosforila o PIP2 para gerar PIP3, recrutando e ativando a AKT para promover a proliferação e migração das células endoteliais (CE), enquanto a cascata MAPK/ERK prossegue pela ativação de RAS-RAF-MEK-ERK, com a ERK translocando para o núcleo para modular a expressão gênica associada à proliferação e migração. Estudos pré-clínicos demonstram que a inibição do VEGF reduz significativamente o brotamento e atenua o crescimento tumoral em modelos de CPAD12. Avanços recentes destacam que a plasticidade fenotípica endotelial modula criticamente a eficiência do brotamento. As células endoteliais alternam reversivelmente entre células "falange" quiescentes, células "punta" migratórias e células "haste" proliferativas. A dinâmica ponta-haste é metabolicamente especializada: as células ponta dependem preferencialmente da glicólise para impulsionar a migração, enquanto as células haste dependem da oxidação de ácidos graxos para sustentar a proliferação. Proteases derivadas do tumor, como a ADAM9, promovem ainda mais a formação de brotos por meio da liberação do fator de crescimento semelhante à EGF com ligação à heparina. Em conjunto, esses achados indicam que a angiogênese por brotamento no CPAD é governada não apenas pelo VEGF, mas por uma interação complexa de fatores metabólicos, de sinalização e estromais13,14,15,16.
A angiogênese intrusiva expande e ramifica vasos por meio da remodelação da parede vascular existente, sem depender da proliferação ou migração de células endoteliais17. No tecido tumoral, a rápida proliferação das células cancerosas aumenta a pressão local, fazendo com que a parede do vaso se invagine para dentro da luz e forme estruturas colunares ou septais. Essas estruturas gradualmente se alargam e fundem, dividindo a luz original em múltiplos canais menores, aumentando assim a área superficial e o volume do vaso. A imagem tridimensional em modelos de camundongos com CPAD indica que esse modo é mais comum nas regiões centrais do tumor, onde ajuda a aliviar a hipóxia18. Como a angiogênese intrusiva depende da remodelação da parede vascular e não da proliferação de células endoteliais, agentes antiangiogênicos que inibem a proliferação endotelial — e particularmente a terapia anti-VEGF — podem ter eficácia limitada contra esse modo.
A angiogênese coalescente (AC) evolui a partir de uma rede capilar isotrópica que envolve ilhas teciduais. Caminhos preferenciais de fluxo se ampliam por meio da agregação capilar e do desaparecimento de pilares teciduais internos, enquanto segmentos menos perfundidos regredem, remodelando a rede em forma de malha em uma árvore hierárquica que preserva os componentes da parede vascular e mantém o fluxo sanguíneo19. A AC compartilha características com a angiogênese intussusceptiva, mas difere morfologicamente: enquanto a angiogênese intussusceptiva cresce e funde pilares teciduais para dividir vasos existentes, a AC elimina ilhas teciduais para formar vasos definitivos, tornando-a funcionalmente o processo inverso20.
A mimetização vasculogênica representa um padrão distinto no qual células tumorais simulam células endoteliais para formar estruturas semelhantes a vasos. A formação de mimetização vasculogênica está intimamente associada à transição epitelial-mesenquimal (TEM)21; células tumorais transformadas pela TEM se interconectam para formar estruturas contendo lúmen, sustentadas por células positivas para ácido periódico-Schiff (PAS) e matriz extracelular, transportando eritrócitos e desempenhando funções de perfusão análogas às da vasculatura normal22. As estruturas de mimetização vasculogênica estão significativamente aumentadas em tecidos de CPAD altamente invasivos e correlacionam-se com mau prognóstico23.
Características vasculares e restrições microambientais
Diferentemente de muitas neoplasias, o CPAD é caracteristicamente hipovascular e desmoplásico, com densidade média de microvasos (DMV) significativamente menor do que no tecido pancreático normal ou no carcinoma hepatocelular24,25,26. Esse fenótipo hipovascular persiste apesar da hipóxia acentuada, sugerindo mecanismos angiossupressores ativos. A sinalização parácrina Hedgehog pode suprimir a sinalização WNT não canônica para limitar a hipersprouting dependente de VEGFR2, e a formação de trans-complexos VEGFR2/neuropilina 1 (NRP1) entre células tumorais e endoteliais correlaciona-se com menor ramificação vascular e maior sobrevida27. A vasculatura resultante exibe distribuição irregular, estrutura imatura, baixa cobertura por pericitos e vazamento funcional28, levando à extravasação plasmática e pressão intersticial elevada (PIE). A PIE elevada combinada com estresse sólido decorrente da fibrose densa comprime os vasos, podendo causar colapso vascular e ausência quase completa de vasos com diâmetro superior a 10 µm, agravando ainda mais a hipoperfusão29,30.
Essa perfusão diminuída cria um ciclo vicioso de hipóxia. Os neovasos do CPAD apresentam paredes incompletas e suporte inadequado de músculo liso e pericitos, resultando em fluxo sanguíneo lento31. O microambiente hipóxico estabiliza transcripcionalmente o HIF-1α, o que amplifica a secreção de VEGF e perpetua o estímulo angiogênico32,33. Em amostras humanas de CPAD ressecadas, a expressão de HIF-1α (presente em 40% dos casos) correlaciona-se positivamente com doença metastática e densidade microvascular (MVD), enquanto correlaciona-se negativamente com o prognóstico34. A superexpressão de HIF-2α e a mimetização vasculogênica estão igualmente associadas à má diferenciação, estágio avançado, metástase em linfonodos e prognóstico desfavorável35.
Disfunção dos pericitos—caracterizada por ectopia α-expressão de actina do músculo liso e adesão pericitos-endoteliais prejudicada – desestabilizam ainda mais a vasculatura36Junções endoteliais frouxas, membranas basais descontínuas e lacunas intercelulares aumentam a permeabilidade, permitindo a extravasação plasmática que eleva a pressão intersticial e dificulta a entrega de fármacos, ao mesmo tempo que facilita a intravasação de células tumorais. A alta densidade microvascular combinada com baixa integridade dos microvasos está associada à recorrência precoce, metástase e sobrevida transitória após ressecção.37.
Regulação metabólica da angiogênese
O CPAD exibe extensas regiões hipóxicas, com uma pO₂ tecidual mediana de 0–5,3 mmHg em comparação com 24,3–92,7 mmHg no tecido normal adjacente38. Isso decorre do estroma fibroso hipóxico, da proliferação rápida e da vasculatura inadequada39. A resposta adaptativa à hipóxia, mediada principalmente por isoformas HIF-α, confere ao CPAD um fenótipo agressivo e resistente à terapia: a HIF-1α é rapidamente induzida sob hipóxia aguda e grave40,41, enquanto a HIF-2α tende à expressão persistente sob hipóxia crônica e moderada42,43, e a HIF-3α regula principalmente outros complexos HIF44.
A HIF-1α atua como a chave reguladora central ascendente, impulsionando simultaneamente a reprogramação metabólica da glicose e a angiogênese. Sob hipóxia, a HIF-1α ativa transcripcionalmente genes relacionados à glicólise (GLUT1, HK2, LDHA, PKM2), ao mesmo tempo em que ativa fatores pró-angiogênicos (VEGF, CTGF, PDGFB)45,46,47. Moléculas como MUC1, P4HA1 e APE1/Ref-1 reforçam tanto o fenótipo glicolítico quanto a capacidade angiogênica por meio da estabilização da HIF-1α ou da melhoria de sua função transcripcional48,49,50,51. A PKM2 atua como uma ponte molecular direta entre glicólise e angiogênese: sob hipóxia, a PKM2 transloca-se para o núcleo, coativando a transcrição de genes glicolíticos e angiogênicos (incluindo VEGF-A) por meio da interação com β-catenina/STAT3 e modificação de histonas, criando um circuito de retroalimentação positiva no qual a glicólise potencializada amplifica a sinalização HIF-1α/VEGF47,52. As mutações em KRAS aumentam a estabilidade da HIF-1α/2α por meio da via MEK/ERK, promovendo a superexpressão de enzimas glicolíticas (LDHA, PDK1) e efetores pró-angiogênicos (VEGF, CA9, MCT4)53,54. Outras interações incluem a estabilização da HIF-1α mediada por LSD1, o eixo UHRF1/SIRT4 e a sinalização por receptores através de IR/IGF1R e CX3CL1/CX3CR139,55,56, enquanto a lumican suprime tanto a glicólise quanto a angiogênese por meio da inibição da via EGFR/PI3K/Akt57. Vias compensatórias—como o acúmulo de glicogênio, que sustenta a angiogênese por meio do recrutamento de células dendríticas58, e a ativação do PAR-2, que promove a expressão de VEGF por meio da via MEK-ERK53—indicam que o direcionamento apenas da HIF-1α ou de nós metabólicos isolados pode ser insuficiente.
O metabolismo de aminoácidos modula a angiogênese ao fornecer precursores biossintéticos para a brotação endotelial e a remodelação da matriz extracelular, além de gerar sinais imunometabólicos que regulam indiretamente o tônus vascular e a infiltração imune. A glutamina, por meio da GLS, forma glutamato conversível em aspartato para promover a brotação das células endoteliais59 e em prolina para a remodelação da MEC60. A estimulação por VEGF aumenta a captação endotelial de glicina, promovendo a migração61; a glicina também participa da síntese de glutationa, modulando o estresse oxidativo e o tônus vascular mediado por NO62. A arginina contribui para a formação de prolina, poliaminas e NO63, enquanto a via de síntese da serina dependente de PHGDH regula o tônus vascular, o estresse oxidativo e a proteção contra apoptose endotelial63,64,65. Notavelmente, o metabolismo do triptofano em células supressoras derivadas de mieloides (MDSCs) gera quinurenina por meio da IDO-1, deslocando o equilíbrio entre IFNγ/IL-6 para um estado pró-angiogênico67,68.
A reprogramação metabólica dos lipídios promove a neovascularização por meio de mecanismos metabólicos, de sinalização e imunomoduladores69. O CPAD apresenta lipogênese *de novo* aumentada, impulsionada pelo SREBP-1 e enzimas como FASN e ACC. Além da biogênese de membranas, a FASN regula a proliferação das ECs por um mecanismo de sinalização mediado por metabólitos: a inibição da FASN eleva o malonil-CoA, promovendo a malonilação do mTOR na lisina 1218 e prejudicando a atividade quinase do mTORC1, suprimindo assim seletivamente a proliferação das ECs sem afetar sua migração70. A oxidação de ácidos graxos atua como fonte alternativa de energia sob restrição de glicose, sustentando a migração e a formação de tubos pelas ECs; a inibição farmacológica da FAO prejudica a angiogênese em modelos de CPAD71.
Espécies lipídicas também atuam como moléculas sinalizadoras diretas. O ácido lisofosfatídico (LPA) e a esfingosina-1-fosfato (S1P) ativam receptores acoplados à proteína G endoteliais para promover proliferação, migração e permeabilidade, sendo níveis elevados associados ao aumento da expressão de VEGF e formação de tubos72. O metabolismo lipídico anômalo gera espécies reativas de oxigênio (ROS) e produtos de peroxidação lipídica que ativam HIF-1α e NF-κB, amplificando a transcrição de genes pró-angiogênicos, incluindo VEGF e IL-873. O acúmulo de gotículas lipídicas em células tumorais e endoteliais correlaciona-se com maior sobrevivência das células endoteliais e resistência à terapia antiangiogênica, com as perilipinas implicadas na regulação de proliferação e migração74.
A reprogramação metabólica dos lipídios também molda o microambiente angiogênico por meio da modulação imune. Macrófagos associados ao tumor (MATs) acumulam lipídios oxidados e colesterol por meio de receptores scavenger, como o CD36, promovendo um fenótipo pró-angiogênico semelhante ao M2 que secreta VEGF, TNF-α e metaloproteinases da matriz. De forma semelhante, as células supressoras derivadas da linhagem mieloide (MDSCs) ricas em lipídios produzem fatores angiogênicos que apoiam a neovascularização. Esse eixo metabólico-imune-angiogênico representa um alvo terapêutico emergente no CPAD75.
Sinalização angiogênica mediada por metabólitos
O lactato foi resgatado da condição de resíduo metabólico para a de molécula sinalizadora chave que conecta glicólise e angiogênese. O lactato promove a angiogênese por meio de três mecanismos principais: ativação direta da via NF-κB/IL-8 em células endoteliais via MCT-1; estabilização da proteína HIF-1α pela inibição da atividade da proli hidroxilase (PHD); e modulação imunológica parácrina76. O papel do GPR81 na ativação mediada por lactato do HIF-1α permanece controverso: estudos em camundongos demonstram que o sinal do GPR81 estabiliza o HIF-1α em células dendríticas e MDSCs, promovendo evasão imunológica e angiogênese, mas estudos com macrófagos murinos indicam que os efeitos imunossupressores podem ocorrer independentemente do GPR8177. Além disso, a expressão do GPR81 é alta no tecido adiposo, mas notavelmente baixa em outros órgãos humanos78, e neutrófilos humanos que expressam GPR81 apresentam resposta transcricional mínima à estimulação por lactato, levantando dúvidas sobre a generalização desses achados79. Especificamente no câncer pancreático, o lactato potencializa a atividade das MDSCs por meio do eixo GPR81-mTOR-HIF-1α-STAT380, embora a relevância interspecífica desse mecanismo ainda não esteja completamente caracterizada. Adicionalmente, o lactato induz a polarização de macrófagos para o fenótipo M2, que secretam fatores pró-angiogênicos adicionais81,82, enquanto a lactilação de proteínas (por exemplo, lactilação em ENSA-K63) remodela o microambiente imunológico por meio de STAT3/CCL2, afetando indiretamente a angiogênese83.
Outros metabólitos modulam a angiogênese por meio de vias distintas. Os ácidos graxos ômega-3 (EPA e DHA) exercem efeitos antiangiogênicos ao inibir VEGF, PDGF, COX-2, PGE2, NF-κB e MMPs84. Por outro lado, os ácidos graxos poli-insaturados ômega-6 elevados fornecem substratos para o metabolismo do ácido araquidônico; o PGE2 produzido pela COX-2 aumenta a secreção de VEGF por células de CPAD por mecanismos autócrinos, promovendo a migração de células endoteliais85.
A proteína de ligação a ácidos graxos 4 (FABP4) atua em múltiplos compartimentos para promover a angiogênese. Em células endoteliais, a NOTCH1 induz a expressão da FABP4 para impulsionar o metabolismo de ácidos graxos de cadeia longa e conferir resistência ao estresse oxidativo, apoiando a brotação angiogênica. Em células tumorais, o metabolismo lipídico anômalo gera acetil-CoA e espécies reativas de oxigênio (ROS) que ativam o HIF-1α e o NF-κB, estimulando a transcrição do VEGF e do PDGF. No nível estromal, os adipócitos medeiam o transporte de ácidos graxos livres por meio da FABP4, ao mesmo tempo em que secretam IL-1β e TNF-α para ativar o NF-κB. Concomitantemente, o metabolismo anormal de esfingolipídios induz a polarização de macrófagos para o fenótipo M2 por meio do eixo MIF-CD74, com subconjuntos de macrófagos FABP4+ aumentando a capacidade migratória das células endoteliais86.
Por fim, metabólitos do microambiente tumoral — incluindo succinato, fumarato e 2-hidroxiglutarato — funcionam como moléculas sinalizadoras que ativam vias relacionadas à angiogênese por meio da remodelação da função das células endoteliais e da regulação da polarização imune87.
Tradução clínica: biomarcadores, imagem e terapêuticas
A interação entre o reprogramamento metabólico e a angiogênese fornece novos biomarcadores e dimensões de avaliação para o manejo do CPAP, embora a trajetória de translação siga um gradiente heterogêneo de evidências. Conforme resumido na Tabela 188,89,90,91,92,93, os biomarcadores candidatos abrangem três níveis: (i) marcadores clínicos estabelecidos, como o CA19-9, amplamente utilizados, mas com baixa especificidade para CPAP em comparação com obstrução biliar; (ii) marcadores emergentes avaliados clinicamente, incluindo VEGF e metabólitos glicolíticos; e (iii) assinaturas experimentais, como painéis multimetabólitos e modelos de risco baseados em lipídios e macrófagos.
Vários estudos confirmam que VEGF, HIF-1α e GLUT1 estão significativamente elevados no sangue e nos tecidos tumorais de pacientes com CPAD em comparação com condições pancreáticas inflamatórias. Em um estudo com 61 pacientes submetidos à ressecção, as concentrações de VEGF no sangue e no tecido foram significativamente mais altas no CPAD do que nos tumores inflamatórios (p < 0,000001), assim como HIF-1α (p = 0,000005) e GLUT1 (p = 0,000002). A análise multivariada identificou o VEGF como o preditor independente mais poderoso tanto no sangue (OR = 1,016; p = 0,001) quanto no tecido (OR = 1,02; p = 0,001), com o VEGF sérico em um ponto de corte de 134,56 pg/mL demonstrando sensibilidade de 97,8% e especificidade de 86,7%88. Além do diagnóstico, as alterações dinâmicas do VEGF durante o tratamento podem servir como marcadores farmacodinâmicos. No ensaio clínico fase I STARPAC (n = 19), medições seriadas no plasma sugeriram que alterações precoces do VEGF poderiam prever a resposta ao tratamento, embora isso precise ser validado em ensaios controlados randomizados89.
A reprogramação glicolítica oferece potencial diagnóstico complementar. Integrando conjuntos de dados GEO e TCGA, pesquisadores identificaram a LDHA como preditor independente de sobrevida global em câncer pancreático (p < 0,001). O perfil metabólomico sérico por RMN em 36 pacientes com PDAC e 70 controles saudáveis revelou alterações significativas em metabólitos relacionados à glicólise, com um escore combinando lactato, piruvato, citrato e glicose alcançando uma AUC de 0,956 para distinguir PDAC dos controles90. Avançando de assinaturas de gene único para integração multimetabólitos, um estudo de metabolômica em duas fases identificou prolina, creatina e ácido palmítico como um painel capaz de distinguir PDAC de neoplasias benignas e controles saudáveis, com AUCs de 0,854 e 0,865 no conjunto de descoberta; a adição de CA19-9 melhorou o desempenho para 0,949 e 0,909, respectivamente, com AUCs de validação de 0,830 e 0,852 em uma coorte independente91. No nível transcricional, a análise bioinformática de conjuntos de dados públicos (TCGA-PAAD, GSE62452, GSE57495) gerou um modelo de risco lipídico-macrófago composto por sete genes (ADH1A, ACACB, CD36, CERS4, PDE3B, ALOX5, CRAT) que estratificou efetivamente os pacientes por risco, com mutações em TP53 prevalentes e fatores imunomoduladores (PVRL2, CD276, CCL20) correlacionados com o escore de risco92.
A divergência entre resultados promissores na fase de descoberta e achados de meta-análise reflete limitações metodológicas recorrentes: desenho retrospectivo de centro único, viés de espectro em direção a doenças ressecáveis, tamanhos amostrais modestos, ausência de comparadores benignos e falta de validação prospectiva independente87,88,89,90,91. Esses achados enfatizam a necessidade de uma validação rigorosa, padronizada e com poder estatístico suficiente antes que novos biomarcadores possam avançar para a implementação clínica.
Para avaliação funcional, a PET/CT com 18F-FDG reflete a atividade metabólica da glicose tumoral, enquanto a ressonância magnética com [1-13C]piruvato hiperpolarizado permite o monitoramento em tempo real da conversão de piruvato em lactato, o que se correlaciona com a superexpressão de LDHA e HIF-1α94. Os exossomos circulantes apresentam potencial como ferramentas minimamente invasivas para diagnóstico precoce e monitoramento95. Do ponto de vista prognóstico, a superexpressão de VEGF/VEGFR-2, alta atividade glicolítica, superexpressão de LDHA e expressão de COX-2 estão todas associadas a desfechos desfavoráveis, sugerindo que a classificação molecular com base em características metabólicas e angiogênicas pode permitir uma estratificação precisa e a seleção adequada do tratamento96.
Estratégias terapêuticas e o paradoxo antiangiogênico
Apesar do papel central do VEGF na angiogênese do CPAD, estratégias anti-VEGF/VEGFR falharam consistentemente em ensaios de fase III. O estudo CALGB 80303 (n = 535) demonstrou ausência de benefício em sobrevida para gemcitabina mais bevacizumabe em comparação com gemcitabina isolada (sobrevivência global mediana de 5,8 versus 5,9 meses; p = 0,95)97. O estudo AviTA mostrou melhora estatisticamente significativa na sobrevida livre de progressão, mas sem benefício em sobrevida global com a adição de bevacizumabe à gemcitabina mais erlotinibe98. O estudo VANILLA com gemcitabina mais aflibercepte foi interrompido após análise intermediária confirmar ausência de benefício em sobrevida global (7,75 versus 6,54 meses)99, e o axtinibe igualmente não conseguiu melhorar a sobrevida quando combinado com gemcitabina100.
Essas falhas refletem pelo menos três mecanismos de resistência específicos ao CPAD. Primeiro, a ativação de vias compensatórias: a hipóxia induzida pelo bloqueio do VEGF aumenta a regulação de fatores pró-angiogênicos alternativos (FGF, Ang-2, PIGF) e recruta células mieloides pró-angiogênicas101. Segundo, cooptação vascular e mimetismo vasculogênico: as células tumorais contornam a inibição da angiogênese brotante utilizando vasos hospedeiros pré-existentes ou formando canais semelhantes a vasos independentemente da proliferação endotelial22. O sequenciamento recente em nível de célula única revelou que fibroblastos associados ao câncer (CAFs) podem transdiferenciar-se em um fenótipo semelhante ao endotelial (FAPα + CD144 + endoCAFs), capaz de promover mimetismo vasculogênico e metástase por meio da sinalização CD144-β-catenina-STAT3, alterando o enquadramento conceitual do VM de um processo autônomo das células tumorais para um mecanismo cooperativo entre tumor e estroma102. Terceiro, adaptação metabólica e estromal: a desmoplasia densa aprisiona fisicamente anticorpos terapêuticos, enquanto os CAFs sustentam a angiogênese por meio de vias parácrinas mediadas por HGF e TGF-β que atuam a jusante ou paralelamente ao VEGF36. Em conjunto, esses mecanismos estabelecem que a monoterapia direcionada a um único ligante angiogênico é insuficiente no CPAD.
O direcionamento de nós metabólicos-angiogênicos representa uma alternativa racional. Inibidores do metabolismo da glicose — incluindo o inibidor da HK2 2-desoxi-D-glicose, o ativador da PKM2 shikonina e o inibidor da LDHA oxamato — demonstraram efeitos antiangiogênicos e antitumorais em linhagens celulares de CPAD e em xenografias82. O direcionamento do eixo PKM2/HIF-1α/VEGF poderia simultaneamente inibir a adaptação metabólica e a angiogênese. O sinalizador de lactato mediado por GPR81 emergiu como um possível alvo parácrino, embora antagonistas específicos ainda permaneçam experimentais; o antagonista putativo 3-hidroxibutirato pode principalmente direcionar o receptor relacionado HCAR2 em vez do GPR81103,104. No metabolismo lipídico, inibidores da COX-2 (por exemplo, celecoxibe) e moduladores da via PPARγ/FABP4 demonstraram efeitos antiangiogênicos em modelos pré-clínicos105, embora ensaios clínicos fase II de celecoxibe com gemcitabina não tenham demonstrado vantagens significativas de sobrevida. Os ácidos graxos poliinsaturados ômega-3 inibem competitivamente a via ω-6 e demonstram propriedades antiangiogênicas em modelos pré-clínicos, embora dados intervencionais em humanos para CPAD sejam escassos.
Dada a plasticidade metabólica do CPAD, regimes em combinação que associam agentes antiangiogênicos à quimioterapia, imunoterapia ou inibidores metabólicos representam o caminho mais promissor. A reprogramação do metabolismo de glicose, aminoácidos e lipídios está estreitamente associada à resistência à quimioterapia, radioterapia e imunoterapia; a inibição combinada da glicólise e da glutaminólise pode bloquear a compensação metabólica. No entanto, até a presente data, nenhuma combinação direcionada ao metabolismo demonstrou eficácia na fase III no CPAD. Em última análise, o desafio translacional central não é a escassez de alvos farmacológicos, mas a incapacidade de identificar prospectivamente qual modo de vascularização — brotamento, intussuscepção, coalescência ou mimetismo — predomina em um tumor individual. Até que painéis de biomarcadores ou assinaturas de imagem possam estratificar pacientes de acordo com seu fenótipo metabólico-angiogênico, estratégias combinadas direcionadas a essa rede permanecerão empíricas e não guiadas por precisão.
Conclusões
Esta revisão descreve o acoplamento recíproco entre o rearranjo metabólico e a angiogênese no adenocarcinoma ductal pancreático (PDAC). Descrevemos quatro modos distintos de neovascularização — angiogênese por brotamento, intussuscepção, coalescência e mimetismo vasculogênico — que conjuntamente produzem uma vasculatura hipovascular, mal perfundida e estruturalmente anômala. No cerne mecanicista, o rearranjo metabólico da glicose por meio do efeito Warburg estabelece um ciclo sinérgico no qual HIF-1α induz tanto o fluxo glicolítico quanto a transcrição pró-angiogênica (VEGF, CTGF, PDGFB), enquanto PKM2 e KRAS mutante integram o estado metabólico com a resposta angiogênica. O metabolismo de aminoácidos e lipídios ainda modula o comportamento endotelial, a polarização imune e a resistência terapêutica por meio de sinais parácrinos, incluindo lactato, LPA/S1P e o eixo FASN-malonil-CoA-mTOR. Esses achados demonstram que a angiogênese no PDAC não é meramente uma resposta à hipóxia, mas um componente integrante do programa adaptativo metabólico do tumor.
A translação clínica permanece limitada por restrições diagnósticas e terapêuticas. Embora estudos na fase de descoberta tenham identificado candidatos a biomarcadores metabólicos e angiogênicos, incluindo VEGF, escores de metabólitos derivados da LDHA e modelos de risco de lipídios-macrófagos, evidências agregadas demonstram que nenhum supera consistentemente o CA19-9 ou oferece valor agregado suficiente para implementação imediata. Terapeuticamente, ensaios clínicos de fase III com monoterapia anti-VEGF falharam uniformemente em melhorar a sobrevida, refletindo a resiliência da vascularização tumoral impulsionada pela ativação de vias compensatórias, mimetismo vasculogênico e adaptação metabólica do estroma. Essas limitações paralelas enfatizam a profunda redundância e plasticidade da rede metabólico-angiogênica, exigindo estratégias integradas em vez de abordagens monoterápicas.
Regimes de combinação — associando agentes antiangiogênicos com quimioterapia, imunoterapia ou inibidores metabólicos — representam o caminho mais promissor. A inibição simultânea da glicólise e da glutaminólise, ou a co-inibição de FASN e mTOR, pode superar a compensação metabólica e interromper a sinalização angiogênica impulsionada por lipídios. As prioridades futuras incluem a estratificação de pacientes guiada por biomarcadores (por exemplo, fenótipos glicolíticos versus dependentes de lipídios), combinações racionais com múltiplos alvos que bloqueiem diferentes modos de vascularização, imagem não invasiva do eixo metabólico-angiogênico e ensaios clínicos rigorosamente desenhados em subpopulações moleculares definidas de CPAP. Em última instância, elucidar a interação metabólico-angiogênica será essencial para transformar o CPAP de uma doença terapeuticamente refratária em uma condição passível de intervenção precisa baseada em mecanismos.
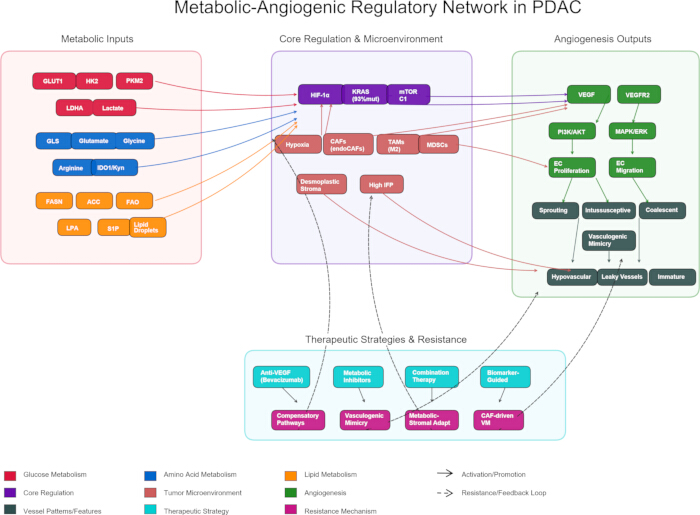
Figura 1: Rede reguladora metabólico-angiogênica no CPAD. Rede reguladora metabólico-angiogênica no CPAD. Visão esquemática do acoplamento metabólico-angiogênico no adenocarcinoma ductal pancreático. (Esquerda) Reprogramação das vias nutricionais: metabolismo da glicose (carmesim), metabolismo de aminoácidos (azul) e metabolismo lipídico (laranja). (Centro) Integração das entradas metabólicas por reguladores centrais (roxo; HIF-1α, KRAS mutante, mTORC1) dentro do microambiente tumoral (salmão), caracterizado por hipóxia, estroma desmoplásico com alta pressão intersticial do fluido (PIF), CAFs (incluindo endoCAFs FAPα⁺CD144⁺), MACs polarizados para o fenótipo M2 e MDSCs. (Direita) Sinalização angiogênica mediada por VEGF-VEGFR2 e quatro modos distintos de vascularização (cinza ardósia escuro): angiogênese por brotamento, intersticial, coalescente e mimetismo vasculogênico (MV). (Inferior) Estratégias terapêuticas atuais (verde-azulado) e mecanismos de resistência (magenta). Setas sólidas indicam ativação; setas tracejadas indicam loops de retroalimentação de resistência. Clique aqui para visualizar uma versão maior desta figura.
| Biomarcador/Painel | Razão Biológica | Nível de Evidência | Principais Limitações | Estágio Traduzido |
| CA19‑993 | Antígeno sialilado Lewis | Estabelecido clinicamente | Especificidade baixa para PDAC em comparação com obstrução biliar | Padrão clínico |
| VEGF sérico (diagnóstico)88 | Ativação do eixo HIF‑1α/VEGF | Retrospectivo de centro único | Viés de espectro; coorte apenas de casos ressecáveis | Descoberta |
| VEGF sérico (resposta)89 | Marcar farmacodinâmico | Fase I (STARPAC, n=19) | Único braço; sem braço controle | Geração de hipóteses |
| Pontuação LDHA/metabólito90 | Fluxo glicolítico | Retrospectivo; centro único | Sem comparador benigno; coorte pequena | Descoberta |
| Proline‑creatina‑ácido palmítico + CA19‑991 | Integração multi-ômica | Descoberta + pequena validação | Única instituição; n modesto | Validação inicial |
| Modelo de risco de 7 genes (lipídio/macrófago)92 | Interação entre lipídios e sistema imunológico | Bioinformática retrospectiva | Sem coorte prospectiva; efeitos de lote | Descoberta |
Tabela 1: Estrutura escalonada de evidências para biomarcadores metabólico-angiogênicos no CPAD. A tabela estratifica os biomarcadores metabólico-angiogênicos no CPAD conforme o grau de maturidade translacional em três níveis: (i) o padrão clinicamente estabelecido CA19-9; (ii) candidatos em fase inicial, incluindo ensaios séricos de VEGF para diagnóstico e farmacodinâmica e um escore LDHA/metabólito; e (iii) assinaturas em estágio de descoberta, exemplificadas por um painel multimetabólito (prolina--creatina--ácido palmítico mais CA19-9) e um modelo de risco de 7 genes relacionado a lipídios/macrófagos. Um padrão recorrente surge entre os candidatos emergentes: embora a fundamentação biológica seja bem definida, limitações metodológicas — delineamento retrospectivo ou de centro único, ausência de comparadores benignos, coortes pequenas e falta de validação prospectiva — conjuntamente restringem o avanço para além dos estágios de descoberta ou geração inicial de hipóteses.
Divulgações
Os autores declaram não haver interesses financeiros concorrentes.
Agradecimentos
O estudo foi financiado pela plataforma de microfluídica digital para triagem de fármacos baseada em esferoides tridimensionais de células tumorais primárias (FDCT0001/2025/RID).
Referências
- Siegel RL, Giaquinto AN, Jemal A. Cancer statistics, 2024. CA Cancer J Clin. 2024;74(1):12-49.
- Mackay TM, et al. Implementation of Best Practices in Pancreatic Cancer Care in the Netherlands: A Stepped-Wedge Randomized Clinical Trial. JAMA Surg. 2024;159(4):429-37.
- Latenstein AEJ, et al. Effect of centralization and regionalization of pancreatic surgery on resection rates and survival. Br J Surg. 2021;108(7):826-33.
- Kotecha K, et al. Centralization of Pancreaticoduodenectomy: A Systematic Review and Spline Regression Analysis to Recommend Minimum Volume for a Specialist Pancreas Service. Ann Surg. 2024;279(6):953-60.
- Rahib L, Wehner MR, Matrisian LM, Nead KT. Estimated Projection of US Cancer Incidence and Death to 2040. JAMA Netw Open. 2021;4(4):e214708.
- Han B, Zheng R, Zeng H, et al. Cancer incidence and mortality in China, 2022. J Natl Cancer Cent. 2024;4(1):47-53.
- Sung H, Siegel RL, Rosenberg PS, Jemal A. Emerging cancer trends among young adults in the USA: analysis of a population-based cancer registry. Lancet Public Health. 2019;4(3):e137-47.
- Hughes T, et al. The current and future global burden of cancer among adolescents and young adults: a population-based study. Lancet Oncol. 2024;25(12):1614-24.
- Folkman J. Anti-angiogenesis: new concept for therapy of solid tumors. Annals of Surgery, 1972, 175(3): 409-416.
- Hanahan D, Weinberg RA. Hallmarks of cancer: the next generation. Cell. 2011;144(5):646-74.
- Rhodin JA, Fujita H. Capillary growth in the mesentery of normal young rats. Intravital video and electron microscope analyses. J Submicrosc Cytol Pathol. 1989;21(1):1-34.
- Potente M, Gerhardt H, Carmeliet P. Basic and therapeutic aspects of angiogenesis. Cell. 2011;146(6):873-87.
- De Bock K, et al. Role of PFKFB3-driven glycolysis in vessel sprouting. Cell. 2013;154(3):651-63.
- Jakobsson L, et al. Endothelial cells dynamically compete for the tip cell position during angiogenic sprouting. Nat Cell Biol. 2010;12(10):943-53.
- Lu C, et al. An integrative proteotranscriptomics approach reveals new ADAM9 substrates and downstream pathways 2024;25(4):101538.
- Schoors S, et al. Fatty acid carbon is essential for dNTP synthesis in endothelial cells. Nature. 2015;520(7546):192-7.
- Baum O, et al. VEGF-A promotes intussusceptive angiogenesis in the developing chicken chorioallantoic membrane. Microcirculation. 2010;17(6):447-57.
- Djonov V, Baum O, Burri PH. Vascular remodeling by intussusceptive angiogenesis. Cell Tissue Res. 2003;314(1):107-17.
- Pezzella F, Kerbel RS. On coalescent angiogenesis and the remarkable flexibility of blood vessels. Angiogenesis. 2022;25(1):1-3.
- Nitzsche B, et al. Coalescent angiogenesis—evidence for a novel concept of vascular network maturation. Angiogenesis. 2022;25(1):35-45.
- Sun B, Zhang D, Zhao N, Zhao X. Epithelial-to-endothelial transition and cancer stem cells: two cornerstones of vasculogenic mimicry in malignant tumors. Oncotarget. 2017;8(18):30502-10.
- Maniotis AJ, et al. Vascular channel formation by human melanoma cells in vivo and in vitro: vasculogenic mimicry. Am J Pathol. 1999;155(3):739-52.
- Yang JP, et al. Tumor vasculogenic mimicry predicts poor prognosis in cancer patients: a meta-analysis. Angiogenesis. 2016;19(2):191-200.
- Hexige S, et al. Identification of novel vascular projections with cellular trafficking abilities on the microvasculature of pancreatic ductal adenocarcinoma. J Pathol. 2015;236(2):142-54.
- Olive KP, et al. Inhibition of Hedgehog Signaling Enhances Delivery of Chemotherapy in a Mouse Model of Pancreatic Cancer. Science. 2009;324(5933):1457-61.
- Sofuni A, et al. Differential diagnosis of pancreatic tumors using ultrasound contrast imaging. J Gastroenterol. 2005;40(5):518-25.
- Liu W, Yin B, Liang Z-H, Yu Y, Lu N. Computed tomography perfusion imaging evaluation of angiogenesis in patients with pancreatic adenocarcinoma. World J Clin Cases. 2022;10(8):2393-403.
- Rhim AD, et al. Stromal elements act to restrain, rather than support, pancreatic ductal adenocarcinoma. Cancer Cell. 2014;25(6):735-47.
- Jacobetz MA, et al. Hyaluronan impairs vascular function and drug delivery in a mouse model of pancreatic cancer. Gut. 2013;62(1):112-20.
- Provenzano PP, et al. Enzymatic targeting of the stroma ablates physical barriers to treatment of pancreatic ductal adenocarcinoma. Cancer Cell. 2012;21(3):418-29.
- Nguyen NC, Taalab K, Osman MM. Decreased blood flow with increased metabolic activity: a novel sign of pancreatic tumor aggressiveness. Clin Cancer Res. 2010;16(1):367.
- Büchler P, et al. Hypoxia-inducible factor 1 regulates vascular endothelial growth factor expression in human pancreatic cancer. Pancreas. 2003;26(1):56-64.
- Wei D, et al. Stat3 activation regulates the expression of vascular endothelial growth factor and human pancreatic cancer angiogenesis and metastasis. Oncogene. 2003;22(3):319-29.
- Shibaji T, et al. Prognostic significance of HIF-1 alpha overexpression in human pancreatic cancer. Anticancer Res. 2003;23(6C):4721-7.
- Yang J, et al. HIF-2α promotes the formation of vasculogenic mimicry in pancreatic cancer by regulating the binding of Twist1 to the VE-cadherin promoter. Oncotarget. 2017;8(29):47801-15.
- Neesse A, Algül H, Tuveson DA, Gress TM. Stromal biology and therapy in pancreatic cancer: a changing paradigm. Gut. 2015;64(9):1476-84.
- Wang W-Q, et al. Intratumoral α-SMA enhances the prognostic potency of CD34 associated with maintenance of microvessel integrity in hepatocellular carcinoma and pancreatic cancer. PLoS One. 2013;8(8):e71189.
- Koong AC, et al. Pancreatic tumors show high levels of hypoxia. Int J Radiat Oncol Biol Phys. 2000;48(4):919-22.
- Hu Q, et al. UHRF1 promotes aerobic glycolysis and proliferation via suppression of SIRT4 in pancreatic cancer. Cancer Lett. 2019;452:226-36.
- Raz S, et al. Severe hypoxia induces complete antifolate resistance in carcinoma cells due to cell cycle arrest. Cell Death Dis. 2014;5(2):e1067.
- Parks SK, Mazure NM, Counillon L, Pouysségur J. Hypoxia promotes tumor cell survival in acidic conditions by preserving ATP levels. J Cell Physiol. 2013;228(9):1854-62.
- Jokilehto T, Jaakkola PM. The role of HIF prolyl hydroxylases in tumour growth. J Cell Mol Med. 2010;14(4):758-70.
- Uchida T, et al. Prolonged hypoxia differentially regulates hypoxia-inducible factor (HIF)-1alpha and HIF-2alpha expression in lung epithelial cells: implication of natural antisense HIF-1alpha. J Biol Chem. 2004;279(15):14871-8.
- Bristow RG, Hill RP. Hypoxia and metabolism. Hypoxia, DNA repair and genetic instability. Nat Rev Cancer. 2008;8(3):180-92.
- He G, Jiang Y, Zhang B, Wu G. The effect of HIF-1α on glucose metabolism, growth and apoptosis of pancreatic cancerous cells. Asia Pac J Clin Nutr. 2014;23(1):174-80.
- Tung K-H, et al. CHC promotes tumor growth and angiogenesis through regulation of HIF-1α and VEGF signaling. Cancer Lett. 2013;331(1):58-67.
- Kitamoto S, et al. MUC1 enhances hypoxia-driven angiogenesis through the regulation of multiple proangiogenic factors. Oncogene. 2013;32(39):4614-21.
- Shukla SK, et al. MUC1 and HIF-1alpha Signaling Crosstalk Induces Anabolic Glucose Metabolism to Impart Gemcitabine Resistance to Pancreatic Cancer. Cancer Cell. 2017;32(1):71-87.e7.
- Shi S, et al. VEGF Promotes Glycolysis in Pancreatic Cancer via HIF1α Up-Regulation. Curr Mol Med. 2016;16(4):394-403.
- Logsdon DP, et al. Blocking HIF signaling via novel inhibitors of CA9 and APE1/Ref-1 dramatically affects pancreatic cancer cell survival. Sci Rep. 2018;8:13759.
- Logsdon DP, et al. Regulation of HIF1α under Hypoxia by APE1/Ref-1 Impacts CA9 Expression: Dual Targeting in Patient-Derived 3D Pancreatic Cancer Models. Mol Cancer Ther. 2016;15(11):2722-32.
- Azoitei N, et al. PKM2 promotes tumor angiogenesis by regulating HIF-1α through NF-κB activation. Mol Cancer. 2016;15(1):3.
- Chang LH, Pan SL, Lai CY, Tsai AC, Teng CM. Activated PAR-2 regulates pancreatic cancer progression through ILK/HIF-α-induced TGF-α expression and MEK/VEGF-A-mediated angiogenesis. Am J Pathol. 2013;183(2):566-75.
- McDonald PC, et al. Regulation of pH by Carbonic Anhydrase 9 Mediates Survival of Pancreatic Cancer Cells With Activated KRAS in Response to Hypoxia. Gastroenterology. 2019;157(3):823-37.
- Yang J, et al. β-Pentagalloyl-Glucose Sabotages Pancreatic Cancer Cells and Ameliorates Cachexia in Tumor-Bearing Mice. 2019;47(3):675-689
- Ren H, Zhao T, Sun J. The CX3CL1/CX3CR1 reprograms glucose metabolism through HIF-1 pathway in pancreatic adenocarcinoma[J/OL]. Journal of Cellular Biochemistry, 2013, 114(11): 2603-2611.
- Li X, et al. Extracellular lumican inhibits pancreatic cancer cell growth and is associated with prolonged survival after surgery. 2014 Dec 15;20(24):6529-40.
- Maruggi M, et al. Absence of HIF1A Leads to Glycogen Accumulation and an Inflammatory Response That Enables Pancreatic Tumor Growth. Cancer Res. 2019;79(22):5839-48.
- Kim B, Li J, Jang C, Arany Z. Glutamine fuels proliferation but not migration of endothelial cells. EMBO J. 2017;36(16):2321-33.
- Kay EJ, et al. Cancer-associated fibroblasts require proline synthesis by PYCR1 for the deposition of pro-tumorigenic extracellular matrix. Nat Metab. 2022;4(6):693-710.
- Guo D, et al. Vascular endothelial growth factor signaling requires glycine to promote angiogenesis. Sci Rep. 2017;7(1):14749.
- Rose ML, Madren J, Bunzendahl H, Thurman RG. Dietary glycine inhibits the growth of B16 melanoma tumors in mice. Carcinogenesis. 1999;20(5):793-8.
- Morris SM. Recent advances in arginine metabolism: roles and regulation of the arginases. Br J Pharmacol. 2009;157(6):922-30.
- Vandekeere S, et al. Serine Synthesis via PHGDH Is Essential for Heme Production in Endothelial Cells. Cell Metab. 2018;28(4):573-587.e13.
- Cantelmo AR, et al. Inhibition of the Glycolytic Activator PFKFB3 in Endothelium Induces Tumor Vessel Normalization, Impairs Metastasis, and Improves Chemotherapy. Cancer Cell. 2016;30(6):968-85.
- Mishra RC, et al. L-Serine lowers while glycine increases blood pressure in chronic L-NAME-treated and spontaneously hypertensive rats. J Hypertens. 2008;26(12):2339-48.
- Taylor MW, Feng GS. Relationship between interferon-gamma, indoleamine 2,3-dioxygenase, and tryptophan catabolism. FASEB J. 1991;5(11):2516-22.
- Dey S, et al. IDO1 Signaling through GCN2 in a Subpopulation of Gr-1+ Cells Shifts the IFNγ/IL6 Balance to Promote Neovascularization. Cancer Immunol Res. 2021;9(5):514-28.
- Vander Heiden MG, DeBerardinis RJ. Understanding the Intersections between Metabolism and Cancer Biology. Cell. 2017;168(4):657-69.
- Bruning U, et al. Impairment of Angiogenesis by Fatty Acid Synthase Inhibition Involves mTOR Malonylation. Cell Metab. 2018;28(6):866-880.e15.
- Carracedo A, Cantley LC, Pandolfi PP. Cancer metabolism: fatty acid oxidation in the limelight. Nat Rev Cancer. 2013;13(4):227-32.
- Mills GB, Moolenaar WH. The emerging role of lysophosphatidic acid in cancer. Nat Rev Cancer. 2003;3(8):582-91.
- Chandel NS, et al. Reactive oxygen species generated at mitochondrial complex III stabilize hypoxia-inducible factor-1alpha during hypoxia: a mechanism of O2 sensing. J Biol Chem. 2000;275(33):25130-8.
- Walther TC, Farese RV. Lipid droplets and cellular lipid metabolism. Annu Rev Biochem. 2012;81:687-714.
- Gabrilovich DI, Nagaraj S. Myeloid-derived suppressor cells as regulators of the immune system. Nat Rev Immunol. 2009;9(3):162-74.
- Yang J, et al. The enhancement of glycolysis regulates pancreatic cancer metastasis. Cell Mol Life Sci. 2019;77(2):305-21.
- Sanmarco LM, et al. Lactate limits CNS autoimmunity by stabilizing HIF-1α in dendritic cells. Nature. 2023;620(7975):881-9.
- Brown TP, et al. The lactate receptor GPR81 promotes breast cancer growth via a paracrine mechanism involving antigen-presenting cells in the tumor microenvironment. Oncogene 2020bz;39:3292-304.
- Hoque R, et al. Lactate Reduces Organ Injury in Toll-like Receptor- and Inflammasome-Mediated Inflammation via GPR81-mediated Suppression of Innate Immunity. Gastroenterology 2014ca;146:1763-74.
- Yang X, et al. Lactate-Modulated Immunosuppression of Myeloid-Derived Suppressor Cells Contributes to the Radioresistance of Pancreatic Cancer. Cancer Immunol Res 2020cb;8:1440-51.
- Yang L, et al. Lactate Metabolism: The String-Puller for the Development of Pancreatic Cancer. Biology (Basel). 2025;14(9):1213.
- Gao F, et al. Lactate metabolism reprogramming in PDAC: Potential for tumor therapy. Biochim Biophys Acta Rev Cancer. 2025;1880:189373.
- Chen Q, et al. Targeting lactylation and the STAT3/CCL2 axis to overcome immunotherapy resistance in pancreatic ductal adenocarcinoma. J Clin Invest. 2025;135(7):e191422.
- Spencer L, et al. The effect of omega-3 FAs on tumour angiogenesis and their therapeutic potential. Eur J Cancer. 2009;45(14):2077-86.
- Eibl G, et al. PGE2 is generated by specific COX-2 activity and increases VEGF production in COX-2-expressing human pancreatic cancer cells. Biochem Biophys Res Commun. 2003;306(4):887-97.
- Wang M, et al. FABP4 in lipid metabolism and the tumor microenvironment: mechanisms and therapeutic potential. Lipids Health Dis. 2025;25(1):29.
- Gardner GL, Stuart JA. Tumor microenvironment-like conditions alter pancreatic cancer cell metabolism and behavior. Am J Physiol Cell Physiol. 2024;327(11):C959-78.
- Wiewiora M, et al. Evaluations of the combined use of blood- and tissue-based protein biomarkers for pancreatic cancer. Clin Hemorheol Microcirc. 2024;86(4):383-93.
- Hughes CS, Blyuss O, Kocher HM. Plasma vascular endothelial growth factor levels are a potential therapy-response biomarker for pancreatic cancer. Front Oncol. 2025;15:1672385.
- Jiang W, et al. Aberrant lactate dehydrogenase A signaling contributes metabolic signatures in pancreatic cancer. Ann Transl Med. 2021;9(4):358.
- Zhao R, et al. Biomarkers for pancreatic cancer based on tissue and serum metabolomics analysis in a multicenter study. Cancer Med. 2023;12(5):5158-71.
- Wu L, et al. Identification of prognostic and therapeutic biomarkers associated with macrophage and lipid metabolism in pancreatic cancer. Sci Rep. 2025;15:14584.
- Ballehaninna UK, Chamberlain RS. The clinical utility of serum CA 19-9 in the diagnosis, prognosis and management of pancreatic adenocarcinoma: An evidence based appraisal. J Gastrointest Oncol 2012da;3:105-19.
- Dutta P, et al. Combining Hyperpolarized Real-Time Metabolic Imaging and NMR Spectroscopy to Identify Metabolic Biomarkers in Pancreatic Cancer. J Proteome Res. 2019;18(7):2826-34.
- Shakerian N, et al. Current Understanding of Therapeutic and Diagnostic Applications of Exosomes in Pancreatic Cancer. Pancreas. 2025;54(3):e255-67.
- Grobbelaar C, Steenkamp V, Mabeta P. Vascular Endothelial Growth Factor Receptors in the Vascularization of Pancreatic Tumors: Implications for Prognosis and Therapy. Curr Issues Mol Biol. 2025;47(3):179.
- Kindler HL, et al. Gemcitabine Plus Bevacizumab Compared With Gemcitabine Plus Placebo in Patients With Advanced Pancreatic Cancer: Phase III Trial of the Cancer and Leukemia Group B (CALGB 80303). J Clin Oncol. 2010;28(22):3617-22.
- Van Cutsem E, et al. Phase III trial of bevacizumab in combination with gemcitabine and erlotinib in patients with metastatic pancreatic cancer. J Clin Oncol. 2009;27(15):2231-7.
- Rougier P, et al. Randomised, placebo-controlled, double-blind, parallel-group phase III study evaluating aflibercept in patients receiving first-line treatment with gemcitabine for metastatic pancreatic cancer. Eur J Cancer. 2013;49(12):2633-42.
- Spano J-P, et al. Efficacy of gemcitabine plus axitinib compared with gemcitabine alone in patients with advanced pancreatic cancer: an open-label randomised phase II study. Lancet. 2008;371(9630):2101-8.
- Bergers G, Hanahan D. Modes of resistance to anti-angiogenic therapy. Nat Rev Cancer. 2008;8(8):592-603.
- Sun X, et al. Endothelial-like cancer-associated fibroblasts facilitate pancreatic cancer metastasis via vasculogenic mimicry and paracrine signalling. Gut. 2025;74(9):1437-51.
- Liu C, et al. Lactate inhibits lipolysis in fat cells through activation of an orphan G-protein-coupled receptor, GPR81. J Biol Chem 2009cx;284:2811-22.
- Roland CL, et al. Cell surface lactate receptor GPR81 is crucial for cancer cell survival. Cancer Res. 2014;74(18):5301-10.
- Swierczynski J, Hebanowska A, Sledzinski T. Role of abnormal lipid metabolism in development, progression, diagnosis and therapy of pancreatic cancer. World J Gastroenterol. 2014;20(9):2279-303.