Esta revisão sintetiza evidências sobre o controle da qualidade mitocondrial (biorreparação, dinâmica e mitofagia) em todas as fases da espermatogênese, relacionando alterações metabólicas e remodelamento estrutural à infertilidade masculina e identificando lacunas metodológicas para orientar pesquisas futuras.
Artigo de revisão
Controle de Qualidade Mitocondrial: Um Guardião da Espermatogênese
Neste artigo
Resumo
Resumo
A infertilidade masculina está aumentando mundialmente. A espermatogênese exige grande gasto energético e está estritamente associada ao controle da qualidade mitocondrial (MQC), incluindo biogênese, dinâmica de fusão–fissão e mitofagia. Aqui, sintetizamos as evidências atuais em diferentes estágios de desenvolvimento das células germinativas, destacando as mudanças específicas de cada estágio, desde a produção de ATP apoiada pela glicólise até o metabolismo dominado pela fosforilação oxidativa (OXPHOS) e a remodelação da arquitetura mitocondrial na bainha da peça intermediária. Resumimos dados genéticos e funcionais que implicam OPA1/MFN1-2 na fusão das membranas interna e externa, DRP1/FIS1/MFF na fissão e na organização da bainha, bem como os papéis da mitofagia dependente e independente da PINK1–Parkin no controle da qualidade mitocondrial, reconhecendo que a remoção do citoplasma e a manutenção do acrossoma durante a espermiogênese podem envolver autofagia geral, e não especificamente mitofagia. A disfunção mitocondrial — excesso de espécies reativas de oxigênio (ROS), colapso do potencial da membrana mitocondrial (MMP), dinâmica desregulada ou mitofagia defeituosa — prejudica a espermatogênese e a função espermática. Também identificamos lacunas metodológicas que limitam a translação, particularmente a falta de fenotipagem padronizada e evidências genéticas em humanos. Esclarecer a causalidade e a farmacologia do MQC pode apoiar pesquisas futuras em diagnóstico ou terapia para infertilidade masculina.
Introdução
A qualidade dos espermatozoides está diminuindo em todo o mundo, e a incidência de infertilidade masculina causada por qualidade espermática anormal está aumentando1. Uma meta-análise recente mostrou que entre 1973 e 2011, as contagens de espermatozoides entre homens da América do Norte, Europa, Austrália e Nova Zelândia diminuíram em 50–60%2, e essa diminuição se acelerou desde 20003. A queda acelerada na qualidade dos espermatozoides tem sido relatada em todo o mundo2,3,4,5,6. As razões para essa diminuição exigem estudos adicionais e medidas direcionadas para proteger a fertilidade masculina.
A espermatogênese ocorre nos túbulos seminíferos dos testículos. Trata-se de um processo ondulatório que envolve combinações específicas de células espermatogênicas ao longo do eixo longitudinal dos túbulos seminíferos, levando, em última instância, as células-tronco espermatogoniais (CTEs) a proliferar e se diferenciar em espermatozoides7. A espermatogênese em mamíferos é um dos processos de diferenciação mais complexos e demorados da biologia. Em humanos, um ciclo completo de espermatogênese dura de 64 a 74 dias, sendo que cada ciclo do epitélio seminífero dura 16 dias. Esse processo intricado envolve mudanças significativas na forma, quantidade e distribuição das mitocôndrias8.
O controle de qualidade mitocondrial (MQC) — os processos coordenados de biogênese mitocondrial, fusão, fissão e mitofagia seletiva — mantém a integridade do organoide sob demandas bioenergéticas variáveis8,9. Nos testículos, o MQC é específico por estágio e apoia a transição dos espermatogônias proliferativos para a meiose e espermiogênese, culminando na montagem de uma bainha mitocondrial densamente compactada na peça intermediária do espermatozoide9. Figura 1 apresenta o mecanismo do MQC durante a espermatogênese. A desregulação dos componentes do MQC pode levar a uma espermatogênese defeituosa e subfertilidade em organismos modelo e humanos. Esta revisão integra as atuais descobertas mecanicistas e delinea oportunidades translacionais.
Revisão e perspetiva
espermatogênese e metabolismo energético mitocondrial
A espermatogênese compreende três estágios sequenciais: proliferação mitótica, meiose e espermiogênese, envolvendo a proliferação dos espermatogônios, sua diferenciação em espermatócitos, divisão meiótica, maturação dos espermátides e espermiação para a luz dos túbulos seminíferos. Os espermatogônios são classificados em tipos reservas e renovadores. Alguns espermatogônios são mantidos como células-tronco, enquanto outros participam da espermatogênese por meio da diferenciação. Além disso, alguns sofrem morte celular programada, como a apoptose. Os espermatócitos primários diplóides realizam duas divisões meióticas para se diferenciarem em espermátides haplóides. Durante a espermiogênese, os espermátides redondos deixam de se dividir e se transformam em espermátides altamente alongados, que eventualmente se desenvolvem em espermatozoides maduros.
A espermatogênese requer interações coordenadas entre células germinativas (incluindo espermatogônias, espermatócitos, espermátides e espermatozoides) e células de Sertoli de suporte, bem como a manutenção da integridade da barreira hemato-testicular10,11. A barreira hemato-testicular, formada por junções apertadas entre células de Sertoli adjacentes, divide o epitélio seminífero em compartimentos basal e adluminal, criando e mantendo assim um microambiente especializado essencial para o desenvolvimento das células germinativas11,12. Consequentemente, a espermatogênese — desde as células-tronco espermatogoniais até os espermatozoides maduros — ocorre dentro desse microambiente testicular único. O processo de produção de espermatozoides depende fortemente da função mitocondrial13. Como centro do metabolismo energético nas células eucarióticas, as mitocôndrias são consideradas essenciais para a produção de espermatozoides. A geração de espermatozoides é altamente dependente do suprimento energético e das funções de sinalização das mitocôndrias. Nas células germinativas em desenvolvimento, as mitocôndrias não apenas fornecem ATP essencial para a espermatogênese, mas também influenciam o processo ao participar da sinalização intracelular, regulação do ciclo celular e morte celular programada13. Nas células de Leydig, as mitocôndrias desempenham um papel crucial na produção de hormônios esteroides, e a síntese mitocondrial de ATP é necessária para a produção de testosterona nessas células intersticiais do testículo14. Além disso, por serem a única organela com DNA independente, o DNA mitocondrial está intimamente relacionado à qualidade espermática. Portanto, compreender o estado mitocondrial e seus mecanismos regulatórios é importante para revelar o processo de espermatogênese e manter a fertilidade masculina.
O metabolismo energético é crucial para a espermatogênese, processo que requer uma quantidade significativa de ATP. As duas vias principais para a produção de ATP são a fosforilação oxidativa mitocondrial (OXPHOS) e a glicólise. O fornecimento de ATP depende do estágio; enquanto a OXPHOS torna-se cada vez mais importante durante a meiose e a formação do peça intermediária, a glicólise contribui substancialmente para a produção de ATP, particularmente nos espermatozoides maduros. A glicólise também apoia a maturação espermática, a motilidade e a passagem pelo trato reprodutivo feminino, fornecendo um suprimento energético flexível e rápido.
No entanto, em espermatogônias e espermatócitos iniciais, as mitocôndrias são relativamente pequenas e apresentam atividade limitada de OXPHOS. À medida que a espermatogênese progride para estágios posteriores, como espermatócitos, espermátides e espermatozoides, as mitocôndrias passam por remodelação e sua atividade de OXPHOS torna-se mais espacialmente concentrada e eficiente. Além disso, devido à barreira hemato-testicular, os substratos disponíveis variam entre os estágios. As espermatogônias, localizadas no compartimento basal do epitélio seminífero, podem acessar a glicose circulante e produzir energia por meio da glicólise. Em contraste, os espermatócitos e espermátides no compartimento adluminal estão separados do sangue e do interstício pela barreira hemato-testicular e dependem das células de Sertoli para absorver glicose por meio de transportadores de glicose (GLUTs), convertendo-a em piruvato via glicólise. O piruvato é então convertido em lactato pela lactato desidrogenase (LDH). O lactato é transportado para os espermatócitos por meio de transportadores de monocarboxilatos (MCTs), onde é convertido novamente em piruvato pela LDH, que pode então ser convertido em acetil-CoA pela piruvato desidrogenase (PDH) para entrada no ciclo do ácido tricarboxílico (TCA). Por fim, o piruvato é transportado para as mitocôndrias por meio do transportador mitocondrial de piruvato para promover o OXPHOS.
Prejuízo da espermatogênese pela disfunção mitocondrial
Durante a espermiogênese, espermatozoides maduros são liberados das células de Sertoli para a luz dos túbulos seminíferos, seguido pelo transporte até o epidídimo. Esse processo requer um suprimento energético substancial proveniente das mitocôndrias. Quando a função mitocondrial está comprometida, a espermatogênese é prejudicada. Os principais sinais de disfunção mitocondrial incluem produção excessiva de espécies reativas de oxigênio (ROS), alterações no potencial da membrana mitocondrial (MMP), desequilíbrio nas dinâmicas de fissão e fusão mitocondriais, biogênese mitocondrial prejudicada, mitofagia defeituosa e perturbação da homeostase de íons cálcio.
O processo pelo qual as mitocôndrias produzem ATP por meio da OXPHOS também é acompanhado pela produção de ESP. As mitocôndrias são a principal fonte de ESP, que são geradas principalmente nos complexos respiratórios I e III da cadeia transportadora de elétrons mitocondrial (ETC)15. Em condições fisiológicas normais, níveis adequados de ESP estão envolvidos em vias de sinalização que regulam a espermatogênese. No entanto, o excesso de ESP pode levar a um desequilíbrio redox, causando estresse oxidativo e prejudicando a espermatogênese. Portanto, o equilíbrio entre o metabolismo energético mitocondrial e a produção de ESP é um fator chave para garantir a espermatogênese.
A OXPHOS mitocondrial eficiente requer a entrada de substratos respiratórios de carbono (por exemplo, piruvato, ácidos graxos) através da membrana mitocondrial externa até o espaço intermembranar. Esses substratos são então transportados para a matriz por meio de carreadores localizados na membrana mitocondrial interna, onde participam do ciclo do ácido cítrico (TCA). No ciclo TCA, esses substratos de carbono sofrem degradação oxidativa, produzindo nicotinamida adenina dinucleotídeo (NADH) e flavina adenina dinucleotídeo (FADH2). Esses produtos doam elétrons à cadeia transportadora de elétrons (ETC) e impulsionam a OXPHOS para a síntese de ATP a partir de ADP e fosfato inorgânico (Pi). Interrupções no ciclo TCA ou nas vias da ETC podem prejudicar a produção de espermatozoides16. O potencial da membrana mitocondrial (MMP), como indicador do estado energético celular e da função mitocondrial, tem sido associado à motilidade espermática17 e à capacidade geral de fertilização18.
Sob estresse mitocondrial, a fissão pode segregar segmentos mitocondriais danificados, enquanto a fusão pode promover a mistura de conteúdos e complementação funcional. Mitocôndrias danificadas ou em excesso podem então ser degradadas e recicladas por meio da mitofagia. Juntos, o biogênese mitocondrial, fissão, fusão e mitofagia constituem o controle de qualidade mitocondrial (MQC), que sustenta a função e remodelação mitocondrial19.
A espermatogênese envolve a diferenciação dos espermatogônios em espermatozoides, o que não só resulta em mudanças significativas na morfologia celular, mas também exige o suporte e regulação do metabolismo energético. Como centrais energéticas das células, as mitocôndrias desempenham um papel crucial em aspectos fundamentais da espermatogênese, incluindo o fornecimento de energia, a transdução de sinais e a morte celular programada. Durante a espermatogênese, as demandas metabólicas das células germinativas variam em diferentes estágios do desenvolvimento. O número e a morfologia mitocondrial sofrem alterações significativas ao longo da espermatogênese. Durante a formação dos espermatozoides, muitas mitocôndrias são descartadas, enquanto as mitocôndrias remanescentes são organizadas na peça intermediária do espermatozoide, formando uma bainha mitocondrial ao redor do axonema e das estruturas associadas ao flagelo. Assim, durante a espermatogênese, as mitocôndrias nas diversas células testiculares estão em constante processo de fusão e fissão, exigindo um mecanismo eficiente e preciso de controle da qualidade mitocondrial (MQC) para garantir seu funcionamento normal e sustentar as elevadas demandas energéticas do processo. À medida que os espermatozoides são produzidos, tanto a morfologia quanto o número de mitocôndrias sofrem mudanças significativas, e o MQC desempenha um papel fundamental nesse processo. As principais proteínas-alvo envolvidas no MQC estão listadas na Tabela 1.
Espermiogênese e dinâmica mitocondrial
As mitocôndrias são organelas altamente dinâmicas cuja morfologia, tamanho e distribuição subcelular são continuamente remodeladas por meio da fusão e fissão coordenadas — um processo denominado coletivamente dinâmica mitocondrial. Em condições fisiológicas normais, fusão e fissão existem em um equilíbrio dinâmico que mantém a homeostase mitocondrial, facilita a complementação funcional e garante a herança mitocondrial adequada durante a divisão celular. A interrupção desse equilíbrio — seja por ablação genética, defeitos na modificação pós-traducional ou estresse patológico — prejudica a função mitocondrial, compromete a produção de energia e, em última instância, dificulta a espermatogênese. A regulação precisa da dinâmica mitocondrial é particularmente crítica nas células germinativas, pois a espermatogênese envolve mudanças metabólicas drásticas e remodelamento morfológico extenso que exigem adaptação específica por estágio da arquitetura e atividade mitocondrial.
A fusão mitocondrial é mediada por MFN1 e MFN2 na membrana mitocondrial externa e por OPA1 na membrana interna, facilitando a mistura de conteúdos, a complementação funcional e a manutenção da integridade do DNA mitocondrial. A fusão não é meramente uma resposta defensiva, mas um mecanismo dependente do contexto que sustenta a herança mitocondrial e a adaptação metabólica durante a diferenciação das células germinativas. Durante a diferenciação dos espermatogônios, a expressão de MFN aumenta, e a perda de MFN1 ou MFN2 leva à oxidação do DNA e à apoptose em espermatogônios e espermatócitos, resultando em infertilidade masculina20,21. Mutações em MFN1 causam atrofia testicular em camundongos, com redução acentuada de espermatócitos e falha na produção de espermatozoides, enquanto os espermatogônios indiferenciados permanecem inalterados, sugerindo que MFN1 é necessário para a progressão meiótica20. MFN2, em contraste, regula tanto as funções mitocondriais quanto do retículo endoplasmático, desempenhando um papel distinto na espermatogênese21.
A fissão mitocondrial é coordenada pela DRP1, que é recrutada para a membrana mitocondrial externa por meio de proteínas adaptadoras, incluindo FIS1, MFF, MID49 e MID51. Após o recrutamento, a DRP1 se monta em oligômeros com formato de anel que constreem e dividem as mitocôndrias de maneira dependente de GTP. O processo envolve três etapas principais: ativação da DRP1 por fosforilação, recrutamento para a membrana externa por meio de interações com FIS1, MFF, MID49 e MID51, e montagem em uma estrutura em anel que envolve e constri as mitocôndrias, consumindo GTP e produzindo dois organelos separados. A fissão não é meramente um mecanismo para a remoção de mitocôndrias despolarizadas ou para atender a demandas energéticas aumentadas; ao contrário, trata-se de um processo coordenado que regula a distribuição mitocondrial, a segregação de componentes danificados, a herança durante a divisão celular e a remodelação da arquitetura mitocondrial. Camundongos deficientes em DRP1 são letais em fase embrionária22,23; camundongos deficientes em MFF exibem fertilidade reduzida e contagem baixa de espermatozoides, fornecendo um modelo valioso para o estudo da fissão mitocondrial no desenvolvimento das células germinativas masculinas24. A fissão mitocondrial é essencial para a formação adequada da bainha mitocondrial durante a espermiogênese.
A espermatogênese exige grande gasto energético, dependendo principalmente da glicólise nas espermatogônias e da OXPHOS nas espermatócitos e espermátides. A OXPHOS é particularmente crítica durante a meiose, e sua eficiência depende da dinâmica mitocondrial intacta25,26. Após a meiose, MFF e outras proteínas de fissão regulam a fissão mitocondrial e participam da formação da bainha mitocondrial do espermatozoide24. Durante a espermiogênese, algumas mitocôndrias são seletivamente retidas e remodeladas em uma bainha, enquanto mitocôndrias em excesso e componentes citoplasmáticos são eliminados por autofagia27. Proteínas como OPA1, DRP1 e MFF podem representar alvos promissores para pesquisas voltadas ao aprimoramento da função espermática, mas sua relevância terapêutica requer validação adicional. A investigação mais aprofundada do MQC na espermatogênese humana pode facilitar pesquisas futuras em diagnóstico ou terapia para infertilidade masculina.
espermatogênese e autofagia mitocondrial
A mitofagia desempenha um papel crítico na espermatogênese28. A mitofagia envolve principalmente o englobamento de mitocôndrias danificadas por autofagossomos. Os autofagossomos que contêm mitocôndrias danificadas posteriormente se fundem com lisossomos, e as mitocôndrias são degradadas por meio da ação lisossomal, eliminando assim as mitocôndrias danificadas e garantindo o controle de qualidade. A via clássica da autofagia mitocondrial é a via PINK1/Parkin, e também já foram descritas vias independentes de PINK1/Parkin29.
A autofagia ajuda a manter a integridade do acrossoma, a polarização dos espermátides e a degradação dos componentes citoplasmáticos durante a espermatogênese, embora esses processos reflitam uma autofagia geral e não uma mitofagia seletiva, a menos que a eliminação mitocondrial seja especificamente demonstrada. Estudos descobriram que a mitofagia está intimamente relacionada à dinâmica mitocondrial, e a fissão mitocondrial pode facilitar a mitofagia para remover mitocôndrias em excesso ou danificadas30. A FIS1, embora seja uma proteína de fissão mitocondrial, também está envolvida na mitofagia durante a espermatogênese31. A RAB7A participa da formação do mitofagossomo e da maturação do autofagossomo32. A FIS1 interage com a proteína ativadora de GTPase mitocondrial TBC1D1533,34. A TBC1D15 regula a atividade da RAB7A, que está envolvida na fusão de vesículas e lisossomos e na maturação dos autofagossomos34,35. Quando a FIS1 é inativada, a RAB7A pode permanecer ativa na superfície mitocondrial, levando a um crescimento e tubulação desregulados da membrana do autofagossomo; o acúmulo de LC3 pode ser observado por microscopia óptica35. A mitofagia também pode ocorrer independentemente da fissão mitocondrial mediada por DRP1, portanto a fissão não deve ser considerada obrigatória para a eliminação mitocondrial35.
Durante a espermiogênese, os espermátides são despojados de componentes celulares em excesso, e estudos descobriram que os autofagossomos são mais abundantes nos espermátides36. O gene essencial de autofagia Atg7 está associado à polarização dos espermátides e à remoção do citoplasma durante a espermatogênese; no entanto, os tipos precoces de células germinativas parecem ser menos afetados nesse contexto27,36. Além disso, a mitofagia é aumentada em modelos testiculares lesados, incluindo células de Leydig29, células-tronco/progenitoras espermatogoniais37,38, células de Sertoli39 e testículo imaturo de rato exposto a agentes tóxicos40. Na espermatogênese, a autofagia mitocondrial está ligada à apoptose e a outros modos de morte celular programada, afetando assim a produção de espermatozoides no testículo41,42.
Contexto bibliométrico
Foi realizada uma análise bibliométrica focada da Coleção Principal do Web of Science de 1970 a 2023 utilizando os termos de busca “espermatogênese” e “MQC”; estudos não mamíferos e registros irrelevantes foram excluídos, e o VOSviewer 1.6.20 foi utilizado para visualização43. Após triagem, foram mantidos 1.019 artigos de 1.217 instituições em 66 países e 5.705 autores. As publicações aumentaram de forma constante (Figura 2A). Os Estados Unidos e a China contribuíram com o maior número de artigos (212 e 196, respectivamente), e os Estados Unidos tiveram o maior número de citações (12.295; Figura 2B). As redes institucionais e de autores são resumidas nas Figuras 2C,D.
A análise de coocorrência de palavras-chave (frequência > 7) indicou ênfase na motilidade espermática, estresse oxidativo, apoptose/morte celular programada, dano ao DNA, peroxidação lipídica e qualidade espermática (Figura 3). Esses padrões bibliométricos complementam, mas não substituem, a revisão mecanicista: a área concentra-se nos desfechos de dano oxidativo e motilidade, enquanto evidências humanas diretas associando vias de CMQ específicas a estágios com infertilidade ainda são limitadas.
Conclusões
Com o avanço da biotecnologia, a pesquisa sobre a fertilidade masculina deslocou-se da morfologia descritiva e da motilidade para os mecanismos moleculares e celulares da espermatogênese. As mitocôndrias são centrais nesse processo: geram ATP, apoiam a remodelação durante a meiose e a espermiogênese e são altamente sensíveis a agressões oxidativas e ambientais44. Para manter a funcionalidade sob tal estresse, as mitocôndrias dependem do MQC, que integra biogênese, dinâmica de fusão–fissão e mitofagia. A interrupção dessas vias prejudica o desenvolvimento das células germinativas, a arquitetura da peça intermediária dos espermatozoides e, em última instância, a fertilidade. Em conclusão, as evidências disponíveis apoiam um modelo específico por estágio, no qual a dinâmica mitocondrial e a mitofagia ajudam a coordenar a produção de energia, a remodelação de organelas e a remoção de componentes danificados durante a espermatogênese. No entanto, evidências diretas em humanos e fenotipagem padronizada ainda são limitadas; portanto, as proteínas relacionadas ao MQC devem ser consideradas alvos candidatos para pesquisa, que exigem validação adicional, e não alvos terapêuticos estabelecidos.
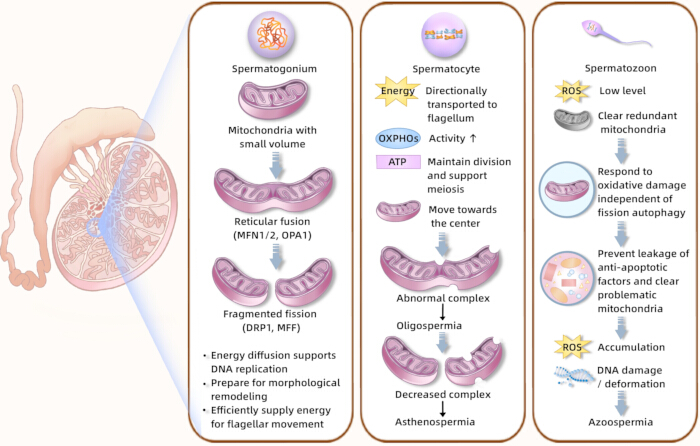
Figura 1. O mecanismo de controle de qualidade mitocondrial durante a espermatogênese. Metabolismo energético e remodelamento mitocondrial resolvidos por estágio na espermatogênese. O esquema mostra o acoplamento metabólico entre células de Sertoli e células germinativas, transportadores de glicose, transportadores de monocarboxilato, produção de ATP, a transição do metabolismo apoiado pela glicólise para a fosforilação oxidativa durante a meiose e a espermiogênese, e os danos mitocondriais relacionados às espécies reativas de oxigênio. Abreviações: ATP = trifosfato de adenosina; OXPHOS = fosforilação oxidativa; ROS = espécies reativas de oxigênio. Clique aqui para visualizar uma versão maior desta figura.
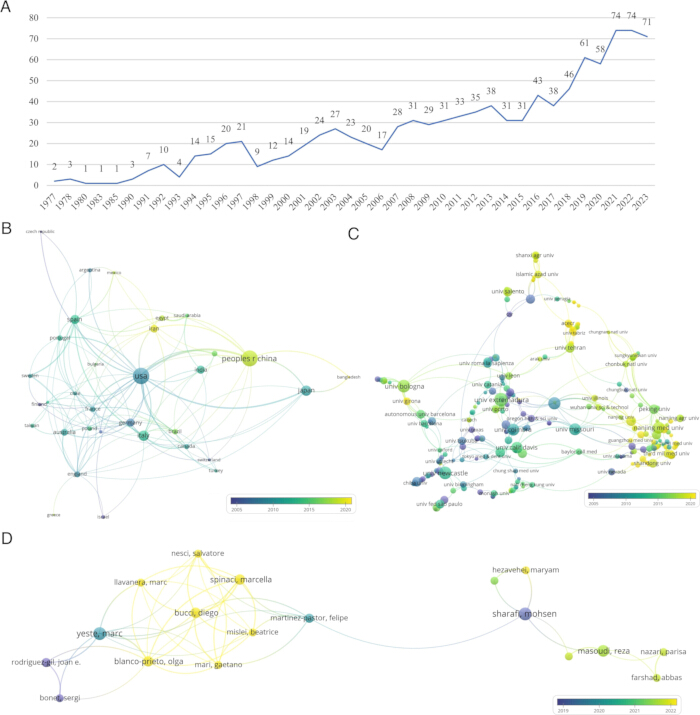
Figura 2. Análise nacional, institucional, de publicações por autor e colaborativa. (A) Número anual de publicações na área de espermatogênese e MQC. (B) Mapa da distribuição temporal de publicações colaborativas internacionais na área de espermatogênese e MQC. (C) Mapa da distribuição temporal de colaborações institucionais na área de espermatogênese e MQC. (D) Mapa da distribuição temporal de publicações por autor na área de espermatogênese e MQC. Os nós indicam o número de publicações; a cor dos nós indica o período de publicação, do mais antigo ao mais recente; e as linhas representam relações colaborativas, sendo as linhas mais grossas indicativas de colaborações mais estreitas. Abreviação: MQC = controle da qualidade mitocondrial. Clique aqui para visualizar uma versão maior desta figura.
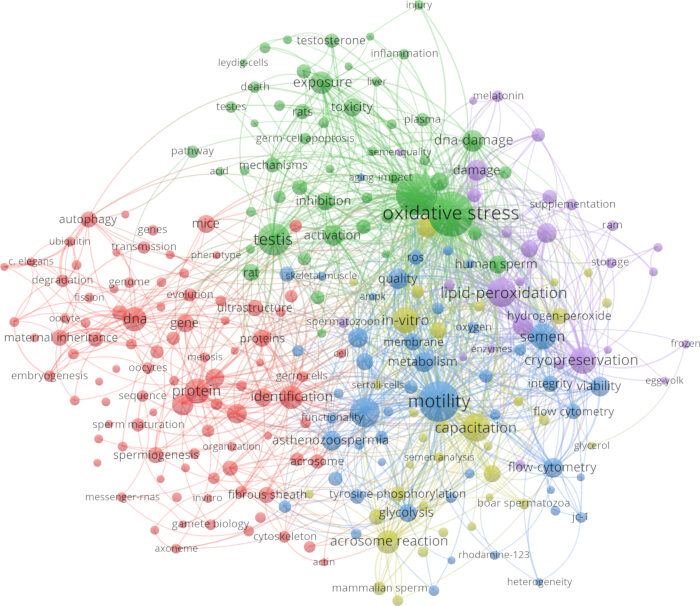
Figura 3. Gráfico de coocorrência de palavras-chave de alta frequência. Os nós representam palavras-chave de alta frequência; o tamanho do nó indica a frequência; a cor do nó indica agrupamento, sendo que cores iguais indicam tópicos mais relacionados; e as linhas representam relações entre palavras-chave, sendo que linhas mais grossas indicam relações mais estreitas. Clique aqui para visualizar uma versão maior desta figura.
| Processo de MQC | Proteína alvo |
| Fusão mitocondrial | Atrofia óptica 1 (OPA1) |
| Mitofusina 1 (MFN1) | |
| Mitofusina 2 (MFN2) | |
| Fissão mitocondrial | Proteína relacionada à dinamina 1 (DRP1) |
| Proteína mitocondrial de fissão 1 (FIS1) | |
| Fator de fissão mitocondrial (MFF) | |
| Mitofagia | Quinase induzida por PTEN 1 (PINK1) |
| Ligase de ubiquitina Parkin (ligase de ubiquitina E3 Parkin) |
Tabela 1: Principais proteínas-alvo no controle da qualidade mitocondrial. A tabela lista proteínas representativas envolvidas na fusão mitocondrial, fissão mitocondrial e mitofagia durante a espermatogênese.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Este trabalho foi apoiado pelo Projeto da Fundação de Ciências Naturais de Ningxia (2025AAC030481, 2024AAC03715), Fundação Nacional de Ciências Naturais da China (82560939, 82505601), Programa-Chave de Pesquisa e Desenvolvimento de Ningxia (2025FRG05005, 2025BEG2008), Fundação de Ciências Naturais de Pequim (7254520), Fundação Chinesa de Ciência para Pós-Doutorado (2025T181076), Programa de Patrocínio a Cientistas Jovens Destacados da Associação Chinesa para Ciência e Tecnologia (YESS20240193), Programa de Apoio a Jovens Talentos da Associação Chinesa de Medicina Tradicional Chinesa (CACM-2024-QNRC2-B17), Projeto de Construção de Disciplina-Chave de Alto Nível em Medicina Tradicional Chinesa pela Administração Nacional de Medicina Tradicional Chinesa (zyyzdxk-2023238).
Referências
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.