Descrevemos pipelines de imagem e rastreamento confocais aplicados a duas estratégias de repórteres: organoides mosaico para resolver comportamentos individuais de células e organoides repórteres de destino para monitoramento de transições de tipos celulares em organoides intestinais humanos e murinos.
Artigo de método
Imagens de células vivas e rastreamento de células únicas para monitorar dinâmicas clonais e transições de destino em organoides intestinais humanos e murinos
* These authors contributed equally
Neste artigo
Resumo
Resumo
O epitélio intestinal passa por uma rápida autorrenovação por meio da divisão das células-tronco, diferenciação celular e migração. Compreender como células individuais se comprometem com destinos específicos e como a dinâmica clonal emerge nesse tecido requer métodos que capturem o comportamento celular em tempo real e com resolução de célula única. Os organoides intestinais recapitulam características-chave da auto-organização epitelial e da diversidade de tipos celulares, tornando-os um sistema poderoso para estudar esses processos em um ambiente controlado. Aqui apresentamos um protocolo para imagem confocal de longo prazo com células vivas (até 72 horas) e rastreamento de célula única em organoides intestinais humanos e murinos, construído em torno de duas estratégias complementares de repórter. Primeiro, descrevemos a geração de organoides mosaico combinando populações celulares diferencialmente marcadas, permitindo a resolução de uma única célula de repórteres localizados em membrana e citoesqueleto que não podem ser atribuídos a células individuais em um epitélio denso. Segundo, usamos repórteres de destino específicos de cada tipo celular (MUC2 para células goblet e DEFA5 para células de Paneth) para monitorar as transições de tipos de células secretoras em tempo real. O protocolo abrange cultura de organoides, formação de organoides em mosaico, preparação de amostras com estratégias para minimizar a fototoxicidade, aquisição de imagens ao longo de vários dias e rastreamento semi-automatizado de células únicas usando OrganoidTracker, que reconstrói trajetórias e linhagens celulares ao longo do tempo. Embora demonstrado em organoides intestinais, essa estrutura é facilmente adaptável a outros sistemas organoides epiteliais, incluindo modelos gástricos, pancreáticos e cólons, ampliando sua utilidade para estudos de biologia epitelial, homeostase e doenças.
Introdução
O epitélio intestinal é um dos tecidos que se auto-renovam mais rapidamente no corpo, com a maioria das células sendo recolocada em três a cinco dias. Essa renovação contínua é sustentada por células-tronco positivas ao receptor acoplado à proteína G 5 (Lgr5), ricas em leucina, que residem na base das criptas intestinais, o que dá origem a progenitores amplificadores de trânsito que se diferenciam nos tipos celulares especializados do revestimento intestinal à medida que migram em direção à ponta davilosidade 1. As principais linhagens diferenciadas incluem enterócitos absorventes, células de cálice secretoras de muco, células enterendócrinas produtoras de hormônios e células antimicrobianas dePaneth 2. Como as células individuais se comprometem com destinos específicos, como o comportamento coletivo das células emerge da dinâmica celular individual e como a coordenação em nível de tecido é alcançada permanecem questões fundamentais na biologia intestinal. Responder a essas questões requer abordagens experimentais que capturem o comportamento celular em resolução de célula única, em tempo real e em escalas de tempo relevantes para diferenciação emigração 3.
Organoides intestinais, estruturas tridimensionais (3D) auto-organizadas crescidas a partir de células-tronco ou fragmentos de tecido individuais, recapitulam aspectos-chave da arquitetura epitelial, auto-organização e diversidade de tiposcelulares 4,5,6. Desde seu desenvolvimento, os organoides tornaram-se uma ferramenta indispensável para estudar biologia intestinal, modelagem de doenças e respostas a medicamentos. Tanto organoides intestinais murinhos quanto humanos podem ser mantidos a longo prazo em cultura, geneticamente modificados usando abordagens baseadas em Repetições Palindrômicas Curtas Agrupadas Regularmente Interespaçadas (CRISPR), e combinados em estruturas mosaicas misturando células únicas dissociadas de diferentes genótipos ou fundos repórteres antes de serem reinseridos no extrato de membranabasal 7,8,9. Organoides mosaicos combinam células de fundos genéticos ou fluorescentes distintos dentro de uma única estrutura, de modo que as populações experimentam sinais de nicho idênticos e contexto mecânico e podem ser comparadas com controles internos embutidos. Essa tratabilidade genética os torna particularmente adequados para estudos de imagem ao vivo que exigem rotulagem precisa de populações celularesespecíficas 6,10,11,12. Repórteres que marcam células esporadicamente, como marcadores de destino específicos de cada tipo celular, produzem células fluorescentes isoladas que podem ser rastreadas e analisadas individualmente por meio de métodos de rastreamento de célula única. No entanto, surge um desafio persistente quando proteínas localizadas em membrana e do citoesqueleto, como junções celulares ou Miosina-II cortical, são marcadas uniformemente ao longo do epitélio. Seus sinais não podem ser atribuídos a células individuais porque células vizinhas compartilham seus limites na resolução da microscopia confocal. Organoides mosaico superam essa limitação: quando uma célula que expressa um repórter fluorescente está cercada por vizinhos não marcados, seus sinais de membrana e citoesqueleto podem ser atribuídos inequivocamente a essa única célula, revelando como ela remodela seu citoesqueleto durante migração, divisão ouextrusão 9,13. Ajustar a razão de rotulagem inverte essa visão, permitindo que a resposta da vizinhança ao redor de uma célula não rotulada seja capturada em vez disso. Repórteres nucleares H2B histonos, como H2B-mCherry ou H2B-iRFP, servem como ferramentas para identificar o padrão do mosaico e localizar constelações celulares informativas para análise. Além da resolução de célula única, organoides mosaicos também permitem comparações diretas de aptidão entre genótipos: como ambas as populações compartilham o mesmo nicho, diferenças na vida útil ou na taxa de extrusão fornecem uma leitura interna controlada da aptidãocompetitiva 9,14,15.
A imagem de células vivas de organoides, no entanto, apresenta desafios técnicos específicos. Sua geometria 3D requer microscopia confocal ou de folha de luz para secçãoóptica 16,17,18,19. Capturar processos lentos, como diferenciação e migração, exige durações de imagem de 24 horas ou mais, com otimização cuidadosa da potência do laser, tempo de exposição e intervalos de imagem para limitar afototoxicidade 16,18. A matriz de embedding e o meio de cultura devem sustentar a saúde dos organoides enquanto permanecem compatíveis com a óptica do microscópio. Além disso, extrair informações quantitativas de célula única a partir de conjuntos de dados densos de time-lapse 3D requer ferramentas computacionais dedicadas para detectar e ligar células em centenas de pontos de tempo. Além da microscopia confocal e da microscopia de folhas de luz, a microscopia multifóton e a microscopia de imagem por vida útil de fluorescência (FLIM) oferecem capacidades adicionais, como redução da fototoxicidade e leituras metabólicas semrótulo 20,21, embora a microscopia confocal continue sendo a plataforma mais acessível e versátil para imagens ao vivo multicoloridas de organoides marcados fluorescentemente.
Diversas abordagens foram desenvolvidas para rastreamento de células em organoides, variando desde anotação manual até pipelines semi-automatizados e totalmente automatizados baseados em aprendizadoprofundo 22. OrganoidTracker é uma ferramenta de software semi-automatizada que utiliza redes neurais para detectar núcleos em pilhas confocais 3D e conecta detecções entre pontos temporais para reconstruir trajetórias celulares e árvores de linhagem 3,23. Ele foi validado para rastrear centenas de células ao longo de vários dias em organoides intestinais e oferece uma estrutura flexível para quantificar eventos de divisão, migração, diferenciação e extrusão celular. Seu suporte para imagem multicanal o torna diretamente compatível tanto com organoides mosaicos que carregam repórteres nucleares espectralmente distintos quanto com organoides que expressam marcadores de destino específicos de tipos celulares.
Neste protocolo, descrevemos um fluxo de trabalho modular que integra imagens confocais de células vivas e rastreamento de célula única com duas estratégias complementares de repórteres em organoides intestinais humanos e murinos. A primeira estratégia utiliza organoides murinos mosaico gerados pela mistura de duas populações celulares que carregam repórteres nucleares distintos de H2B (H2B-mCherry e H2B-iRFP) em proporções definidas (Figura 1A). Uma população também carrega um relator de interesse co-expresso, como a Miosin-II-mNeonGreen, cujo sinal localizado em membrana pode ser atribuído inequívocamente a células individuais quando estão cercadas por vizinhos que carregam apenas o segundo marcador nuclear. Isso permite a observação direta de como uma única célula remodela seu citoesqueleto durante a migração, divisão ou extrusão dentro de um tecido que, de outra forma, estaria intacto. A segunda estratégia utiliza repórteres de destino específicos por tipo celular em organoides intestinais humanos, Mucin 2 (MUC2) para marcar células de cálice e Defensin Alpha 5 (DEFA5) para marcar células de Paneth, possibilitando monitoramento em tempo real das transições de tipo celular secretor (Figura 1B). Juntos, esses dois sistemas ilustram como um pipeline compartilhado de imagens e acompanhamento pode ser adaptado a diversas questões biológicas simplesmente trocando a estratégia do repórter (Figura 1C,D). As seções que seguem fornecem todas as etapas necessárias para implementar esse fluxo de trabalho, desde a cultura de organoides até a geração de mosaicos, aquisição de imagens e análise quantitativa de célula única.
Protocolo
Todos os experimentos envolvendo animais foram realizados em conformidade com as diretrizes institucionais aprovadas pelo Comitê Central de Experimentação Animal (CCD) do governo holandês e pelo Organismo de Bem-Estar Animal (IvD) do Instituto KNAW/Hubrecht. Organoides intestinais humanos foram gerados a partir de tecido do paciente obtido no Centro Médico Universitário de Utrecht (UMCU) com consentimento informado do paciente. O estudo foi aprovado pelo comitê ético da UMCU (Utrecht, Holanda) e realizado de acordo com a Declaração de Helsinque e a lei holandesa.
1. Cultura e manutenção de organoides
- Prepare o meio de crescimento do fator epidérmico, Noggin e R-spondin (ENR) para organoides intestinais murinhos (Tabela 1).
- Prepare o Meio de Expansão (Tabela 2), o Meio de Padronização (Tabela 3) e o Meio de Maturação (Tabela 4) para organoides intestinais humanos.
- Descongele um frasco de extrato de membrana basal (BME) reduzido por fator de crescimento em gelo durante a noite antes do uso.
- Sempre mantenha a BME no gelo para evitar gelificação prematura.
- Cultive organoides intestinais murinos em meio ENR embutido em BME, passando a cada 7 dias em uma proporção dividida de 1:4 a 1:8 por dissociaçãomecânica 4.
- Cultivo de organoides intestinais humanos em meio de expansão embutido em BME, passando a cada 7–10 dias5.
NOTA: Para expansão ou recuperação de organoides murinos após dissociação unicelular, cultivo em meio ENR suplementado com meio condicionado Wnt (suplementado com 10 mM de nicotinamida e 10 μM de Y-27632 diidrocloreto) pelos primeiros 2–3 dias para promover o crescimento e a viabilidade dos organoides. - Para induzir a diferenciação dos organoides intestinais humanos, cultive sequencialmente organoides em meio de padronização por 14 dias, seguido pelo meio de maturação por 7 a 10 dias6.
NOTA: Para protocolos detalhados para estabelecimento e cultura de organoides, consulte Sato et al.4 para organoides intestinais murinos, Sato et al.5 e He etal 6 para organoides intestinais humanos.
2. Geração de organoides intestinais transgênicos
- Organoides de passagem para garantir culturas ativamente proliferantes no momento da eletroporação: três dias antes da eletroporação para organoides murinos e de cinco a sete dias para organoides humanos. Para cada reação de eletroporação, utiliza-se organoides de 4 a 8 poços de uma placa de 24 poços (aproximadamente 200–400 μL de organoides contendo BME, resultando em aproximadamente 500–1.000 organoides). Dissocie organoides em células individuais usando reagente dissociativo semelhante à tripsina por 5–10 minutos a 37 °C.
- Gerar linhas organoides de repórter nuclear coeletroporando uma construção de expressão baseada em transposons (p2T-H2B-mCherry-IRES-BlastR ou p2T-H2B-iRFP-IRES-PuroR; 5 μg cada) junto com um vetor transposase (p2T-CAG-mT2TP; 5 μg) nas células dissociadas usando um sistema de eletroporação seguindo os protocolosestabelecidos 24.
NOTA: As quantidades de DNA plasmídico especificadas no passo 2.2 (5 μg por construção) são otimizadas para aproximadamente 500–1.000 organoides por reação de eletroporação. Durante a eletroporação, verifique se a impedância medida pelo eletroporador está entre 25 e 55 Ω. Impedância abaixo de 25 Ω indica densidade excessiva de células ou problemas de condutividade do tampão; Impedância acima de 55 Ω indica número de células insuficiente ou baixa viabilidade da célula. Ajuste a concentração da célula ou substitua o buffer de eletroporação se a impedância estiver fora dessa faixa. - Após a eletroporação, cultivam células em meio condicionado a Wnt suplementadas com 10 μM Y-27632 diidrocloreto por 3 dias para apoiar a recuperação celular e a reforma dos organoides.
- Inicie a seleção antibiótica para construtos de superexpressão (puromicina (2 μg/mL) para linhas H2B-iRFP ou blasticidina (10 μg/mL) para linhas H2B-mCherry) uma semana após a eletroporação para permitir recuperação suficiente antes da pressão de seleção.
- Mantenha a seleção contínua por duas semanas.
- Escolha clones organoides fluorescentes sob um microscópio estéreo equipado com epifluorescência usando conjuntos de filtros apropriados.
- Dissocie clones selecionados em células individuais usando reagente de dissociação semelhante à tripsina e expanda em meio condicionado a Wnt por duas semanas antes de transitar para o meio ENR.
- Valide as linhas repórter confirmando a localização nuclear uniforme do sinal fluorescente e a expressão estável entre as viagens.
- Verifique se a introdução de repórteres não altera a taxa de crescimento organoide, morfologia ou capacidade de diferenciação comparando com linhas parentais não marcadas.
- Para permitir leituras de proteínas localizadas em membranas ou do citoesqueleto, co-expresse um repórter fluorescente de interesse (por exemplo, Miosina-II marcado com mNeonGreen) na mesma linha organoide do repórter nuclear H2B.
NOTA: Linhas organoides H2B repórteres estabelecidas podem ser ampliadas e criopreservadas. Essas linhas servem como uma base versátil para experimentos de mosaico a jusante: repórteres adicionais ou mutações genéticas podem ser introduzidos no mesmo fundo rotulado com H2B, gerando uma biblioteca de linhas compatível com o fluxo de trabalho de mosaico descrito na Seção 4.
3. Geração de organoides intestinais humanos repórter de destino endógeno
- Gerar o repórter fluorescente knock-in MUC2 em organoides intestinais humanos usando integração direcionada independente de homologia mediada por CRISPR (CRISPR-HOT), conforme descrito em Artegiani et al.7
- Gerar o repórter fluorescente knock-in DEFA5 em organoides intestinais humanos por reparo dirigido por homologia (HDR), conforme descrito em He et al.6
NOTA: CRISPR-HOT (passo 3.1) e HDR (passo 3.2) produzem repórteres endógenos knock-in. - Valide a expressão dos repórteres confirmando a colocalização do sinal fluorescente com a coloração de anticorpos para MUC2 e DEFA5, respectivamente.
- Verifique se a introdução do repórter não altera o crescimento, morfologia ou capacidade de diferenciação dos organoides.
NOTA: A abordagem CRISPR-HOT é amplamente aplicável além dos marcadores do destino e pode ser usada para gerar repórteres fluorescentes endógenos para proteínas localizadas em membranas e do citoesqueleto, como Miosina-II, E-cadherina ou ZO-1, tanto em organoides humanos quanto murinos.
4. Geração de organoides mosaicos
- Três dias antes da geração dos organoides mosaicos, passar ambas as linhas organoides para um meio condicionado Wnt para promover a expansão das células-tronco e maximizar a viabilidade celular durante a dissociação.
- No dia da geração do mosaico, revestir cada poço de uma placa de 48 poços com 20 μL de 5% de BME em DMEM para fornecer uma fina camada adesiva para a fixação das células. Incube a 37 °C por 1 hora.
- Dissolva o BME adicionando meio base gelado e colete organoides de cada linha separadamente por centrifugação a 300 × g por 5 minutos a 4 °C. Dissocie organoides de células individuais incubando-os em solução enzimática de descolamento celular por 5–7 minutos em banho-maria a 37 °C. Pipete repetidamente a suspensão usando uma pipeta P1000 para auxiliar na dissociação mecânica. Monitore a dissociação sob um microscópio de campo claro e interrompa a reação adicionando excesso de meio base gelado quando predominantemente células individuais ou pequenos fragmentos organoides de 2 a 10 células forem visíveis.
- Células de pellet por centrifugação a 300 × g por 5 minutos a 4 °C. OPCIONAL: Filtre cada suspensão de célula por um filtro de 40 μm para remover aglomerados residuais, detritos celulares e fragmentos de gel BME.
NOTA: Isso garante uma suspensão celular limpa, melhora a homogeneidade do mosaico e reduz o risco de grandes manchas clonais surgindo de aglomerados celulares pré-formados. Para criar limites maiores entre populações celulares, a filtragem não é recomendada. - Avalie a viabilidade celular e conte células viáveis usando exclusão de azul de tripano. Combine as duas populações celulares na razão desejada (por exemplo, 1:1, 1:3 ou 1:9) para um total de 300.000 células em 500 μL de meio condicionado a Wnt suplementado com 10 μM Y-27632 dihidrocloreto. Misture bem pipetando suavemente.
NOTA: A razão de mistura determina o tipo de análise: uma razão baixa entre repárter e não marcada (por exemplo, 1:9) isola células individuais marcadas entre vizinhos não marcados, permitindo a atribuição inequívoca de sinais de membrana e citoesqueleto a células individuais. Uma alta fração de células repórter (por exemplo, 9:1) inverte essa visão, permitindo que a resposta de vizinhança ao redor de uma célula não rotulada seja capturada. - Seme a suspensão da célula na placa revestida de 48 poços. Centrifuge a placa a 200 × g por 5 minutos em temperatura ambiente e incube a 37 °C.
- Após 24 horas, desprenda mecanicamente a camada de células raspando com a ponta de uma pipeta P200 e lavando cuidadosamente com meio base gelado ou usando um raspador de células. Colete os agregados destacados por centrifugação a 300 × g por 3 minutos a 4 °C sem cisalhamento mecânico adicional. Resuspenda agregados em BME e placar em portadores de amostra compatíveis com imagem. Cultura no meio ENR.
NOTA: A etapa de agregação 2D sem BME é fundamental para gerar organoides mosaicos bem misturados com distribuição sal e pimenta das duas populações celulares. - Para organoides de mosaico humano, substitua o meio condicionado Wnt e o ENR pelo Meio de Expansão humano (Tabela 2); todas as outras etapas permanecem inalteradas.
5. Preparação da amostra para imagem confocal de células vivas
- Use câmaras de imagem com fundo de vidro (por exemplo, placa de fundo de vidro de 24 poços com cobertura de borosilicato #1,5 de alto desempenho) para garantir compatibilidade óptica com alvos confocais de alta abertura numérica (NA).
- Placar a suspensão organoide-BME como uma fina cúpula (≤30 μL por poço) próxima ao centro do fundo do vidro. Antes de transferir para 37 °C, incube a placa a 4 °C por 5–10 minutos para permitir que os organoides afundem em direção ao fundo do vidro por gravidade antes da gelação do BME.
NOTA: Isso reduz a distância de trabalho entre o organoide e o coverslip, maximizando a qualidade da imagem com microscópios invertidos. - Transfira para 37 °C e deixe o BME solidificar por 20–30 minutos. Depois, adicione 500 μL de meio de crescimento pré-aquecido por 24 poços. Permita que os organoides se recuperem e estabeleçam sua morfologia por pelo menos 24 horas após a blindagem antes de iniciar a imagem ao vivo.
- Para minimizar a evaporação durante a imagem de longo prazo, utilize uma câmara de incubação umidificada no topo do estágio. Coloque a amostra no estágio do microscópio 1–2 horas antes da imagem para permitir o equilíbrio térmico e minimizar a deriva Z durante a aquisição.
- Garanta que a incubadora no topo da fase mantenha 37 °C e 5% de CO₂ durante toda a imagem.
- Selecione organoides localizados próximos ao fundo do vidro (≤50 μm do revestimento) com morfologia saudável: arquitetura clara de brotação de cripta para organoides murinos ou estrutura cística/brotante para organoides humanos. Evite organoides posicionados profundamente no BME, pois a qualidade do sinal e a precisão do rastreamento se degradam significativamente com a profundidade da imagem.
NOTA: A presença de vermelho de fenol tanto no BME quanto no meio de cultivo não causa artefatos significativos de autofluorescência ou imagem, pois os repórteres fluorescentes usados neste protocolo (H2B-mCherry, H2B-iRFP, MUC2-mNeonGreen e DEFA5-dsRed) produzem uma relação sinal-ruído suficiente para detecção nuclear confiável e rastreamento de célula única. No entanto, para experimentos usando repórteres mais fracos ou canais fluorescentes adicionais, a transição para BME sem fenol vermelho e meio de cultura pode ser benéfico.
6. Aquisição de imagem confocal
- Use um microscópio confocal de varredura a laser equipado com incubadora no topo do palco (37 °C, 5% CO₂), acionamento motor em Z e linhas de laser apropriadas para os fluoróforos em uso.
- Selecione o objetivo com base no requisito experimental. Use o objetivo de imersão em água 40×/1,10 NA com distância de trabalho de 0,62 mm para obter imagens mais profundas no BME. Use o objetivo aéreo de 20×/0,75 NA com distância de trabalho de 0,62 mm para aquisição multi-organoide ou de grande campo de visão.
NOTA: Maior NA melhora a coleta de luz, a resolução e a seção óptica, razão pela qual o objetivo de imersão em água 40×/1,10 resolve detalhes finos mais profundos dentro do BME, enquanto sua maior ampliação restringe o campo a um ou poucos organoides. O objetivo de ar 20×/0,75 coleta menos luz e seções menos compactas, mas seu campo mais amplo captura muitos organoides em uma única aquisição, tornando-o a melhor escolha para imagens em escala populacional ou multiposição. - Deixe a amostra e o meio de imersão se equilibrarem termicamente no palco do microscópio por pelo menos 1–2 horas antes de iniciar a aquisição (passo 5.8).
- Verifique o foco em todas as posições durante os primeiros pontos de tempo e corrija manualmente quaisquer posições que mostrem desvio antes que ela se acumule.
NOTA: Perda de foco e desvio de imagem são desafios comuns durante aquisições confocais de longo prazo e devem ser gerenciados ativamente. Para objetivos de imersão em água, use um óleo de imersão com índice de refração compatível com a água (n = 1,333) em vez da própria água, eliminando a evaporação enquanto mantém as propriedades ópticas da imersão em água. - Configure as configurações de excitação e emissão para cada fluoróforo. Para minimizar o sangramento cruzado, adquira canais de fluorescência sequencialmente em vez de simultaneamente, garantindo que apenas uma linha de laser esteja ativa por vez. Use varredura sequencial bidirecional para reduzir o tempo total de aquisição por ponto de tempo, mantendo a separação dos canais.
NOTA: Inclua organoides de controle de cor única expressando apenas um repórter para quantificar o sangramento cruzado residual e aplicar correções espectrais de desmistura, se necessário. - Para organoides de mosaico murino de duas cores, use excitação de 561 nm para H2B-mCherry e 638 nm para H2B-iRFP670 com filtros de emissão apropriados para minimizar o sangramento espectral. Para os organoides intestinais humanos, use excitação de 488 nm para MUC2-mNeonGreen e 561 nm para DEFA5-dsRed.
NOTA: Corantes nucleares vivos como Hoechst 33342 ou um corante fluorescente de DNA vermelho distante podem substituir um marcador nuclear genético, já que a linha de detecção opera com sinal nuclear e não com um fluoróforo específico. Note que corantes que se ligam ao DNA podem se tornar fototóxicos e antiproliferativos sob iluminação repetida, especialmente o Hoechst, que tem excitação de ~400 nm, então mantenha as concentrações baixas e favoreça corantes vermelhos distantes de baixa fototoxicidade para imagens ao vivo prolongadas. - Defina a pilha Z como 25–35 seções ópticas em intervalos de 2 μm. Defina o intervalo de tempo de 5–10 minutos para organoides intestinais murinos e 15–30 minutos para organoides humanos.
NOTA: Para detecção nuclear confiável usando o OrganoidTracker, recomendamos as seguintes configurações como ponto de partida: objetivo de água 40x, velocidade de varredura 600 Hz, fator de zoom 0,75×, resultando em tamanho de pixel de 0,38 μm em XY. Essas configurações fornecem amostragem espacial suficiente para resolver núcleos individuais, mantendo o tempo de aquisição por z-stack dentro de limites aceitáveis para imagens de longo prazo multi-posição. - Mantenha a potência do laser o mais baixa possível, mas aumente até que os núcleos estejam claramente resolvidos. Comece a aquisição em time-lapse multi-posição. Certifique-se de que o tempo total de aquisição por ponto de tempo em todas as posições não exceda 90% do intervalo de tempo estabelecido para acomodar o movimento do palco e os ajustes de autofoco. Imagem para 12–72 horas, dependendo das perguntas biológicas.
NOTA: Antes de iniciar uma longa run no OrganoidTracker, adquira um único z-stack e teste a identificação. A identificação confiável, com poucas detecções erradas ou falsas, confirma que as configurações são adequadas. Caso contrário, ajuste a potência do laser, ganho do detector ou z-step antes de prosseguir. Capturar eventos de diferenciação, como o surgimento de células caliciformes positivas para MUC2 ou células de Paneth positivas para DEFA5, normalmente requer de 48 a 72 horas. Dinâmicas de curto prazo, como extrusão celular, podem ser capturadas em 12–24 horas. A fototoxicidade é o principal fator limitante para a imagem de longo prazo. Os sinais incluem divisão celular lenta, apoptose, condensação nuclear e colapso organoide (Figura 2). Recomenda-se incluir organoides controle não identificados como referência interna. Se observado, reduza a potência do laser ou aumente o intervalo de tempo.
7. Rastreamento de células únicas e reconstrução de linhagem usando uma ferramenta semi-automatizada de rastreamento celular organoide, como o OrganoidTracker
- Instale o OrganoidTracker seguindo as instruções da https://github.com/jvzonlab/OrganoidTracker.
NOTA: O software requer Python 3.8 ou posterior, com numpy, scipy, matplotlib e tensorflow. - Carregue o conjunto de dados de time-lapse no OrganoidTracker. Formatos de arquivo aceitos incluem pilhas TIFF, ND2 e LIF. Execute a detecção de núcleos baseada em rede neural no canal nuclear (H2B-mCherry ou H2B-iRFP para organoides murinos).
NOTA: O modelo pré-treinado fornecido com o software é otimizado para núcleos organoides intestinais marcados com H2B e não pode ser aplicado diretamente para identificar automaticamente células MUC2-mNeonGreen- ou DEFA5-dsRed-positivas. - Revise e corrija manualmente detecções automatizadas, focando em falsos positivos (detecções em detritos, material autofluorescente ou figuras mitóticas contadas em duas vezes), falsos negativos (núcleos perdidos em regiões densas ou na periferia do organoide) e interruptores de identidade (atribuições incorretas de identidade celular quando duas células passam próximas).
- Execute o algoritmo de ligação para conectar detecções entre pontos de tempo e reconstruir trajetórias de células. Revise os links manualmente, prestando atenção especial a eventos de divisão celular (uma trilha se dividindo em duas trilhas filhas) e eventos de extrusão celular (terminação de trilha quando uma célula sai do epitélio).
NOTA: Para organoides mosaicos, execute detecção e rastreamento no canal nuclear primário, depois classifique cada célula rastreada como pertencente à população A ou B com base na razão de intensidade de fluorescência entre os dois canais nucleares. - Use a opção "Rastreamento Manual" no software para rastrear os organoides repórteres do destino humano. Quantifique a fluorescência do repórter medindo a intensidade média do sinal dentro de um ROI definido ao redor da posição do centro celular inserida durante o rastreamento manual. O momento em que a intensidade do repórter ultrapassa um limite definido marca o compromisso com o destino. O início do sinal MUC2-mNeonGreen define o compromisso das células goblet, enquanto o início do sinal DEFA5-dsRed define o compromisso das células de Paneth.
- Salve o projeto de rastreamento regularmente usando a função incremental de salvamento do software, que permite que o processo de correção seja pausado e retomado. Exporte dados de rastreamento (incluindo posições de células, árvores de linhagem e classificações de células) para análise a jusante em Python ou R.
8. Quantificação das transições de destino celular e comportamento de célula única
- Para quantificar as transições de tipo celular, identifique o momento em que cada célula DEFA5-dsRed negativa se torna DEFA5-dsRed positiva (compromisso da célula de Paneth) com base na intensidade do canal do repórter no acompanhamento. Para cada célula monitorada, extraia a intensidade de fluorescência dos canais MUC2-mNeonGreen e DEFA5-dsRed ao longo do tempo para monitorar a relação temporal entre os dois repórteres. Plote traços de intensidade de canal duplo para células individuais para identificar dinâmicas correlacionadas dos repórteres.
NOTA: Monitorar ambos os canais simultaneamente em células individuais rastreadas é essencial para distinguir o compromisso das células caliciformes (ativação sustentada de MUC2-mNeonGreen) do compromisso com células de Paneth (ativação transitória de MUC2-mNeonGreen seguida pelo início de DEFA5-dsRed). A análise de canal único sozinha é insuficiente para capturar essa dinâmica e pode levar à classificação incorreta dos precursores das células de Paneth iniciais como células goblet. - Em organoides mosaicos, extraia métricas comportamentais por célula para cada célula acompanhada, incluindo o tempo de vida celular (tempo desde a última divisão até a extrusão ou o fim da imagem), taxa de divisão e velocidade de migração. Quando um repórter de interesse co-expresso estiver presente, quantifique-se sua intensidade de fluorescência ao longo do tempo para capturar mudanças dinâmicas durante eventos específicos, como divisão, migração ou extrusão. Relacione essas medições ao contexto local da vizinhança da célula comparando o comportamento da célula marcada com seus vizinhos imediatos não rotulados.
NOTA: Quando dois genótipos estão misturados no mesmo organoide, diferenças sistemáticas em qualquer uma dessas métricas entre as duas populações podem indicar uma vantagem competitiva de aptidão de um genótipo em relação ao outro. - Realize análises estatísticas usando testes apropriados. Para comparar o momento do compromisso de destino ou métricas por célula, como tempo de vida, velocidade de migração e taxa de divisão entre dois grupos, use o teste Mann-Whitney U. Para comparar a dinâmica da intensidade dos repórteres ao longo do tempo, utilize um modelo linear de efeitos mistos para levar em conta medições repetidas dentro da mesma célula.
NOTA: Todas as quantificações devem ser realizadas com dados de rastreamento manualmente corrigidos. Conjuntos de dados não corrigidos ou parcialmente corrigidos introduzem erros sistemáticos no momento do compromisso do destino, atribuições espaciais e cálculos de métricas comportamentais. Reservar tempo suficiente para correção manual antes de prosseguir para a quantificação (ver Seção 7).
Resultados
Seguindo o protocolo descrito na Seção 4, organoides mosaicos contendo populações celulares marcadas com H2B-mCherry e H2B-iRFP formam-se em até 48 horas após a semeadura. A formação bem-sucedida do mosaico é caracterizada por uma distribuição sal e pimenta ou por limites definidos entre as duas populações, dependendo do grau de dissociação utilizado. Uma distribuição sal e pimenta refere-se a uma mistura aleatória de células únicas entre as duas populações, na qual células de cada população são intercaladas no nível de célula única, sem grandes domínios clonais. Limites definidos, por outro lado, resultam em manchas coerentes de cada população celular dentro do mesmo organoide. O grau de dispersão celular é controlado pela duração da etapa de dissociação e pelo vigor da pipetagem: a dissociação completa de células únicas produz mosaicos de sal e pimenta, enquanto a fragmentação suave preserva pequenos aglomerados clonais (Figura 3A).
A marcação em mosaico permite a análise de células individuais de processos que não podem ser resolvidos em tecidos marcados uniformemente. Quando uma célula individual que coexpressa um repárter de interesse (por exemplo, um repórter fluorescente de Miosina-II) está cercada por vizinhos não marcados, sua dinâmica citoesquelética durante migração, divisão ou extrusão pode ser atribuída inequívocamente a essa célula (Figura 3B). Repórteres nucleares de H2B facilitam a identificação de constelações celulares informativas dentro do mosaico, e medições por célula, como tempo de vida, taxa de divisão e dinâmica da intensidade do repórter, podem ser extraídas dos dados de rastreamento (Figura 3C). Quando dois genótipos são misturados, essas métricas por célula podem ser comparadas entre populações para avaliar diferenças competitivas de aptidão física.
Em organoides intestinais humanos que carregam os repórteres do destino MUC2-mNeonGreen e DEFA5-dsRed, o compromisso com o destino das células secretoras é evidente como um aumento gradual da fluorescência dos repórteres ao longo dos dias. Organoides cultivados em Meio de Maturação foram transferidos para placas de fundo de vidro no dia 7 e fotografados por microscopia confocal de células vivas (Figura 4A). Imagens em time-lapse revelam duas dinâmicas repórteres distintas: células goblet ativam e mantêm alta expressão de MUC2-mNeonGreen durante todo o período de imagem, enquanto células de Paneth apresentam ativação inicial de MUC2-mNeonGreen, seguida de diminuição progressiva do sinal e subsequente ativação de DEFA5-dsRed6 (Figura 4A). A quantificação por célula única confirma essa transição sequencial no nível das células individuais (Figura 4B), sugerindo que o compromisso da célula de Paneth ocorre por um estado intermediário transitório que expressa MUC2, em vez de partir diretamente de um progenitor não marcado. Curvas de intensidade médias entre múltiplas células rastreadas confirmam que esse padrão é consistente no nível populacional, com precursores das células de Paneth apresentando uma relação inversa característica entre os sinais MUC2-mNeonGreen e DEFA5-dsRed (Figura 4C). Juntos, esses dados demonstram que o sistema de repórteres duplos resolve trajetórias distintas do destino secretor em resolução de célula única.
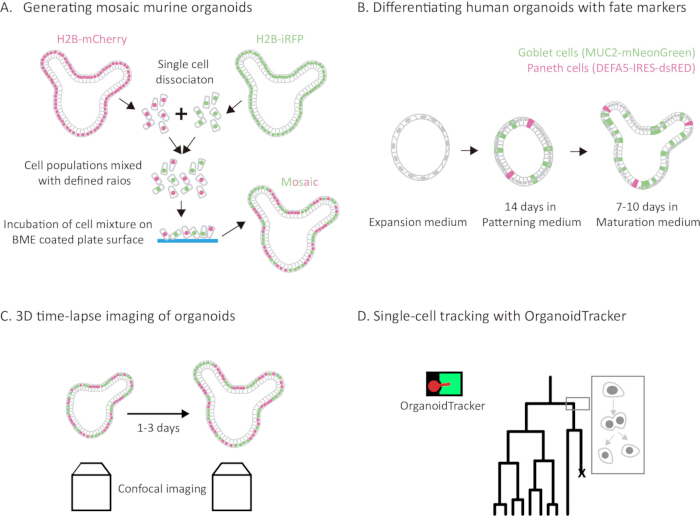
Figura 1: O fluxo de trabalho que integra imagens confocais de células vivas e rastreamento de célula única com duas estratégias complementares de repórteres em organoides intestinais humanos e murinos. (A) Visão geral esquemática do fluxo de trabalho de geração de organoides em mosaico. Organoides intestinais murinos que expressam H2B-mCherry (magenta) ou H2B-iRFP (verde) são dissociados em células individuais, misturados em proporções definidas e semeados em uma placa revestida com BME para formação de agregados em 24 horas antes de serem reincorporados na BME. (B) Visão geral esquemática da diferenciação de organoides intestinais humanos. Organoides humanos que expressam repórteres endógenos knock-in MUC2-mNeonGreen (células goblet, verde) e DEFA5-dsRed (células de Paneth, magenta) são diferenciados usando um protocolo em duas etapas. Os organoides são primeiro cultivados em meio de padronização por 14 dias, seguidos pelo meio de maturação por 7 a 10 dias. Durante a diferenciação, os organoides transitam de uma morfologia cística e esférica para uma estrutura extensivamente brotada que abriga os principais tipos celulares intestinais, incluindo células caliciformes MUC2-mNeonGreen-positivas e células Paneth DEFA5-dsRed-positivas. (C) Imagem confocal em time-lapse 3D de um organoide intestinal mosaico murino que expressa repórteres nucleares. (D) Rastreamento de célula única e reconstrução de linhagem usando uma ferramenta de software semi-automatizada de rastreamento de células organoides. Núcleos detectados são ligados entre pontos temporais para reconstruir trajetórias celulares e árvores de linhagem, permitindo a quantificação de eventos de divisão, migração e extrusão celular. Por favor, clique aqui para ver uma versão ampliada desta figura.
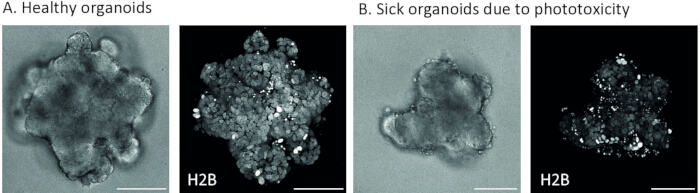
Figura 2: Comparação de organoides intestinais humanos saudáveis e fototóxicos durante imagens confocais vivas. (A) Imagens representativas de campo claro e fluorescência de um organoide intestinal humano saudável. Organoides saudáveis apresentam morfologia cística ou em brotação clara, sem detritos celulares no meio ao redor. (B) Imagens representativas de campo claro e fluorescência de um organoide intestinal humano mostrando danos fototóxicos. Sinais de fototoxicidade incluem acúmulo de detritos celulares no meio ao redor, condensação nuclear e divisão celular interrompida. Imagens de fluorescência H2B-mCherry são mostradas como projeções de intensidade máxima. Barras de escala, 100 μm. Por favor, clique aqui para ver uma versão maior desta figura.
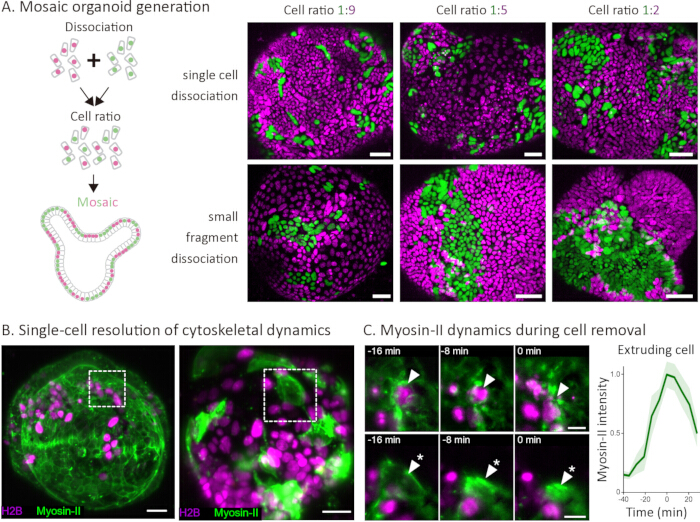
Figura 3: Geração de organoides mosaicos e resolução unicelular da dinâmica citoesquelética em organoides intestinais murinos. (A) Esquema da geração de organoides mosaicos por dissociação, mistura em razões definidas e reagregação. Imagens confocais representativas de organoides mosaico geradas em proporções celulares de 1:9, 1:5 e 1:2 (H2B-mCherry, verde; H2B-iRFP, magenta) usando dissociação de célula única (fileira superior) ou dissociação de pequenos fragmentos (linha inferior). A dissociação de célula única produz um padrão de mistura de sal e pimenta, enquanto a dissociação de pequenos fragmentos resulta em manchas clonais maiores. Barras de escala, 50 μm. (B) Imagens confocais de organoides mosaicos nos quais uma população densa (esquerda) ou esparsa (direita) expressa Miosina-II-mNeonGreen (verde), enquanto a outra população expressa apenas H2B-iRFP (magenta). Caixas tracejadas indicam as regiões ampliadas em (C). Barras de escala, 20 μm. (C) Série de time-lapse mostrando extrusão de células em intervalos de 8 minutos, alinhadas ao momento da remoção da célula (t = 0 min). Fileira superior (pontas de seta): extrusão de uma célula não rotulada cercada por vizinhos que expressam Miosina-II-mNeonGreen, revelando a resposta da vizinhança. Linha inferior (asteriscos): extrusão de uma célula individual expressora de Miosina II-mNeonGreen cercada por vizinhos não rotulados, permitindo a atribuição inequívoca da dinâmica cortical da miosina à célula extrudente. Barras de escala, 10 μm. Direita: intensidade de fluorescência normalizada da Miosina-II-mNeonGreen ao longo do tempo para células extrudidas, alinhada ao momento da remoção celular (t = 0 min). A miosina-II se acumula progressivamente nos minutos que antecedem a extrusão, atingindo o pico no momento da remoção. Área sombreada indica desvio padrão. Por favor, clique aqui para ver uma versão ampliada desta figura.
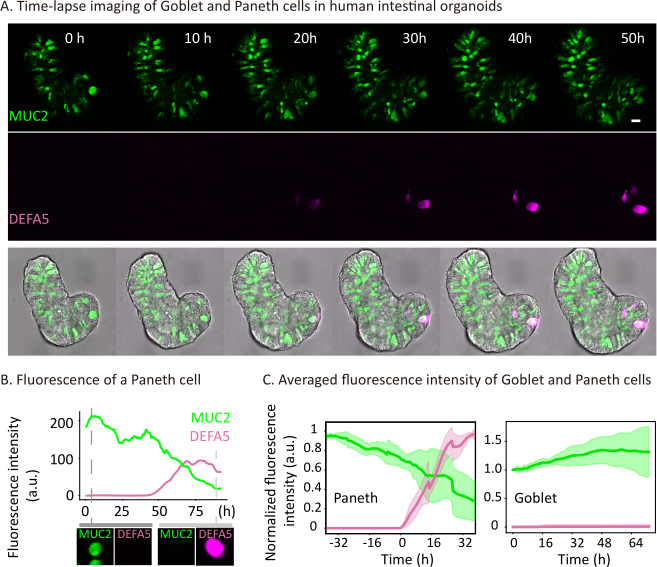
Figura 4: Monitoramento em tempo real das transições do destino das células secretoras em organoides intestinais humanos usando os repórteres do destino MUC2-mNeonGreen e DEFA5-dsRed. Por favor, clique aqui para ver uma versão ampliada desta figura.
(A) Imagens confocais representativas em time-lapse de um organoide intestinal humano cultivado em Meio de Maturação e fotografadas a partir do dia 7 de maturação. MUC2-mNeonGreen (verde) marca células de cálice e DEFA5-dsRed (magenta) marca células de Paneth. Barra de escala, 20 μm. (B) Quantificação de célula única da intensidade de fluorescência MUC2-mNeonGreen (verde) e DEFA5-dsRed (magenta) ao longo do tempo para uma célula de Paneth representativa, mostrando ativação inicial de MUC2-mNeonGreen seguida de diminuição progressiva do sinal e subsequente início de DEFA5-dsRed. A intensidade de fluorescência é mostrada em unidades arbitrárias (u.a.). (C) Curvas médias de intensidade de fluorescência para células goblet (n = 7 células) e precursores de células de Paneth (n = 8 células) mostrando dinâmica dos sinais MUC2-mNeonGreen (verde) e DEFA5-dsRed (magenta) ao longo dotempo 6. Para precursores de células Paneth, o tempo está alinhado ao primeiro aparecimento do sinal DEFA5-dsRed (t = 0 h). As células goblet mantêm consistentemente alta intensidade MUC2-mNeonGreen ao longo do tempo, enquanto precursores das células de Paneth apresentam uma relação inversa característica entre os sinais MUC2-mNeonGreen e DEFA5-dsRed. Áreas sombreadas indicam desvio padrão.
| Componente | Concentração de estoque | Concentração final |
| Eagle Médio/F12 Modificado Avançado de Dulbecco (DMEM/F12 Avançado) | Meio base | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplemento N2 | 100x | 1x |
| Suplemento B27 | 50x | 1x |
| N-acetilcisteína | 500mM | 1mM |
| Penicilina/Estreptomicina | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| EGF murino recombinante | 50ng/ml | |
| Noggin murino recombinante | 100ng/ml | |
| R-spondin humano recombinante 1 | 500ng/ml |
Tabela 1: Meio de crescimento para organoides intestinais murinos.
| Componente | Concentração de estoque | Concentração final |
| Eagle Médio/F12 Modificado Avançado de Dulbecco (DMEM/F12 Avançado) | Meio base | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplemento B27 | 50x | 1x |
| Penicilina/Estreptomicina | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Meio condicionado com R-spondin (U-Protein Express) | 2% | |
| Meio condicionado por Noggin (U-Protein Express) | 2% | |
| N-acetilcisteína | 500mM | 1mM |
| Nicotinamida | 1M | 10mM |
| EGF recombinante humano | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| SB202190 (inibidor de p38) | 30mM | 3uM |
| Prostaglandina E2 | 10mM | 1uM |
| Substituto Wnt | 1000x |
Tabela 2: Meio de expansão para organoides intestinais humanos.
| Componente | Concentração de estoque | Concentração final |
| Eagle Médio/F12 Modificado Avançado de Dulbecco (DMEM/F12 Avançado) | Meio base | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplemento B27 | 50x | 1x |
| Penicilina/Estreptomicina | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Meio condicionado com R-spondin (U-Protein Express) | 2% | |
| Meio condicionado por Noggin (U-Protein Express) | 2% | |
| N-acetilcisteína | 500mM | 1mM |
| EGF recombinante humano | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Substituto Wnt | 1000x | |
| CHIR99021 | 3mM | 3uM |
| IL-22 humano recombinante | 10 ug/ml | 2ng/ml |
Tabela 3: Meio de padronização para organoides intestinais humanos.
| Componente | Concentração de estoque | Concentração final |
| Eagle Médio/F12 Modificado Avançado de Dulbecco (DMEM/F12 Avançado) | Meio base | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplemento B27 | 50x | 1x |
| Penicilina/Estreptomicina | 10000U/ml, 10000U/ml | 100U/ml, 100U/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Meio condicionado com R-spondin (U-Protein Express) | 2% | |
| Meio condicionado por Noggin (U-Protein Express) | 2% | |
| N-acetilcisteína | 500mM | 1mM |
| EGF recombinante humano | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Substituto Wnt | 30000x | |
| IL-22 humano recombinante | 10 ug/ml | 2ng/ml |
Tabela 4: Meio de maturação para organoides intestinais humanos.
Discussão
Este protocolo fornece um fluxo de trabalho passo a passo para imagem confocal de células vivas e rastreamento de célula única em organoides intestinais humanos e murinos, construído em torno de dois sistemas experimentais complementares: organoides mosaico que resolvem o comportamento de células individuais dentro de um epitélio denso, e organoides repórter de destino expressando MUC2-mNeonGreen e DEFA5-dsRed para monitoramento em tempo real de transições de tipos celulares secretores.
Comparado a métodos de ponto de tempo fixo, como imunofluorescência ou sequenciamento de RNA de célula única, a imagem ao vivo captura a dinâmica das transições, em vez de instantâneos. Comparado ao rastreamento de linhagem baseado em Cre, ele fornece a resolução temporal para identificar decisões individuais de destino. A abordagem mosaico adiciona comparações internamente controladas dentro do mesmo contexto tecidual, evitando variabilidade confusa de organoide para organoide.
Várias etapas do protocolo são críticas para o sucesso. Para um mosaico com distribuição sal e pimenta, a dissociação dos organoides para células individuais deve ser completa, porém suave: dissociação incompleta produz grandes manchas clonais, enquanto dissociação excessiva reduz a viabilidade (Seção 4.3). A etapa de agregação de 24 horas em uma superfície plana antes de reinserir na BME é necessária para a mistura adequada das duas populações; omitir isso resulta em mosaicos mal integrados (Seções 4.6–4.8). O gerenciamento da fototoxicidade durante a imagem requer calibração cuidadosa, começando com configurações conservadoras do laser e aumentando somente se o software de rastreamento produzir falsos negativos excessivos (Seção 6.8).
As principais limitações estão relacionadas às limitações inerentes dos sistemas organoides e da imagem ao vivo. Os organoides não possuem componentes estromales, vasculares e imunes, que podem influenciar o comportamento celular in vivo. Para microscopia confocal, a profundidade de imagem é limitada a aproximadamente 100 μm a partir do coverslip, além do qual o espalhamento da luz degrada a qualidade do sinal e a precisão do rastreamento. A microscopia multifóton e a microscopia de folha de luz podem aumentar substancialmente essa faixa de profundidade ao custo de instrumentação adicional e adaptação de protocolos. A abordagem de rastreamento semi-automatizada, embora substancialmente mais eficiente do que a anotação manual, ainda requer considerável tempo de correção, especialmente em tecidos densos (Seção 7.4).
Ambas as estratégias são facilmente extensíveis. Ao variar o repórter co-expresso com o marcador nuclear, diferentes aspectos do comportamento de célula única podem ser examinados, desde Miosina-II cortical para dinâmica mecânica até E-cadherina juncional para remodelação de aderências, biossensores de cálcio como tq-Ca-FLITS e ColBD-Twitch, ou biossensores metabólicos como SoNar para o estado celular NAD+/NADH redox, permitindo a leitura simultânea da identidade celular, linhagem e estado fisiológico dentro do mesmoorganoide 9. 25, 26, 27. Ajustar a razão de mistura ajusta a análise: células esparsas e marcadas permitem a atribuição de sinais de membrana por uma única célula, enquanto células esparsas e não marcadas revelam respostas de vizinhança. A estratégia do fate reporter é extensível a qualquer locus endógeno passível de marcação baseada em CRISPR-HOT ou HDR. Combinar ambas as abordagens dentro do mesmo organoide permitiria o acompanhamento simultâneo do compromisso de linhagem e da dinâmica de célula única.
De forma mais ampla, a linha de imagem e análise é aplicável a organoides derivados de outros tecidos epiteliais, incluindo modelos gástricos, cólon, hepáticos e pancreáticos. Organoides derivados de células-tronco pluripotentes induzidas (iPSC) são uma extensão promissora, já que a marcagem nuclear baseada em H2B e a geração de mosaicos por mistura celular são diretamente transferíveis, e o pipeline pode permitir estudos específicos de pacientes sobre destino celular e dinâmicas competitivas. Modelos de embriões sintéticos, como gastruloides e embrióides derivados de células-tronco, também são passíveis de rastreamento de célula única, embora sua geometria mais complexa e maior densidade nuclear possam exigir retreinamento de uma ferramenta semi-automatizada de rastreamento de células organoides modelo de rede neural e adaptação dos parâmetros de imagem. Organoides cerebrais apresentam desafios adicionais devido ao seu grande tamanho e densidade óptica, que limitam a profundidade de imagem confocal. Além disso, organoides cerebrais requerem semanas a meses de diferenciação antes que experimentos de imagem significativos possam ser realizados, aumentando substancialmente os prazos experimentais em comparação com organoides intestinais. Alguns protocolos de organoides cerebrais também dependem da cultura em suspensão em vez da incorporação por BME, o que é incompatível com a abordagem de preparação da amostra descrita aqui e exigiria adaptação a formatos embutidos em matriz ou em superfícies antes da imagem. A microscopia de folha de luz, que oferece redução da fototoxicidade e maior profundidade de imagem, pode ser mais adequada para essessistemas 13. Juntas, essas extensões destacam o amplo potencial do pipeline em diversos sistemas de modelos 3D além dos organoides epiteliais descritos aqui.
Divulgações
H.C. é inventor de patentes relacionadas à tecnologia organoide. Todos os outros autores declaram não haver interesses concorrentes.
Agradecimentos
Esta pesquisa é financiada pelo Ministério da Educação, Cultura e Ciência do Governo dos Países Baixos por meio do projeto NWO Gravitation Material Driven Regeneration (024.003.013 ZWK MDR) e pelo Conselho Europeu de Pesquisa por meio do ERC Advanced Grant GutHormones (nr 101020405)
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | with climate control for temperature and CO2 |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | open source | open source https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | far-red live-cell nuclear dye | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | open source | open source https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | far-red live-cell DNA dye | ||
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | custom order | |
| Wnt3A conditioned medium | homemade | The production of Wnt3A conditioned medium can be found here: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve