Este estudo avalia o tratamento com Qi-fu-yin (QFY) em camundongos 5xFAD. Os resultados mostram que a administração de QFY está associada à melhora do desempenho na aprendizagem e na memória, redução do depósito cerebral de Aβ e da senescência celular, e atenuação dos danos estruturais sinápticos no córtex cerebral.
Artigo de investigação
Efeitos do Qi-fu-yin na Melhoria do Comprometimento Cognitivo e na Redução da Senescência Celular nos Cérebros de Camundongos 5xFAD
* These authors contributed equally
Neste artigo
Resumo
Resumo
Embora o mecanismo do Qi-fu-yin (QFY), uma prescrição da medicina tradicional chinesa, ainda não seja completamente compreendido, ele tem demonstrado potencial terapêutico na doença de Alzheimer (DA). Este estudo teve como objetivo investigar a associação entre o tratamento com QFY e o comprometimento cognitivo em camundongos 5xFAD. Utilizamos força de preensão, marcha, construção de ninho em colônia, caixa condicionada, teste do labirinto aquático de Morris e ELISA para avaliar os níveis da proteína amiloide-β 1-42 (Aβ1-42), Aβ1-40, proteína associada ao crescimento 43 (GAP-43), sinaptofisina (SYN) e proteína da densidade pós-sináptica 95 (PSD-95) no cérebro de camundongos 5xFAD. A análise de citocinas por Luminex foi utilizada para quantificar os níveis do fenótipo secretório associado à senescência (SASP) no córtex. A quantidade de β-galactosidase associada à senescência (SA-β-Gal), deposição de Aβ e espinhos dendríticos no cérebro dos animais foi medida por coloração de SA-β-Gal, imuno-histoquímica e coloração de Golgi-Cox, respectivamente. O tratamento com QFY reduziu drasticamente a carga de placas de Aβ no córtex e diminuiu a expressão de p21 em camundongos 5xFAD, conforme demonstrado por testes de imunofluorescência. Em camundongos 5xFAD, a terapia com QFY melhorou significativamente o desempenho de aprendizado e memória, atenuou a senescência e aumentou as quantidades das proteínas GAP-43, PSD-95 e SYN no córtex dos camundongos. Após o tratamento com QFY, houve uma diminuição significativa da atividade de placas de Aβ e de SA-β-Gal no cérebro, bem como dos níveis de Aβ1-42 e da razão Aβ1-42/Aβ1-40 no hipocampo. Os níveis de IL-1α, IL-1β, IL-6, IL-17A e IFN-γ foram consideravelmente reduzidos no córtex dos camundongos 5xFAD. As análises de PCA e de correlação de Pearson demonstraram uma forte associação negativa entre as citocinas SASP e os níveis de proteínas sinápticas. Esses achados sugerem uma associação entre o tratamento com QFY e a melhora do declínio cognitivo relacionado à idade e dos fenótipos de senescência celular em camundongos 5xFAD, juntamente com a mitigação de danos estruturais sinápticos. Esses resultados apoiam a investigação adicional do QFY como um possível candidato terapêutico para a doença de Alzheimer.
Introdução
Alzheimer's disease (AD)1 is the most prevalent form of dementia, characterized by amyloid-β protein (Aβ), hyperphosphorylated tau proteins (P-Tau), synaptic loss, and chronic inflammation. Currently available medications for AD have a number of side effects and are unable to stop the disease's progression2,3,4,5.
Senescence, which manifests as organism-wide disruptions across cellular and interstitial microenvironments rather than localized organ-specific alterations, is a key risk factor in AD pathogenesis. This systemic dysregulation distinguishes AD progression from single tissue-pathology models by fundamentally changing homeostatic mechanisms across biological systems6,7. Although cellular senescence initially serves as a homeostatic regulatory mechanism, the accumulation of senescent cells eventually causes progressive tissue degradation and persistent inflammatory cascades, fundamentally disrupting physiological homeostasis8. The ensuing inflammation may harm synapses and impair cognitive function9,10.
Cellular senescence is a complex cellular stress response characterized by telomere shortening, permanent cell-cycle arrest, and altered secretory activity11. Additional hallmarks include enlarged, flattened cell morphology, positive senescence-associated β-galactosidase (SA-β-Gal) staining, lipofuscin accumulation, and secretion of SASP factors12. Memory formation is affected by the notable decline in the levels of proteins associated with synaptic plasticity of axons and dendrites, which occurs with cellular senescence13,14. Because synaptic plasticity is essential for learning and memory, disruptions in synaptic proteins contribute to cognitive impairment. These proteins include GAP-43, SYN, and PSD-95. Undoubtedly, synaptic function is affected by reductions in dendritic numbers and functional abnormalities in the brains of the elderly15.
QFY is a traditional Chinese medicine formula derived from Jing Yue Quan Shu. It is composed of Panax ginseng C.A.Mey (Araliaceae), Polygala tenuifolia Willd (Polygalaceae), Rehmannia glutinosa (Gaertn.) Libosch. ex Fisch. & C. A. Mey (Orobanchaceae), Angelica sinensis (Oliv.) Diels (Apiaceae), Glycyrrhiza uralensis Fisch. ex DC. (Fabaceae), Atractylodes macrocephala Koidz (Asteraceae), Ziziphus jujuba Mill. var. spinosa (Bunge) Hu ex H.F. Chou (Rhamnaceae). Research has demonstrated that QFY significantly ameliorates cognitive dysfunction in rats with diabetes-induced brain injury16. Our previous study found that QFY could improve cognitive learning and memory functions impairment in 5xFAD and APP/PS1 mice. In addition, QFY demonstrated high safety in non-clinical studies, and no obvious acute, subacute, or long-term toxic reactions were observed17,18,19. Analysis of the clinical therapeutic effect of QFY showed that AD patients experienced a significant increase in their capacity for activities of daily living and MMSE scores after QFY treatment20. Following three consecutive days of QFY administration in male Sprague-Dawley rats, ten prototype QFY-derived components, including butylidenephthalide, butylphthalide, 20(S)-ginsenoside Rh1, 20(R)-ginsenoside Rh1, and zingibroside R1, were detected in cerebrospinal fluid21,22. However, the therapeutic mechanism of QFY in AD is still unclear. In this study, we investigated the association between QFY treatment, cellular senescence, and AD-related pathological changes in 5xFAD mice.
Although previous studies have demonstrated the neuroprotective effects of QFY in AD models, the specific involvement of cellular senescence in mediating these effects remains unexplored. Moreover, whether QFY confers cognitive benefits through senescence‑associated synaptic preservation, rather than solely through amyloid‑β reduction, has not been addressed. The present study was therefore designed to investigate whether QFY treatment attenuates cellular senescence and whether this attenuation is associated with improved synaptic plasticity in 5xFAD mice.
Protocolo
Todos os experimentos com animais foram aprovados pelo Comitê de Ética em Bem-Estar Animal Experimental da Universidade de Medicina Tradicional Chinesa de Shandong (SDUTCM20221101001).
Fármacos
O pó seco em forma de creme de grânulos QFY foi preparado e testado pelo Centro de Pesquisa e Desenvolvimento Houpu da Lunan Pharmaceutical. Donepezila e Memantina foram adquiridos da Shanghai Yuanye Technology. Foram utilizados camundongos machos 5xFAD com peso corporal inicial entre 19 e 27 g neste estudo. A dose de QFY foi derivada da dose clínica humana de 43 g/dia, o que corresponde a 16,297 g/dia após ajuste para o pó seco em forma de creme de grânulos QFY. A dose média para o presente experimento foi calculada com base na dose clínica humana (16,297 g/70 kg × 9,1 = 2,11861 g/kg/dia). A dose alta foi definida como o dobro da dose média (4,24 g/kg/dia), e a dose baixa como metade da dose média (1,06 g/kg/dia). Todas as soluções medicamentosas foram administradas em volume de 0,1 mL por 10 g de peso corporal.
Para o controle positivo, foi empregada a administração combinada de donepezila e cloreto de memantina. As doses foram determinadas com base nas doses atualmente utilizadas clinicamente (10 mg/dia e 20 mg/dia, respectivamente) e em dados prévios do nosso grupo de pesquisa, resultando em um regime de 1,0 mg/kg/dia de donepezila mais 2,8 mg/kg/dia de memantina, o que corresponde a uma dose combinada total de 3,8 mg/kg/dia. A concentração final da mistura de donepezila–memantina foi preparada como 0,38 mg/mL, calculada como 3,8 mg/kg divididos pelo volume de administração de 0,1 mL por 10 g de peso corporal.
Soluções de QFY em doses baixa, média e alta foram preparadas da seguinte forma: 5,3 g, 10,6 g e 21,2 g do pó seco de QFY foram colocados separadamente em béqueres de 100 mL, misturados com 30 mL de água purificada com agitação completa, transferidos para cilindros graduados e ajustados para um volume final de 50 mL com água purificada, resultando em concentrações finais de massa de 0,106 g/mL, 0,212 g/mL e 0,424 g/mL, respectivamente. Para o controle positivo, 5 mg de donepezil e 14 mg de memantina foram dissolvidos em água purificada e ajustados para um volume final de 50 mL. Os animais de cada grupo receberam a solução correspondente do fármaco uma vez ao dia por gavagem oral.
Animais
Camundongos transgênicos 5xFAD [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] foram criados em laboratório. Os animais foram mantidos em um ambiente de patógenos específicos na Universidade de Medicina Tradicional Chinesa de Shandong, com temperatura de 22–24 oC, umidade de 50–60% e ciclo claro-escuro de 12 horas. Comida e água foram fornecidas aos animais em todos os momentos.
Em 2,5 meses de idade, camundongos machos 5xFAD foram alocados aleatoriamente em cinco grupos: 5xFAD não tratado, donepezil mais memantina, dose baixa de QFY, dose média de QFY e dose alta de QFY. Camundongos machos selvagens (WT) de idade correspondente serviram como grupo controle WT. Os tratamentos foram administrados uma vez ao dia durante 220 dias. (Figura 1).
Testes comportamentais
Teste de força de preensão
A força muscular esquelética dos membros anteriores dos camundongos foi medida utilizando um medidor de força de preensão23. Durante o experimento, o dispositivo de teste foi posicionado horizontalmente, garantindo que o camundongo permanecesse paralelo à superfície da mesa. Após a ativação do dispositivo, o camundongo foi colocado suavemente sobre a placa de preensão. Quando o animal agarrou firmemente a placa, sua cauda foi puxada para trás com força uniforme até que ele soltasse a placa. A força máxima de preensão foi registrada. Esta medida foi repetida três vezes, e a média desses valores foi utilizada para determinar a força de preensão do camundongo.
Teste de marcha
A regularidade da marcha dos camundongos foi medida usando o CatWalk XT. O experimento foi dividido em um período de treinamento e um período de teste24. Um dia antes, os camundongos experimentais foram transferidos para a sala experimental para que pudessem se adaptar ao novo ambiente. Durante o período de treinamento, os camundongos eram colocados no ponto de partida e corriam ao longo do canal até o ponto final. Cada camundongo foi treinado três vezes ao dia. Após 3 dias de treinamento (até que cada camundongo conseguisse atravessar rapidamente o canal), os animais foram devolvidos à gaiola. O período de teste foi idêntico ao período de treinamento, e o software do computador analisava automaticamente cada trajetória de movimento. Pontos verdes eram exibidos se a trajetória fosse qualificada, pontos laranja indicavam trajetórias não qualificadas, e pelo menos três pontos verdes eram necessários por camundongo para que os dados fossem analisados pelo software CatWalkXT 10.0.
Teste da caixa de transferência
O teste do caixote com compartimentos foi utilizado para avaliar a capacidade de evitação ativa condicional em camundongos25O aparelho consistia em uma caixa de passagem (18 cm x 18 cm) acomodada dentro de uma câmara atenuadora de som. O experimento compreendeu um período de aprendizagem de 4 dias seguido por um período de teste de 1 dia. Em cada dia de aprendizagem, os camundongos tiveram um período de adaptação de 120 s na caixa de escape antes do início do treinamento. Cada ensaio iniciou-se com um estímulo condicionado de 6 s (tom de 70 dB, 1000 Hz combinado com luz de 500 lux), seguido por um choque nos pés de 3 s e 0,3 mA aplicado por meio do piso de grades, e concluiu-se com um intervalo interensaio de 12 s. Se o camundongo atravessasse para o compartimento oposto durante o estímulo condicionado, o choque era omitido e a resposta era registrada como evitação ativa. Se o camundongo não atravessasse durante o estímulo condicionado, mas atravessasse durante o choque nos pés, isso era registrado como resposta de evitação passiva. Se o camundongo não atravessou durante todo o ensaio, isso foi registrado como um falha de escape. O treinamento foi repetido por 4 dias consecutivos com 30 ensaios por dia. Durante o período de teste (dia 5), o choque nos pés foi omitido, enquanto todos os outros parâmetros permaneceram iguais aos do período de aprendizagem. O número de respostas de evitação ativa foi registrado como a medida principal de aprendizado e memória.
Labirinto aquático de Morris
O teste do labirinto aquático de Morris foi utilizado para avaliar as habilidades de aprendizado espacial e memória de animais experimentais26. O experimento foi realizado em um tanque com diâmetro de 120 cm e profundidade de 50 cm. O tanque foi preenchido com água turva e branca, e a temperatura foi mantida a 21 °C. Uma plataforma com diâmetro de 10 cm foi instalada 1 cm abaixo da superfície da água em um dos quadrantes. Pistas visuais foram colocadas ao redor da piscina como marcos espaciais para os camundongos. O processo de aprendizado foi conduzido durante quatro dias consecutivos, com cada sessão diária iniciando em um dos três quadrantes. As posições iniciais variaram pseudoaleatoriamente entre os quatro pontos cardeais. Em cada tentativa, o procedimento terminava quando o animal alcançava com sucesso a plataforma. Um tempo máximo de 60 s por tentativa foi estabelecido; caso o animal não localizasse a plataforma dentro desse período, era conduzido cuidadosamente até ela. Após alcançar a plataforma, o animal recebia um breve descanso de 10 s antes de ser devolvido à sua gaiola de origem. Após o término do período de aprendizado, o período de teste começa 24 h depois. Os camundongos são colocados no quadrante oposto ao da plataforma no Dia 5. A latência de fuga no período de teste, o tempo de movimentação no quadrante-alvo e o número de travessias da área original da plataforma submersa foram registrados.
Teste de ninho em colônia
As atividades diárias de animais experimentais foram avaliadas utilizando o teste de ninho em colônia27. O experimento durou 24 h, com três animais por grupo. Após a administração do fármaco no mesmo dia, novas gaiolas foram preparadas e forradas com 6 g de papel macio para ninhada, e fotografias foram tiradas após 6 h, 12 h e 24 h. Ao final do experimento, o papel estava espalhado por toda a gaiola, sem nenhum mordisco dado: 1 ponto. Os pedaços de papel estavam agrupados ao lado da gaiola, mas soltos, sem ninhos formados, sem rasgos ou dobras evidentes: 2 pontos; Os pedaços de papel reunidos e dobrados em um ninho formado, mas relativamente plano, sem rasgos evidentes: 3 pontos; Um ninho profundo com papel amplamente desfiado recebeu pontuação 4. No final do experimento, o tecido não rasgado remanescente (definido como fragmentos de papel com peso >0,1 g que não foram desfiados ou incorporados ao ninho) foi cuidadosamente coletado, secado ao ar e pesado em uma balança eletrônica (precisão: 0,01 g).
Coleta e amostragem de amostras
Coletamos amostras apenas dos grupos WT, 5xFAD e QFY (2,12 g/kg/d). Após a asfixia com CO2, as cabeças foram decapitadas, o hemisfério direito foi rapidamente aberto para separar o hipocampo e o córtex, lavado com solução salina tamponada com fosfato (PBS) e colocado em tubos congelados de 1,5 mL em nitrogênio líquido. Foi armazenado a -80 oC para testes bioquímicos. O hemisfério esquerdo foi fixado por imersão em paraformaldeído a 4% por 24 h, desidratado por imersão em etanol absoluto, embutido em parafina, seccionado a 5 µm e desparafinizado para detecção imunohistoquímica.
Ensaio imunoenzimático (ELISA)
As ELISAs foram realizadas para quantificar os níveis de proteínas-alvo em tecidos cerebrais. Os teores de Aβ1–40 e Aβ1–42 em homogenatos do hipocampo foram medidos utilizando kits comerciais, enquanto os níveis corticais de GAP-43, PSD-95 e SYN foram determinados usando kits provenientes da Jiangsu Enzyme Immunoassay Industry. Todos os procedimentos foram realizados rigorosamente de acordo com os protocolos dos fabricantes. Séries padrão foram preparadas por diluição seriada conforme as instruções do kit. O esquema da microplaca incluiu poços em branco, poços padrão, poços de amostras 5xFAD, poços de amostras tratadas com QFY (2,12 g/kg/d) e poços de tipo selvagem. Antes da carga, todas as amostras foram diluídas pela metade com o diluente fornecido. Os reagentes foram adicionados com a ponteira da pipeta mantida perpendicularmente ao fundo do poço, seguidos de agitação suave para garantir uma mistura completa.
Após o selamento da placa, a incubação inicial foi realizada a 37 °C por 30 min. Durante este período, o tampão de lavagem foi preparado diluindo-se o estoque concentrado com água ultrapura em uma proporção de 1:29 (1 mL de concentrado para 29 mL de água). Após a incubação, a película de selamento foi removida, o líquido descartado e a placa secada levemente. Cada poço foi então preenchido com 200 µL de tampão de lavagem, deixado em repouso por 30 s e esvaziado; o ciclo foi repetido 5 vezes. O reagente marcado com enzima (50 µL) foi posteriormente adicionado a todos os poços, exceto aos brancos, e a placa foi resselada e incubada novamente a 37 °C por 30 min, seguida por uma etapa idêntica de lavagem com cinco ciclos.
Para o desenvolvimento da cor, adicionou-se 50 µL da solução cromogênica A a cada poço, seguido por 50 µL da solução cromogênica B, com mistura suave após cada adição. A placa foi incubada a 37 °C no escuro por 10 min. A reação enzimática foi interrompida pela adição de 50 µL de solução de parada por poço, o que converteu imediatamente a cor azul em amarela. A absorbância (densidade óptica) foi medida a 450 nm utilizando um leitor de microplacas, com os poços em branco servindo como referência; todas as leituras foram obtidas dentro de 15 min após a interrupção da reação.
Luminex
Os níveis corticais de fatores SASP foram medidos utilizando o kit Bio‑Plex Pro Mouse Cytokine 23‑plex Assay, com todos os procedimentos realizados de acordo com as instruções do fabricante. Os reagentes foram retirados da estocagem a 4 °C e deixados em equilíbrio à temperatura ambiente por 30 min antes do uso. As soluções estoque dos padrões foram diluídas em série para gerar uma curva padrão de sete pontos, mais uma poça em branco, conforme protocolo do kit. As microesferas magnéticas foram pré-misturadas e diluídas para a concentração de trabalho recomendada; os anticorpos de detecção foram preparados como soluções de trabalho; e o concentrado do tampão de lavagem foi diluído para 1x com água desionizada. O conjugado PE‑estreptavidina também foi diluído para 1x utilizando o tampão de diluição fornecido.
Para o ensaio, 50 µL de suspensão de microesferas, padrões, controles de qualidade e amostras de tecido diluídas (5,6 µg/µL) foram adicionados sequencialmente às poças designadas de acordo com o layout da placa. Em seguida, a placa foi selada e incubada durante a noite a 4 °C com agitação orbital a 800 rpm. Após a incubação, as microesferas foram lavadas três vezes com 200 µL de tampão de lavagem por poça. Posteriormente, 50 µL do anticorpo de detecção preparado foram adicionados a cada poça, e a placa foi incubada à temperatura ambiente por 1 h com agitação a 800 rpm. Após mais três ciclos de lavagem, 50 µL da solução trabalhadora de PE‑estreptavidina foram adicionados, e a placa foi incubada por mais 30 min à temperatura ambiente nas mesmas condições de agitação. Uma etapa final de lavagem (três vezes com 200 µL de tampão de lavagem) foi realizada, após a qual 150 µL de tampão de lavagem foram adicionados a cada poça, e a placa foi agitada à temperatura ambiente por 2 min a 800 rpm antes de ser lida no instrumento Bio‑Plex.
Coloração por SA-β-Gal e imuno-histoquímica
A coloração por SA-β-Gal foi realizada de acordo com o Kit de Coloração da β-Galactosidase de Senescência. Após a coloração por SA-β-Gal, as seções foram submetidas à recuperação de antígeno mediante aquecimento em tampão citrato (pH 6,0). A atividade de peroxidase endógena foi bloqueada pela incubação das seções em uma solução bloqueadora de peroxidase por 10 min à temperatura ambiente. Em seguida, as seções foram incubadas com um anticorpo primário monoclonal de coelho anti-Aβ₁-₄₂ (1:400) a 4 °C durante a noite. Após lavagem, as seções foram incubadas com um anticorpo secundário IgG anti-coelho/murino por 20 min à temperatura ambiente. Após nova lavagem, a imunorreatividade foi visualizada com DAB por 2 min. Por fim, as seções foram desidratadas, clareadas e montadas com resina neutra para exame microscópico.
Imunofluorescência
Para a coloração por imunofluorescência, cortes em parafina foram desparafinizados em xilol (3 x 15 min) e reidratados em uma série de etanol em gradiente (100%, 95% e 75%; 2 x 5 min cada). A recuperação de antígenos foi realizada imergindo os cortes em tampão de citrato de sódio 1x a 95 °C por 30 min, seguido de resfriamento gradual até a temperatura ambiente. Após três lavagens com solução salina tamponada com fosfato contendo Tween 20 (PBST) (5 min cada), os cortes foram permeabilizados e bloqueados com soro de cabra normal a 10% contendo 0,3% de Triton X‑100 por 90 min à temperatura ambiente. Em seguida, os cortes foram incubados com anticorpos primários contra p21/CIP1/CDKN1A (1:200) e Aβ₁‑₄₂ (1:400) a 37 °C por 2 h. Após quatro lavagens com PBST (5 min cada), os cortes foram incubados com anticorpos secundários conjugados com Alexa Fluor, compatíveis com a espécie (1:500), a 37 °C por 2 h no escuro. Após lavagem adicional (4 x 5 min em PBST), os cortes foram montados com meio de montagem antifade contendo DAPI e analisados usando um microscópio de fluorescência.
Coloração Golgi-Cox
A coloração Golgi-Cox foi realizada utilizando um kit comercial, conforme as instruções do fabricante. As Soluções A e B foram misturadas 24 h antes do experimento. Após a eutanásia dos camundongos, os tecidos cerebrais foram rapidamente removidos, lavados com PBS e imersos na mistura das Soluções A e B. Os tecidos foram armazenados à temperatura ambiente, no escuro, por 6 h, após o que a solução de impregnação foi substituída por solução fresca e a incubação continuou por mais 2 semanas à temperatura ambiente, no escuro (pelo menos 2 mL de solução de impregnação por tecido cerebral). Em seguida, os tecidos foram transferidos para a Solução C e incubados por 24 h, sendo então substituídos por Solução C fresca e incubados por mais 7 dias à temperatura ambiente, no escuro. Os tecidos cerebrais foram seccionados com espessura de 100 µm utilizando um vibrátomo. As seções foram montadas em lâminas revestidas com gelatina e deixadas secar à temperatura ambiente por 3 dias. As lâminas foram lavadas duas vezes com água destilada (5 min cada), seguidas por imersão em uma mistura das Soluções D, E e água destilada (na proporção de 1:1:2) por 15 min. Após mais duas lavagens com água destilada (5 min cada), as seções foram desidratadas em soluções crescentes de etanol (50%, 75% e 95%; 5 min cada), seguidas por quatro lavagens em etanol absoluto (4 min cada) e três lavagens em xilol (5 min cada). Por fim, as seções foram montadas com meio de montagem. As imagens foram capturadas com um microscópio e a densidade de espinhos dendríticos foi quantificada utilizando o ImageJ.
Análise estatística
Todos os resultados foram relatados como média ± DP. Os dados foram analisados e representados graficamente utilizando o GraphPad Prism 8.1.0. O teste t de Student foi usado para comparar dois grupos. Para comparações envolvendo múltiplos grupos, foi utilizada uma ANOVA unidirecional, com comparações aos pares realizadas pelo teste de Dunnett. A significância estatística foi definida em p < 0,05.
Análises multivariadas e de correlação
A análise de componentes principais (PCA) foi realizada utilizando o GraphPad Prism 8.0.1 para visualizar o agrupamento por grupos dos fatores SASP (IL-1α, IL-1β, IL-6, IL-17A, IFN-γ, CCL3, CCL4 e CCL5) entre os grupos WT, 5xFAD e QFY (2,12 g/kg/dia) (n = 8 por grupo). O gráfico de escores foi gerado com base nos dois primeiros componentes principais. Nenhuma transformação de dados foi aplicada antes da PCA. Foi realizada uma análise de correlação de Pearson para avaliar as relações lineares entre os fatores SASP e as proteínas sinápticas (PSD-95, GAP-43 e SYN), bem como Aβ₁₋₄₀, Aβ₁₋₄₂ e a razão Aβ₁₋₄₂/Aβ₁₋₄₀. A análise foi realizada utilizando o GraphPad Prism, com um limiar de significância bicaudal de p < 0,05. Matrizes de correlação e um mapa de calor foram gerados para visualizar a intensidade e a direção das associações.
Resultados
Administration of QFY enhances learning and memory in 5xFAD mice
After QFY administration, a shuttle box test was conducted to assess the conditional active avoidance response of mice (Figure 2A–C). The results showed the number of active avoidances on days 1-4 (Figure 2A, p < 0.05) and the area under the curve (AUC) of active avoidance (Figure 2B, p < 0.01) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05) during the test period were significantly reduced in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly increased the number of active avoidances on day 2 during the learning period in 5xFAD mice (Figure 2A, p < 0.05). The administration of QFY significantly increased the number of active avoidances on days 3 and 4 (Figure 2A, p < 0.05), and the AUC of active avoidance (Figure 2B, p < 0.01 in QFY high-dose group) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05 in QFY low-dose group) during the test period. This data indicates that the ability to perform an active avoidance response was impaired in 5xFAD mice, whereas QFY administration improved it.
We used the Morris water maze to evaluate spatial learning and memory in mice. The results showed (Figure 2D–I) that the escape latency on the first day (Figure 2D, p < 0.05) and AUC of escape latency (Figure 2E, p < 0.01) during learning period, escape latency in testing period (Figure 2F, p < 0.05) were obviously increased in 5xFAD mice compared with WT mice, the number of platform crossings (Figure 2H, p < 0.05) was reduced significantly in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05) and during the testing period (Figure 2F, p < 0.01). The treatment of QFY significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05 in QFY low-dose and high-dose groups, p < 0.01 in QFY medium-dose group) and escape latency (Figure 2F, p < 0.01 in three QFY groups) during the testing period, and also prolonged the time in the target quadrant (Figure 2G, p < 0.05 in low-dose QFY group), increased the number of crossings (Figure 2H, p < 0.05 in low-dose QFY), evidently. These results indicate spatial learning and memory deficits in 5xFAD mice and that QFY treatment ameliorated these deficits.
Administration of QFY alleviates aging in 5xFAD mice
After QFY administration, gait, grip strength, and colony nesting tests were used to evaluate mouse aging. The results (Figure 3A) showed that, compared with WT mice, run duration, run maximum variation, and the step sequence regularity index decreased significantly in 5xFAD mice (p < 0.05). Run average speed (Figure 3A, p < 0.05), right forelimb (RF) stand index (Figure 3A, p < 0.01), left hindlimb (LH) stand index (Figure 3A, p < 0.05), RF max contact (Figure 3A, p < 0.01), right hindlimb (RH) swing speed (Figure 3A, p < 0.05), LH swing speed (Figure 3A, p < 0.01) and duty cycle (FIGURE 3A, p < 0.05) in 5xFAD was significant increased. The treatment of donepezil and memantine increased RH, stand index left forelimb (LF) stand index (Figure 3A, p < 0.05) and decreased LH duty cycle (Figure 3A, p < 0.01), also reduced RH initial dual stance (Figure 3A, p < 0.05) and LH terminal dual stance (Figure 3A, p < 0.01) of 5xFAD mice. The administration of QFY reduced LH duty cycle (Figure 3A, p < 0.05 in QFY low- and p < 0.01 in medium-dose group), RH initial dual stance (Figure 3A, p < 0.05 in QFY low-dose and high-dose group, p < 0.01 in QFY medium-dose group) and LH terminal dual stance (Figure 3A, p < 0.05 in QFY low-dose group, p < 0.01, in QFY medium- and high-dose group), also increased the run duration (Figure 3A, p < 0.05 in QFY low-and medium-dose group), run maximum variation (Figure 3A, p < 0.05 in QFY low- and medium-dose group), step sequence regularity index (Figure 3A, p < 0.01 in QFY low- and medium-dose group), LF stand index (Figure 3A, p < 0.05 in QFY low-dose group) and LH stand index (Figure 3A, p < 0.05 in QFY low-dose group) of 5xFAD mice. These results indicate that 5xFAD mice exhibited an abnormal gait, which QFY treatment restored.
After QFY administration, a grip-strength test was conducted to assess forelimb strength. The experimental data (Figure 3B) show that the forelimb strength of the 5xFAD mice was significantly weaker than that of WT mice (p < 0.01). The administration of donepezil and memantine (Figure 3B, p < 0.01), QFY (Figure 3B, p < 0.01, in QFY low-dose and high-dose groups) significantly increased the grip strength of the 5xFAD mice. These studies suggest that forelimb strength in 5xFAD mice has been enhanced by QFY treatment.
The results of colony nesting test showed (Figure 3C–G) that the nesting score of the 5xFAD mice were significantly lower than the WT mice at 6 h (Figure 3C, p < 0.05), 12 h and 24 h after the start of colony nesting (Figure 3DE, p < 0.01), and the untorn tissue weight was significantly higher of 5xFAD mice (Figure 3F, p < 0.01). Administration with donepezil and memantine just decreases the untorn tissue weight (Figure 3F, p < 0.01). The treatment with QFY increased nesting scores at 12 h (Figure 3D; QFY p < 0.05 in the QFY medium-dose group) and 24 h (Figure 3E; QFY p < 0.05 in the QFY low- and medium-dose groups). Moreover, the untorn tissue weight was significantly lower in the QFY low- and medium-dose groups (Figure 3F, p < 0.01) and in the QFY high-dose group (Figure 3F, p < 0.05). These results indicated that QFY treatment enhanced daily activity in 5xFAD mice.
Treatment of QFY reduces the synaptic structure damage in the cerebral cortex of 5xFAD mice
After QFY treatment, the cerebral cortex of mice was collected to measure the protein levels of GAP-43, PSD-95, and SYN by ELISA. The results (Figure 4A–C) showed that the contents of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) in the cerebral cortex of the 5xFAD mice were significantly lower than those in WT mice. The protein content of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) significantly increased after the treatment of QFY. The results of Golgi-Cox staining (Figure 4D) showed that the length of dendrites in the cerebral cortex of the 5xFAD mice was shorter (Figure 4G, p < 0.05) than that of WT mice. The treatment with QFY tended to increase the length, number, and density of dendritic spines.
Treatment of QFY reduced Aβ deposition and cellular senescence in the brains of 5xFAD mice
Aβ deposition and cellular senescence play important roles in AD pathogenesis. We used a combination of SA-β-Gal staining and Aβ immunohistochemistry to assess co-localization between SA-β-Gal and Aβ plaques. The result showed there was a large amount of SA-β-Gal aggregation and Aβ plaque deposition in the cerebral cortex of 5xFAD mice (Figure 5A), while only a few SA-β-Gal aggregations and Aβ plaque depositions were found after QFY treatment (Figure 5A). In addition, there was co-localization of SA-β-Gal and Aβ plaque.
Immunofluorescence assays revealed that 5xFAD mice brains were heavily laden with both Aβ plaques and p21-positive cells (Figure 5B,C). Administration of QFY significantly curtailed cortical Aβ plaque and attenuated p21 expression in these animals (Figure 5B,C). The results of ELISA showed that compared with WT mice, the content of Aβ1-42 and the ratio of Aβ1-42/ AΒ1-40 was significantly increased in the hippocampus of 5xFAD mice (Figure 5D,F, p < 0.01), while the treatment of QFY reduced them obviously (Figure 5D, p < 0.01; Figure 5F, p < 0.05, respectively).
Senescent cells typically secrete large amounts of SASP factors. The results of Luminex analysis showed the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.01), IL-17A (Figure 5J, p < 0.05), CCL3 (Figure 5K, p < 0.01), CCL4 (Figure 5L, p < 0.01), CCL5 (Figure 5M, p < 0.01) and IFN-γ (Figure 5N, p < 0.01) were significantly increased in cortex of 5xFAD mice. QFY treatment decreased the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.05), IL-6 (Figure 5I, p < 0.05), IL-17A (Figure 5J, p < 0.05), and IFN-γ (Figure 5N, p < 0.01) in the cortex significantly.
These data indicate that cellular senescence appeared in the brain of 5xFAD mice, while the treatment of QFY reduced cellular senescence in 5xFAD mice.
Effects of QFY ameliorating cognitive impairment and reducing the aging of brain cells in 5xFAD mice correlated with synaptic damage
Principal component analysis (PCA) was performed to assess the overall SASP expression profiles (IL‑1α, IL‑1β, IL‑6, IL‑17A, CCL3, CCL4, CCL5, and IFN‑γ) among WT, 5xFAD, and QFY‑treated groups (Figure 6A). The first two principal components accounted for 44.11% and 23.46% of the total variance, respectively. As shown in the PCA score plot (Figure 6A), the WT group was clearly separated from the 5xFAD group. Notably, the QFY‑treated group showed an intermediate position, clustering more closely with the WT group than with the 5xFAD group, suggesting partial normalization of the SASP profile after QFY treatment. Statistical analysis of PC1 scores (Figure 6B) revealed that the 5xFAD group exhibited significantly higher PC1 values than the WT group. PC2 scores (Figure 6C) also showed significant differences between the 5xFAD and WT groups. Loading plot analysis (Figure 6D) indicated that IL‑1α, IL‑1β, and IFN‑γ were the major contributors to PC1, whereas IL‑6 and CCL3 contributed more substantially to PC2.
We performed Pearson correlation analyses between IL-1α, IL-1β, and IFN-γ and the contents of PSD-95, GAP-43, and SYN in the cortex, as well as the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 in the hippocampus, and developed heatmaps to visualize the interplay between synaptic-associated protein and SASP function. IL-1α, IL-1β, and IFN-γ levels positively correlated with the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 (Figure 6E, p < 0.05), and negatively correlated with the content of SYN protein. The levels of IL-1α and IFN-γ were negatively correlated with the content of GAP-43 protein, and IL-1β was negatively correlated with PSD-95 protein (Figure 6E, p < 0.05). These data suggest that IL-1α, IL-1β, and IFN-γ are major contributors to synaptic dysfunction.
Data Availability:
All raw data supporting the findings of this study have been deposited in Figshare and are accessible via the private reviewer link: https://doi.org/10.6084/m9.figshare.33208029.
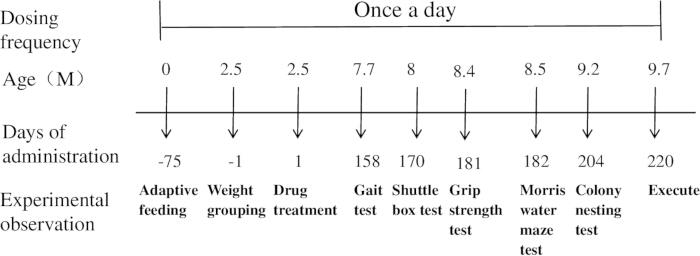
Figure 1: Schematic diagram of the experimental procedure. Please click here to view a larger version of this figure.
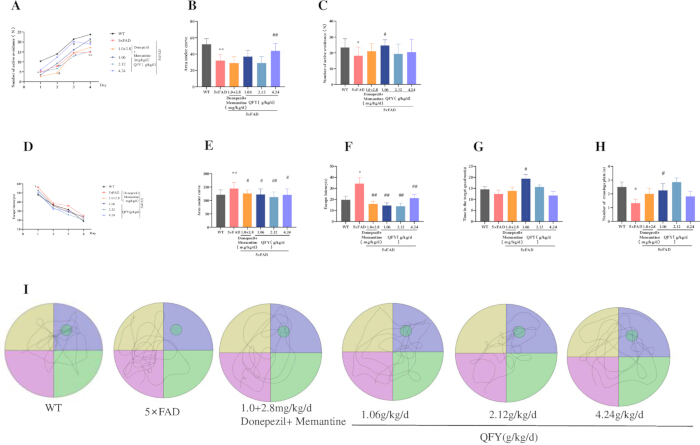
Figure 2: QFY administration improves learning and memory performance in 5xFAD mice. (A–C) Shuttle box test: (A) Number of active avoidance responses during the learning period. (B) Area under the curve (AUC) for active avoidance responses during the learning period. (C) Number of active avoidance responses during the test period. (D–I) Morris water maze test: (D) Escape latency during the learning period. (E) AUC for escape latency during the learning period. (F) Escape latency during the test period. (G) Time spent in the target quadrant. (H) Number of platform crossings. (I) Movement trajectories during the test period. Mean ± SD, n = 11–20 per group, with exact n indicated in each bar. * = p < 0.05, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD; One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
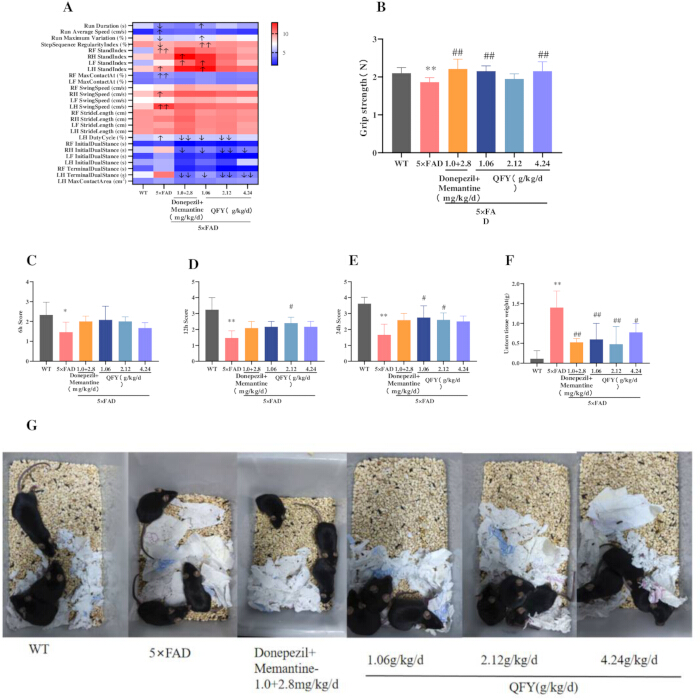
Figure 3: Effects of QFY administration on aging-associated functional measures in 5xFAD mice. (A) Gait heat map. The color scale is based on row‑wise Z‑score normalization, where red indicates values above the group mean, blue indicates values below the group mean, and white represents the mean level. (B) Grip strength test. (C–G) Colony nesting test: (C) Nesting score 6 h, (D) Nesting score at 12 h. (E) Nesting score at 24 h. (F) Untorn tissue weight. (G) Representative images of nests at 24 h. Mean ± SD, n = 3 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5x FAD, One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
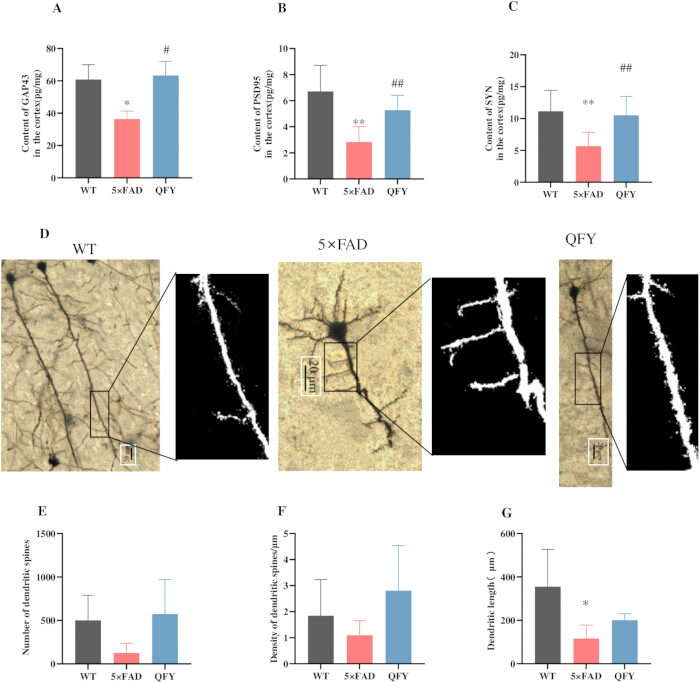
Figure 4: QFY attenuates synaptic structural alterations in the cerebral cortex of 5xFAD mice. (A) Content of GAP-43 in the cortex. (B) Content of PSD-95 in the cortex. (C) Content of SYN in the cortex. (D) Golgi-Cox staining. (E) Number of dendritic spines. (F) Density of dendritic spines. (G) Dendritic length. Mean ± SD, n = 3–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD, Student`s t-test. Please click here to view a larger version of this figure.
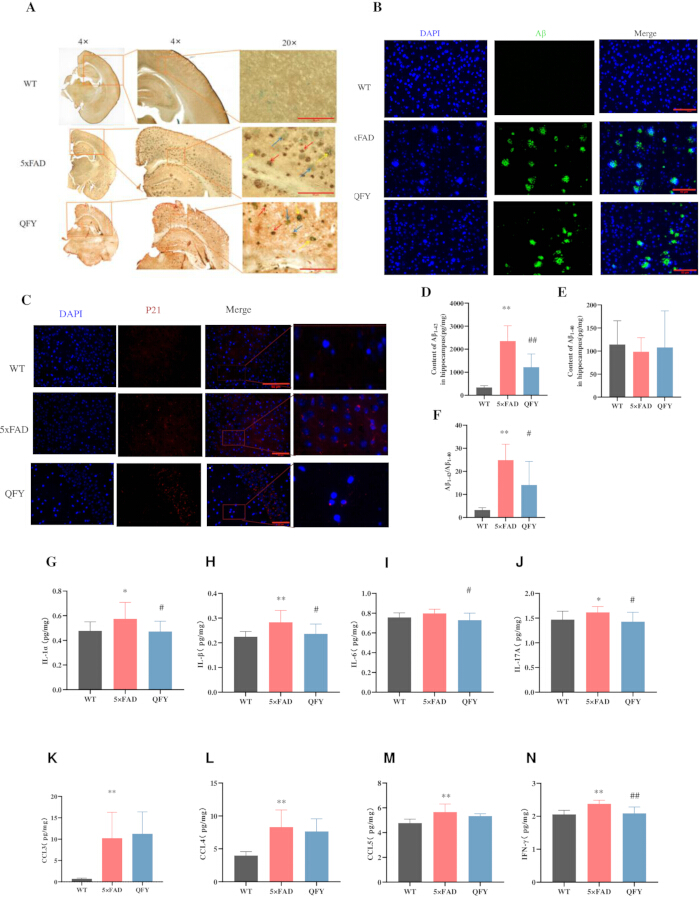
Figure 5: QFY reduced Aβ deposition and cell senescence in the brains of 5xFAD mice. (A) Combined SA-β-Gal staining and Aβ immunohistochemistry, SA-β-Gal (green, blue arrow), Aβ (brown, red arrow), SA-β-Gal + Aβ (yellow arrow), n = 3, Scale bar = 10 µm, 20x objective. (B) Immunofluorescence images showing Aβ in the cerebral cortex after treatment of QFY, n = 3, Scale bar = 50 µm, 40x objective. (C) Immunofluorescence images showing p21in the cerebral cortex after treatment of QFY. n = 1, Scale bar = 50 µm, 40x objective. (D–F) ELISA. (D) Content of Aβ1-42 in the hippocampus. (E) Content of Aβ1-40 in the hippocampus. (F) Aβ1-42/ Aβ1-40. (G–N) Luminex cytokine analysis. (G) Content of IL-1α in the cortex. (H) Content of IL-1β in the cortex. (I) Content of IL-6 in the cortex. (J) Content of IL-17A in the cortex. (K) Content of CCL3 in the cortex. (L) Content of CCL4 in the cortex. (M) Content of CCL5 in the cortex. (N) Content of IFN-γ in the cortex. Mean ± SD, n = 8–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student’s t-test; # = p < 0.05 ## = p < 0.01, vs 5xFAD, Student’s t-test. Please click here to view a larger version of this figure.
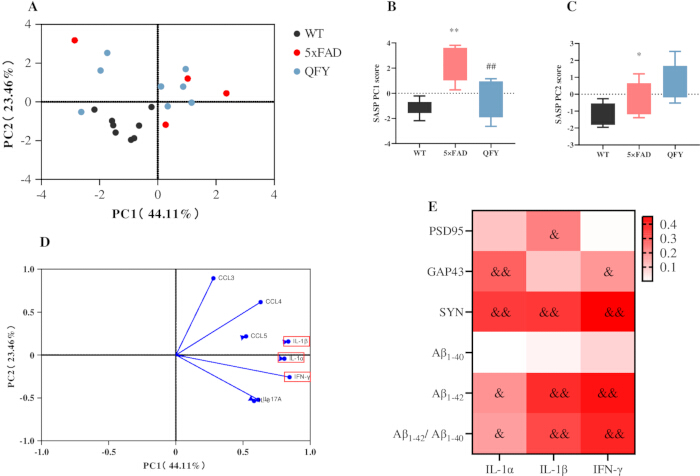
Figure 6: Principal component and correlation analyses of SASP factors, synaptic proteins, and Aβ levels in 5xFAD mice following QFY treatment. (A–D) Principal component analysis (PCA) of SASP factors. (A) PCA score plot. (B) PC1 scores. (C) PC2 scores. (D) PCA loading plot. (E) Heatmap generated from the correlation analysis between the SASP and PSD-95, GAP-43, SYN, Aβ1-40, Aβ1-42, and the ratio of Aβ1-42/Aβ1-40. Colors closer to red indicate higher R-values, while colors closer to white indicate lower R-values. Mean ± SD; n = 8 per group. * = p < 0.05, ** = p < 0.01,vs WT; ## = p < 0.01, vs 5xFAD, & = p < 0.05, && = p < 0.01, indicates a significant correlation. Pearson correlation analysis was used to assess associations between variables. Please click here to view a larger version of this figure.
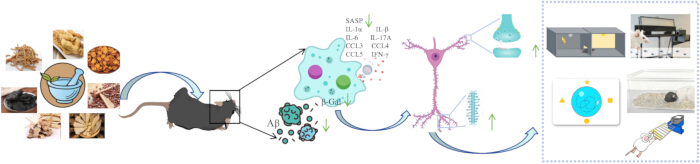
Figure 7: Proposed model of the effects of QFY on age-related cognitive decline and cellular senescence-associated phenotypes in 5xFAD mice. Please click here to view a larger version of this figure.
Discussão
A plasticidade sináptica neural desempenha um papel fundamental na função cognitiva. Nos cérebros de pacientes com DA, os depósitos de Aβ se espalham por diferentes regiões, causando diretamente danos estruturais nas sinapses, perda de sinapses excitatórias e declínio cognitivo28. A GAP-43 (uma proteína da membrana pré-sináptica)29, a PSD-95 (uma proteína de sustentação localizada na membrana pós-sináptica)30 e a SYN (uma fosfoproteína associada às vesículas sinápticas)31 desempenham um papel importante na plasticidade da estrutura sináptica e na patogênese da DA32. O presente estudo descobriu que o tratamento com QFY melhorou a aprendizagem e a memória, reduziu a carga de placas de Aβ e restaurou a estrutura sináptica mediante o aumento do número de espinhas dendríticas e dos níveis proteicos de GAP-43, PSD-95 e SYN nos cérebros de camundongos 5xFAD.
O envelhecimento é um fator de risco crucial no desenvolvimento da DA e promove a produção de Aβ. As características do envelhecimento incluem diminuição da força muscular, desequilíbrio na marcha e comprometimento das atividades básicas da vida diária33,34. A senescência celular, caracterizada pela SA-β-Gal, tem sido relatada como associada ao envelhecimento e ao início de doenças relacionadas à idade, como a DA11,35. A eliminação seletiva de células senescentes prolonga o período saudável de vida e retarda doenças relacionadas à idade36. A remoção de células senescentes por abordagens genéticas ou farmacológicas atenuou a deposição de Aβ e melhorou a função de aprendizado e memória em camundongos modelo de DA37. A terapia combinada com Dasatinibe e Quercetina (D+Q) reduz a senescência de células progenitoras de oligodendrócitos, alivia a neuroinflamação, diminui a placa de Aβ e a atividade de SA-β-Gal, previne o acúmulo de Aβ e o comprometimento cognitivo em camundongos APP/PS137. O tratamento com memantina reduziu significativamente a atividade de SA-β-Gal no cérebro de camundongos SAMP8 e melhorou a aprendizagem espacial e a memória; o mesmo efeito foi observado com a combinação de memantina e donepezila38. O presente estudo constatou que o tratamento com QFY melhorou a marcha, fortaleceu os músculos dos membros anteriores e aprimorou as habilidades nas atividades básicas da vida diária, particularmente ao atenuar a senescência celular, conforme indicado pela coloração para SA-β-Gal no cérebro de camundongos 5xFAD.
Pacientes com DA e modelos animais apresentam astrócitos, micróglias, células endoteliais e neurônios senescentes39,40. A secreção do SASP, que inclui quimiocinas e citocinas inflamatórias, é uma característica distintiva da senescência celular; a secreção excessiva de SASP pode levar à inflamação crônica, resultando em danos teciduais e senescência celular41. A secreção contínua de SASP, incluindo IL-1α, IL-1β, IL-6, IL-8, IFN-γ, CCL2, CCL3, CCL4, CCL5, CXCL1, entre outros, promove inflamação crônica, senescência paracrina de células normais, alterações no metabolismo celular e na regulação epigenética, e a produção contínua de Aβ42,43,44,45. Os níveis de IL-1α, IL-1β, IL-6, IL-17A e IFN-γ estão significativamente aumentados no cérebro de pacientes com DA e em modelos de DA46. Estudos demonstraram que D+Q pode inibir a secreção de fatores inflamatórios, incluindo IL-1α e IFN-γ, além de reduzir placas de Aβ e a atividade de SA-β-Gal em camundongos APP/PS137. O estudo constatou que QFY reduziu a expressão de diversos fatores do SASP, incluindo IL-1α, IL-1β, IL-6, IL-17A e IFN-γ, atenuando assim o fenótipo inflamatório associado à senescência.
A p21 pertence à família CIP/KIP de inibidores da quinase dependente de ciclina e atua como um freio proximal sobre os complexos ciclina-CDK2/4, impondo assim a parada em G1/G2 quando ocorrem estresse celular, danos no DNA e envelhecimento. Um aumento sustentado na abundância de p21 é amplamente interpretado como entrada em um programa senescente estável47,48. Dados emergentes revelam que camundongos 5xFAD abrigam uma carga cerebral de p21 incomumente alta, a qual é acentuadamente atenuada com o tratamento combinado com D+Q49. Em consonância com isso, o presente estudo constatou que a administração de QFY reduziu significativamente as placas corticais de Aβ e atenuou a expressão de p21 nesses animais.
Coletivamente, esses achados sugerem uma associação entre o tratamento com QFY e melhorias na diminuição cognitiva relacionada à idade e nos fenótipos de senescência celular em camundongos 5xFAD, juntamente com dano estrutural sináptico atenuado (Figura 7).
Várias limitações deste estudo devem ser reconhecidas. Primeiro, foram utilizados apenas camundongos 5xFAD machos, e permanece por determinar se os efeitos observados são dependentes do sexo. Em segundo lugar, embora os dados atuais demonstrem fortes associações entre fenótipos relacionados à senescência atenuada e melhora cognitiva, não realizamos experimentos diretos de intervenção mecanicista para estabelecer causalidade. Terceiro, a relevância translacional dos achados para a DA humana é limitada pelas diferenças entre espécies e pela ausência de dados clínicos de farmacocinética. Estudos futuros que incluam animais fêmeas, intervenções específicas para senescência e ensaios clínicos bem desenhados são necessários para ampliar esses achados.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Este trabalho foi apoiado por concessões da Fundação Nacional de Ciências Naturais da China (82205078, 82374062), Fundação de Ciências Naturais da Província de Shandong (ZR2026MS1293, ZR2021QH157), Projeto de Ciência e Tecnologia da Medicina Tradicional Chinesa da Província de Shandong (M20251730), Projetos de Ciência e Tecnologia da Região Autônoma do Xizang, China (XZ202601ZY0167), e Programa de Orientação para Inovação Tecnológica da Província de Shandong (Fundo de Desenvolvimento Científico e Tecnológico Local Orientado pelo Governo Central) (YDZX2023137), com o projeto intitulado 'Desenvolvimento e Pesquisa de Industrialização de Cápsulas Revestidas Entéricas Tongli como Medicamento Tradicional Chinês Novo da Classe 1'.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Fármacos | |||
| Donepezil | Shanghai Yuanye Technology | lote.J15HB188725 | |
| Memantina | Shanghai Yuanye Technology | lote. J21HB189391 | |
| Qi-fu-yin | Centro de Pesquisa e Desenvolvimento Houpu, Lunan Pharmaceutical | lote 2209001 | |
| Testes comportamentais | |||
| CatWalk XT | Noldus | CatWalkXT 10.0 software | |
| Medidor de força de preensão | Bileadbiosci | BLD-ZL-20 | |
| Labirinto aquático de Morris | Shanghai Xinruan Information Technology Co., Ltd | 120 cm | |
| Caixa de transporte | Shanghai Xinruan Information Technology Co., Ltd | XR-XC404 | |
| Anticorpos | |||
| Anti-Aβ1-42 anticorpo | Abcam | Cat# ab201061 | |
| Anticorpo anti-p21/CIP1/CDKN1A | Novus Biologicals | Cat# NBP3-15661 | |
| Kits de ensaio | |||
| Aβ1-40 kit de ELISA | Thermo Fisher Scientific | Cat# KHB3482 | |
| Aβ1-42 kit de ELISA | Thermo Fisher Scientific | Cat# KHB3442 | |
| Kit Bio-Plex Pro Citocina Mouse 23-plex | R&D Sistemas | Cat# LXLBM23-1 | |
| Kit ELISA GAP-43 | Indústria de Imunoensaio Enzimático de Jiangsu | Cat# MM-47506M1 | |
| Kit de coloração Golgi-Cox | BeiJing Biolead Biology Sci & Tech Co | Cat# PK401 | |
| Kit ELISA para PSD-95 | Indústria de Imunoensaio Enzimático de Jiangsu | Cat# MM-45953M1 | |
| Senescência β-Kit de coloração para galactosidase | Beyotime | Cat# C0602 | |
| Kit ELISA para sinaptofisina (SYN) | Indústria de Imunoensaio Enzimático de Jiangsu | Cat# MM-46504M1 | |
| Produtos químicos & Reagentes | |||
| IgG anti-coelho e camundongo (anticorpo secundário) | Iniciador | Cat# S0C1001 | |
| cromógeno de DAB | Iniciador | Cat# S0C1001 | |
| Software | |||
| CatWalk XT | Noldus Information Technology | Versão 10.0 | |
| ImageJ | Institutos Nacionais de Saúde (NIH) | Versão 1.53 |
Referências
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.