Este protocolo descreve a gravação eletrofisiológica extracelular de sinais de marca-passo de natação evocados visualmente a partir do ropalio isolado da águia-fantasma Tripedalia cystophora, fornecendo uma leitura quantitativa do comportamento de evitação de obstáculos para investigação precisa do processamento de informações visuais e da integração sensoriomotora.
Artigo de método
Gravação Eletrofisiológica Extracelular de Sinais de Pace-maker para Natação Evocados Visualmente a Partir do Ropalio Isolado de Tripedalia cystophora
Neste artigo
Resumo
Resumo
A águia-lente Tripedalia cystophora combina olhos com lentes formadoras de imagem e comportamentos visualmente guiados bem caracterizados com um sistema nervoso rupalial tratável de aproximadamente 1000 neurônios, tornando-se um modelo emergente para investigação em nível de sistemas do processamento de informações visuais e da integração sensoriomotora. Neurônios marcapasso natatórios geram comandos motores que controlam diretamente as contrações da campânula, e esses sinais podem ser registrados extracelularmente a partir do nervo do estipe epidérmico de um rúpalo isolado, fornecendo uma medida quantitativa indireta da saída motora induzida visualmente. A intensidade da resposta do marcapasso, quantificada como atividade neural padronizada derivada da contagem de sinais do marcapasso e da frequência instantânea, aumenta com o contraste do estímulo acima do limiar de transição decisória (DTT), permitindo uma avaliação graduada da integração sensoriomotora induzida visualmente. Neste protocolo, abordamos a fabricação de eletrodos de sucção extracelulares, o isolamento de rúpalos, a configuração da câmara de registro, a apresentação de estímulos visuais ao olho inferior com lente, a verificação do tempo de estímulo no nível do equipamento, a colocação do eletrodo sobre o nervo do estipe epidérmico e a aquisição sincronizada de dados eletrofisiológicos e de estímulo utilizando equipamentos de laboratório padrão.
Introdução
Compreender como os sistemas nervosos processam informações sensoriais e as transformam em comportamentos adaptativos é um desafio central na neurociência. Os avanços foram consideráveis em organismos modelo grandes e complexos, como Drosophila melanogaster, cujo cérebro com aproximadamente 200.000 neurônios permitiu uma análise detalhada da organização dos circuitos neurais1, entre outros modelos geneticamente acessíveis com ferramentas sofisticadas de imagem e mapeamento de circuitos. No entanto, a própria complexidade desses sistemas dificulta a obtenção de uma compreensão completa, em nível de sistema, da relação entre entrada sensorial, computação neural e saída comportamental. Na outra extremidade do espectro de complexidade, sistemas pequenos e completamente mapeados, como o de Caenorhabditis elegans, composto por 302 neurônios2, entre outros modelos com número mínimo de neurônios, oferecem um tamanho passível de análise, mas carecem de olhos formadores de imagem e dos comportamentos orientados visualmente que dependem deles.
Tripedalia cystophora, a águia-marinha-cubana do Caribe (Figura 1A), está surgindo como um sistema modelo para processamento de informações visuais em nível sistêmico e integração sensoriomotora, ocupando uma posição distinta entre esses extremos3. O protocolo descrito aqui (Figura 1) foi desenvolvido para tornar todo o potencial experimental desse animal acessível à comunidade mais ampla de neurociência.
T. cystophora possui um sistema visual de sofisticação notável para um animal de sua complexidade neural. Cada uma das quatro estruturas sensoriais chamadas de rópalos carrega seis olhos, incluindo dois olhos com lentes formadoras de imagem: o olho com lente superior (ULE) e o olho com lente inferior (LLE)4 (Figura 1B). Esses não são órgãos fotossensíveis simples — eles são equipados com uma lente de índice de refração graduado do tipo Matthiessen, um design de lente também encontrado nos olhos de vertebrados, e uma retina invertida na qual aproximadamente 600 fotorreceptores no LLE e 400 no ULE se conectam diretamente a neurônios de segunda ordem5,6,7. A composição molecular da maquinaria fotossensível, incluindo opsinas cnidops homólogas às c-opsinas de vertebrados e componentes associados da fototransdução8,9,10, sugere fortemente que esses são fotorreceptores hiperpolarizantes, colocando o sistema visual de T. cystophora na mesma categoria funcional ampla do olho de vertebrados, apesar de sua origem evolutiva independente.
Criticamente, esses investimentos ópticos são acompanhados por comportamentos elaborados, caracterizáveis experimentalmente e guiados pela visão. T. cystophora navega pelo habitat manguezal opticamente complexo utilizando navegação de longa distância e detecção de raios de luz mediada para manter a posição dentro do habitat11,12, e comportamento de evitação de obstáculos para contornar raízes aéreas submersas12,13,14. O arcabouço neuroetológico subjacente a este trabalho sustenta que o comportamento é o único indicador válido do processamento sensorial em animais não linguísticos. Como não podemos perguntar aos animais o que eles percebem, o delineamento experimental deve ser adaptado a estímulos que o animal possa detectar e compreender, e a comportamentos que o animal seja capaz de realizar. Isso implica que as questões experimentais devem ser formuladas nos termos do animal, e não do pesquisador. O comportamento de evitação de obstáculos de T. cystophora exemplifica este princípio. O epitélio do ouriço-do-mar é formado por apenas uma camada celular, tornando a colisão com uma raiz aérea submersa potencialmente fatal devido ao dano ao seu corpo frágil. Como a integração inter-rhopalial ocorre apenas a jusante através do nervo anelar15, nenhum único sistema nervoso rhopalial (RNS) recebe a entrada binocular sobreposta necessária para calcular profundidade a partir da disparidade estereoscópica. Em vez disso, o animal explora uma propriedade fundamental da óptica subaquática: o contraste entre um objeto e a água ao redor diminui rapidamente com o aumento da distância. Um obstáculo de alto contraste é, portanto, um obstáculo próximo, que representa uma ameaça imediata, enquanto um obstáculo de baixo contraste está distante e ainda não representa uma ameaça. O animal utiliza o contraste como um indicador indireto da distância16. Em animais livres para se comportar, o comportamento de evitação de obstáculos (OAB) baseia-se em uma decisão de ir/não ir; um evento é desencadeado quando o animal detecta um obstáculo subaquático cujo contraste excede o limiar de transição de decisão (DTT), o limiar acima do qual o obstáculo está suficientemente próximo para constituir uma ameaça, e inicia a resposta de ir: 3–5 contrações rápidas da campânula, uma mudança de direção de 120–180° e nado rápido para longe do obstáculo14 (Figura 1C). A resposta graduada do marcapasso acima do DTT reflete a urgência graduada da ameaça16. Assim, o OAB fornece um ensaio comportamental altamente acessível para a integração sensoriomotora: um único parâmetro visual bem definido (contraste) controla uma saída motora estereotipada e quantificável, tornando-o um sistema ideal para investigar a base neural da tomada de decisão guiada pela visão.
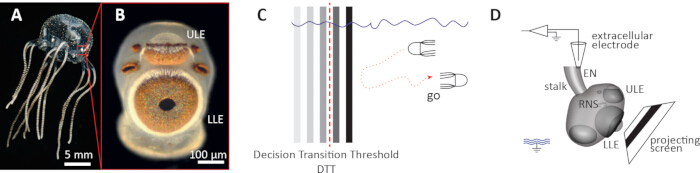
Figura 1: Visão geral da preparação de rópalo isolado de Tripedalia cystophora para gravação eletrofisiológica extracelular. (A) Medusa adulta de T. cystophora. Barra de escala: 5 mm. A caixa vermelha indica a posição de um rópalo na margem do sino. (B) Ampliação de um rópalo isolado. O olho com lente superior (ULE) e o olho com lente inferior (LLE) são olhos formadores de imagem. Barra de escala: 100 µm. Imagem de Dan-Eric Nilsson, reproduzida com permissão. (C) Ilustração esquemática do comportamento de evitação de obstáculos (OAB). Abaixo do limiar de transição de decisão (DTT, linha tracejada vermelha), o animal continua nadando em direção ao obstáculo (não ir). Acima do DTT, o comportamento de evitação de obstáculos é iniciado (ir). (D) Esquema da preparação para eletrofisiologia de rópalo isolado. O rópalo é posicionado de frente para a tela de projeção inclinada. O eletrodo extracelular registra sinais do marcapasso de natação a partir do nervo do pedúnculo epidérmico (EN). RNS: sistema nervoso rópalo; ULE: olho com lente superior; LLE: olho com lente inferior; EN: nervo do pedúnculo epidérmico. O símbolo de terra indica o eletrodo de referência do banho. Clique aqui para visualizar uma versão maior desta figura.
O substrato neural que media esse processamento visual é o SNC, composto por aproximadamente 1000 neurônios por rópálio17. Apesar desse número limitado de neurônios, o SNC é arquitetonicamente sofisticado. Evidências imunohistoquímicas sugerem que ele é organizado em agrupamentos discretos de neurônios que expressam perfis distintos de neuropeptídeos18, compatível com uma arquitetura de processamento compartimentalizada. Sugere-se que a informação visual seja processada por meio de agrupamentos oscilatórios subordinados (AOS), cada um associado a um olho específico no rópálio, os quais convergem em um agrupamento oscilatório terminal (AOT) — proposto como correspondente à população de células marcapasso que gera o sinal de saída motora controlando as contrações da campânula3. Propomos que o AOT integre as informações sensoriais processadas provenientes dos AOS e gere o sinal marcapasso da natação, que comanda a saída motora comportamental, e que a sincronização entre os AOS e o AOT seja responsável pela transformação da entrada visual em saída de controle comportamental3 (Figura 2).
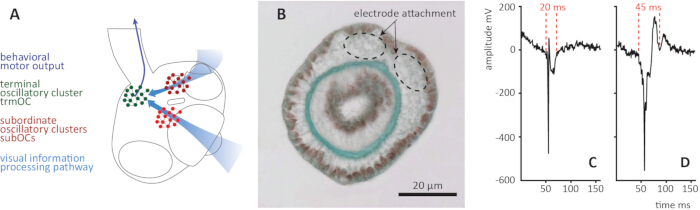
Figura 2: Origem do circuito neural e identificação eletrofisiológica do sinal do marcapasso natatório em Tripedalia cystophora. (A) Esquema do sistema nervoso rópalo. A informação visual é processada por meio de aglomerados oscilatórios subordinados (subOCs, vermelho) associados aos olhos individuais e converge no aglomerado oscilatório terminal (trmOC, verde). Propõe-se que o trmOC integra as informações sensoriais processadas provenientes dos subOCs e gera o sinal do marcapasso natatório que comanda a saída motora comportamental. As setas azul-claro indicam a via de processamento da informação visual; a seta azul-escura indica a saída motora comportamental. (B) Micrografia de microscopia eletrônica de transmissão (TEM) da superfície do estipe epidérmico seccionado. Círculos tracejados indicam os dois pontos de fixação do nervo ramificado do estipe epidérmico na superfície adoral do estipe, correspondentes aos locais de posicionamento dos eletrodos de registro. (C) Sinal semelhante ao potencial de ação. A forma de onda caracteriza-se por um desvio acentuado e estreito com duração de aproximadamente 20 ms (indicado por linhas tracejadas vermelhas). (D) Sinal do marcapasso natatório originado no trmOC. A forma de onda é mais ampla, com duração característica de aproximadamente 45 ms (indicado por linhas tracejadas vermelhas), e exibe uma morfologia composta, refletindo a atividade somada de múltiplos neurônios do trmOC. Embora as amplitudes dos sinais sejam comparáveis entre os dois tipos de sinal, a duração e a morfologia da forma de onda são os critérios confiáveis para discriminação na análise subsequente. Todos os valores eletrofisiológicos estão pós-amplificação (×1000). Modificado com permissão de Bielecki et al.24. Clique aqui para visualizar uma versão maior desta figura.
Essa arquitetura cria uma oportunidade experimental excepcional. O sinal do marcapasso natatório gerado pelo trmOC comanda as contrações da campânula de forma estritamente um-a-um19 e pode ser registrado extracelularmente a partir do nervo do estipe epidérmico de um ropalio isolado13,20. Isso significa que comandos motores evocados visualmente, e por extensão, respostas comportamentais guiadas pela visão, podem ser monitorados por métodos eletrofisiológicos em uma preparação da qual os efetores motores propriamente ditos foram completamente removidos14. O ropalio isolado ocupa, portanto, um ponto intermediário metodológico difícil de alcançar em outros sistemas: oferece o controle experimental de uma preparação reduzida, incluindo a especificação precisa de estímulos visuais espaciotemporais, ao mesmo tempo que mantém uma leitura direta e quantitativa da atividade neural relevante para o comportamento. Em condições não perturbadas, os sinais do marcapasso ocorrem a 0,5–1 Hz; as respostas visualmente evocadas de evitação de obstáculos são caracterizadas por aumentos para 2–3 Hz, fornecendo uma janela de sinal clara para análise14 (Figura 1D).
Essa combinação de propriedades torna o preparo isolado do rópalo de T. cystophora particularmente adequado para a investigação em nível de sistema do processamento visual e da integração sensoriomotora. Este preparo é apropriado para pesquisadores que desejam estudar o processamento visual, a integração sensoriomotora ou a dinâmica de redes oscilatórias em um sistema nervoso acessível, dotado de olhos formadores de imagem e comportamentos guiados pela visão bem caracterizados4. Ele exige equipamentos padrão de eletrofisiologia, um projetor comercial modificado e um microscópio de dissecação, podendo ser implementado em um laboratório sem infraestrutura especializada. O paradigma de aprendizado mecanovisual associativo — o emparelhamento associativo de estímulos visuais e mecanossensoriais simultâneos — previamente descrito para este preparo14, pode ser implementado como uma extensão do protocolo básico de gravação descrito aqui.
Protocolo
Não foi necessária a aprovação ética em pesquisas com animais para este estudo. Os cnidários, incluindo Tripedalia cystophora, estão fora do escopo da Diretiva 2010/63/UE sobre a proteção de animais utilizados para fins científicos, que se aplica apenas a cefalópodes e vertebrados. Os animais utilizados neste estudo foram coletados em riachos de mangue em La Parguera, Porto Rico, EUA, localidade que não é parte no Protocolo de Nagoya sobre Acesso aos Recursos Genéticos e Repartição de Benefícios; portanto, não foi necessária autorização prévia informada nem acordo de acesso e repartição de benefícios. Tripedalia cystophora não está listada como espécie ameaçada ou protegida pela CITES ou por qualquer legislação nacional de conservação aplicável.
1. Configuração do palco e da cadeia de sinal
OBSERVAÇÃO: Todos os componentes de hardware e suas conexões são ilustrados na Figura 3. Consulte a Figura 3 ao longo desta seção. Todas as etapas desta seção devem ser concluídas antes de manipular o animal. Nesta fase, a câmara de gravação não está preenchida com água do mar.
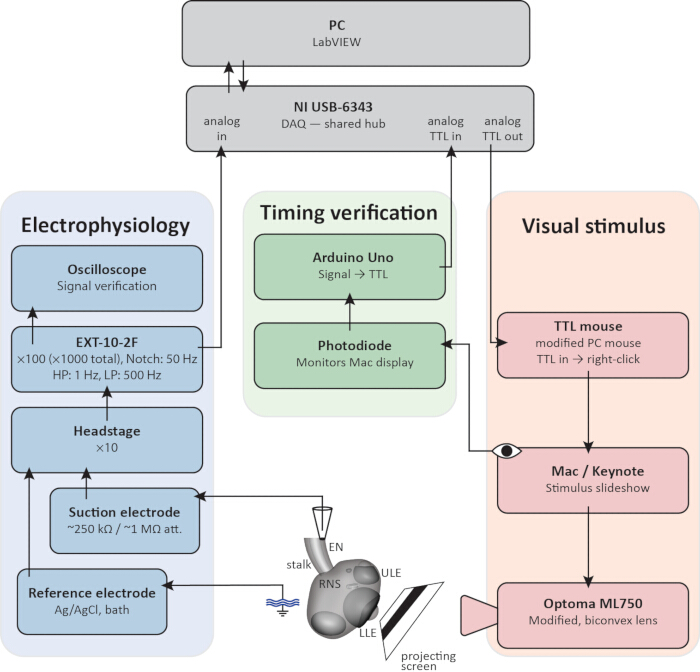
Figura 3: Diagrama de conexões para o preparo de eletrofisiologia extracelular de rópalo isolado. O PC executando o VI e o DAQ (superior, cinza) funcionam como o centro de integração comum para todas as três cadeias de sinal. Cadeia de eletrofisiologia (azul): os sinais do marcapasso natatório são registrados do nervo do estipe epidérmico (NE) por meio de um eletrodo de sucção (~250 kΩ ponta livre, ~1 MΩ ligado) e um eletrodo de referência em pastilha de Ag/AgCl aplicado no banho, amplificados pelo estágio primário EXT-10-2F (×10) e amplificador principal (×100, total ×1000), com filtro passa-banda (HP: 1 Hz, LP: 500 Hz) e filtro rejeita-faixa de 50/60 Hz, monitorados no osciloscópio e adquiridos pelo DAQ. Cadeia de estímulo visual (vermelho): um pulso TTL do DAQ avança a apresentação de slides de estímulo por meio de um mouse de PC modificado (mouse TTL), acionando o projetor DLP (modificado, lente biconvexa) para projetar o estímulo na parede inclinada da câmara de gravação diante do olho de lente inferior (OLI). Cadeia de verificação de temporização (verde): um fotodiodo monitora o quadrado indicador preto e branco na tela do computador, que muda de branco para preto no início do estímulo e retorna ao branco ao final; um Arduino Uno converte esse sinal em um pulso TTL registrado pelo DAQ como a janela de estímulo verificada. SNS: sistema nervoso rópalo; OLS: olho de lente superior; OLI: olho de lente inferior; NE: nervo do estipe epidérmico. Todos os valores de amplitude são pós-amplificação (×1000). Clique aqui para visualizar uma versão maior desta figura.
- Construção da câmara de gravação
- Projetar ou imprimir em 3D uma câmara de gravação com dimensões internas suficientes para acomodar a preparação, a ponta da micropipeta de fixação e a ponta do eletrodo de gravação.
NOTA: Os aspectos funcionais críticos do projeto são a borda para lâmina de cobertura, que posiciona o rópalo na borda da lâmina de cobertura a 2 mm da tela de projeção, e as dimensões da tela (16 mm × 12 mm, inclinada a 60°), que juntas determinam o ângulo subtendido pelo estímulo visual no olho da lente inferior. A câmara descrita aqui possui uma base com pegada de 30 mm × 30 mm e espessura das paredes de aproximadamente 5 mm. Desenhos técnicos são fornecidos na Figura 4. - Coloque a lâmina de cobertura do hemocitômetro Roth de 20 mm × 26 mm sobre as bordas para lâmina de cobertura da câmara de gravação. A lâmina de cobertura permanece no lugar por flutuabilidade negativa e não requer fixação adesiva.
- Monte a câmara de gravação na platina do microscópio utilizando os furos passantes M6. Recomenda-se o uso de uma platina translacional x-y-z, pois facilita o alinhamento preciso da imagem projetada na parede da tela de projeção da câmara de gravação.
- Conecte as portas de entrada e saída dos canais de fluxo contínuo da câmara de gravação (Figura 4A) a um banho de água com controle de temperatura circulando água a 28 °C.
NOTA: A temperatura da câmara de gravação deve ser mantida entre 28–30 °C durante todo o experimento.
- Projetar ou imprimir em 3D uma câmara de gravação com dimensões internas suficientes para acomodar a preparação, a ponta da micropipeta de fixação e a ponta do eletrodo de gravação.
- Configuração óptica (Figura 3, cadeia de estímulo visual)
CAUTELA: Não olhe diretamente para a saída do projetor, especialmente antes da instalação dos filtros de densidade neutra (Seção 4). A remoção do sistema de lentes do fabricante elimina a atenuação interna da luz e pode causar lesão ocular.- Remova o sistema de lentes do fabricante do projetor.
- Monte uma única lente biconvexa (f = 30 mm) na frente da abertura de saída do projetor para focalizar a imagem projetada na parede da tela de projeção da câmara de gravação.
- Alinhe o projetor de modo que a imagem projetada esteja em foco na parede da tela de projeção da câmara de gravação e preencha completamente as dimensões da tela (16 mm × 12 mm).
NOTA: Os filtros de densidade neutra não são inseridos nesta etapa. A intensidade apropriada do filtro é determinada empiricamente durante a calibração biológica na Seção 4.
- Montagem da cadeia de sinal (Figura 3, cadeias de eletrofisiologia e verificação de temporização)
- Conecte o suporte do eletrodo ao braço da cabeça do amplificador fornecido com o amplificador EXT-10-2F e fixe o braço da cabeça em um micromanipulador MM33.
- Conecte a cabeça do amplificador ao amplificador principal. O ganho da cabeça é ×10. Ajuste o ganho do amplificador principal para ×100, resultando em uma amplificação total de ×1000.
- Conecte a saída do amplificador a um canal de entrada analógica de um conversor analógico-digital (DAQ).
- Conecte o DAQ ao PC que executa o LabVIEW (versão 2018 ou similar) via USB.
- Conecte a saída TTL do Arduino Uno a um canal analógico dedicado do DAQ.
- Posicione o fotodiodo sobre o quadrado indicador preto e branco no monitor do computador (passo 1.4.2). Conecte o terminal positivo do fotodiodo ao pino de entrada analógica A0 do Arduino Uno e o terminal negativo ao terra. O código do Arduino que implementa o monitoramento do fotodiodo e a lógica de limiar da saída TTL é fornecido como material suplementar (Arquivo Suplementar 1).
- Projeto da geometria do estímulo (Figura 3, cadeia de estímulo visual)
- Projete o estímulo visual no software de apresentação como uma barra vertical cinza em movimento sobre um fundo branco, imitando um obstáculo de raiz escora de mangue. Defina o fundo como branco máximo.
NOTA: O nível de cinza da barra em relação ao fundo branco determina o contraste do estímulo e é estabelecido durante a caracterização da irradiância na Seção 4. A barra deve subtender 30° de ângulo visual do olho da lente inferior (medido no centro do campo visual) e mover-se a 10° s-1 ao longo da largura total do campo visual, permanecendo sempre dentro do campo visual. O ângulo visual de um obstáculo projetado pode ser determinado por:
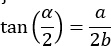
em que α é o ângulo visual, a é a largura da característica da imagem e b é a distância do olho da lente inferior até a tela. O movimento da barra é implementado como uma animação contínua única do objeto (por exemplo, a função "Mover" do Keynote) aplicada ao objeto barra dentro de um único slide, em vez de uma sequência de slides discretos. Um arquivo de estímulo representativo que implementa essa animação é fornecido como material suplementar (Arquivo Suplementar 2). Como a largura e a velocidade da barra são especificadas em ângulo visual e não em unidades físicas, ambas devem ser convertidas para milímetros e mm/s usando a equação acima, com base na distância de trabalho específica e nas dimensões da tela da câmara de gravação, antes de serem inseridas como tamanho do objeto e duração da animação no software de apresentação. - Inclua um pequeno quadrado indicador preto e branco em um canto do slide que mude de branco para preto coincidindo com o início do movimento da barra e retorne ao branco no final do estímulo. Monitore esse quadrado no monitor do computador usando o fotodiodo para verificação do temporização do estímulo no passo 3.3.
NOTA: O quadrado indicador preto e branco aparece necessariamente dentro da imagem projetada na tela da câmara de gravação, pois deve fazer parte do slide para aparecer no monitor do computador durante a apresentação. No entanto, o quadrado é dimensionado para preencher apenas a área receptiva do fotodiodo no monitor do computador. Quando projetado na tela da câmara, é suficientemente pequeno para não ser resolvido como uma característica visual distinta pelo olho da lente inferior, e sua contribuição para a luminância total da tela é desprezível e não inicia respostas de luz LIGADA/DESLIGADA4,13,20. - Avance os slides do software de apresentação usando um gatilho automático ou manual.
- Opção A (automatizada): Construa um mouse com lógica transistor-transistor (TTL) modificando um mouse padrão de PC de modo que um breve pulso TTL de 5 V recebido da saída do DAQ substitua o sinal de clique com o botão direito. Conecte o mouse TTL ao computador de apresentação via USB. Configure o software de apresentação para avançar os slides com entrada de clique com o botão direito.
- Opção B (manual): Dispare manualmente o avanço do slide no momento pretendido para o início do estímulo. Como a janela de estímulo verificada pelo Arduino (Canal 3), e não o próprio sinal de gatilho, é usada como registro definitivo de temporização para análise (passo 6.2.1), o disparo manual não compromete a precisão do temporização, embora exija temporização precisa do operador durante a aquisição e seja menos conveniente do que a opção automatizada.
- Projete o estímulo visual no software de apresentação como uma barra vertical cinza em movimento sobre um fundo branco, imitando um obstáculo de raiz escora de mangue. Defina o fundo como branco máximo.
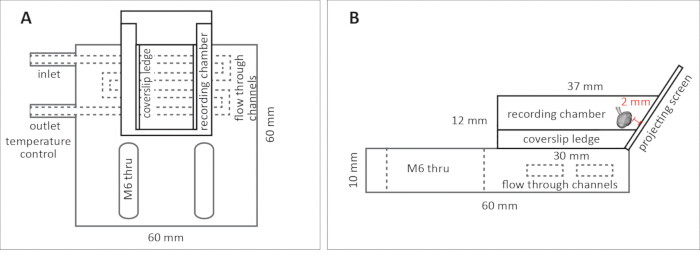
Figura 4: Câmara de gravação para o preparo isolado do rópalo. (A) Esquema em vista superior. A câmara de gravação é cercada por canais de passagem para controle de temperatura com jaqueta de água, com portas de entrada e saída (OD 4,2 mm, ID 2,5 mm) indicadas. Os suportes para lamínula estendem-se longitudinalmente ao longo das duas paredes internas da câmara, sustentando a lamínula do hemocitômetro na altura média da câmara. Furos passantes M6 fornecem pontos de fixação para prender a câmara à platina do microscópio. Dimensões totais: 60 mm × 60 mm. (B) Esquema em vista lateral com dimensões. A câmara de gravação tem uma altura interna de 12 mm e uma largura superior de 37 mm. Uma parede da câmara forma a tela de projeção, inclinada a 60° em relação à vertical, para alinhar-se com o eixo óptico do olho com lente inferior. O suporte para lamínula posiciona o rópalo na borda da lamínula voltada para a tela de projeção. A distância de trabalho de 2 mm indicada reflete a configuração específica da câmara, tela e projetor descrita neste protocolo; leitores que adaptarem este projeto a equipamentos diferentes devem recalcular uma distância de trabalho apropriada para sua própria montagem, utilizando a equação no passo 1.4.1. Canais de passagem para controle de temperatura percorrem a base da câmara de gravação e não entram em contato com o preparo. Clique aqui para visualizar uma versão maior desta figura.
2. Fabricação dos eletrodos
OBSERVAÇÃO: Eletrodos de sucção extracelulares consistem em tubos capilares de vidro com pontas afiladas puxadas para criar uma abertura adequada à adesão por sucção e à gravação de potenciais elétricos. O capilar de vidro atua como isolamento elétrico, garantindo que apenas os potenciais na ponta sejam registrados. Um fio de prata inserido no capilar conecta-se ao amplificador. Esta configuração permite gravações multissensoriais, capturando potenciais elétricos de grupos de células marcapasso na ponta do eletrodo, medidos em relação a um eletrodo de referência aplicado ao banho. Os eletrodos devem ser fabricados no dia do uso, antes da sessão de registro. Eletrodos armazenados são propensos à obstrução da ponta, o que impede a entrada de água do mar no capilar e torna o eletrodo não funcional. As capilares de vidro puxadas possuem pontas afiadas e frágeis. Manipule com cuidado durante a fabricação para evitar lesões por perfuração e descarte capilares quebradas, rejeitadas ou usadas em um recipiente apropriado para materiais perfurocortantes.
- Puxando o tubo capilar de vidro
- Carregue um tubo capilar de vidro borossilicato (1,16 mm de diâmetro interno × 2,00 mm de diâmetro externo × 80 mm de comprimento) no puxador de micropipetas.
- Execute o seguinte programa de puxamento: Linha 1 (×1): aquecimento 535, puxar 0, velocidade 12, tempo 200, pressão 600, rampa 540. Linhas 2–4 (×3): aquecimento 532, puxar 0, velocidade 12, tempo 100.
NOTA: Esses parâmetros são específicos ao instrumento, ao vidro e ao filamento utilizados e podem exigir ajustes em outro equipamento ou após desgaste do filamento; considere-os um ponto de partida, não uma especificação fixa. - Remova o eletrodo puxado com cuidado e armazene-o com a ponta para cima para evitar danos mecânicos.
- Polimento da ponta do eletrodo
- Polidir a ponta para criar uma superfície lisa e selada a vácuo, perpendicular ao eixo do capilar. Consulte as duas opções fornecidas abaixo; a Opção A (microforja) é recomendada.
- Opção A: Polimento com microforja (recomendado)
- Monte o eletrodo puxado em uma microforja.
- Com ampliação de 600× (objetiva de 40×, ocular de 15×), posicione a ponta próxima ao filamento de aquecimento.
- Aqueça e pola a ponta até que a abertura apresente resistência de aproximadamente 250 kΩ (correspondente a ~1 MΩ quando em contato com o tecido). Em ampliação de 600×, isso corresponde a aproximadamente três incrementos na escala do retículo ocular.
NOTA: Para medir a resistência do eletrodo, conecte um multímetro entre o núcleo BNC (conectado ao fio de prata do eletrodo) e o eletrodo de referência do banho (pelota de Ag/AgCl), após o eletrodo ter sido preenchido com água do mar. A medição da resistência elétrica não é necessária para gravações visualmente evocadas padrão, nas quais a qualidade do sinal é o critério principal de adequação do eletrodo (passo 6.1.5); torna-se necessária quando este preparo é usado no paradigma de aprendizagem associativa que exige entrega calculada de corrente, o que está fora do escopo deste protocolo14. - Deixe o eletrodo esfriar completamente antes de removê-lo da microforja.
- Opção B: Polimento manual sem microforja
CAUTELA: Este passo utiliza uma chama aberta (bico de álcool). Mantenha materiais inflamáveis longe da chama e siga as precauções padrão para chamas abertas em laboratório.- Mantenha brevemente a ponta do capilar puxado na chama de um bico de álcool até o vidro derreter e selar a ponta em forma de uma pequena gota.
- Deixe a ponta selada esfriar completamente.
- Coloque uma gota de água deionizada sobre uma folha de lixa fina (grão 1200) e segure o capilar perpendicularmente à superfície do papel.
- Polidir a ponta com pequenos movimentos circulares, alternando entre direções horárias e anti-horárias.
- Continue o polimento com cuidado até que uma pequena quantidade de água carregada com resíduos de vidro seja aspirada para dentro da ponta por ação capilar.
- Acople um tubo de borracha à extremidade oposta do capilar e conecte-o a uma seringa.
- Aplique sucção suave para puxar água deionizada através da ponta, removendo os resíduos de vidro.
- Se os resíduos não forem removidos, pola suavemente por um breve período adicional e repita a etapa de lavagem.
NOTA: A vazão alvo através da ponta finalizada é de aproximadamente 1 cm de coluna de água por 10 s sob sucção suave. O sucesso na fabricação da ponta é definido pelo resultado da gravação (sinal de baixo ruído e alta amplitude), não pela aparência da ponta. Aproximadamente 40%–50% dos eletrodos fabricados com qualquer das opções de polimento produzem tais gravações, embora o fator limitante difira entre elas. No polimento com microforja (Opção A), a falha ocorre mais comumente devido à geometria irregular do poro durante o passo de puxamento (passo 2.1), que o polimento térmico subsequente não consegue corrigir completamente. No polimento manual (Opção B), o sucesso depende principalmente da habilidade do operador; a falha mais comum é um poro excessivamente grande devido ao excesso de lixamento. Um poro liso, de tamanho correto e circular aumenta substancialmente a probabilidade de uma gravação de alta qualidade, mas não a garante — o resultado funcional é o único critério que realmente importa.
- Montagem do eletrodo
- Insira o tubo capilar polido no suporte do eletrodo, certificando-se de que o fio de Ag/AgCl (prata/cloreto de prata) esteja estendido e sem dobras dentro do capilar de vidro, e monte-o no braço da cabeça amplificadora fornecido com o amplificador EXT-10-2F. Fixe o braço da cabeça amplificadora no micromanipulador MM33.
NOTA: Se o fio de prata não estiver clorado, cloride-o eletroquimicamente imergindo tanto o fio de prata do eletrodo quanto um eletrodo de prata sólida separado em solução de KCl 2 M, conectados por fios isolados a uma fonte de corrente contínua de 12 V. Aplique a corrente em intervalos de aproximadamente 2 minutos, inspecionando visualmente o fio entre as etapas; o fio estará suficientemente clorado quando escurecer visivelmente, geralmente dentro de 5 minutos no total. Enxágue bem com água deionizada após a cloração. Um fio não clorado pode introduzir um deslocamento DC grande e instável.
CAUTELA: A cloração eletrolítica em solução de KCl gera gás cloro e gás hidrogênio. Realize em área ventilada. Descarte a solução usada de cloração de KCl conforme as diretrizes institucionais para resíduos perigosos. - Encha o eletrodo imediatamente antes da gravação, aspirando água do mar diretamente da câmara de gravação preenchida para dentro do capilar até que a solução interna alcance a metade do fio de prata. Veja o passo 3.1 para o procedimento de preenchimento.
NOTA: Micropipetas de retenção não exigem as especificações ópticas ou elétricas dos eletrodos de gravação. Eletrodos rejeitados durante a fabricação (passo 2.2) devido a diâmetro excessivo da ponta (resistência abaixo de 250 kΩ) ou geometria excêntrica da ponta são adequados para este fim e devem ser mantidos. A fabricação de micropipetas de retenção dedicadas é desnecessária.
- Insira o tubo capilar polido no suporte do eletrodo, certificando-se de que o fio de Ag/AgCl (prata/cloreto de prata) esteja estendido e sem dobras dentro do capilar de vidro, e monte-o no braço da cabeça amplificadora fornecido com o amplificador EXT-10-2F. Fixe o braço da cabeça amplificadora no micromanipulador MM33.
3. Validação do sistema
Esta seção verifica se todo o sistema de gravação — eletrodo, cadeia de sinal, entrega do estímulo e verificação de temporização — está funcionando corretamente antes da introdução do preparo experimental. A cadeia completa de sinal é ilustrada na Figura 3. Verifique se todas as conexões estão devidamente feitas antes de prosseguir.
- Preenchimento da câmara e preparação do eletrodo
- Preencha a câmara de gravação com água do mar filtrada em 0,20 µm proveniente do tanque de cultivo. Isso garante continuidade na composição química entre o ambiente de cultivo e a câmara de gravação, evitando a exposição do rópalo a compostos estranhos ou alterações na química da água que possam afetar a atividade do marcapasso ou a viabilidade do preparado.
- Preencha o eletrodo de sucção de gravação aspirando água do mar diretamente da câmara de gravação para dentro da micropipeta até que a solução interna alcance a metade do fio de prata. Preencha a micropipeta de retenção com quantidade suficiente de água do mar da câmara de gravação para permitir a adesão por sucção ao cristal.
- Coloque um eletrodo de pastilha sinterizada de Ag/AgCl (prata/cloreto de prata) no banho de gravação e conecte-o à entrada de referência do estágio inicial.
- Conexão à terra e verificação de ruído
ATENÇÃO: Esta montagem opera equipamentos elétricos em proximidade com água do mar. Mantenha todas as conexões elétricas e equipamentos afastados da câmara e de derramamentos, e siga as práticas institucionais de segurança elétrica para trabalhos em ambientes úmidos.- Conecte todos os instrumentos a um único ponto de terra comum (configuração de aterramento em estrela) para evitar laços de terra.
- Monitore o sinal no osciloscópio. Verifique se a linha de base está limpa e livre de ruídos antes de prosseguir.
NOTA: Gaiolas de Faraday geralmente não são utilizadas em nosso laboratório para gravações extracelulares, pois o aterramento rigoroso em estrela demonstra-se consistentemente mais eficaz na eliminação de ruídos elétricos (50/60 Hz) do que o blindagem física.
- Cadeia de verificação de temporização
- Execute o instrumento virtual LabVIEW (VI) (fornecido como material suplementar, Arquivo Suplementar 3). Execute o VI durante a validação do sistema. Isso envia um pulso TTL ao mouse TTL para acionar a construção do estímulo e gera um arquivo .txt de saída que permite verificar se todos os canais — sinal eletrofisiológico, TTL do LabVIEW e TTL do Arduino — estão sendo corretamente adquiridos antes da introdução do preparado experimental.
NOTA: O atraso entre o comando TTL registrado pelo LabVIEW e o início do estímulo verificado pelo Arduino varia de forma imprevisível entre gravações e não é resolvido nesta etapa; ao invés disso, é determinado e corrigido individualmente em cada gravação durante a análise (passo 7.2.1). - Verifique se o pulso TTL do DAQ aciona corretamente a construção do estímulo e se o estímulo visual é entregue à tela de projeção conforme planejado.
- Verifique se o Arduino Uno detecta a mudança no quadrado indicador preto e branco na tela do computador e emite um pulso TTL ao DAQ.
NOTA: O Arduino Uno amostra a tensão do fotodiodo por meio de analogRead(A0). Quando o valor amostrado cai abaixo de um limiar determinado empiricamente (61 na faixa de 0–1023 do analogRead nesta configuração), o pino de saída digital 5 é definido em 5 V (TTL alto); quando o valor retorna acima do limiar, a saída retorna a 0 V. Esse limiar depende da configuração e deve ser recalibrado para cada tela e configuração de iluminação ambiente. - Confirme que o pulso TTL da janela de estímulo do Arduino Uno está sendo corretamente registrado no arquivo .txt gerado pelo VI do LabVIEW, junto com o canal eletrofisiológico e o canal digital TTL do VI.
NOTA: O sinal do fotodiodo não é gravado diretamente pelo DAQ, pois a saída bruta do fotodiodo é muito ruidosa para uma detecção confiável do estímulo na entrada do DAQ. A conversão em um pulso TTL limpo pelo Arduino Uno garante um sinal de temporização confiável e de baixo ruído. O código do Arduino que implementa o monitoramento do fotodiodo e a saída TTL é fornecido como material suplementar (Arquivo Suplementar 1). A taxa de atualização de 1 kHz do Arduino corresponde à taxa de amostragem do DAQ, assegurando que nenhuma informação de temporização seja perdida. - Após a verificação de todos os canais, esvazie a câmara de gravação e remova o eletrodo da câmara em preparação para a Seção 4.
- Execute o instrumento virtual LabVIEW (VI) (fornecido como material suplementar, Arquivo Suplementar 3). Execute o VI durante a validação do sistema. Isso envia um pulso TTL ao mouse TTL para acionar a construção do estímulo e gera um arquivo .txt de saída que permite verificar se todos os canais — sinal eletrofisiológico, TTL do LabVIEW e TTL do Arduino — estão sendo corretamente adquiridos antes da introdução do preparado experimental.
4. Calibração da luz e determinação do contraste
OBSERVAÇÃO: Esta seção estabelece a configuração óptica correta para a estimulação visual do olho da lente inferior e determina os valores de irradiância necessários para os cálculos de contraste. Um ropalio descartável é utilizado na etapa de calibração biológica. A caracterização da irradiância é realizada sem qualquer preparação na câmara. Esta seção é demorada. A calibração biológica, a caracterização da irradiância em todos os níveis de cinza e os cálculos de contraste podem exigir uma sessão dedicada antes do dia de gravação. O ropalio utilizado para calibração biológica deve ser descartado após esta seção e não pode ser usado para gravações.
- Calibração biológica
- Encha a câmara de gravação com água do mar filtrada em 0,20 µm proveniente do tanque de cultivo.
- Isole um rópalo e transfira-o para a câmara de gravação seguindo o procedimento descrito na Seção 5.
- Posicione o rópalo na borda da lamínula voltada para a tela de projeção utilizando a micropipeta de fixação (Figura 1D).
NOTA: Posicionar o rópalo na borda da lamínula em vez da superfície da lamínula tem dois objetivos: primeiro, a borda da lamínula pode ser colocada a uma distância fixa e reprodutível da tela de projeção, garantindo uma distância de trabalho consistente em todas as gravações; segundo, o olho com lente inferior não precisa enxergar através do vidro da lamínula para visualizar a tela, evitando a distorção angular do estímulo visual. A distância entre a borda da lamínula e a tela de projeção determina o tamanho angular aparente de todos os estímulos projetados no olho com lente inferior e deve ser mantida constante em todas as gravações. Na câmara descrita neste protocolo, essa distância é de 2 mm. - Conecte o eletrodo de gravação ao nervo do estipe epidérmico seguindo o procedimento descrito na etapa 6.1.
- Apresente um obstáculo de contraste máximo (c ≈ 1,0, barra preta sobre fundo branco) movendo-se por toda a largura do campo visual e avalie a resposta do sinal do marcapasso (Figura 1C; Figura 5).
NOTA: A medição fotométrica confirmou um contraste máximo alcançável de c ≈ 0,99 entre os níveis de cinza mais claros e mais escuros do sistema de projeção utilizado, refletindo a luminância residual no ponto preto do projetor, e não uma limitação do design do estímulo; essa é a base para a notação aproximada (c ≈ 1,0) usada ao longo deste protocolo para estímulos de contraste máximo.
NOTA: (CRÍTICO) Uma resposta satisfatória consiste em um aumento acentuado na frequência do sinal do marcapasso acima de 2 Hz, ocorrendo como uma rajada breve e sincronizada no tempo quando a borda dianteira do obstáculo atinge o centro do campo visual, em vez de ser sustentada durante toda a apresentação do estímulo, com aproximadamente 5–15 sinais do marcapasso ocorrendo durante essa rajada (Figura 5B). A intensidade da resposta, tanto em frequência quanto em contagem de sinais, aumenta com o contraste do estímulo; portanto, a resposta a um estímulo de contraste máximo (c ≈ 1,0) deve ser a mais forte possível, pois isso reflete a orientação correta do olho com lente inferior, a fixação adequada do eletrodo e a calibração correta do projetor, garantindo uma faixa dinâmica adequada para distinguir respostas em níveis de contraste mais baixos. Isso confirma que os fotorreceptores estão operando dentro de sua faixa dinâmica e não estão saturados por irradiação excessiva. Se nenhuma modulação na frequência do marcapasso for observada, apesar de uma preparação saudável exibindo atividade espontânea do marcapasso entre 0,5–1 Hz, deve-se suspeitar de saturação dos fotorreceptores por irradiação excessiva. Insira um filtro de densidade neutra (por exemplo, Thorlabs NE01A, densidade óptica = 0,1, conforme necessário) na montagem da lente e repita a calibração. Aumente a atenuação progressivamente até obter uma resposta robusta na frequência do marcapasso. Todas as gravações subsequentes devem ser realizadas com essa configuração de filtro. - Uma vez obtida uma resposta biológica satisfatória, registre a configuração do filtro de densidade neutra. Essa configuração é fixa para todas as gravações subsequentes com essa configuração óptica.
- Remova o rópalo da câmara de gravação e descarte-o. O rópalo utilizado para calibração biológica não pode ser usado para gravações devido ao tempo decorrido durante o procedimento de calibração.
- Caracterização da irradiação
- Esvazie a câmara de gravação e certifique-se de que a superfície da tela de projeção esteja seca. Posicione a fibra do espectrômetro diretamente sobre a superfície da tela de projeção e perpendicularmente a ela.
NOTA: A maioria das fibras ópticas de espectrômetros não é à prova d'água. A câmara deve estar vazia e a superfície da tela seca antes de colocar a fibra sobre a tela. - Utilizando o software de apresentação, ilumine uniformemente a tela de projeção com cada nível de cinza a ser medido e registre a irradiação (350–700 nm) utilizando o espectrômetro.
NOTA: Recomenda-se trabalhar do nível de cinza máximo ao mínimo (branco ao preto), pois o espectrômetro tem maior probabilidade de saturação em níveis elevados de irradiação. Pode ser necessário recalibrar o tempo de integração em diferentes pontos da faixa de níveis de cinza para evitar tanto a sobreposição quanto a subexposição. Esse processo em todos os níveis de cinza é demorado e deve ser planejado adequadamente. - Corrija cada valor medido de irradiação em relação ao espectro de absorção da opsin de 500 nm de T. cystophora presente no olho com lente inferior21,22.
NOTA: A correção da opsin é realizada multiplicando-se a irradiação medida em cada comprimento de onda pelo coeficiente de receptância correspondente do modelo de pigmento visual de Govardovskii para um λmax de 500 nm21, e em seguida somando-se os valores ao longo da faixa de comprimentos de onda medidos para obter um único valor de irradiação corrigido pela opsin. Esse cálculo pode ser realizado em qualquer software padrão de planilha eletrônica após a aquisição dos dados brutos de irradiação espectral. - Calcule o contraste de cada nível de cinza utilizando os valores de irradiação corrigidos:

em que Iw é a irradiação corrigida pela opsin do fundo branco e Ig é a irradiação corrigida pela opsin da barra cinza ou preta. Os valores de contraste variam de 0 (barra indistinguível do fundo) a 1 (contraste máximo, barra preta sobre fundo branco). - A partir dos valores de contraste calculados, identifique os níveis de cinza correspondentes aos níveis de contraste exigidos pelo protocolo experimental. Atualize a apresentação do software com esses níveis de cinza.
NOTA: O contraste é uma razão entre valores de irradiação e, portanto, é insensível a mudanças uniformes na saída absoluta da lâmpada em todos os níveis de cinza. A caracterização da irradiação não precisa ser repetida entre sessões de gravação, desde que a configuração óptica permaneça inalterada. No entanto, recomenda-se verificar a estabilidade da irradiação caso sejam observadas mudanças inesperadas na resposta ao estímulo entre sessões.
- Esvazie a câmara de gravação e certifique-se de que a superfície da tela de projeção esteja seca. Posicione a fibra do espectrômetro diretamente sobre a superfície da tela de projeção e perpendicularmente a ela.
<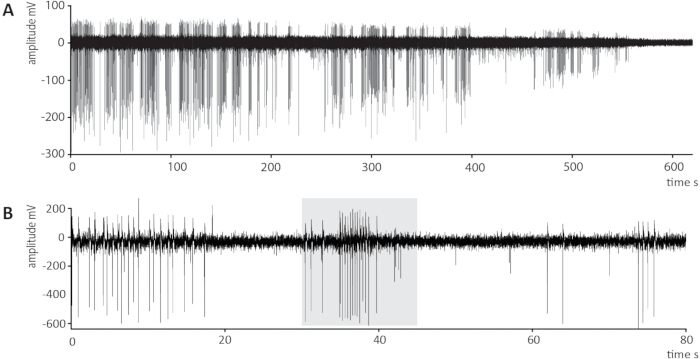
Figura 5: Gravações extracelulares representativas de sinais de marcapasso de natação do rópalio isolado de Tripedalia cystophora. (A) Exemplo de perda progressiva do selamento do eletrodo durante uma sessão prolongada de gravação. A amplitude do sinal do marcapasso começa a diminuir por volta de 200–250 s, refletindo o agravamento do contato elétrico entre a ponta do eletrodo e o nervo do pedúnculo epidérmico, e o sinal é completamente perdido por volta de 580–600 s. Tanto a amplitude do sinal quanto o ruído de fundo diminuem em paralelo, o que é a assinatura característica da perda de selamento. (B) Gravação representativa de uma resposta evocada visualmente de evitação de obstáculo acima do DTT. A área sombreada em cinza indica a janela de estímulo, definida pelo sinal TTL do Arduino, durante a qual uma barra vertical de alto contraste (c = 0,80) foi movida por toda a largura do campo visual do olho da lente inferior. A frequência do sinal do marcapasso aumenta acentuadamente durante a janela de estímulo, compatível com uma resposta visualmente evocada de evitação de obstáculo, e retorna para a frequência basal após o término do estímulo. Sinais espontâneos do marcapasso ocorrendo fora da janela de estímulo são esperados e não constituem respostas evocadas visualmente. Observe que a diferença na escala do eixo y entre os painéis reflete as diferentes qualidades de gravação apresentadas e não implica diferença na intensidade do sinal; em eletrofisiologia extracelular, a amplitude do sinal depende da qualidade do selamento do eletrodo e não da magnitude da resposta fisiológica. Todos os valores são pós-amplificação (×1000). Clique aqui para visualizar uma versão maior desta figura.
5. Isolamento e transferência de rópalos
OBSERVAÇÃO: Este procedimento é realizado cada vez que um rópalio é necessário: uma vez com um rópalio sacrificado para a calibração biológica na Seção 4 e posteriormente para cada rópalio experimental utilizado na Seção 6. Em cada ocasião, todo o equipamento deve ser completamente montado e verificado antes de manipular o animal. O número de rópalios experimentais é determinado pelo delineamento experimental.
- Usando uma pipeta plástica descartável com a ponta cortada para gerar uma abertura de aproximadamente 8 mm de diâmetro, transfira um único animal do tanque de cultivo para uma placa de Petri de 35 mm contendo água do mar filtrada em 0,20 µm proveniente do tanque de cultivo.
- Remova o excesso de água do mar até que o animal fique achatado contra a placa e imóvel, mas sem desidratar.
- Usando tesoura fina (tesoura de Vannas, lâmina de 0,025 mm × 0,015 mm), seccione o estipe que conecta o rópalo à campânula em aproximadamente dois terços do comprimento do estipe medido a partir da inserção do rópalo (ou seja, distal ao rópalo). Imediatamente após a secção, reponha a placa de Petri com água do mar filtrada em 0,20 µm proveniente do tanque de cultivo.
ADVERTÊNCIA: As tesouras de Vannas são extremamente afiadas. Manipule com cuidado durante a dissecação para evitar lesões.
OBSERVAÇÃO: O rópalo pode retrair-se para dentro da cavidade rópalo após a secção. Reabastecer a placa de Petri com água do mar filtrada geralmente desaloja o rópalo. Caso contrário, use uma pipeta de Pasteur para lavá-lo suavemente.
Usando uma pipeta de Pasteur (150 mm), transfira o rópalo isolado para a câmara de gravação de eletrofisiologia posicionada sobre a platina do microscópio. (CRÍTICO) Certifique-se de que o rópalo permaneça submerso em água do mar durante toda e após a transferência. A exposição ao ar danificará irreversivelmente o preparo. - Usando uma pipeta de transferência, devolva o animal ao tanque de cultivo.
OBSERVAÇÃO: A perda de um único rópalo não prejudica significativamente o comportamento normal da águia-box; animais que retenham até mesmo um único rópalo continuam a exibir comportamentos normais de alimentação e de interação com feixes de luz. Além disso, os rópalos regeneram completamente sua funcionalidade, incluindo a restauração da sinalização do marcapasso e respostas normais dos fotorreceptores, dentro de duas semanas após a remoção23. O animal pode ser usado novamente em sessões subsequentes até que todos os rópalos tenham sido removidos. Uma vez que os quatro rópalos tenham sido removidos, o animal não é mais capaz de gerar sinais de marcapasso de natação nem contrações da campânula e deve ser descartado de forma humanitária por meio do descarte padrão em pia de laboratório, conforme o descarte do tecido rópalo (etapa 6.2.5).
6. Gravação
- Posicionamento do rópalo e fixação do eletrodo
- Encha o eletrodo de sucção de gravação puxando água do mar diretamente da câmara de registro para o capilar até que a solução interna atinja a metade do fio de prata. Encha a micropipeta de retenção com água do mar suficiente da câmara de registro para permitir a adesão por sucção ao cristal.
- Monte a micropipeta de retenção em um micromanipulador. Aplique sucção suave por meio de uma seringa Luer-lock acoplada para fixar a ponta da micropipeta ao cristal de sulfato de cálcio (CaSO₄) na extremidade distal do rópalo. O cristal fornece um ponto de ancoragem mecânica robusto sem danificar o tecido neural.
- Usando a micropipeta de retenção, posicione o rópalo na borda da lamínula voltada para a tela de projeção (Figura 1D).
NOTA: (CRÍTICA) A distância entre o olho com lente inferior e a tela de projeção deve ser medida e registrada, pois é necessária para calcular o ângulo subtendido (ângulo de aceitação) das características da imagem projetada no olho com lente inferior usando:
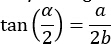
em que α é o ângulo visual, a é a largura da característica da imagem e b é a distância do olho com lente inferior até a tela. A uma distância de trabalho de 2 mm, uma imagem projetada de 16 mm × 12 mm (l × a) subtende aproximadamente 150° horizontalmente e 120° verticalmente do campo visual circular de 170° do olho com lente inferior. A distância de trabalho deve ser mantida constante em todos os registros, pois qualquer desvio invalida os cálculos angulares dos estímulos apresentados e impede a comparação direta entre os registros. - Mantendo a posição do rópalo com a micropipeta de retenção, avance o eletrodo de gravação em direção à superfície transecionada do pedúnculo usando um segundo micromanipulador.
NOTA: O nervo do pedúnculo epidérmico percorre longitudinalmente todo o comprimento do pedúnculo, desde o ponto de fixação do rópalo até o nervo anelar15. Na superfície transecionada, as terminações nervosas do nervo do pedúnculo epidérmico bifurcado estão expostas e disponíveis para contato com o eletrodo na superfície adoral do pedúnculo — o lado voltado para os olhos com lentes (Figura 2B). - Aplique sucção suave por meio da seringa Luer-lock até que um sinal estável seja estabelecido.
NOTA: As terminações nervosas nem sempre são visualmente distinguíveis na superfície transecionada. Posicione a ponta do eletrodo sobre a região onde se espera que o nervo do pedúnculo epidérmico esteja, com base em marcos anatômicos, e aplique sucção suave. A fixação adequada do eletrodo é indicada pelo aparecimento de sinais de marca-passo grandes, claramente resolvidos, com forma de onda consistente na frequência esperada de 0,5–1 Hz (Figura 5). Os sinais de marca-passo são diferenciados de sinais semelhantes a potenciais de ação com base na duração e morfologia da forma de onda (Figura 2C,D)13,20,24. O aparecimento de sinais de marca-passo estáveis é o critério definitivo para o posicionamento correto do eletrodo, não a confirmação visual do contato nervoso. Se nenhum sinal for obtido, libere a sucção, reposicione ligeiramente a ponta do eletrodo na superfície transecionada e reaplique. A sucção excessiva pode obstruir a ponta com detritos teciduais ou danificar mecanicamente a terminação nervosa. A perda progressiva da amplitude do sinal e o ruído de fundo durante o registro indicam perda do selamento do eletrodo (Figura 5A). - Permita que o preparo se aclimate por um mínimo de 10 minutos após a fixação do eletrodo antes de iniciar os registros. Durante esse período, mantenha a tela de projeção iluminada com fundo branco e a barra cinza posicionada estacionária em um dos lados do campo visual, fora do centro.
NOTA: Antes de iniciar a aclimatação, confirme a resposta do preparo apresentando um único estímulo de contraste máximo (c ≈ 1,0); rópalos que não respondem são excluídos do conjunto de dados. O período de aclimatação permite que o preparo se estabilize após a perturbação mecânica da fixação do eletrodo. Manter a tela branca com uma barra estacionária garante que os fotorreceptores estejam adaptados à luz nas condições de base que prevalecerão durante a estimulação visual e que a frequência basal inicial do marca-passo esteja estável antes da apresentação do primeiro estímulo. Essa é uma vantagem prática adicional do uso de software de apresentação para controle de estímulos. O conteúdo da tela durante a aclimatação e entre os registros é diretamente visível e totalmente controlável sem programação adicional. - Uma vez estabelecido um sinal de marca-passo estável, otimize as configurações do filtro passa-faixa no amplificador extracelular para maximizar a relação sinal-ruído e preservar a amplitude e a morfologia da forma de onda do sinal, monitorando o efeito na tela do osciloscópio. Use as seguintes configurações iniciais: passa-alta em 1 Hz e passa-baixa em 500 Hz; ative o filtro rejeita-faixa de 50/60 Hz (acessório integrado EXT-10-2F). Ajuste conforme necessário com base no sinal observado.
NOTA: Elevar o corte do passa-alta acima de 1 Hz atenuará progressivamente os componentes de baixa frequência do sinal de marca-passo, reduzindo sua amplitude e potencialmente comprometendo a detecção do sinal. A amplitude alvo do sinal pós-amplificação para sinais de marca-passo limpos e facilmente identificáveis é de 400–600 mV, com um máximo de aproximadamente 1 V.
- Aquisição de dados
- Configure o VI (fornecido como material suplementar, Arquivo Suplementar 3) para adquirir os seguintes canais simultaneamente por meio do DAQ a uma taxa de amostragem de 1 kHz:
Canal 1: Sinal eletrofisiológico (sinal de marca-passo amplificado e filtrado do EXT-10-2F)
Canal 2: Saída analógica TTL gerada pelo LabVIEW para o mouse TTL
Canal 3: Timestamp analógico TTL do Arduino Uno (registra a janela de estímulo verificada — início definido pelo TTL subindo, término definido pelo retorno do TTL ao nível baixo — conforme detectado pelo fotodiodo que monitora o quadrado indicador preto e branco na tela do computador).
NOTA: O Canal 2 registra o horário pretendido de entrega do estímulo, e o Canal 3 registra a janela de estímulo real verificada. O Canal 3 deve ser usado como registro definitivo de temporização do estímulo para todas as análises. - Defina a duração da gravação de acordo com o protocolo experimental. Para uma sequência padrão de apresentação de estímulos composta por uma linha de base de 30 s antes do estímulo, aproximadamente 15 s de estimulação visual e um período de 35 s após o estímulo, defina a duração total da gravação como 80 s.
NOTA: Este protocolo geralmente utiliza 10 réplicas biológicas (rópalos), preferencialmente obtidas de 10 animais diferentes, para avaliar a intensidade da resposta, conforme Bielecki et al. (2023)14. Em um único preparo, o mesmo rópalo isolado recebe todo o protocolo de estímulo visual, apresentado sequencialmente do contraste mais baixo ao mais alto; essa ordem evita que o animal se habitue à ausência de consequência aversiva em alto contraste, o que poderia reduzir a resposta a estímulos subsequentes de baixo contraste. As gravações sucessivas são iniciadas em intervalos fixos de 2 minutos, resultando em um intervalo de 105 s entre o fim de um período de estímulo e o início do próximo (tempo suficiente para que a frequência do marca-passo retorne à linha de base antes do próximo estímulo). Nenhuma réplica técnica é realizada; cada rópalo recebe uma única apresentação por nível de contraste dentro de sua sequência de estímulos. - O VI do LabVIEW (fornecido como material suplementar, Arquivo Suplementar 3) gera automaticamente um pulso TTL do DAQ para o mouse TTL no momento apropriado dentro da sequência de gravação, avançando o slide e iniciando o início do estímulo visual. Salve os dados adquiridos como um arquivo .txt delimitado por tabulações. Ao usar o VI fornecido, os metadados da gravação são codificados manualmente no nome do arquivo no momento do salvamento.
NOTA: Recomenda-se que os usuários estabeleçam uma convenção consistente de nomenclatura de arquivos antes de iniciar as gravações. Um identificador de preparo é um código exclusivo (por exemplo, número do animal ou da sessão) que permite rastrear uma gravação específica até o rópalo e sessão experimental específicos de onde se originou. O esquema exato de nomenclatura fica a critério do pesquisador, desde que seja sistemático e permita o rastreamento inequívoco de qualquer gravação ao seu preparo correspondente — por exemplo, um nome de arquivo pode combinar a data e hora da gravação com os parâmetros relevantes do estímulo (por exemplo, nível de contraste, dimensões da barra e velocidade). - Após a conclusão de todas as gravações para um determinado rópalo, descarte o tecido do rópalo por meio da disposição padrão no ralo do laboratório.
NOTA: Recomenda-se que os usuários estabeleçam uma convenção consistente de nomenclatura de arquivos antes de iniciar as gravações. Um nome de arquivo sistemático que inclua data, identificador do preparo e condição do estímulo é suficiente para a análise posterior. O software de apresentação é preferido em relação aos estímulos visuais gerados pelo LabVIEW por duas razões práticas: primeiro, garante que a imagem projetada no olho com lente inferior entre as gravações seja conhecida e controlada em todos os momentos, evitando a estimulação visual não intencional por interfaces de software ou telas do sistema; segundo, elimina o risco de escurecimento da tela entre as sessões de gravação, o que provocaria uma resposta de luz-OFF nos fotorreceptores e introduziria atividade espúria do marca-passo no período de linha de base subsequente. O tamanho angular percebido e a velocidade da barra variarão de forma não linear ao longo do campo visual devido à geometria do olho com lente. Essa não linearidade não é corrigida por duas razões: primeiro, animais nadando livremente não se aproximam de obstáculos com velocidade ou direção constantes, tornando a correção angular de relevância natural limitada; segundo, corrigir o tamanho angular exigiria mudanças na luminância geral da tela, o que ativaria a resposta de luz LIGADA/DESLIGADA envolvida na detecção dos feixes de luz de mangue.
- Configure o VI (fornecido como material suplementar, Arquivo Suplementar 3) para adquirir os seguintes canais simultaneamente por meio do DAQ a uma taxa de amostragem de 1 kHz:
7. Análise dos dados
- Discriminação do sinal do marcapasso no Igor Pro
NOTA: Os sinais do marcapasso de natação são discriminados de sinais semelhantes a potenciais de ação no traçado eletrofisiológico bruto antes da análise de frequência. Os dois tipos de sinal podem ocorrer simultaneamente no registro e devem ser distinguidos antes da extração dos dados temporais do marcapasso. Exemplos representativos de ambos os tipos de sinal e suas características de forma de onda distintivas são fornecidos na Figura 2C,D.- Importe o arquivo de dados .txt para o Igor Pro (versão 6.37 ou posterior) utilizando o plugin Neuromatic (versão 2.00).
- Discrimine os sinais do marcapasso de natação dos sinais semelhantes a potenciais de ação com base na duração do sinal e na morfologia da forma de onda.
NOTA: Os sinais do marcapasso de natação têm uma duração característica de aproximadamente 45 ms e uma morfologia de forma de onda composta, refletindo a atividade somada de múltiplos neurônios marcapasso. Os sinais semelhantes a potenciais de ação têm uma duração mais curta de aproximadamente 10 ms e uma forma de onda mais aguda e unitária. A amplitude do sinal isoladamente não é um critério confiável de discriminação, pois os dois tipos de sinal podem atingir amplitudes comparáveis24 (Figura 2C,D). Uma figura representativa ilustrando as características distintivas da forma de onda dos sinais do marcapasso de natação e dos sinais semelhantes a potenciais de ação é fornecida (Figura 2C,D). Recomenda-se que os usuários se familiarizem com ambos os tipos de sinal antes da análise, pois a identificação incorreta introduzirá erros na estimativa da frequência do marcapasso. As características da forma de onda são consistentes dentro de uma mesma preparação, mas podem variar um pouco entre preparações; portanto, os critérios de discriminação devem ser avaliados individualmente para cada preparação, utilizando as características da forma de onda descritas acima como orientação geral, e não como limiares universais fixos. Para formas de onda ambíguas ou intermediárias que não possam ser classificadas com confiança, resolva a ambiguidade na direção oposta ao resultado esperado ou hipotetizado — por exemplo, exclua um evento ambíguo se uma contagem maior de sinais apoiar a hipótese em teste, ou inclua-o se uma contagem menor a apoiar — para evitar inflar a força aparente do resultado. - Extraia o carimbo de tempo de cada sinal identificado do marcapasso de natação para obter uma série temporal de eventos do marcapasso para cada registro, e exporte esses carimbos de tempo (por exemplo, para uma planilha ou arquivo .csv) para análise estatística posterior.
- Análise de frequência
- Calcule a frequência do sinal do marcapasso como o inverso do intervalo entre sinais ao longo do registro.
- Avalie o efeito do estímulo visual comparando a frequência do marcapasso durante o período basal pré-estímulo, o período de estímulo e o período pós-estímulo, utilizando os carimbos de tempo dos sinais do marcapasso corrigidos para o atraso entre o comando TTL registrado no LabVIEW (Canal 2) e o início do estímulo verificado pelo Arduino (Canal 3).
NOTA: O olho da lente inferior responde ao estímulo no tempo do TTL verificado, não ao comando registrado pelo software; portanto, o tempo de início verificado de cada registro é exportado junto com os carimbos de tempo brutos do marcapasso e do TTL para uma planilha (Tabela Suplementar 1) e usado diretamente pelo script de análise SAS para classificar cada sinal do marcapasso em sua janela pré-estímulo, de estímulo ou pós-estímulo (Figura 6); nenhum valor de carimbo de tempo é modificado na etapa da planilha. Em condições basais não perturbadas, a frequência do sinal do marcapasso é de 0,5–1 Hz. As respostas evocadas visualmente de evitação de obstáculos acima do DTT são caracterizadas por um aumento na frequência do marcapasso para 2–3 Hz. O máximo fisiológico é de aproximadamente 4 Hz, correspondendo a um intervalo mínimo entre sinais de 250–280 ms25. Como a frequência basal do marcapasso varia entre preparações, os valores de frequência de cada registro são padronizados em relação à frequência média desse registro, calculada a partir dos períodos pré-estímulo e pós-estímulo (excluindo o próprio período de estímulo). Essa normalização permite comparar a magnitude da resposta entre preparações, independentemente das diferenças na taxa basal do marcapasso. Os procedimentos estatísticos completos para avaliar a significância da resposta, incluindo o modelo não linear usado para comparar os períodos basal, de estímulo e pós-estímulo, são descritos em Bielecki et al. (2023)14; o código correspondente de análise SAS está disponível em doi: 10.17632/csgymw8kjk.1. Um fluxo de trabalho analítico representativo, desde o sinal bruto até a discriminação, cálculo da frequência, padronização e métrica final da resposta, é fornecido na Figura 7.
- Avalie o efeito do estímulo visual comparando a frequência do marcapasso durante o período basal pré-estímulo, o período de estímulo e o período pós-estímulo, utilizando os carimbos de tempo dos sinais do marcapasso corrigidos para o atraso entre o comando TTL registrado no LabVIEW (Canal 2) e o início do estímulo verificado pelo Arduino (Canal 3).
- Calcule a frequência do sinal do marcapasso como o inverso do intervalo entre sinais ao longo do registro.
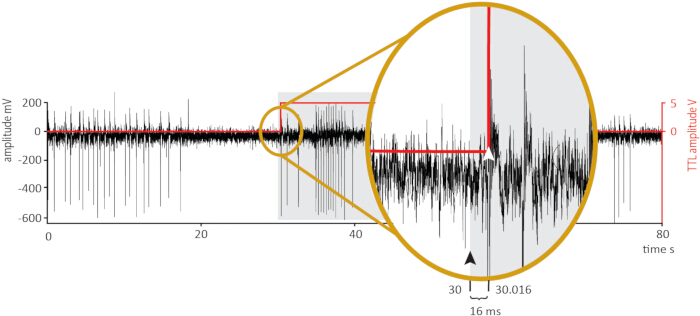
Figura 6: Demonstração representativa da correção de carimbo de tempo do marcapasso para o tempo verificado pelo estímulo. Registro de exemplo ilustrando o atraso entre o comando TTL registrado pelo VI e o início do estímulo verificado pelo Arduino, verificado individualmente para cada registro por meio da cadeia de temporização Arduino/fotodiodo e exportado para uma planilha (Tabela Suplementar 1) para uso direto pelo script de análise SAS na classificação de cada carimbo de tempo do sinal do marcapasso nas janelas pré-estímulo, estímulo ou pós-estímulo. Traço preto (eixo y esquerdo): sinal eletrofisiológico (mV). Traço vermelho (eixo y direito): amplitude TTL (V). A região sombreada em cinza marca a janela nominal de estimulação conforme carimbada pelo comando TTL registrado pelo software. Inseto: vista ampliada do início do TTL. A seta preta marca o tempo de envio do TTL registrado pelo LabVIEW (t = 30,000 s, Canal 2); a seta branca marca o início do estímulo verificado detectado por meio da cadeia Arduino/fotodiodo (t = 30,016 s, Canal 3). O intervalo de 16 ms mostrado é um exemplo representativo dentro da faixa de <20 ms relatada para o acionamento automático TTL-rato (Resultados). Como esse atraso é constante dentro de um determinado registro, a transição de compensação correspondente não é ilustrada separadamente. Clique aqui para visualizar uma versão maior desta figura.
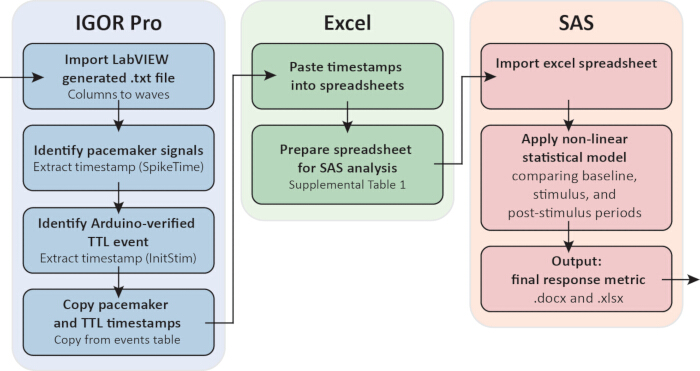
Figura 7: Fluxo de trabalho representativo de análise, desde a gravação bruta até a métrica final de resposta. Os sinais do marcapasso e os registros temporais TTL são extraídos da tabela de eventos do Igor Pro/Neuromatic: os eventos do sinal do marcapasso são identificados pela duração e pela morfologia da forma de onda (passo 7.1.2), e o início do estímulo verificado pelo Arduino (InitStim, Canal 3) é extraído para cada gravação como um carimbo de tempo absoluto, e não como um atraso calculado. Esses carimbos de tempo são copiados para uma planilha (Tabela Suplementar 1), que é preparada para análise no SAS mediante o cálculo do intervalo entre picos (Intval) e do carimbo de tempo médio (MidTime) para cada evento do sinal do marcapasso. O SAS importa a planilha preparada e aplica um modelo estatístico não linear (Bielecki et al., 202314) comparando a frequência do marcapasso nos períodos pré-estímulo, estímulo e pós-estímulo, classificados em relação ao início do estímulo verificado em cada gravação, para gerar a métrica final de resposta (resumo em .docx, tabelas de dados em .xlsx). Clique aqui para visualizar uma versão maior desta figura.
Resultados
Qualidade do sinal e atividade espontânea de marcapasso
Após a fixação bem-sucedida do eletrodo ao nervo do pedúnculo epidérmico seccionado, sinais espontâneos de marca-passo devem ser imediatamente evidentes no osciloscópio. Uma gravação de alta qualidade é caracterizada por sinais de marca-passo grandes e bem definidos, com amplitude pós-amplificação de 400–600 mV, ocorrendo em uma frequência espontânea estável de 0,5–1 Hz, sobre uma linha de base de baixo ruído (desvio de pico de aproximadamente 10–15 mV em ambos os lados do zero, correspondendo a uma relação sinal-ruído de aproximadamente 27–40:1 dentro da faixa de amplitude alvo) (Figura 5B). Gravações com amplitude de sinal tão baixa quanto 100 mV podem ser analisadas, mas aumentam substancialmente o tempo de discriminação do sinal no Igor Pro e não são recomendadas, especialmente para operadores inexperientes. A morfologia da forma de onda composta do sinal de marca-passo, que reflete a atividade somada de múltiplos neurônios trmOC, distingue-o dos sinais mais curtos e agudos, semelhantes a potenciais de ação, que também podem estar presentes na gravação24 (Figura 2C,D). Conforme descrito na etapa 7.1, esses dois tipos de sinal devem ser discriminados antes da análise com base na duração do sinal (~45 ms para sinais de marca-passo versus ~10 ms para sinais semelhantes a potenciais de ação) e na morfologia da forma de onda. A amplitude isoladamente não é um critério confiável de discriminação. A discriminação de sinais neste protocolo foi realizada por um único operador experiente; portanto, estatísticas formais de confiabilidade interexaminadores não foram calculadas (ver Discussão, Limitações).
Resposta de marcapasso evocada visualmente
Em um preparo saudável e responsivo, a apresentação de um estímulo de barra vertical em movimento acima do DTT ao olho da lente inferior produz uma resposta clara e travada no tempo pelo marcapasso. A frequência do sinal de marcapasso aumenta para 2–3 Hz, coincidindo com a passagem da borda dianteira do obstáculo pelo centro do campo visual, e retorna à frequência basal após o término do estímulo14 (Figura 5B). A temporização do início do estímulo foi verificada utilizando a cadeia de temporização Arduino/fotodiodo (etapa 3.3), em vez de confiar no carimbo de tempo informado pelo LabVIEW. Ao usar o mouse TTL para avançar o software de apresentação, a faixa verificada é <20 ms; utilizando acionamento manual (um operador clicando em um mouse não modificado sincronizado com o início desejado), a faixa verificada é de 100–150 ms. Como a análise da resposta utiliza o início verificado (Canal 3) em vez do gatilho informado pelo software (Canal 2), essa faixa não afeta a quantificação da resposta, independentemente do método de acionamento. Esse aumento de frequência constitui o correlato eletrofisiológico do comportamento de evitação de obstáculos observado em animais nadando livremente, e sua presença confirma tanto a viabilidade do preparo quanto o alinhamento óptico correto do olho da lente inferior com a tela de projeção.
A magnitude da resposta do marca-passo é avaliada utilizando a frequência instantânea do sinal, calculada como o inverso do intervalo entre sinais consecutivos do marca-passo. Esta abordagem exige um mínimo de dois sinais consecutivos do marca-passo para estabelecer um valor de frequência, proporcionando uma proteção inerente contra detecção falsa positiva de resposta a partir de sinais isolados únicos.
O contraste do estímulo de barra em movimento determina a magnitude da resposta evocada. Em Bielecki et al. (2023)14, foram utilizados três níveis de contraste (c = 0,20, 0,40 e 0,80), espaçados um f-stop entre si. Esses valores específicos de contraste foram escolhidos para manter a duração total do protocolo dentro da janela viável de gravação de aproximadamente 1 h. Pesquisadores que investiguem os limites de sensibilidade ao contraste do olho da lente inferior, ou outras propriedades específicas da resposta visual, devem selecionar níveis de contraste apropriados à sua questão experimental, em vez de adotar esses valores de forma prescritiva.
Gravações subótimas e modos de falha
Na prática, aproximadamente 90% (9 de 10) das preparações que atendem ao critério de viabilidade de aclimatação (passo 6.1.6) acabam gerando atividade espontânea estável e uma resposta visual evocada mensurável; essa proporção depende fortemente da experiência do operador. As preparações restantes geralmente falham por um dos seguintes motivos: o modo de falha mais comum é a perda progressiva do selamento do eletrodo durante a sessão de gravação. Isso se manifesta como uma redução gradual tanto na amplitude do sinal do marca-passo quanto no nível de ruído de fundo, refletindo o agravamento do contato elétrico entre a ponta do eletrodo e a terminação nervosa (Figura 5A). Se esse padrão for observado, a sucção deve ser liberada e reaplicada após reposicionar ligeiramente a ponta do eletrodo na superfície do pedúnculo seccionado. Se a amplitude do sinal não se recuperar, a preparação deve ser avaliada quanto à viabilidade mediante verificação da presença de atividade espontânea do marca-passo. A ausência total de sinal após tentativas de religação, em uma preparação que foi isolada por mais de 1 h, provavelmente reflete deterioração da preparação e não falha do eletrodo, devendo-se utilizar uma preparação nova.
Um segundo modo de falha é a ausência de uma resposta evocada visualmente, apesar de uma atividade espontânea estável do marcapasso. Isso deve levar à reavaliação da configuração óptica antes de concluir que o preparo é inresponsivo. As causas mais comuns são o desalinhamento do olho da lente inferior em relação à tela de projeção e a saturação dos fotorreceptores devido à irradiação excessiva. O procedimento de calibração biológica descrito na etapa 4.1.5 deve ser repetido, e a atenuação do filtro de densidade neutra deve ser aumentada, se necessário. Também deve-se verificar se o estímulo da barra em movimento permanece dentro do campo visual durante todo o seu deslocamento, pois a saída do estímulo do campo visual provocaria uma resposta de DESLIGAMENTO DA LUZ e introduziria atividade espúria do marcapasso no registro.
Um terceiro padrão — ruído de fundo elevado obscurecendo os sinais do marca-passo — reflete mais comumente um problema de aterramento ou interferência da rede elétrica. A configuração de aterramento em estrela descrita na etapa 3.2.1 deve ser verificada, e o filtro rejeita-banda de 50/60 Hz deve ser confirmado como ativado.
Arquivo Suplementar 1: Sketch do Arduino. Implementa a detecção do início do estímulo baseada em fotodiodo: o Arduino Uno amostra o fotodiodo, monitorando o quadrado indicador preto e branco na tela de apresentação (etapa 1.4.2) a 1 kHz, converte o sinal analógico bruto em um pulso digital TTL limpo por meio de comparação de limiar e emite esse pulso como sinal verificado de temporização do estímulo (Canal 3, etapa 6.2.1).Clique aqui para baixar este arquivo.
Arquivo Suplementar 2: Exemplo de arquivo de estímulo. Exemplo de arquivo de software de apresentação (Keynote) implementando o estímulo visual de barra em movimento como uma animação contínua de um único objeto e o quadrado indicador preto e branco para verificação de temporização (passo 1.4). Leitores que criarem suas próprias sequências de estímulo devem garantir que a tela permaneça estável por um período adequado de acomodação antes do início de cada estímulo; o laço de retroalimentação com fotodiodo/Arduino (passo 3.3) verifica a temporização real do estímulo independentemente do software de apresentação ou do design do slide utilizado.Clique aqui para baixar este arquivo.
Arquivo Suplementar 3: Instrumento Virtual LabVIEW (VI). Configure o DAQ NI USB-6343 com dois canais de entrada analógica — AI0 (sinal eletrofisiológico do amplificador) e AI1 (TTL de início do estímulo verificado pelo Arduino, sinal de retorno do fotodiodo) — e um canal de saída analógica, AO0, que envia um pulso TTL ao mouse TTL no momento programado do estímulo para avançar o slide no software de apresentação. O arquivo de saída .txt resultante registra três colunas: o sinal eletrofisiológico (AI0), o registro de carimbo de tempo do comando de gatilho AO0 feito pelo LabVIEW (um registro de software, não um sinal reaquisitado) e o TTL verificado pelo Arduino (AI1).Clique aqui para baixar este arquivo.
Tabela Suplementar 1: Formato do arquivo de entrada do SAS. Definições das colunas e um exemplo prático para a planilha enviada ao SAS para análise estatística (passo 7.2.1). Quatro carimbos de data/hora consecutivos do sinal do marca-passo provenientes de uma gravação representativa ilustram a obtenção do intervalo entre picos (Intval) e do carimbo de data/hora do ponto médio (MidTime), usados no cálculo da frequência; o último evento listado não possui valor de Intval/MidTime, pois não existe um carimbo de data/hora subsequente para completar o intervalo.Clique aqui para baixar este arquivo.
Discussão
Várias etapas deste protocolo são fundamentais para obter gravações confiáveis. A mais importante é a fabricação e preparação do eletrodo de sucção. Embora qualquer eletrodo que otimize a relação sinal-ruído seja aceitável para gravações padrão de marcapasso evocado visualmente, uma resistência acoplada de aproximadamente 1 MΩ torna-se especificamente crítica quando o preparado é usado para a aplicação de um estímulo incondicionado elétrico, pois é necessária para calcular a corrente aplicada14. Apenas para fins de gravação, o critério principal é a qualidade do sinal, e não um valor específico de resistência.
Igualmente crítico é a calibração biológica do sistema óptico antes de iniciar as gravações (passo 4.1.5). Como a saída do projetor, a configuração da lente e a refletância da tela interagem para determinar a irradiância efetiva na lente inferior do olho, não é possível especificar um valor universalmente aplicável de irradiância. A calibração biológica (usando a resposta de frequência do marcapasso a um estímulo de contraste máximo como critério para o alcance dinâmico do fotorreceptor) fornece um método autoválido e independente de hardware para estabelecer a intensidade apropriada do estímulo. Este passo não deve ser omitido, pois a saturação do fotorreceptor causada por irradiância excessiva abolirá as respostas do marcapasso evocadas visualmente e poderá ser confundida com uma preparação não responsiva.
Manter a submersão do rópalio durante todo o isolamento e transferência é essencial. O sistema nervoso rópalial é extremamente sensível à dessecação, e até mesmo uma breve exposição ao ar pode danificar irreversivelmente o preparo. Todos os passos de transferência devem ser realizados na presença de água do mar, e a câmara de gravação deve ser preenchida com água do mar do tanque de cultivo filtrada em 0,20 µm antes da introdução do rópalio.
Por fim, a colocação dos eletrodos na superfície do pedúnculo seccionado exige paciência. Os terminais nervosos epidérmicos do pedúnculonem sempre são visualmente identificáveis, e a colocação correta deve ser confirmada pela aparência de sinais espontâneos de marca-passo no osciloscópio.
A causa mais comum de falha na gravação é a perda do selamento do eletrodo durante a sessão. Para minimizar esse risco, todos os protocolos devem ser concluídos dentro de uma hora após o isolamento do rópalio. O limite de uma hora recomendado aqui é uma escolha prática conservadora, refletindo a expectativa geral de que uma preparação neural isolada, desconectada do restante do animal, não pode ser considerada representativa da função fisiológica intacta indefinidamente, mesmo quando a atividade de marcapasso persiste. Rópalios isolados permanecem viáveis, no sentido de gerar sinais de marcapasso detectáveis, por um período consideravelmente mais longo do que a janela de gravação utilizada neste protocolo, até aproximadamente 5 h após o isolamento; no entanto, não foi caracterizado sistematicamente se as respostas registradas no final dessa janela continuam plenamente representativas de uma preparação intacta, e o limite de 1 h é usado como uma margem conservadora, e não como um limiar precisamente definido. A perda progressiva do selamento do eletrodo é uma falha técnica distinta e facilmente identificável, sendo a causa mais comum de perda de sinal em uma única sessão de gravação (ver abaixo), mas isso não exclui a possibilidade de contribuição do estado da preparação para mudanças mais sutis na resposta ao longo do tempo. Se ocorrer perda de selamento durante uma gravação, a sucção pode ser liberada, o eletrodo reposicionado sobre a superfície do pedúnculo seccionado e a sucção reaplicada. No entanto, se a preparação tiver sido isolada por mais de uma hora, é aconselhável iniciar uma nova preparação em vez de investir tempo em solucionar problemas de uma preparação em declínio.
As configurações de filtro devem ser tratadas como pontos iniciais, e não como parâmetros fixos. Os valores de filtro passa-banda especificados neste protocolo (passa-alta em 1 Hz, passa-baixa em 500 Hz, rejeição de 50/60 Hz) são aqueles que otimizam a relação sinal-ruído no ambiente de gravação dos autores. Laboratórios com diferentes níveis de interferência elétrica ou que utilizam modelos distintos de amplificadores podem precisar ajustar empiricamente essas configurações nos controles do amplificador, monitorando o sinal no display do osciloscópio no início de cada sessão.
Se a atividade marcapasso espontânea estiver ausente após a fixação do eletrodo, o preparo deve ser avaliado antes de solucionar problemas no eletrodo. Um rópalo isolado saudável exibirá sinais marcapasso espontâneos entre 0,5–1 Hz dentro de minutos após a fixação do eletrodo. A ausência de atividade espontânea geralmente reflete dano no preparo durante o isolamento ou a transferência, e não falha do eletrodo. Por outro lado, se houver atividade espontânea, mas nenhuma resposta visualmente evocada for obtida, a calibração óptica deve ser repetida antes de concluir que o preparo é irresponsivo.
Para laboratórios que adaptam este protocolo a diferentes equipamentos, a cadeia de verificação de temporização com mouse TTL e Arduino Uno descrita na etapa 3.3 pode ser substituída por qualquer sistema que forneça um registro de janela de estímulo em nível de hardware, independente de software e adquirido sincronicamente com o traçado eletrofisiológico. A implementação específica descrita aqui foi desenvolvida para interligar o ambiente de aquisição LabVIEW em um PC ao software de apresentação em um computador separado, representando uma solução prática de engenharia para um desafio comum de integração entre plataformas. O princípio fundamental de que gatilhos de software isolados são insuficientes para análises precisas de temporização entre estímulo e resposta aplica-se independentemente da plataforma de hardware específica utilizada.
A limitação principal da preparação de rópalio isolado é que ela realiza registros de um único rópalio em isolamento. No animal intacto, os quatro rópali estão conectados por meio do nervo anelar15 e suas saídas são integradas para produzir um comportamento coordenado de natação. A comunicação entre rópali não é acessível nesta preparação. No entanto, para o propósito de investigar o processamento de informações visuais dentro de um único sistema nervoso rópalio, esse isolamento é uma vantagem e não uma desvantagem. Ele remove a influência confundidora de entradas provenientes de outros rópali e permite que as propriedades de resposta visual de um único SNR sejam caracterizadas integralmente.
O isolamento do rópalio também exclui o contexto sensorial multimodal além do próprio rópalio; os quimiorreceptores putativos descritos anatomicamente em sua superfície17 não foram funcionalmente associados à resposta do marcapasso, de modo que o sinal pode ser razoavelmente interpretado como uma leitura do processamento visual, em grande parte desacompanhado de entradas não visuais. Uma limitação mais fundamental é que o registro extracelular do nervo do pedúnculo capta apenas o sinal integrado de saída motora trmOC. As contribuições individuais das subOC para o processamento visual não podem ser resolvidas eletrofisiologicamente; isso requer abordagens de imagem in vivo com resolução espacial. O método eletrofisiológico descrito aqui é, portanto, uma medida do comando motor integrado final, e não das etapas intermediárias de processamento dentro do SNS.
Isso tem uma consequência prática importante: o protocolo de eletrofisiologia de rópalos isolados não é um método autônomo. É essencial que a análise comportamental do animal inteiro seja realizada antes do planejamento de experimentos com rópalos isolados, a fim de determinar quais estímulos visuais induzem comportamentos que alteram a frequência de contração da campânula. Comportamentos que não produzem uma alteração na frequência do sinal do marcapasso não podem ser avaliados por meio desta abordagem. A leitura eletrofisiológica é especificamente uma medida da saída motora natatória, e os delineamentos experimentais devem basear-se em caracterizações comportamentais prévias para garantir que os estímulos escolhidos atinjam essa saída.
O sucesso do registro e a classificação dos sinais dependem da experiência do operador. Aproximadamente 90% das preparações que atendem ao critério de viabilidade de aclimatação (etapa 6.1.6) apresentam atividade espontânea estável e uma resposta visualmente evocada mensurável nas mãos de um operador experiente; espera-se que essa proporção seja menor nos estágios iniciais da curva de aprendizado. A discriminação de sinais entre formas de onda de marca-passo e potenciais de ação (etapa 7.1.2) foi realizada por um único operador experiente neste estudo; como a avaliação formal da confiabilidade entre avaliadores exige múltiplos observadores independentes, não foi possível calcular uma estatística de concordância entre avaliadores. Em vez disso, manteve-se a consistência interna comparando formas de onda ambíguas com um sinal de identidade conhecida dentro do mesmo registro, tipicamente uma resposta evocada ao contraste máximo.
As escolhas de hardware e software neste protocolo — uma lente de projetor modificada, um mouse TTL personalizado, a cadeia de temporização Arduino e o LabVIEW/Igor Pro/SAS — refletem equipamentos e conhecimentos já disponíveis no laboratório dos autores, e não uma exigência do método. A lente do projetor foi modificada porque a configuração padrão não atendia aos requisitos da montagem. O mouse TTL conecta o computador de estímulo ao computador de aquisição: o LabVIEW envia um pulso TTL para o mouse e registra o horário do envio (Canal 2), e o clique do mouse dispara a geração do estímulo via USB. Como o atraso entre esse disparo registrado e a mudança real na tela é variável, uma cadeia independente de fotodiodo/Arduino verifica o início real do estímulo e envia um segundo sinal TTL de volta ao DAQ (Canal 3); pode existir uma alternativa comercial ao mouse, mas os autores não a conhecem. Nenhum desses hardwares exige habilidades especializadas de fabricação ou alto custo, e qualquer sistema de aquisição alternativo precisa apenas atender ao mesmo requisito de amostragem sincronizada multicanal a 1 kHz, além de quaisquer conhecimentos em eletrônica ou programação que isso implique. Com uma exceção: personalizar um amplificador analógico adequado exige conhecimento em projeto de circuitos de baixo ruído, o qual não é presumido do leitor.
T. cystophora combina a sofisticação visual de sistemas geneticamente acessíveis, como Drosophila e peixe-zebra, com a acessibilidade em nível de circuito de sistemas numericamente simples, como C. elegans: o sistema nervoso rópalo compreende aproximadamente 1000 neurônios, comparado à ordem de 200.000 no cérebro de Drosophila1 e 302 em todo o sistema nervoso de C. elegans2. Uma vantagem adicional desse sistema é sua hierarquia sensorial: T. cystophora possui múltiplas modalidades sensoriais, incluindo mecanorrecepção (implicada funcionalmente na aprendizagem associativa14) e quimiorrecepção putativa (descrita anatomicamente, mas não demonstrada funcionalmente17), além da visão. No entanto, na preparação isolada do rópalo, apenas a visão foi funcionalmente demonstrada como capaz de induzir a resposta do marcapasso avaliada por este protocolo, permitindo que o sinal seja interpretado como uma leitura comparativamente livre de interferências do processamento visual, sem a complicação interpretativa que surge quando múltiplos sentidos ativos simultaneamente moldam conjuntamente uma resposta comportamental. Estímulos visuais podem ser especificados com precisão no espaço, no tempo e em contraste, enquanto o sinal do marcapasso pode ser usado como um indicador quantitativo da saída motora induzida visualmente, relevante para o comportamento do animal inteiro14.
Além da eletrofisiologia visual, o preparo isolado de rópalo tem sido aplicado com sucesso na investigação farmacológica do SNC por meio de ensaios com neurotransmissores e neuromoduladores aplicados no banho, permitindo a identificação dos sistemas transmissores que modulam a atividade dos marcapassos24. O preparo também é adequado para abordagens de imagem de cálcio e de potencial. Trabalhos preliminares não publicados no laboratório dos autores, utilizando um indicador de cálcio permeável à membrana celular, corroboram a viabilidade da imagem de cálcio neste preparo; a imagem de potencial ainda não foi testada. Tais abordagens poderiam testar diretamente a própria arquitetura da rede subOC–trmOC, que permanece como um modelo em desenvolvimento, e ofereceriam a resolução espacial necessária para investigar independentemente a atividade de subOC e trmOC durante a estimulação visual, uma capacidade que o registro extracelular isolado não pode fornecer. Em conjunto, essas abordagens complementares posicionam o rópalo isolado de T. cystophora como um preparo altamente acessível para investigações em nível de sistema do processamento visual e da integração sensoriomotora em um sistema nervoso de complexidade definida e limitada.
Divulgações
Os autores declaram não haver conflitos de interesses.
Agradecimentos
Os autores agradecem a Dan-eric Nilsson pelo uso da imagem do rópalo (Figura 1B), pela assistência técnica prestada por Mathias Hoppe, Ingo Klein, Olaf Wendt e Holger Voigt (Universidade de Kiel) e pela ajuda dos membros do Grupo de Biologia Sensorial (Universidade de Copenhagen) na manutenção das culturas. Financiado pela Deutsche Forschungsgemeinschaft (DFG, Fundação Alemã para a Pesquisa) – ID do Projeto 567357102 (J.B.)
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Placa de Petri de 35 mm | Nunc | 153066 | Qualquer placa de Petri equivalente adequada |
| Arduino Uno | Arduino | — | Converte o sinal do fotodiodo em TTL para verificação do tempo de estímulo; taxa de atualização de 1 kHz |
| Lente biconvexa f = 30 mm | Linos | G063-022-000 | Substituída pela lente do fabricante; focaliza a imagem na parede da tela de projeção da câmara de gravação |
| Tubo capilar de vidro borossilicatado, 1,16 mm ID × 2,00 mm OD × 80 mm L | Science Products | GB200-8P | Para fabricação de eletrodo de sucção |
| Pipeta descartável de transferência | Sarstedt | 86.1171 | Ponta cortada para abertura de ~8 mm para transferência do animal |
| Suporte para eletrodo PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | Suporte do tipo BNC com porta de sucção; fornecido com fio de Ag de ~0,25 mm |
| Amplificador extracelular EXT-10-2F | NPI Electronic | — | Amplificador diferencial com acoplamento CA; estágio inicial ×10, amplificador principal ×100, ganho total ×1000; filtro passa-banda integrado: passa-alta 1 Hz, passa-baixa 500 Hz; filtro rejeita-faixa de 50/60 Hz ativado; fornecido com braço do estágio inicial |
| Lâmina de hemocitômetro 20 mm × 26 mm | Carl Roth | L 189 | Apóia-se em saliências para lâminas por flutuabilidade negativa; mais robusta que lâminas comuns |
| Igor Pro 6.37 | WaveMetrics Inc. | Version 6.37 | Lake Oswego, OR, EUA; para análise de sinal de marca-passo |
| LabVIEW 2016 | National Instruments | Version 2016 | Software de aquisição e controle de estímulo; VI fornecido como material suplementar |
| Seringa com conexão Luer-lock | — | — | Genérica; qualquer seringa padrão de laboratório com conexão Luer-lock adequada |
| Microforja MF-2 | Narishige | — | Para polimento da ponta do eletrodo (Opção A) |
| Micromanipulador MM33 | Märzhäuser Wetzlar | 00-42-101-0000 (direita) / 00-42-102-0000 (esquerda) | Manual, três eixos; dois necessários (para pipeta de sustentação e eletrodo de gravação) |
| Puxador de micropipetas, Flaming/Brown P-1000 | Sutter Instrument | P-1000 | Programa de puxamento: Linha 1×1: calor 535, puxar 0, vel 12, tempo 200, pressão 600, rampa 540; Linhas 2–4 × 3: calor 532, puxar 0, vel 12, tempo 100 |
| Plugin Neuromatic v2.00 | — | Version 2.00 | Para Igor Pro; discriminação de sinal de marca-passo e extração de carimbos de tempo |
| Filtro de densidade neutra | Thorlabs | NE10A | Transmissão de 10%; atenuação a ser validada empiricamente por calibração biológica (passo 4.1) |
| DAQ NI USB-6343 | National Instruments | 781438-01 | DAQ multifunção de 16 bits; aquisição de eletrofisiologia, entrega de estímulo TTL para mouse, entrada TTL para Arduino; taxa de amostragem de 1 kHz |
| Projetor DLP Optoma ML750 | Optoma | ML750 | Sistema de lentes do fabricante removido; lente biconvexa única f = 30 mm substituída |
| Osciloscópio DS1102E | Rigol | DS1102E | Para monitoramento em tempo real do sinal durante o posicionamento do eletrodo e otimização do filtro |
| Pipeta de Pasteur 150 mm | Carl Roth | 4518 | Para transferência de rópalo |
| Fotodiodo BRW21 | OSRAM | BRW21 | Fotodiodo de silício; monitora quadrado indicador preto e branco na tela do computador |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | Cary, NC, EUA; análise estatística da resposta do marca-passo; código disponível em doi: 10.17632/csgymw8kjk.1 |
| Tubo de silicone | Erich Eydam KG | 9205000 | Para conexão de sucção entre o suporte do eletrodo e a seringa |
| Filtro de seringa Filtropur S, 0,20 µm PES | Sarstedt | 83.1826.001 | Para filtrar água do tanque de cultivo para a câmara de gravação e recipientes de preparação |
| Tesoura de Vannas | World Precision Instruments | 500086 | Lâmina de 0,025 mm × 0,015 mm; para secção do pedúnculo do rópalo |
| WTE var 3185 | Assistent | — | Controlador de temperatura de banho-maria |
Referências
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.