Análises integradas de bioinformática e experimentais identificaram LINC01871 como um preditor potencial da sensibilidade aos inibidores da quinase dependente de ciclina 4/6 e mostraram que a superexpressão de LINC01871 suprime a proliferação do câncer de mama e está associada à redução da sinalização NF-κB.
Artigo de investigação
Sensibilidade Mediada por LINC01871 a Inibidores de Quinase Dependente de Ciclina 4/6 em Câncer de Mama Humano
Neste artigo
Resumo
Resumo
O câncer de mama continua sendo a neoplasia mais frequentemente diagnosticada em mulheres, e a resistência aos inibidores da quinase dependente de ciclina 4 e 6 (CDK4/6) limita a eficácia do tratamento a longo prazo. Este estudo teve como objetivo identificar RNAs longos não codificantes (lncRNAs) associados à sensibilidade prevista aos inibidores de CDK4/6 e investigar suas funções biológicas no câncer de mama. Dados transcriptômicos do The Cancer Genome Atlas (TCGA) e dados de sensibilidade a medicamentos da base de dados Genomics of Drug Sensitivity in Cancer 2 (GDSC2) foram integrados, e a sensibilidade a medicamentos foi prevista utilizando o algoritmo oncoPredict. Os lncRNAs candidatos foram identificados por meio de análise de expressão diferencial, análise de rede de coexpressão gênica ponderada, análise prognóstica e aprendizado de máquina. As funções biológicas do LINC01871 foram subsequentemente avaliadas por meio de experimentos in vitro e in vivo. Sessenta e dois lncRNAs associados à sensibilidade prevista ao ribociclibe e ao palbociclibe foram identificados, e seis lncRNAs centrais foram selecionados. O LINC01871 apresentou o maior desempenho discriminatório para a sensibilidade prevista ao medicamento. A superexpressão do LINC01871 esteve associada ao aumento da sensibilidade das células de câncer de mama ao ribociclibe e ao palbociclibe, inibição da proliferação celular, promoção da apoptose e supressão da sinalização do fator nuclear kappa B (NF-κB). A análise transcriptômica de célula única demonstrou alta expressão do LINC01871 em células T e células natural killer (NK), enquanto análises de infiltração imune baseadas em transcriptoma mostraram que a alta expressão do LINC01871 estava associada a maior infiltração imune. Esses achados identificam o LINC01871 como um biomarcador candidato de sensibilidade aos inibidores de CDK4/6 e demonstram seus efeitos supressores de tumor no câncer de mama. Estudos clínicos e mecanicistas adicionais são necessários para validar seu valor preditivo e relevância terapêutica.
Introdução
O câncer de mama continua sendo uma das principais causas de mortalidade por câncer entre mulheres em todo o mundo, apesar dos avanços contínuos no seu manejo clínico1,2. O tratamento expandiu-se progressivamente além da terapia endócrina e da quimioterapia, incorporando abordagens molecularmente direcionadas3. Dentre estas, os inibidores das quinases dependentes de ciclina 4 e 6 (CDK4/6), como ribociclibe, palbociclibe e abemaciclibe, têm proporcionado benefícios clínicos substanciais no câncer de mama positivo para receptor de estrogênio e/ou receptor de progesterona4,5,6. No entanto, o tratamento prolongado pode ser acompanhado por resistência adquirida, o que limita a durabilidade do benefício terapêutico7.
A inibição da CDK4/6 atua principalmente por meio do eixo regulador do ciclo celular Rb–E2F. A inibição da atividade da CDK4/6–ciclina D reduz a fosforilação da proteína retinoblastoma (Rb), permitindo que a Rb hipofosforilada restrinja a transcrição dependente de E2F e, consequentemente, promova a parada na fase G1 e limite a proliferação das células tumorais8. Embora diversos mecanismos que contribuem para a resistência aos inibidores da CDK4/6 tenham sido caracterizados, eles não explicam completamente as diferenças na resposta ao tratamento. Esses mecanismos incluem a ativação anômala da via fosfatidilinositol 3-quinase/proteína quinase B/alvo da rapamicina em mamíferos (PI3K/AKT/mTOR) e o aumento da expressão de complexos ciclina–CDK9,10. Notavelmente, componentes da via PI3K/AKT/mTOR são eles próprios alvos terapêuticos em doenças avançadas11. Em conjunto, essas observações indicam que determinantes moleculares adicionais da sensibilidade e resistência aos inibidores da CDK4/6 permanecem a ser identificados. A relevância clínica de biomarcadores preditivos é ilustrada por estratégias emergentes guiadas por biomarcadores no câncer de mama metastático positivo para receptores hormonais. A análise seriada do DNA tumoral circulante (ctDNA), por exemplo, pode detectar o surgimento de mutações no ESR1 durante o tratamento baseado em inibidores da CDK4/6. Os estudos PADA-1 e SERENA-6 mostraram que essa detecção molecular pode orientar uma mudança precoce na terapia endócrina, mantendo-se a inibição da CDK4/612,13. As mutações no ESR1, no entanto, representam apenas um determinante da resposta terapêutica e não podem explicar todos os casos de sensibilidade ou resistência. Essa limitação tem relevância clínica crescente porque pacientes com câncer de mama metastático positivo para receptores hormonais e negativo para HER2 que progridem durante o tratamento baseado em inibidores da CDK4/6 agora possuem várias opções terapêuticas subsequentes, incluindo degradadores orais seletivos do receptor de estrogênio, inibidores da via PI3K/AKT e conjugados anticorpo-fármaco. Portanto, a identificação de biomarcadores candidatos adicionais associados à sensibilidade diferencial aos inibidores da CDK4/6 pode ajudar a distinguir pacientes com maior probabilidade de se beneficiar dessas terapias daqueles que podem necessitar de adaptação terapêutica mais precoce.
RNAs não codificantes longos (lncRNAs) são transcritos sem capacidade de codificação proteica que participam da regulação de inúmeros processos biológicos. Vários lncRNAs têm sido implicados na progressão do câncer e na resposta ao tratamento. No carcinoma de células escamosas orais, LOC100506114 tem sido relatado como promotor da proliferação e migração por meio de sua interação com o fator de transcrição RUNX e subsequente regulação da expressão gênica downstream14. No câncer de mama, HISLA tem sido associado ao aumento da glicólise e resistência aprimorada à apoptose15, enquanto LINC02568 contribui para a resistência endócrina por meio da regulação de ESR1 e CA1216. Apesar do envolvimento reconhecido dos lncRNAs na biologia do câncer, sua relação com a resistência aos inibidores de CDK4/6 permanece insuficientemente caracterizada. Neste estudo, utilizou-se uma estratégia integrada de multi-ômica e aprendizado de máquina para identificar lncRNAs associados à sensibilidade prevista ao ribociclibe e palbociclibe, a partir da qual LINC01871 emergiu como um candidato. Posteriormente, examinamos a associação de LINC01871 com a sensibilidade a ambos os agentes e avaliamos seus efeitos sobre a proliferação de células de câncer de mama utilizando abordagens experimentais in vitro e in vivo.
Protocolo
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Resultados
LINC01871 está fortemente associado à sensibilidade à ribociclibe e à palbociclbe
Valores preditos de IC50 para ribociclibe e palbociclbe foram estimados para pacientes do grupo TCGA-BRCA utilizando dados do GDSC2 e organizados em ordem crescente. Pacientes no quartil mais baixo dos valores preditos de IC50 foram classificados no grupo sensível, enquanto aqueles no quartil mais alto foram classificados no grupo resistente (Figura 1A,B). A comparação desses grupos identificou lncRNAs diferencialmente expressas para cada fármaco (Figura Suplementar 1A,B). A WGCNA identificou ainda módulos de lncRNAs significativamente associados à sensibilidade predita à ribociclibe e à palbociclbe (Figura 1C,D; Figura Suplementar 1C,D). A integração dos quatro conjuntos de genes resultantes gerou 62 lncRNAs compartilhadas (Figura 1E), das quais 18 apresentaram associação significativa com o prognóstico tanto na regressão de Cox univariada quanto nas análises de sobrevida de Kaplan–Meier. Em seguida, aplicou-se regressão LASSO para refinar ainda mais esse conjunto, resultando em seis lncRNAs com relevância prognóstica: ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 e LINC01871 (Figura 1F,G; Figura Suplementar 2A). A capacidade dessas lncRNAs de discriminar a resistência predita ao fármaco foi posteriormente comparada por meio de análise de AUC. Dentre os seis candidatos, LINC01871 apresentou o maior valor médio de AUC para ribociclibe e palbociclbe (Figura 1H–J; Figura Suplementar 2B,C).
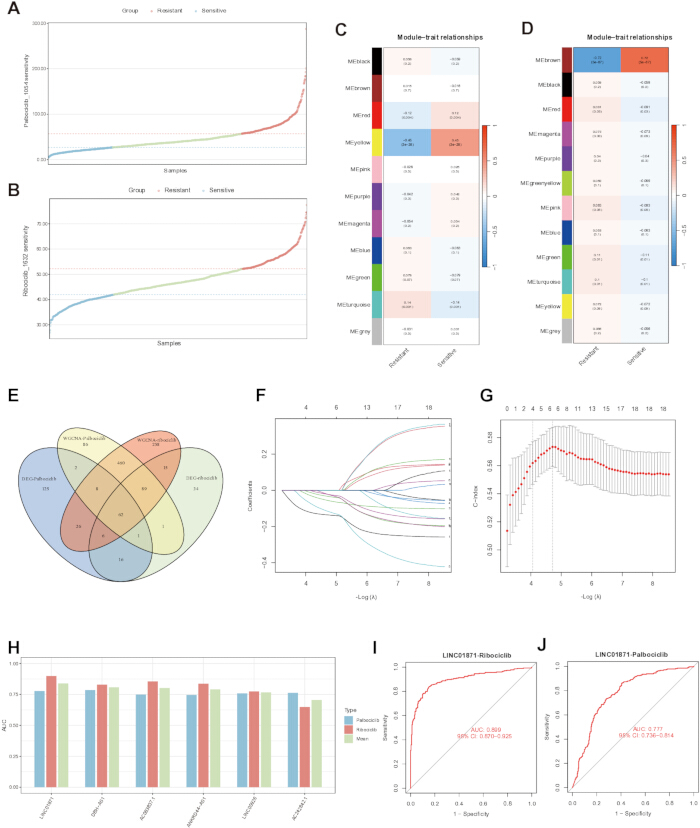
Figura 1. Identificação de RNAs não codificantes longos associados à sensibilidade prevista à ribociclibe e palbociclibe.
(A,B) Distribuição dos valores previstos de concentração inibitória média (IC50) para palbociclibe (A) e ribociclibe (B) na coorte do The Cancer Genome Atlas de carcinoma invasivo de mama (TCGA-BRCA), estimada utilizando o conjunto de dados Genomics of Drug Sensitivity in Cancer 2 (GDSC2). (C,D) Análise de rede de coexpressão gênica ponderada (WGCNA) mostrando associações entre módulos e traços para palbociclibe (C) e ribociclibe (D). (E) Diagrama de Venn ilustrando os genes compartilhados entre os conjuntos de genes diferencialmente expressos e os conjuntos de genes derivados da WGCNA associados aos dois fármacos. (F,G) Regressão por operador de contração e seleção por mínimos absolutos (LASSO) para seleção de RNAs não codificantes longos (lncRNAs) clinicamente relevantes. (H) Comparação dos valores da área sob a curva característica de operação do receptor (AUC) para os seis lncRNAs selecionados pelo LASSO. (I,J) Curvas características de operação do receptor (ROC) avaliando a capacidade do LINC01871 de discriminar a sensibilidade prevista à ribociclibe (I) e à palbociclibe (J). Clique aqui para visualizar uma versão maior desta figura.
A superexpressão de LINC01871 aumentou a sensibilidade a medicamentos em células de câncer de mama
Na coorte TCGA-BRCA, a expressão mais elevada de LINC01871 esteve associada a valores preditos mais baixos de IC50 tanto para ribociclibe quanto para palbociclibe (Figura 2A,B). Essa relação foi posteriormente examinada no subgrupo clinicamente relevante, positivo para receptores hormonais e negativo para HER2 (n = 599). Nesse subgrupo, os valores preditos de IC50 para ambos os agentes foram significativamente menores entre pacientes com alta expressão de LINC01871 em comparação com aqueles com baixa expressão. Além disso, a expressão de LINC01871 apresentou correlação inversa com os valores preditos de IC50 de ribociclibe e palbociclibe (Figura Suplementar 3A,B). A associação computacional foi posteriormente investigada experimentalmente. Ensaios de citotoxicidade demonstraram maior sensibilidade tanto ao ribociclibe quanto ao palbociclibe em células de câncer de mama com superexpressão de LINC01871, comparadas às células controle com vetor (Figura 2C,D). A citometria de fluxo mostrou uma proporção maior de células na fase G1 e uma proporção menor na fase S após a superexpressão de LINC01871, compatível com um aumento do bloqueio na fase G1 (Figura 2E). Em ensaios de formação de colônias, concentrações crescentes de ribociclibe ou palbociclibe reduziram progressivamente a formação de colônias (Figura 2F,G). Em concentrações equivalentes do fármaco, a capacidade de formação de colônias foi significativamente menor nas células com superexpressão de LINC01871 do que nas células controle com vetor. A análise por Western blot revelou ainda níveis mais baixos de CDK4, CDK6 e ciclina D1, acompanhados por redução na fosforilação de RB, nas células com superexpressão de LINC01871 (Figura 2H). Essas alterações moleculares foram compatíveis com o maior bloqueio na fase G1 observado após a superexpressão de LINC01871.
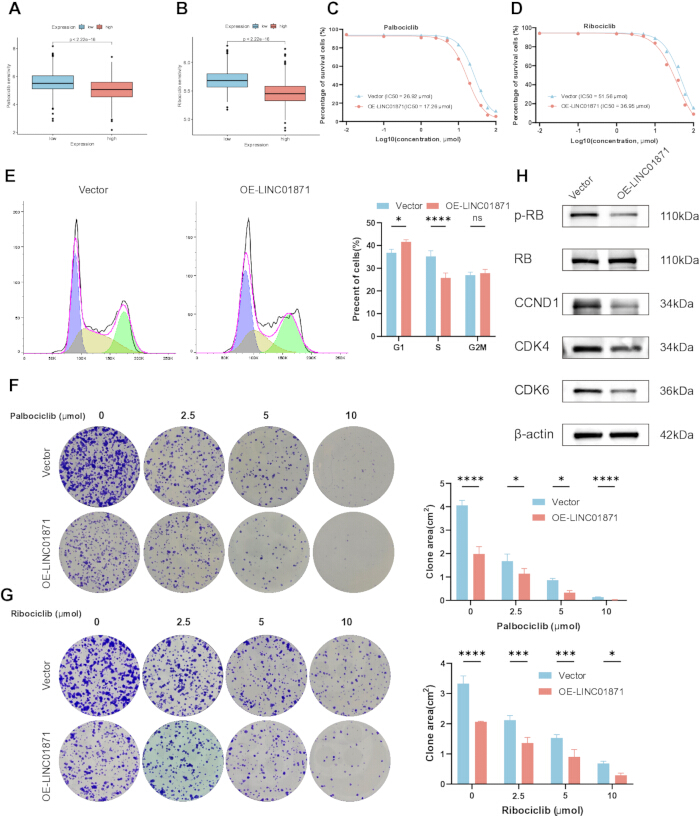
Figura 2. Associação da superexpressão de LINC01871 com a sensibilidade a inibidores da ciclina-dependente quinase 4/6 em células de câncer de mama. (A,B) Sensibilidade prevista ao palbociclib (A) e ao ribociclib (B) de acordo com baixa ou alta expressão de LINC01871. (C,D) Curvas de resposta à dose do fármaco para palbociclib (C) e ribociclib (D) em células controle com vetor e células superexpressando LINC01871, com os valores correspondentes da concentração inibitória média (IC50) indicados em cada painel. (E) Avaliação por citometria de fluxo da distribuição no ciclo celular em células controle com vetor e células superexpressando LINC01871. (F,G) Formação de colônias após tratamento com concentrações crescentes de palbociclib (F) e ribociclib (G). (H) Análise por Western blot da quinase dependente de ciclina 4 (CDK4), quinase dependente de ciclina 6 (CDK6), ciclina D1 (CCND1), proteína do retinoblastoma (RB) e RB fosforilada (p-RB), com β-actina servindo como controle de carga. OE-LINC01871, superexpressão de LINC01871; ns, não significativo. Todos os experimentos foram realizados independentemente em triplicata. Os dados são apresentados como média ± DP. Os valores de IC50 foram determinados por regressão não linear. Os dados de distribuição no ciclo celular e de formação de colônias foram analisados usando ANOVA de dois fatores. *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, não significativo. Clique aqui para visualizar uma versão maior desta figura.
Pacientes com Alta Expressão de LINC01871 Tendiam a Apresentar Resultados Clínicos Favoráveis
A associação prognóstica de LINC01871 foi posteriormente examinada na coorte TCGA-BRCA. Análises de Kaplan–Meier indicaram que a expressão mais elevada de LINC01871 estava geralmente associada a uma sobrevida global mais longa e a um intervalo livre de progressão maior (Figura 3A; Figura Suplementar 3C). Comparações de amostras pareadas e não pareadas também revelaram expressão significativamente menor de LINC01871 em tecidos tumorais do que em tecidos normais (Figura 3B,C). Em seguida, examinamos a relação entre a expressão de LINC01871 e características clinicopatológicas. A expressão mais baixa de LINC01871 tendia a estar associada a tumores de maior tamanho e foi observada em pacientes registrados como falecidos em comparação com aqueles registrados como vivos (Figura 3D,E). Entre pacientes que receberam radioterapia, a análise por subgrupos mostrou ainda resultados de sobrevida significativamente mais favoráveis naqueles com alta expressão de LINC01871 (Figura Suplementar 3D). Um nomograma prognóstico, incorporando a expressão de LINC01871 juntamente com múltiplas características clínicas, foi posteriormente desenvolvido (Figura Suplementar 3E). A análise de calibração mostrou boa concordância entre as probabilidades de sobrevida estimadas pelo nomograma e os resultados observados (Figura Suplementar 3F).
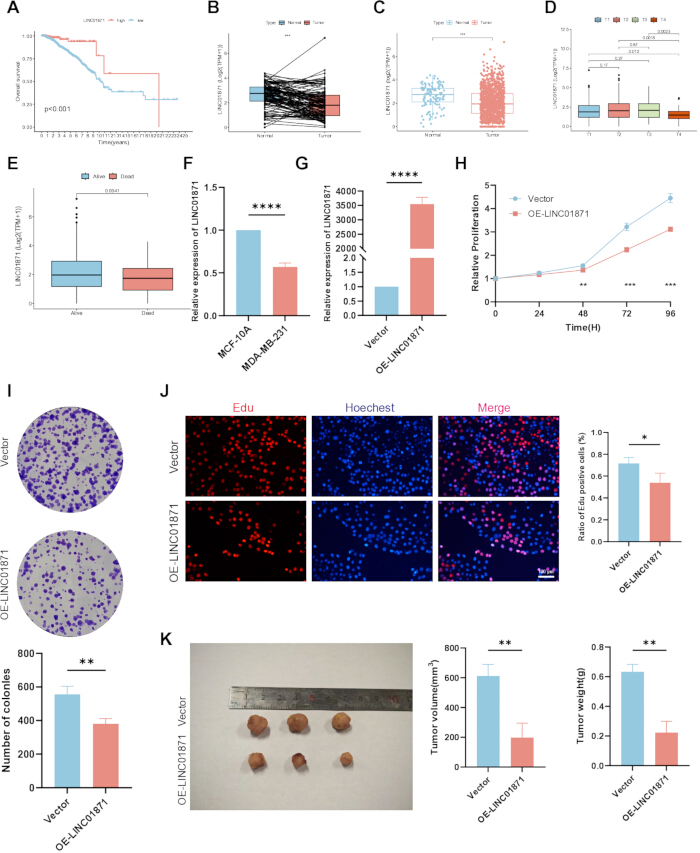
Figura 3. Expressão de LINC01871, associações prognósticas e supressão da proliferação do câncer de mama.
(A) Análise de Kaplan–Meier da sobrevida global estratificada pela expressão de LINC01871. (B,C) Análises pareadas (B) e não pareadas (C) comparando a expressão de LINC01871 entre tecidos normais e tumorais. (D,E) Expressão de LINC01871 em relação à categoria T do tumor (D) e ao status de sobrevida (E). (F) Comparação da expressão relativa de LINC01871 entre células MCF-10A e MDA-MB-231. (G) Confirmação por reação em cadeia da polimerase quantitativa com transcrição reversa da superexpressão de LINC01871 em células MDA-MB-231. (H–J) Avaliação da proliferação celular por meio do ensaio com o kit de contagem celular-8 (CCK-8) (H), ensaio de formação de colônias (I) e ensaio de incorporação de 5-etinil-2′-desoxiuridina (EdU) (J). A barra de escala no painel J representa 100 μm. (K) Aparência, volume e peso do tumor alogênico nos grupos controle com vetor e superexpressão de LINC01871. TPM, transcritos por milhão; OE-LINC01871, superexpressão de LINC01871. A sobrevida global foi avaliada por análise de Kaplan–Meier com o teste log-rank. Comparações pareadas entre tecidos tumorais e normais foram avaliadas usando o teste de Wilcoxon para postos com sinal. Para as demais comparações entre dois grupos, um teste t de Student não pareado ou teste U de Mann–Whitney foi selecionado após avaliação da normalidade com o teste de Shapiro–Wilk. As medições do CCK-8 foram analisadas por análise de variância de dois fatores. Os experimentos in vitro compreenderam três réplicas biológicas independentes, enquanto os experimentos de alograft incluíram três camundongos em cada grupo. Os dados são apresentados como média ± desvio padrão. *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, não significativo. Clique aqui para visualizar uma versão ampliada desta figura.
A superexpressão de LINC01871 suprime a proliferação de células tumorais e está associada à redução da sinalização NF-κB
O efeito inibitório de LINC01871 sobre a proliferação de células tumorais foi analisado mais detalhadamente utilizando modelos in vitro e in vivo. A expressão de LINC01871 foi significativamente maior na linhagem de células epiteliais normais da mama do que na linhagem de células de câncer de mama (Figura 3F). A criação bem-sucedida do modelo de superexpressão de LINC01871 foi confirmada por RT-qPCR, que mostrou expressão de LINC01871 acentuadamente elevada em comparação ao grupo controle com vetor (Figura 3G). Ensaios CCK-8 revelaram posteriormente capacidade proliferativa significativamente reduzida nas células que superexpressavam LINC01871 (Figura 3H). De acordo com esse resultado, a superexpressão de LINC01871 diminuiu a capacidade de formação de colônias (Figura 3I) e reduziu a proporção de células positivas para EdU (Figura 3J). No modelo de xenotransplante, os tumores derivados de células que superexpressavam LINC01871 foram significativamente menores do que aqueles derivados de células controle com vetor (Figura 3K).
Para explorar mecanismos potenciais subjacentes a esses efeitos, foram realizadas análises de enriquecimento funcional utilizando dois conjuntos de genes: genes diferencialmente expressos entre os grupos com alta e baixa expressão de LINC01871 e genes identificados como coexpressos com LINC01871 por análise de correlação de Pearson. A análise GO desses conjuntos de genes revelou associações com diversas funções relacionadas ao sistema imunológico, incluindo ligação ao receptor de células T, ligação ao complexo proteico do complexo major de histocompatibilidade (MHC), regulação positiva da ativação de leucócitos e atividade de receptor imunológico (Figura 4A,C). A análise KEGG identificou de forma semelhante vias associadas à resposta imune, incluindo sinalização do receptor de células T e a via do ponto de controle da expressão da ligante da morte programada 1 (PD-L1) e da proteína da morte celular programada 1 (PD-1) no câncer. Também foi observado enriquecimento para as vias de sinalização Janus quinase/transdutor de sinal e ativador da transcrição (JAK-STAT) e NF-κB (Figura 4B,D). Como a sinalização NF-κB foi identificada em ambas as análises de enriquecimento, sua atividade foi examinada mais detalhadamente por meio de western blot. A fosforilação de P65 foi acentuadamente menor em células com superexpressão de LINC01871 do que no grupo controle (Figura 4E), um achado compatível com a redução da ativação da via NF-κB. A relação entre a superexpressão de LINC01871 e a apoptose também foi avaliada. O western blot mostrou aumento na expressão da proteína pró-apoptótica Bax e diminuição na expressão da proteína antiapoptótica Bcl-2 após a superexpressão de LINC01871 (Figura 4F). A citometria de fluxo revelou ainda uma proporção significativamente maior de células apoptóticas no grupo com superexpressão de LINC01871 em comparação ao grupo controle com vetor (Figura 4G).
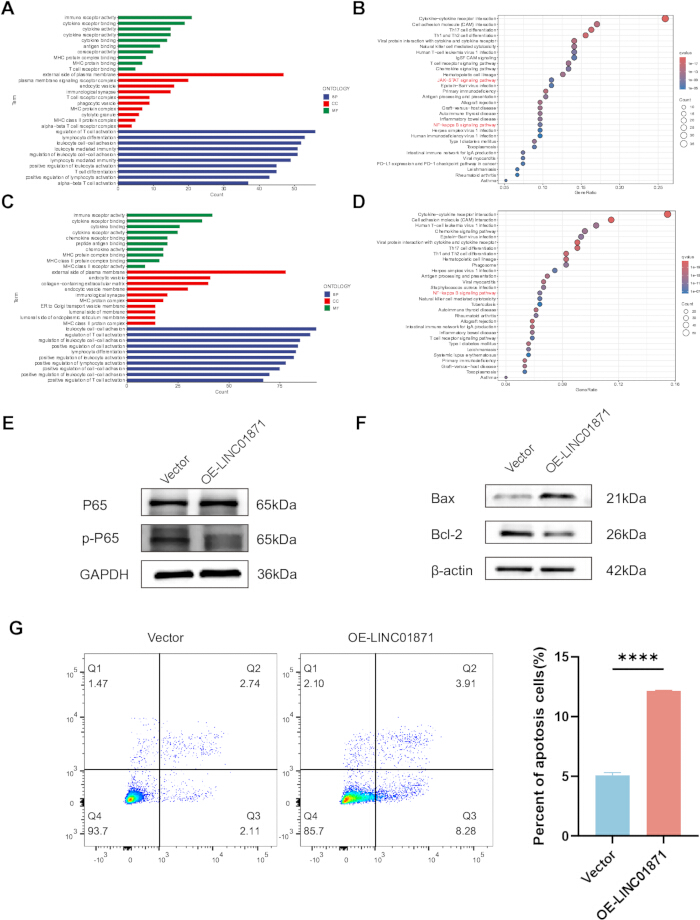
Figura 4Associação de LINC01871 com a sinalização do fator nuclear kappa B e apoptose.
(A,B) Análises de enriquecimento da Ontologia Genética (GO) (A) e da Enciclopédia de Kyoto de Genes e Genomas (KEGG) (B) de genes que apresentam expressão diferencial entre os grupos de alta e baixa expressão de LINC01871. (C,D) Análises de enriquecimento da GO (C) e KEGG (D) de genes coexpressos com LINC01871. (E) Avaliação por Western blot do fator nuclear kappa B (NF-κB) proteínas da via P65 e P65 fosforilada (p-P65), com gliceraldeído-3-fosfato desidrogenase (GAPDH) como controle de carga. (F) Avaliação por Western blot das proteínas relacionadas à apoptose linfoma de células B 2 (Bcl-2) e proteína associada a Bcl-2 X (Bax), utilizando β-actina como controle de carga. (G) Avaliação e quantificação por citometria de fluxo da apoptose em células controle com vetor e células que superexpressam LINC01871. Todos os experimentos in vitro incluíram três réplicas biológicas independentes. As imagens de western blot mostradas são representativas de três experimentos biológicos independentes. Os dados são apresentados como média ± SD. As comparações entre células controle vetoriais e células com superexpressão de LINC01871 foram realizadas utilizando um teste t de Student não pareado t-teste ou teste U de Mann–Whitney após avaliação da normalidade com o teste de Shapiro–Wilk. *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, não significativo. Clique aqui para visualizar uma versão maior desta figura.
Análise Pan-Cancer de LINC01871
Dadas as características supressoras de tumor associadas ao LINC01871 no câncer de mama, estendemos a análise a múltiplos tipos de câncer para caracterizar sua expressão e associações prognósticas. Observou-se expressão diferencial de LINC01871 em várias malignidades, além do câncer de mama (Figura 5A). Em adenocarcinoma de cólon (COAD), carcinoma de células claras do rim (KIRC), carcinoma papilífero renal (KIRP), carcinoma de células escamosas do pulmão (LUSC) e carcinoma da tireoide (THCA), detectaram-se diferenças significativas entre tecidos tumorais e normais tanto em comparações pareadas quanto não pareadas (Figura 5B). Análises de sobrevida identificaram ainda associações prognósticas significativas para LINC01871 no carcinoma de células escamosas de cabeça e pescoço (HNSC), KIRC, glioma de baixo grau do cérebro (LGG), adenocarcinoma do reto (READ), melanoma cutâneo (SKCM), carcinoma do endométrio do corpo uterino (UCEC), carcinoma urotelial da bexiga (BLCA), carcinoma hepatocelular (LIHC) e adenocarcinoma de próstata (PRAD) (Figura 5C–E).
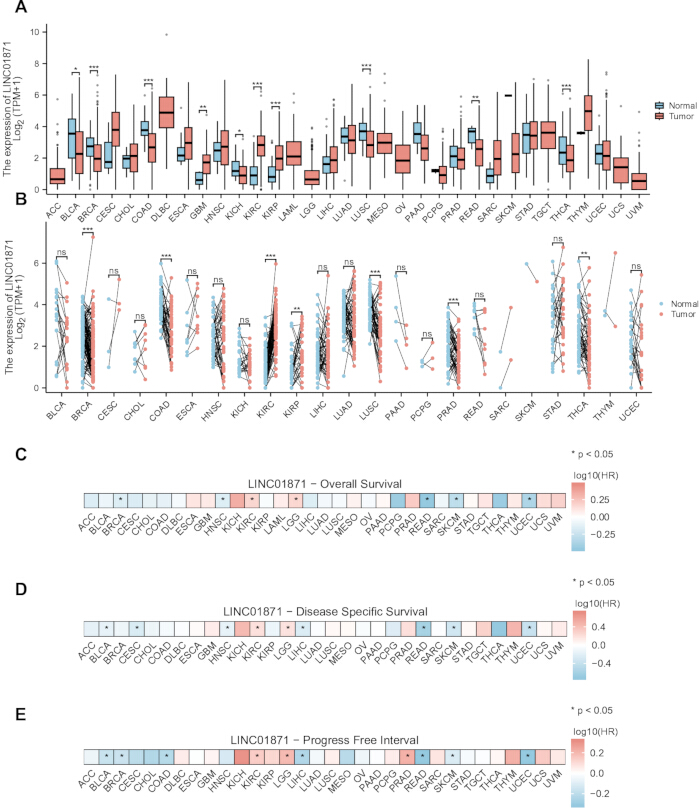
Figura 5. Análises pan-câncer da expressão e do prognóstico de LINC01871.
(A,B) Comparação da expressão de LINC01871 entre tecidos tumorais e normais em múltiplos tipos de câncer, utilizando análises não pareadas (A) e pareadas (B). (C–E) Associações prognósticas de LINC01871 mostrando as razões de risco transformadas pelo logaritmo para sobrevida global (C), sobrevida específica para a doença (D) e intervalo livre de progressão (E). HR, razão de risco; TPM, transcritos por milhão; ns, não significativo. As abreviações dos tipos de câncer seguem a nomenclatura do The Cancer Genome Atlas. Os dados não pareados de tumor–normal foram avaliados pelo teste U de Mann–Whitney (A), enquanto os dados pareados de tumor–normal foram avaliados pelo teste de postos com sinal de Wilcoxon (B). As associações com sobrevida global, sobrevida específica para a doença e intervalo livre de progressão foram examinadas por meio de regressão univariada de riscos proporcionais de Cox (C–E). *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, não significativo. Clique aqui para visualizar uma versão maior desta figura.
Correlação entre a Expressão de LINC01871 e a Infiltração de Células Imunes
Em seguida, caracterizamos a distribuição celular de LINC01871 utilizando dados de sequenciamento de RNA de célula única provenientes de amostras de câncer de mama (GSE161529). Após controle de qualidade, correção de efeitos de lote, agrupamento e anotação de tipos celulares, as populações identificadas incluíram células epiteliais, células T CD8⁺, células T, macrófagos, fibroblastos, células natural killer (NK) e células B (Figura 6A). Entre essas populações, a expressão de LINC01871 foi mais acentuada em células T e células NK (Figura 6B,C). Assim, examinamos mais detalhadamente a relação entre LINC01871 e o microambiente imune utilizando estimativas de infiltração baseadas em transcriptoma. A análise por CIBERSORT indicou que o grupo com alta expressão de LINC01871 apresentava proporções estimadas mais elevadas de diversas populações imunes, incluindo células T CD8⁺, células NK e macrófagos M1, juntamente com proporções estimadas mais baixas de células T regulatórias (Tregs) e macrófagos M2 (Figura 6D). De forma semelhante, os escores imunes derivados do método ESTIMATE foram mais altos em amostras com alta expressão de LINC01871 (Figura 6E). A análise por ssGSEA, utilizando genes marcadores de células imunes previamente descritos, produziu padrões amplamente consistentes (Figura 6F). A extensão dessa análise a diferentes tipos de câncer revelou correlações significativas entre a expressão de LINC01871 e a abundância estimada de múltiplas populações de células imunes (Figura 6G).
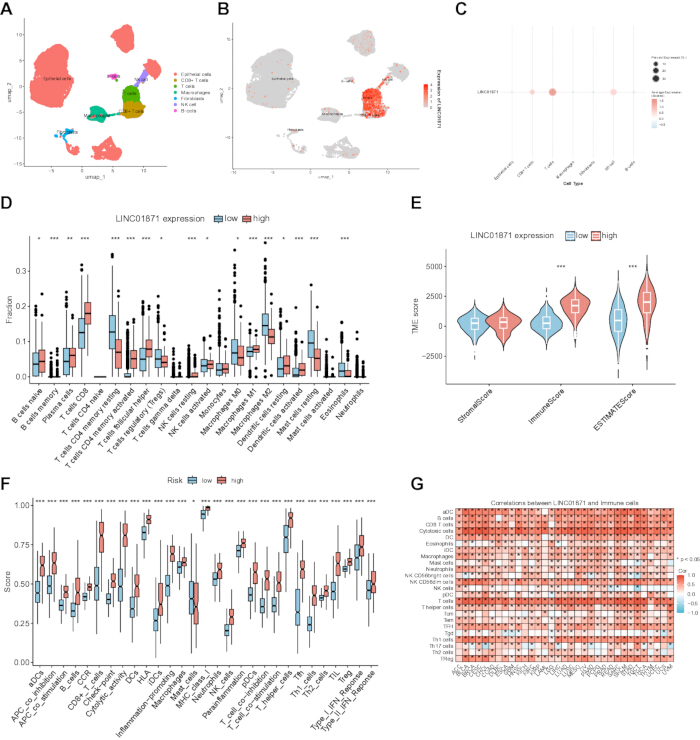
Figura 6. Análises de expressão em nível de célula única e infiltração imune de LINC01871.
(A) Representação Uniforme de Aproximação e Projeção em Variedade (UMAP) das populações celulares anotadas identificadas a partir de dados de sequenciamento de RNA em célula única. (B) Gráfico de características UMAP mostrando a distribuição da expressão de LINC01871 entre as populações celulares anotadas. (C) Gráfico de pontos exibindo a proporção de células que expressam LINC01871 e a expressão média escalonada para cada tipo celular. (D) Proporções relativas de 22 populações de células imunes nos grupos de baixa e alta expressão de LINC01871, estimadas pelo método Cell-type Identification by Estimating Relative Subsets of RNA Transcripts (CIBERSORT). (E) Pontuações de estroma, imunidade e microambiente tumoral derivadas usando o método Estimation of STromal and Immune cells in MAlignant Tumour tissues using Expression data (ESTIMATE). (F) Pontuações relacionadas ao sistema imune obtidas por análise de enriquecimento de conjunto de genes em amostra única (ssGSEA) nos grupos de baixa e alta expressão de LINC01871. (G) Associações pan-câncer entre a expressão de LINC01871 e a infiltração de células imunes estimadas usando ssGSEA. NK, célula natural killer; TME, microambiente tumoral. As abreviações dos tipos de câncer seguem a nomenclatura do The Cancer Genome Atlas. As diferenças entre os grupos de baixa e alta expressão de LINC01871 foram avaliadas usando o teste U de Mann–Whitney (D–F). As associações pan-câncer entre a expressão de LINC01871 e a infiltração de células imunes foram avaliadas usando análise de correlação de Spearman (G). *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, não significativo. Clique aqui para visualizar uma versão maior desta figura.
Disponibilidade de Dados:
Os conjuntos de dados analisados neste estudo estão publicamente disponíveis no The Cancer Genome Atlas (TCGA; https://portal.gdc.cancer.gov) e no Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/). Os conjuntos de dados utilizados incluem a coorte TCGA-BRCA e GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529). Figuras Suplementares 1–3 fornecem análises bioinformáticas e prognósticas adicionais. Tabela Suplementar 1 lista as sequências dos primers utilizadas para a reação de transcrição reversa seguida de reação em cadeia da polimerase quantitativa (RT-qPCR), e Tabela Suplementar 2 lista os anticorpos primários e secundários utilizados para análise por western blot. Os scripts em R utilizados para as análises bioinformáticas e estatísticas estão disponíveis como Arquivo Suplementar 1.
Figura Suplementar 1. Identificação de genes diferencialmente expressos e módulos da rede de coexpressão gênica ponderada associados à sensibilidade prevista aos inibidores de CDK4/6.
(A,B) Gráficos de dispersão em formato de vulcão mostrando os genes diferencialmente expressos entre os grupos preditos como resistentes e preditos como sensíveis ao ribociclib (A) e ao palbociclib (B). (C,D) Dendrogramas de agrupamento gerados por WGCNA mostrando o agrupamento gênico e a atribuição de módulos para o ribociclib (C) e o palbociclib (D). Genes diferencialmente expressos foram definidos como aqueles com um logaritmo absoluto2 variação de pelo menos 0,5 e um valor ajustado P valor de <0.05. Clique aqui para baixar este arquivo.
Figura Suplementar 2. Desempenho prognóstico e preditivo de cinco lncRNAs candidatas adicionais.
(A) Análises de sobrevida de Kaplan-Meier de cinco lncRNAs candidatas adicionais identificadas pela regressão LASSO. (B,C) Análises de curva ROC mostrando o desempenho diagnóstico dessas cinco lncRNAs na predição da resistência à ribocicliba (B) e à palbocicliba (C). As análises correspondentes de LINC01871 são apresentadas nas Figuras 1 e 3. Clique aqui para baixar este arquivo.
Figura Suplementar 3. Avaliação prognóstica de LINC01871 no câncer de mama.
(A) Valores preditos da concentração inibitória média (IC50) para ribociclibe e palbociclibe nos grupos de alta e baixa expressão de LINC01871 dentro do subgrupo positivo para receptor hormonal/negativo para receptor 2 do fator de crescimento epidérmico humano (HR-positivo/HER2-negativo). (B) Análises de correlação de Spearman entre a expressão de LINC01871 e os valores preditos de IC50 para ribociclibe e palbociclibe no subgrupo HR-positivo/HER2-negativo. (C) Análise de sobrevida de Kaplan–Meier do intervalo livre de progressão (PFI) de acordo com a expressão de LINC01871. (D) Análise de sobrevida de Kaplan–Meier de pacientes que receberam radioterapia estratificadas pela expressão de LINC01871. (E) Nômograma integrando a expressão de LINC01871 e características clínico-patológicas para prever a sobrevida global na coorte total TCGA-BRCA. (F) Curvas de calibração avaliando a concordância entre as probabilidades de sobrevida preditas e observadas para o nômograma em 1, 3 e 5 anos. As comparações no painel A foram analisadas usando o teste U de Mann–Whitney, e as correlações no painel B foram avaliadas usando análise de correlação de Spearman. IC50, concentração inibitória média; PFI, intervalo livre de progressão; HR, receptor hormonal; HER2, receptor 2 do fator de crescimento epidérmico humano. *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, não significativo. Clique aqui para baixar este arquivo.
Tabela Suplementar 1. Sequências de iniciadores utilizadas para a reação em cadeia da polimerase quantitativa por transcrição reversa (RT-qPCR).
Sequências dos iniciadores direto e reverso (5′→3′) utilizadas para análise por RT-qPCR de LINC01871 e do gene de referência endógeno GAPDH. Clique aqui para baixar este arquivo.
Tabela Suplementar 2. Anticorpos primários e secundários utilizados para análise por western blot.
Anticorpos primários e secundários utilizados para análise por western blot, incluindo a proteína-alvo ou especificidade do anticorpo, fornecedor, número de catálogo, espécie do hospedeiro, diluição de trabalho e Identificador de Recurso de Pesquisa (RRID). Clique aqui para baixar este arquivo.
Arquivo Suplementar 1. Scripts R utilizados para análises bioinformáticas e estatísticas.
Este arquivo suplementar contém os scripts R utilizados para gerar as análises bioinformáticas e as figuras apresentadas neste estudo, incluindo análise transcriptômica, análise de expressão diferencial, análise de rede de coexpressão gênica ponderada (WGCNA), regressão por operador de contração e seleção por mínimos absolutos (LASSO), análise de sobrevida, análise de característica operacional do receptor (ROC), análise de enriquecimento funcional, análise de infiltração imune, análise de sequenciamento de RNA de célula única e geração de figuras. Os scripts individuais correspondem às figuras principais e suplementares apresentadas no manuscrito. Clique aqui para baixar este arquivo.
Discussão
A crescente compreensão da biologia do câncer levou à identificação de novos alvos terapêuticos e consolidou as terapias direcionadas como um componente importante do tratamento do câncer17. No entanto, o desenvolvimento de resistência ao tratamento continua limitando sua eficácia a longo prazo. Neste estudo, a integração de análises multi-ômicas com abordagens de aprendizado de máquina identificou LINC01871 como um candidato associado à sensibilidade prevista ao ribociclibe e ao palbociclibe. Análises experimentais mostraram ainda que a superexpressão de LINC01871 aumentou a sensibilidade a ambos os agentes in vitro e suprimiu a proliferação de células de câncer de mama em modelos celulares e de xenoenxerto. Esses efeitos foram acompanhados por redução da atividade da via NF-κB, sugerindo uma relação potencial entre LINC01871 e essa via de sinalização. Essas observações podem ser relevantes para o uso crescente de biomarcadores na tomada de decisões terapêuticas durante o tratamento baseado em inibidores de CDK4/6. No entanto, as evidências que apoiam LINC01871 diferem substancialmente das disponíveis para abordagens guiadas por biomarcadores estabelecidos. Por exemplo, o monitoramento de DNA tumoral circulante para mutações em ESR1 passou por avaliação prospectiva como estratégia para adaptação do tratamento endócrino. LINC01871, por outro lado, permanece um biomarcador candidato e ainda não deve ser considerado adequado para decisões clínicas. Essa distinção é particularmente importante, pois as opções terapêuticas após progressão no tratamento baseado em inibidores de CDK4/6 no câncer de mama metastático, positivo para receptor hormonal e negativo para HER2, agora incluem degradadores orais seletivos do receptor de estrogênio, inibidores da via PI3K/AKT e conjugados anticorpo-fármaco18,19. Nesse cenário terapêutico em evolução, biomarcadores capazes de distinguir diferenças na sensibilidade ao inibidor de CDK4/6 poderiam potencialmente auxiliar na estratificação do tratamento. Embora nossos achados apoiem uma associação entre LINC01871 e sensibilidade ao ribociclibe e ao palbociclibe, as evidências derivam atualmente de estimativas computacionais de sensibilidade a fármacos juntamente com experimentos in vitro. Portanto, serão necessários estudos prospectivos com exposição documentada a inibidores de CDK4/6 e desfechos clínicos para determinar se LINC01871 possui valor preditivo em pacientes.
O benefício terapêutico dos inibidores da CDK4/6 em câncer de mama positivo para receptor de estrogênio e/ou receptor de progesterona foi demonstrado em múltiplos ensaios clínicos4,5,6. Sua potencial utilidade no câncer de mama triplo negativo também tem atraído investigação20,21. Por exemplo, Yang et al. descobriram que o bloqueio simultâneo da CDK4/6 e da CDK7 inibiu a proliferação de células de câncer de mama triplo negativo22. Outros estudos identificaram alterações moleculares que podem modificar a resposta à inibição da CDK4/6. Relatou-se que a inibição da GPX4 aumenta a sensibilidade ao palbociclib tanto no câncer de mama positivo para receptor de estrogênio quanto no triplo negativo23, enquanto a C9orf142 foi associada à resistência aos inibidores da CDK4/6 no câncer de mama triplo negativo20. Por outro lado, relatou-se que a inibição da ACAA1 aumenta a sensibilidade das células de câncer de mama aos inibidores da CDK4/624. Grande parte do trabalho existente sobre determinantes moleculares da resposta aos inibidores da CDK4/6 concentrou-se em genes codificadores de proteínas, deixando a contribuição dos lncRNAs menos bem caracterizada. Nossas descobertas ampliam essa área ao identificar o LINC01871 como um possível RNA não codificante associado à resposta aos inibidores da CDK4/6. Ensaios de citotoxicidade e de formação de colônias, juntamente com avaliação citométrica de fluxo e análise de proteínas relacionadas ao ciclo celular, associaram consistentemente a superexpressão do LINC01871 a uma maior sensibilidade ao ribociclib e ao palbociclib. Ensaios separados de proliferação e o modelo de xenoenxerto forneceram apoio adicional a uma associação inibitória entre a superexpressão do LINC01871 e o crescimento do câncer de mama.
Para explorar mecanismos que possam estar por trás dessas observações, examinamos os perfis funcionais dos genes diferencialmente expressos entre os grupos com alto e baixo LINC01871 e dos genes coexpressos com o LINC01871. As análises GO e KEGG associaram ambos os conjuntos de genes a processos relacionados ao sistema imunológico e à sinalização NF-κB. Esse achado é relevante para a regulação do ciclo celular, pois já foi relatado que a sinalização NF-κB aumenta a expressão da ciclina D e, consequentemente, facilita a progressão do ciclo celular25,26. Zhou et al. demonstraram ainda que a NF-κB pode interagir com o promotor do CDK6 e estimular a transcrição do CDK627. Também já foi descrita uma interação entre a NF-κB e a via PI3K/AKT/mTOR28, sendo essa última via implicada na resistência aos inibidores do CDK4/611. Em conjunto, essas observações fornecem uma justificativa para examinar a atividade da NF-κB no contexto do LINC01871. De acordo com os resultados de enriquecimento, células que superexpressam o LINC01871 exibiram menor fosforilação de P65. No entanto, esses dados estabelecem uma associação e não um mecanismo regulatório direto, e a forma como o LINC01871 influencia a sinalização NF-κB permanece por ser determinada.
O microambiente imunológico representa outro fator potencial na resposta aos inibidores de CDK4/6. Células T γδ, por exemplo, foram relatadas como facilitadoras da resistência por meio de efeitos mediados por macrófagos CX3CR1⁺29. Luo et al. observaram maior infiltração de células T CD8⁺ e células NK em tumores de pacientes que desenvolveram resistência aos inibidores de CDK4/6 em momentos posteriores30. Nossa análise de célula única mostrou que a expressão de LINC01871 era mais acentuada em células T e células NK do que em células epiteliais. Análises complementares baseadas em transcriptoma associaram maior expressão de LINC01871 a uma infiltração estimada mais elevada de células T CD8⁺, macrófagos M1 e células NK, e a uma infiltração estimada menor de macrófagos M2 e Tregs. Células T CD8⁺, macrófagos M1 e células NK têm sido associadas à atividade imunológica antitumoral, enquanto macrófagos M2 foram ligados a funções promotoras de tumor31,32,33,34. Em conjunto, nossos resultados sugerem que uma expressão mais elevada de LINC01871 pode estar associada a um microambiente tumoral mais imunologicamente ativo. Essa interpretação permanece preliminar, entretanto, porque as estimativas de células imunes foram inferidas a partir de perfis transcriptômicos e não diretamente medidas, e estudos funcionais serão necessários para estabelecer se LINC01871 tem um papel na modulação do microambiente imunológico.
Várias limitações devem ser reconhecidas ao interpretar esses achados. Primeiro, LINC01871 foi identificado por meio de uma análise integrativa de múltiplos ômicas na qual a resposta ao fármaco foi inferida computacionalmente, em vez de obtida a partir de pacientes recebendo inibidores de CDK4/6. Embora experimentos diretos in vitro tenham mostrado maior sensibilidade ao palbociclib e ao ribociclib após a superexpressão de LINC01871, esses resultados não estabelecem seu valor preditivo em pacientes. Portanto, serão necessárias coortes independentes com exposição documentada a inibidores de CDK4/6 e dados de resposta clínica para avaliar LINC01871 como biomarcador preditivo. Segundo, a análise de descoberta foi inicialmente realizada em toda a coorte TCGA-BRCA, que engloba subtipos clinicamente heterogêneos de câncer de mama. A associação entre LINC01871 e sensibilidade predita ao fármaco também foi observada dentro do subgrupo positivo para HR e negativo para HER2; no entanto, a confirmação em populações clinicamente tratadas, positivas para HR e negativas para HER2, permanece necessária. Terceiro, nossas análises de resposta ao fármaco foram restritas ao palbociclib e ao ribociclib, porque dados correspondentes de resposta ao abemaciclib não estavam disponíveis no conjunto de dados GDSC2 utilizado neste estudo. Portanto, permanece desconhecido se a associação observada se estende ao abemaciclib. Quarto, apesar dos efeitos supressores de tumor observados nos experimentos baseados em células e em xenoenxertos, a ligação molecular entre LINC01871 e a sinalização NF-κB ainda não foi estabelecida. A fosforilação reduzida de P65 acompanhou a superexpressão de LINC01871, mas o mecanismo responsável por essa associação exige investigação adicional. Da mesma forma, as observações relacionadas ao sistema imunológico foram derivadas principalmente de análises computacionais baseadas em transcriptoma e devem ser interpretadas como associações, e não como evidência de que LINC01871 regula diretamente o microambiente imunológico do tumor. Por fim, a resistência aos inibidores de CDK4/6 envolve múltiplos processos biológicos, e é improvável que LINC01871 explique toda a complexidade da resposta ao tratamento. Assim, investigações futuras devem incorporar coortes específicas de subtipos, avaliação do abemaciclib, validação experimental das associações relacionadas ao sistema imunológico, estudos mecanicistas da relação entre LINC01871 e a sinalização NF-κB, e avaliação clínica prospectiva para determinar se LINC01871 possui utilidade como biomarcador preditivo.
Divulgações
Conflito de Interesse:
Os autores declaram que não têm interesses concorrentes.
Agradecimentos
Esta pesquisa foi apoiada pela Fundação de Ciências Naturais da Província de Fujian (Concessão nº 2022J011056). Os autores agradecem ao The Cancer Genome Atlas (TCGA) e ao Gene Expression Omnibus (GEO) pelo fornecimento dos conjuntos de dados disponibilizados publicamente utilizados neste estudo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Agulhas de seringa 25 G | Beyotime | FS802-30pcs | Agulhas de seringa descartáveis utilizadas para o retrator bucal e opcionalmente para o pré-alargamento do ligamento periodontal |
| Solução de paraformaldeído a 4% | Solarbio | P1110 | Solução de paraformaldeído a 4% utilizada para fixação de espécimes |
| Etanol a 75% | Ouse Medical Devices Store | N/A | Etanol grau médico a 75% utilizado para desinfecção superficial |
| Camundongos C57BL/6 | Charles River | 213 | Camundongos machos C57BL/6 com 8 semanas de idade pesando entre 22–29 g |
| Carprofeno | Solarbio | C5350 | Analgésico pós-operatório administrado por via subcutânea na dose de 5 mg/kg |
| Bolas de algodão | Ouning Medical Devices | N/A | Bolas de algodão estéreis utilizadas para limpeza oral e hemostasia |
| CTAn v1.18.4.0+ | SkyScan | N/A | Software utilizado para análise de imagens de μCT |
| DataViewer v1.5.6.2 | SkyScan | N/A | Software utilizado para visualização e exportação de imagens de μCT reconstruídas |
| Protetores digitais | LeSu Office | MEKU-1/2/3B | Protetores digitais utilizados para proteção do polegar durante a extração |
| Placa de espuma | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Placa de espuma utilizada como plataforma cirúrgica e de fixação |
| Dieta em gel | ReadyDietech | J10001 | Dieta pós-operatória fornecida no fundo da gaiola por 3 dias, quando utilizada |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | Software utilizado para análise estatística e geração de gráficos |
| Lanterna de cabeça | Bazhou Pengen Protective Equipment Factory | N/A | Lanterna de cabeça utilizada para iluminar o campo cirúrgico |
| Manta térmica | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Manta térmica pré-aquecida a aproximadamente 38 °C para recuperação pós-operatória |
| Fantoma de hidroxiapatita | QRM | QRM-70127 | Fantoma de calibração utilizado para converter valores de atenuação de CT em densidade mineral óssea |
| Dispositivo de ampliação | Olympus Corporation | SZX10 | Dispositivo utilizado para inspecionar as pontas da pinça dentada e o alvéolo de extração com ampliação |
| Máscara | Senlun Medical Devices Specialty Store | N/A | Máscara cirúrgica |
| Scanner de microtomografia computadorizada | Bruker SkyScan | SkyScan 1276 | Scanner de μCT utilizado com 80 kV, 500 μA e resolução de vóxel de 10 μm |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Software utilizado para reconstrução tridimensional |
| Pentobarbital de sódio | Sigma-Aldrich | P3761 | Salm de pentobarbital de sódio utilizado como solução anestésica a 1% |
| Solução salina tamponada com fosfato | Solarbio | P1010 | Pó de solução salina tamponada com fosfato 0,01 M, pH 7,2–7,4 |
| Solução antisséptica de poviodona-iodo | Belkon Pharmacy Flagship Store | N/A | Solução de poviodona-iodo utilizada para desinfecção abdominal |
| Elásticos | Foshan Puli Rubber Products Factory | N/A | Elásticos utilizados para montar o retrator bucal |
| Solução salina | Thermo Fisher | BR0053G | Comprimidos salinos utilizados para preparar a solução para limpeza oral |
| Dieta padrão em ração | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Ração padrão utilizada para criação habitual e amolecida para alimentação pós-operatória |
| Esterilizador a vapor | Instalação institucional | N/A | Equipamento utilizado para esterilizar as pinças dentadas e a solução salina |
| Hastes flexíveis estéreis | Kangbailai Medical Devices Store | N/A | Hastes flexíveis estéreis de uso único |
| Luvas estéreis | Senlun Medical Devices Specialty Store | N/A | Luvas estéreis de látex |
| Tecido não tecido estéril | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Tecido não tecido estéril utilizado para cobrir a superfície cirúrgica e a manta térmica |
| Capote cirúrgico estéril | Senlun Medical Devices Specialty Store | N/A | Capote cirúrgico estéril |
| Uniforme cirúrgico | Senlun Medical Devices Specialty Store | N/A | Uniforme cirúrgico limpo usado durante o procedimento |
| Fita adesiva | Thermo Fisher | 15947 | Fita adesiva utilizada para fixar as patas do camundongo |
| Pinça oftálmica dentada | Beyotime | FS229 | Pinça oftálmica dentada utilizada como pinça dental |
| Pomada oftálmica veterinária | Dechra Veterinary Products | 143-16 | Pomada oftálmica aplicada após a anestesia para prevenir a dessecação da córnea |
Referências
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.