Este estudo apresenta um fluxo de trabalho integrado de visualização que combina a coleta e o processamento padronizados do fluido de lavagem broncoalveolar, um painel de citometria de fluxo com sete marcadores, um ensaio multiplex de citocinas com 13 analitos e um pipeline unificado de análise.
Artigo de investigação
Visualização Integrada do Recrutamento de Neutrófilos e do Perfil de Citocinas Inflamatórias em Fluido de Lavagem Broncoalveolar
Neste artigo
Resumo
Resumo
O líquido de lavagem broncoalveolar (LLBA) é a matriz de amostragem mais diretamente acessível para o estudo da inflamação das vias aéreas inferiores, porém as análises convencionais baseiam-se em citometria de fluxo de marcador único combinada com ensaio imunoenzimático (ELISA) analito por analito, uma abordagem que limita a densidade de informações e oculta o acoplamento célula-fator. Este estudo apresenta um fluxo de trabalho integrado de visualização que associa coleta e pré-processamento padronizados a um painel de citometria de fluxo com sete marcadores para neutrófilos e monócitos, um ensaio multiplex de citocinas com 13 analitos e um pipeline unificado de análise baseado na aproximação uniforme de variedades e projeção (UMAP), metaagrupamento FlowSOM, agrupamento hierárquico, redes de correlação de Spearman e análise de componentes principais (PCA).
O fluxo de trabalho foi aplicado a uma coorte prospectiva de centro único composta por 112 adultos submetidos à broncoscopia, incluindo 64 pacientes com infecção pulmonar confirmada microbiologicamente e 48 controles sem infecção. As análises citológicas e de citometria de fluxo revelaram uma mudança acentuada de um perfil alveolar dominado por macrófagos para um dominado por neutrófilos durante a infecção, com o percentual de neutrófilos aumentando de uma mediana de 3,2% para 68,4% e a concentração absoluta de neutrófilos elevando-se aproximadamente 50 vezes. O perfil multiplex identificou uma resposta coordenada de citocinas em três módulos, com os módulos quimiocina, pró-inflamatório e regulador todos regulados para cima, e CXCL8/IL-8, IL-1β, IL-6, CXCL1/GRO-α e G-CSF apresentando a melhor discriminação individual dentro da coorte do estudo (área sob a curva [AUC] de 0,89 a 0,94). A visualização integrativa utilizando PCA, uma matriz de correlação e um gráfico em rede revelou um eixo neutrófilo–quimiocina fortemente acoplado ao nível dos participantes, com a contagem de neutrófilos no LBA surgindo como o principal centro da rede.
O fluxo de trabalho utiliza apenas materiais rotineiramente obtidos de lavado broncoalveolar indicado clinicamente, não requer volume adicional de amostra e fornece uma estrutura rica em informações para resolver a inflamação das vias aéreas em infecções respiratórias, o que pode ser viável em laboratórios de atenção terciária equipados com citometria de fluxo multiparamétrica e plataformas de matriz de microesferas multiplex, estendendo-se a estudos longitudinais, de única célula e de avaliação terapêutica. A adoção clínica mais ampla de analitos individuais como biomarcadores exigirá validação prospectiva em coortes multicêntricas independentes.
Introdução
As mortes por infecções do trato respiratório inferior continuam sendo uma causa significativa de mortalidade global, apesar dos avanços nas estratégias de vacinação e modalidades de tratamento; no entanto, isso permanece especialmente verdadeiro entre as populações pediátrica e idosa1. Os neutrófilos são as principais células relatadas nas fases iniciais de uma resposta imune inata no sistema respiratório afetado, um processo vital para a eliminação do patógeno invasor; entretanto, a inflamação neutrófila descontrolada resulta na ruptura da barreira alveolocapilar, em danos oxidativos aos tecidos e no desenvolvimento da síndrome do desconforto respiratório agudo (SDRA)2,3. Os neutrófilos no espaço aéreo pulmonar também exibem cinética de recrutamento, padrões de retenção e comportamento efetor que diferem de outros tecidos, e essas diferenças influenciam se a infecção se resolve ou progride para pneumonia grave4.
O líquido de lavagem broncoalveolar (BALF) é uma fonte importante de informações sobre o microambiente alveolar e oferece a representação mais próxima da imunidade clínica neste local5. A quimiocina CXCL8 desempenha um papel essencial no recrutamento de neutrófilos para os pulmões por meio de seus receptores, CXCR1 e CXCR2, juntamente com outras quimiocinas, incluindo CXCL1, CXCL2 e CXCL56. As citocinas IL-1β, IL-6 e TNF-α potencializam ainda mais esse processo, enquanto a IL-10 atua como uma citocina contrarreguladora. Os níveis dessas citocinas no BALF demonstraram correlação com a gravidade das infecções pulmonares e com o desenvolvimento de complicações pulmonares devido à pneumonia bacteriana, viral e atípica7, e perfis multiplex de biomarcadores no BALF estão sendo adotados para diagnóstico precoce e discriminação de patógenos em infecções do trato respiratório inferior8.
A análise rotineira de LBA geralmente não abrange completamente a biologia subjacente ao exame. As contagens celulares podem ser estimadas por diferenciação manual de células em amostras de citocentrifugação, enquanto mediadores solúveis são medidos por meio de ensaios imunoenzimáticos individuais (ELISA) e apresentados em gráficos de barras. Quimiocinas, citocinas e cada tipo celular são avaliados separadamente, sem estabelecer correlação entre um gradiente de concentração específico de quimiocina e as populações celulares que ela afeta na amostra. A combinação de módulos de citocinas, relações dose-resposta entre quimiocinas e neutrófilos e subpopulações de pacientes com suas próprias assinaturas inflamatórias é frequentemente ignorada na ausência de análise multivariada9.
Os avanços na computação tornam essa abordagem holística progressivamente realista. A combinação da citometria de fluxo multiparamétrica e da citometria de fluxo espectral com abordagens de redução de dimensionalidade, como o t-SNE (t-distributed stochastic neighbor embedding) ou o UMAP (uniform manifold approximation and projection), permite o mapeamento de fenótipos imunes de alta dimensionalidade em um espaço bidimensional, sendo que o UMAP demonstrou melhor retenção da topologia global e maior reprodutibilidade ao ser aplicado a dados de citometria10. Painéis multianalíticos de citocinas, seguidos por agrupamento hierárquico e redes de correlação, ajudam a identificar assinaturas associadas à gravidade que não são detectáveis por abordagens baseadas em uma única citocina11. Apesar dos avanços na área, ainda não existe um fluxo de trabalho que reúna esses métodos para estudar o recrutamento de neutrófilos e as assinaturas de citocinas a partir das mesmas amostras de LBA em infecções respiratórias. Este estudo descreve um fluxo de trabalho integrado de visualização para investigar o recrutamento de neutrófilos utilizando citologia e citometria de fluxo multiparamétrica, seguido de análises de UMAP e de assinaturas de citocinas por meio de imunoensaio multiplexado, com agrupamento hierárquico, matrizes de correlação e análise de componentes principais. O fluxo de trabalho gera uma visualização integrada que engloba leituras imunes celulares e solúveis das vias aéreas em um único gráfico, utilizando amostras de LBA obtidas rotineiramente durante broncoscopia indicada clinicamente em infecções do trato respiratório inferior.
Protocolo
População do estudo e ética
Este foi um estudo observacional prospectivo de centro único conduzido em um hospital universitário entre janeiro de 2026 e abril de 2026. O protocolo foi aprovado sob o número de aprovação 2026HL-038, e o consentimento informado por escrito foi obtido de todos os participantes antes de qualquer procedimento do estudo.
Adultos com idade entre 18 e 75 anos submetidos à broncoscopia flexível diagnóstica com lavado broncoalveolar (LBA) como parte do atendimento clínico de rotina foram recrutados consecutivamente e alocados em um grupo de infecção ou em um grupo controle sem infecção, com base nos diagnósticos clínicos e microbiológicos finais. Uma visão geral do fluxo de trabalho de visualização integrada, desde o recrutamento dos pacientes até as saídas visuais integradas, é apresentada na Figura 1.
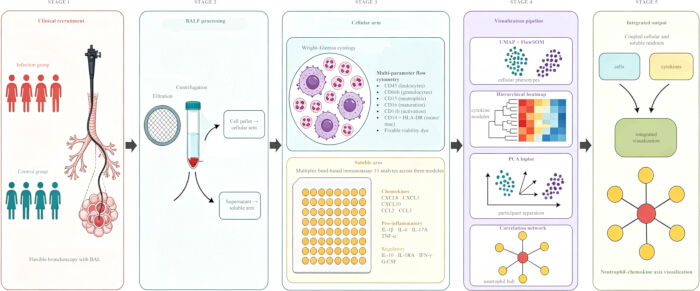
Figura 1: Visão geral do fluxo de trabalho integrado de visualização para o perfilamento baseado em LBA da recrutamento de neutrófilos e respostas de citocinas inflamatórias. Os cinco estágios resumem, da esquerda para a direita, o recrutamento prospectivo dos grupos de infecção e controle com broncoscopia e LBA, o pré-processamento do LBA em um pellet celular e uma fração de sobrenadante, medições celulares paralelas (citologia com Wright–Giemsa e citometria de fluxo multiparamétrica) e solúveis (ensaio imunológico baseado em microesferas 13-plex), o pipeline unificado de visualização (UMAP com metaagrupamento FlowSOM, mapa térmico hierárquico, análise de componentes principais e rede de correlação de Spearman) e a saída visual integrada. Abreviações: LBA = lavado broncoalveolar; LBAF = fluido de LBA; UMAP = projeção e aproximação uniforme de variedades. Clique aqui para visualizar uma versão maior desta figura.
Os critérios de inclusão para o grupo de infecção foram os seguintes: (1) pacientes diagnosticados com pneumonia adquirida na comunidade (PAC), pneumonia adquirida no hospital (PAH) ou pneumonia associada à ventilação (PAV), conforme diretrizes da Sociedade Americana de Doenças Infecciosas (IDSA) e da Sociedade Torácica Americana (ATS); (2) detecção de um ou mais patógenos por meio de cultura de LBA com ≥104 unidades formadoras de colônias (UFC)/mL, reação em cadeia da polimerase respiratória multiplex (PCR), sequenciamento metagenômico de nova geração de LBA ou testes específicos de antígeno/anticorpo a partir de espécimes pareados de vias respiratórias/soro.
Os critérios do grupo controle foram os seguintes: (1) razões não infecciosas para broncoscopia, consistindo na avaliação de um nódulo pulmonar indeterminado, resultados de exames de imagem anormais que não sugerem infecção ou exame para tosse crônica; (2) ausência de infecção pulmonar aguda demonstrada por resultados negativos nos testes microbiológicos e ausência de quaisquer sinais de inflamação ou infecção sistêmica no momento da broncoscopia; e (3) ausência de uso de antibióticos nos 30 dias anteriores à participação. Os controles foram recrutados entre pacientes submetidos à broncoscopia por outras condições pulmonares clinicamente indicadas, e não entre voluntários saudáveis, refletindo a população da qual o lavado broncoalveolar clinicamente indicado é rotineiramente obtido no centro do estudo.
Os critérios de exclusão incluíram: (1) neoplasia maligna e/ou quimioterapia citotóxica nos últimos seis meses; (2) soropositividade para HIV; (3) transplante de órgão sólido ou de células-tronco hematopoiéticas; (4) terapia imunossupressora prolongada envolvendo uma dose diária equivalente de prednisona > 0,3 mg/kg por mais de 3 semanas; (5) mulheres grávidas ou em período de amamentação; (6) histórico de diatese hemorrágica ou quaisquer contraindicações à broncoscopia flexível; (7) doença respiratória crônica grave preexistente (doença pulmonar obstrutiva crônica [DPOC] estágio III/IV da Iniciativa Global para Doença Pulmonar Obstrutiva Crônica [GOLD], fibrose pulmonar idiopática, asma persistente grave ou bronquiectasias clinicamente significativas); (8) tuberculose ativa; (9) participação em outro estudo intervencionista nos últimos 30 dias. A lavagem broncoalveolar (LBA) foi realizada durante a primeira broncoscopia, nas primeiras 72 horas após a admissão por infecções e nas primeiras 48 horas após a intubação em pacientes sob ventilação mecânica com infecções.
Os cálculos do tamanho da amostra foram focados no desfecho celular primário: o número de neutrófilos no LBA entre os grupos. Considerando um tamanho do efeito esperado de 0,6 DP entre vias aéreas infectadas e não infectadas, e admitindo uma margem de 15% para desistências, foi necessário um tamanho mínimo de amostra de 45 indivíduos por grupo, com α bicaudal = 0,05 e poder estatístico de 80%. Dos 156 candidatos elegíveis, 27 não satisfizeram os critérios de elegibilidade (18 não cumpriram os critérios de inclusão, principalmente devido à incapacidade de identificar um agente patogênico responsável pela doença dentro do período estipulado ou à falta de concordância com o próprio procedimento; 9 descumpriram os critérios de exclusão, principalmente por malignidade ativa ou histórico de administração de quimioterapia, uso crônico de corticosteroides, doença pulmonar crônica pré-existente grave ou diatese hemorrágica). Os 129 participantes restantes foram submetidos à broncoscopia. Posteriormente, 17 indivíduos foram retirados do estudo (7 por rendimento inadequado de LBA < 40%; 4 por retirada do consentimento durante a hospitalização; e 6 por reclassificação dos indivíduos após avaliação microbiológica final – 4 candidatos controle diagnosticados com infecção oculta com base nos resultados de cultura; e 2 candidatos com infecção que não apresentaram evidência de infecção após análise de cultura). O grupo final de participantes do estudo foi composto por 112 indivíduos: 64 com infecção e 48 sem infecção.
Coleção e pré-processamento de LBA
A broncoscopia foi realizada por operadores qualificados seguindo o protocolo institucional padrão, conforme as recomendações técnicas publicadas para lavagem broncoalveolar12. A lidocaína foi usada topicamente, e os pacientes receberam sedação intravenosa moderada enquanto oxigênio suplementar era fornecido para manter a saturação de oxigênio (SpO₂) >92%. O broncoscópio flexível foi inserido e posicionado no segmento brônquico-pulmonar com anormalidades radiológicas. Nos casos em que as anormalidades radiológicas eram difusas ou não localizáveis, os segmentos do lobo médio direito ou da língula esquerda foram escolhidos. Após cada instilação, foi realizada sucção manual suave com pressão negativa < 100 mmHg. Um total de três a cinco instilações de solução salina estéril a 37 °C, com 20–40 mL cada, totalizando um volume de 100–150 mL, foi administrado. A razão de recuperação foi estimada como o volume recuperado em relação ao volume instilado, e somente amostras com recuperação ≥40% foram consideradas para análise.
As amostras coletadas a partir do segundo lavado e dos subsequentes foram agrupadas para reduzir a contaminação brônquica e obter uma amostra enriquecida em alvéolos. O pool de líquido de lavagem broncoalveolar (BALF) foi mantido sob gelo e processado dentro de 2 h após a coleta, levando em consideração descobertas recentes sobre alterações na composição celular e nas contagens diferenciais após armazenamento prolongado e aquecimento de amostras humanas de BALF13. Após a filtração utilizando uma malha de náilon estéril com porosidade de 70 micrômetros para remover o muco, realizada exclusivamente por passagem mecânica, sem adição de agente mucolítico ou anticlumpante como o ditiotreitol, já que testes preliminares demonstraram que isso era suficiente para remover os coágulos de muco sem perda mensurável da integridade dos epítopos superficiais em etapas subsequentes, o fluido foi submetido à centrifugação a 400 × g durante 10 min a 4 °C. O sobrenadante foi decantado e fracionado em criotubos de baixa ligação proteica para análise de citocinas, e as células foram suspensas em solução salina tamponada com fosfato (PBS) contendo 0,5% de albumina sérica bovina e 2 mM de ácido etilenodiaminotetraacético (EDTA), sendo parte delas mantida para citologia e citometria de fluxo. As amostras de citocinas foram congeladas em nitrogênio líquido, armazenadas a –80 °C e submetidas a não mais do que um ciclo de congelamento-descongelamento antes do uso.
Citologia de neutrófilos e quantificação por citometria de fluxo
Em termos de citopatologia, 100 µL da suspensão celular de LBA foi aplicado em lâmina de vidro utilizando um citocentrífugo (ver Tabela de Materiais) a 300 ×g durante 5 min, secado ao ar e corado com Wright-Giemsa. A contagem diferencial foi realizada por um tecnologista em hematologia sem conhecimento do histórico clínico do paciente, que contou um mínimo de 400 células por lâmina e calculou as porcentagens de macrófagos, linfócitos, neutrófilos e eosinófilos. As porcentagens de neutrófilos no LBA foram consideradas a medida de desfecho primária para citopatologia, dada a evidência atual que sugere sua utilidade na distinção entre doenças pulmonares infecciosas e não infecciosas em pacientes com infiltrados pulmonares14.
O protocolo de quantificação por citometria de fluxo baseou-se em uma validação recente do protocolo de diferenciação de leucócitos em fluido de lavagem broncoalveolar (BALF) com quatro cores15 e incluiu marcadores adicionais para identificar neutrófilos. Especificamente, cerca de 5 × 10⁵ células isoladas do BALF foram bloqueadas com um reagente bloqueador de receptores Fc humanos (ver Tabela de Materiais) por 10 min a 4 °C, e então coradas por 20 min a 4 °C com anticorpos contra CD45 (clone HI30), CD66b (clone G10F5), CD15 (clone HI98), CD16 (clone 3G8), CD11b (clone ICRF44), CD14 (clone M5E2) e HLA-DR (clone L243), além de um corante viável fixável (ver Tabela de Materiais). Para a lise de eritrócitos, foi utilizada uma solução comercial de lise de eritrócitos (ver Tabela de Materiais) por 10 min à temperatura ambiente. Após a lise de eritrócitos, as células foram lavadas duas vezes com PBS suplementado com 2% de soro fetal bovino e ressuspendidas em tampão de citometria, sendo então analisadas em um citômetro de fluxo multicolorido (ver Tabela de Materiais). A compensação foi realizada utilizando microesferas de compensação monocoradas (ver Tabela de Materiais), e foram incluídos tubos de fluorescência menos um e tubos não corados para cada painel.
Pelo menos 1 × 10⁵ CD45⁺ os eventos foram adquiridos para cada amostra. Primeiro, foram selecionados os singletos no gráfico FSC-A/FSC-H, seguidos pelas células viáveis (corante de viabilidade⁻CD45⁺ leucócitos, após o qual a exclusão de CD14⁺HLA-DR⁺ monócito-macrófagos foi realizado para selecionar dispersão lateral alta CD66b⁺ granulócitos. Os neutrófilos foram então definidos dentro da população de granulócitos como CD15⁺CD16⁺CD11b⁺ eventos. Este CD66b primário⁺ o portão de granulócitos foi delineado amplamente ao redor de todos os eventos com alta dispersão lateral, em vez de ser restrito ao CD15⁺CD16⁺CD11b⁺ limite, de modo que neutrófilos ativados CD16-baixo, CD11b-alto e outras formas de granulócitos menos maduras permaneceram dentro da contagem automatizada total de neutrófilos; o critério mais rigoroso de CD15⁺CD16⁺CD11b⁺ a definição foi aplicada apenas para caracterizar o subconjunto de neutrófilos maduros relatado separadamente nas análises de agrupamento subsequentes. A contagem de neutrófilos no LBA (células/µL) foi estimada com base na porcentagem de neutrófilos e na contagem total de células nucleadas determinada por meio de um analisador hematológico automatizado (ver Tabela de Materiais). As matrizes de compensação, a estratégia de gates e os relatórios individuais de controle de qualidade das amostras foram arquivados, e os analistas permaneceram cegos quanto à atribuição dos participantes aos grupos durante toda a aquisição e análise.
Perfilagem multiplex de citocinas inflamatórias
Os sobrenadantes de LBA foram descongelados uma vez em gelo derretido, seguidos por breve vortex e clarificação por centrifugação a 10.000 × g durante 5 min a 4 °C, imediatamente antes do ensaio. A medição de 13 analitos em três categorias funcionais foi realizada utilizando uma plataforma de imunoensaio multiplex baseada em microesferas, com um painel personalizado de microesferas magnéticas (ver Tabela de Materiais). O grupo pró-inflamatório incluiu IL-1β, IL-6, IL-17A e TNF-α; o grupo de quimiocinas incluiu CXCL8/IL-8, CXCL1/GRO-α, CXCL10/IP-10, CCL2/MCP-1 e CCL3/MIP-1α; e o grupo regulatório incluiu IL-10, IFN-γ, IL-1RA e G-CSF. A escolha dos analitos baseou-se nos mais frequentemente relatados como informativos em análises multiplex de citocinas em LBA ou soro em estudos de pneumonia/infeção respiratória grave7,11. O fator de diluição (1:2 em tampão de ensaio) foi determinado a partir de um experimento piloto realizado em um subconjunto representativo de amostras infectadas e controles, para garantir que >90% das medições estivessem dentro da curva-padrão.
As curvas padrão foram determinadas utilizando diluições seriadas de sete pontos dos padrões recombinantes do fabricante, preparadas em duplicata em cada placa, incluindo um poço em branco para subtrair o fundo. O ajuste da curva foi realizado por regressão logística de cinco parâmetros (5PL) por meio do software proprietário de aquisição e análise do instrumento (consulte a Tabela de Materiais). O limite inferior de quantificação (LIQ) foi calculado como a menor quantidade de padrão que gerou uma recuperação por retroajuste entre 80% e 120% e um coeficiente de variação intrarrodada (CV) ≤ 20%. Os valores que ficaram abaixo do LIQ foram substituídos por LIQ/√2. Duas amostras pool de fluido de lavagem broncoalveolar (BALF) para controle de qualidade, cada uma proveniente de um paciente infectado representativo e de um indivíduo não afetado, foram aliquotadas e adicionadas a cada placa para acompanhar o desempenho a longo prazo. Os padrões de garantia de qualidade basearam-se em recomendações de boas práticas derivadas de um programa de proficiência multicêntrico de ensaio multiplex baseado em microesferas com 12 anos de duração16, incluindo requisitos de CV intraensaio ≤ 10% em poços em duplicata, CV interplaca ≤ 20% para controle de qualidade e contagem mínima de microesferas de ≥ 50 por analito por poço. As placas que não atenderam aos critérios acima foram repetidas. A análise foi realizada em um único lote dentro de quatro semanas, utilizando um único lote do kit, com aleatorização intercalada das amostras de infecção e controle.
Pipeline de análise de visualização
Os arquivos padrão de citometria de fluxo (FCS) foram inicialmente analisados usando software comercial de citometria de fluxo (consulte a Tabela de Materiais) para compensar e selecionar eventos únicos vivos de CD45⁺, e depois exportados para análise imparcial em R v4.4. Para cada amostra, 10.000 eventos de CD45⁺ foram subamostrados e concatenados, e as intensidades de sinal foram transformadas utilizando a função arcsinh com um coefator de 150. A redução de dimensionalidade e as projeções UMAP foram realizadas usando o pacote uwot com 15 vizinhos mais próximos e uma distância mínima de 0,1, juntamente com incorporações t-SNE paralelas usando o pacote Rtsne com perplexidade 3010. Os agrupamentos fenotípicos foram identificados utilizando o FlowSOM com 100 nós de mapa auto-organizável e posteriormente divididos em 12–15 agrupamentos por meio de metaagrupamento, utilizando uma abordagem baseada em otimização recentemente validada para dados de citometria de alta dimensionalidade17. Cada agrupamento foi anotado com base na expressão mediana de marcadores de linhagem e ativação e revisado em comparação com os seletores manuais.
Para a análise de dados multiplex de citocinas, os valores brutos foram primeiramente transformados por log₁₀ e, em seguida, padronizados entre analitos por meio de escore z antes das análises adicionais. Tanto os analitos quanto os pacientes foram submetidos a agrupamento hierárquico utilizando distância euclidiana e ligação Ward.D2; os resultados foram exibidos em um mapa de calor com agrupamento em linhas e colunas. Essa abordagem foi utilizada para detectar módulos de citocinas coexpressas e classificar subconjuntos de pacientes em coortes inflamatórias multiplex9. Matrizes de correlação foram geradas para todos os biomarcadores celulares e solúveis utilizando correlações de postos de Spearman por pares. Mapas de calor das matrizes de correlação foram plotados ao lado de uma rede na qual os nós correspondem aos biomarcadores e as arestas indicam correlações que resistiram à correção para múltiplos testes pelo método de Benjamini–Hochberg (BH). A largura das arestas foi ajustada de acordo com a magnitude do coeficiente de correlação |ρ|, e as arestas foram incluídas apenas se |ρ| ≥ 0,30 e p < 0,05 após a correção. A análise de componentes principais (PCA) foi realizada na matriz padronizada contendo células e citocinas utilizando a função prcomp() com escala de variância unitária. Os participantes foram projetados nos dois primeiros componentes principais, com os grupos de infecção e controle sobrepostos. O subamostragem consistente e a padronização de todas as análises garantiram a comparabilidade entre leituras de biomarcadores celulares e solúveis em todas as visualizações.
Análise estatística
As variáveis contínuas foram descritas pela mediana (intervalo interquartil, IIQ) quando não normais segundo o teste de Shapiro–Wilk, e pela média (desvio padrão, DP) caso contrário. As variáveis categóricas foram descritas por frequências e proporções. As comparações entre grupos foram realizadas utilizando o teste de Mann–Whitney U teste quando as variáveis contínuas tinham distribuições não normais, o Welch t-teste quando as variáveis contínuas apresentavam distribuição normal, e o teste qui-quadrado/teste exato de Fisher quando aplicável para variáveis categóricas. As associações entre variáveis contínuas foram avaliadas por meio do coeficiente de correlação de postos de Spearman. Para controle da taxa de falsas descobertas (FDR) nas análises multiplex de citocinas e de correlação, os valores de p foram ajustados utilizando o método de Benjamini–Hochberg com um valor-limite de q < 0,05. Bidirecional p < 0,05 foi considerado estatisticamente significativo em todas as análises primárias. Sempre que possível, os casos com dados ausentes em variáveis individuais foram mantidos e analisados por análise de casos completos para a variável afetada, enquanto foram realizadas imputações múltiplas usando equações encadeadas (m = 20) para conduzir análises de sensibilidade. Curvas de característica de operação do receptor e a área correspondente sob a curva (AUC) foram geradas para citocinas individuais utilizando o pacote pROC na coorte completa do estudo; uma coorte separada de validação externa não foi utilizada. Análises de sensibilidade pré-especificadas repetiram as comparações entre os grupos primários após a exclusão dos participantes que tinham recebido antibióticos nas 72 horas anteriores à broncoscopia, e após a estratificação do grupo de infecção conforme o status de ventilação mecânica e o subtipo de pneumonia (adquirida na comunidade, adquirida no hospital ou associada à ventilação). As análises foram realizadas utilizando os pacotes rstatix, FlowSOM, uwot, ComplexHeatmap, igraph, pROC e mice no R v4.4. As figuras foram geradas utilizando software comercial de gráficos científicos (ver Tabela de Materiais).
Resultados
Características da população e da amostra do estudo
Houve 112 indivíduos na coorte final de análise, com 64 indivíduos no grupo de infecção e 48 no grupo controle sem infecção. As características demográficas basais foram semelhantes entre os grupos, enquanto os parâmetros laboratoriais relacionados à infecção foram mais elevados no grupo de infecção, conforme mostrado na Tabela 1. As infecções foram causadas principalmente por bactérias Gram-negativas, sendo os principais patógenos bacterianos Klebsiella pneumoniae, Pseudomonas aeruginosa e Acinetobacter baumannii. Outros patógenos incluíram Streptococcus pneumoniae, Staphylococcus aureus, agentes atípicos, vírus e infecções mistas.
As taxas de recuperação do LBA atenderam o limiar pré-especificado de ≥40% para todas as amostras mantidas, com taxas ligeiramente menores no grupo de infecção em comparação com o grupo controle (mediana de 48,3% versus 53,3%, p = 0,03), consistente com maior inflamação das vias aéreas e congestão da mucosa nas vias aéreas infectadas. Como o volume recuperado também diferiu entre os grupos (58 mL versus 64 mL, p = 0,04), todas as concentrações de citocinas relatadas podem estar sujeitas a uma pequena diferença entre grupos no fator de diluição; uma análise de sensibilidade pré-especificada, restrita às amostras com taxa de recuperação ≥50% (n = 42 infecção, n = 34 controle), reproduziu a direção e magnitude de todas as comparações entre grupos (maior alteração no tamanho do efeito < 8%), indicando que o viés de diluição dificilmente explica as diferenças observadas. O tempo entre a coleta e o processamento foi de 65 min para o grupo de infecção e 62 min para o grupo controle, permanecendo dentro da janela de 2 h. Critérios de controle de qualidade (CQ) no nível da amostra indicaram resultados de alta qualidade. As contagens diferenciais citológicas foram obtidas com base em ≥400 células contadas em todas as 112/112 amostras (100%). As aquisições de citometria de fluxo atenderam ao critério pré-especificado de ≥1 × 10⁵ eventos CD45⁺ em todas as 112/112 amostras (100%), com mediana de viabilidade de células vivas de 89,4% (IIQ 85,6–92,8%). Todas as placas de citocinas multiplex atenderam aos critérios de CQ após uma única repetição. Para os 13 analitos, o coeficiente de variação intraensaio (CV) foi de 4,7% (2,1–9,3%, todos <10%), o CV interplaca das amostras de CQ em pool foi de 11,2% (6,8–18,4%, todos <20%) e o número mediano de microesferas foi de 78 eventos/analito/poço (53–142, todos ≥ 50).
| Variável | Infecção (n = 64) | Controle (n = 48) | valor p |
| Idade, anos, mediana [IQR] | 62 [54–71] | 60 [52–68] | 0.41 |
| Masculino, n (%) | 38 (59,4) | 26 (54,2) | 0,59 |
| IMC, kg/m2, mediana [IQR] | 23,8 [21,4–26,2] | 23,5 [21,6–25,7] | 0,66 |
| Histórico de tabagismo, n (%) | 0,52 | ||
| Nunca | 28 (43,8) | 25 (52,1) | |
| Ex-fumante | 22 (34,4) | 16 (33,3) | |
| Atualmente fuma | 14 (21,9) | 7 (14,6) | |
| Hipertensão, n (%) | 27 (42,2) | 18 (37,5) | 0,62 |
| Diabetes mellitus, n (%) | 17 (26,6) | 10 (20,8) | 0,49 |
| Doença arterial coronariana, n (%) | 11 (17,2) | 6 (12,5) | 0,51 |
| Doença renal crônica, n (%) | 5 (7,8) | 3 (6,3) | 0,76 |
| Indicação de broncoscopia, n (%) | — | ||
| Pneumonia adquirida na comunidade | 35 (54,7) | — | |
| Pneumonia adquirida no hospital | 19 (29,7) | — | |
| Pneumonia associada à ventilação mecânica | 10 (15,6) | — | |
| Nódulo pulmonar indeterminado | — | 23 (47,9) | |
| Anormalidade radiográfica persistente | — | 15 (31,3) | |
| Avaliação de tosse crônica | — | 10 (20,8) | |
| Patógeno causador, n (%) | — | ||
| Bactérias Gram-negativas | 28 (43,8) | ||
| Bactérias Gram-positivas | 16 (25,0) | ||
| Patógenos atípicos | 7 (10,9) | ||
| Vírus respiratórios | 8 (12,5) | ||
| Infecção mista | 5 (7,8) | ||
| Ventilação mecânica durante a LBA, n (%) | 14 (21,9) | 0 (0) | <0,001 |
| Exposição a antibióticos nas 72 h anteriores à LBA, n (%) | 41 (64,1) | 0 (0) | <0,001 |
| Volume instilado, mL, mediana [IQR] | 120 [120–140] | 120 [120–140] | 0,84 |
| Volume recuperado, mL, mediana [IQR] | 58 [49–68] | 64 [55–73] | 0,04 |
| Taxa de recuperação do LBA, %, mediana [IQR] | 48,3 [42,5–55,6] | 53,3 [46,2–60,5] | 0,03 |
| Tempo até o processamento, min, mediana [IQR] | 65 [50–85] | 62 [48–80] | 0,55 |
| Leucócitos sanguíneos, × 10⁹/L, mediana [IQR] | 11,8 [8,6–14,5] | 6,4 [5,3–7,8] | <0,001 |
| Neutrófilos sanguíneos, %, mediana [IQR] | 78,5 [70,2–86,4] | 60,3 [54,6–66,8] | <0,001 |
| Proteína C-reativa, mg/L, mediana [IQR] | 78,5 [42,6–128,4] | 4,2 [1,8–8,6] | <0,001 |
| Procalcitonina, ng/mL, mediana [IQR] | 0,86 [0,32–2,45] | 0,05 [0,03–0,08] | <0,001 |
Tabela 1: Características demográficas, clínicas e de processamento do LBA da coorte do estudo. As características demográficas basais, comorbidades, indicações de broncoscopia, patógenos causadores, parâmetros do procedimento e valores laboratoriais de sangue periférico são comparados entre os 64 participantes do grupo de infecção e os 48 do grupo controle sem infecção. Variáveis contínuas são apresentadas como mediana [intervalo interquartil] e comparadas utilizando o teste Mann–Whitney U; variáveis categóricas são apresentadas como n (%) e comparadas utilizando o teste qui-quadrado ou o teste exato de Fisher, conforme aplicável. Abreviações: BAL = lavagem broncoalveolar; LBA = líquido de lavagem broncoalveolar; IMC = índice de massa corporal; IIQ = intervalo interquartil; VGM = contagem de leucócitos.
Visualização da recrutamento de neutrófilos no LBA
Foi observado um claro deslocamento na proporção de uma população dominada por macrófagos para uma dominada por neutrófilos entre os indivíduos infectados, conforme mostrado na Figura 2. As preparações do citocentrífugo foram coradas utilizando a técnica de Wright-Giemsa, e a coloração mostrou uma distinção clara entre os dois grupos, em que o grupo controle apresentava mais macrófagos alveolares, alguns linfócitos e poucos neutrófilos, enquanto o grupo infectado era dominado por neutrófilos com bactérias intracelulares frequentes, núcleos degenerados e granulações tóxicas. Contagens diferenciais baseadas em pelo menos 400 células enumeradas foram utilizadas para verificar as diferenças, nas quais a proporção de neutrófilos aumentou de um valor mediano de 3,2% (IIQ: 1,8–5,6%) no grupo controle para 68,4% (IIQ: 49,2–82,5%) no grupo infectado (p < 0,001), enquanto a dos macrófagos alveolares diminuiu de 88,2% (IIQ: 82,4–92,5%) para 22,6% (IIQ: 12,3–38,5%) (p < 0,001). As porcentagens de linfócitos foram semelhantes entre os grupos (7,4% [4,8–11,3%] vs 6,5% [3,4–11,2%], p = 0,42).
As análises de estratificação e de redução de dimensionalidade confirmaram e ampliaram os fenótipos celulares observados por microscopia. Após a exclusão de detritos, dupletas e células mortas, os granulócitos CD45⁺CD66b⁺ representaram uma mediana de 65,8% (IIQ: 46,2–79,4%) dos leucócitos CD45⁺ no grupo com infecção versus 4,1% (IIQ: 2,3–6,8%) no grupo controle (p < 0,001). Dentro da população de granulócitos, os neutrófilos maduros CD15⁺CD16⁺CD11b⁺ representaram 92,4% (IIQ: 87,5–95,8%) de todos os granulócitos no grupo com infecção versus 88,6% (IIQ: 82,3–93,5%) no grupo controle, indicando que o pool de neutrófilos recrutados era composto principalmente por células maduras e totalmente diferenciadas, e não por precursores precoces. As projeções UMAP e t-SNE baseadas na matriz de proteínas de superfície transformada por arco-seno hiperbólico mostraram topologias quase idênticas, nas quais os casos de infecção ocupavam uma ilha proeminente de neutrófilos maduros CD15⁺CD16⁺CD11b⁺, escassamente povoada nas amostras controle, enquanto a ilha de macrófagos alveolares HLA-DR⁺CD14⁺ apresentava o padrão oposto, densamente povoada nos controles e escassamente povoada na infecção. A metaagrupamento por FlowSOM identificou 13 subpopulações, dentre as quais uma subpopulação de neutrófilos maduros (38,4% [22,6–56,2%] versus 2,8% [1,5–4,6%], p < 0,001) e um agrupamento de neutrófilos ativados CD16-dim CD11b-alto (22,6% [11,4–32,5%] versus 0,4% [0,1–1,2%], p < 0,001) apresentaram as maiores expansões entre os grupos.
Em termos da contagem absoluta de neutrófilos, houve um aumento de aproximadamente 50 vezes nos neutrófilos do LBA no grupo de infecção em comparação com o grupo controle. O número total de células nucleadas por µL de LBA aumentou de 156 células/µL (IIQ 88–232) no grupo controle para 384 células/µL (IIQ 180–712) no grupo de infecção (p < 0,001), e as contagens de neutrófilos aumentaram de 5 células/µL (IIQ 2–13) no grupo controle para 262 células/µL (IIQ 89–578) no grupo de infecção (p < 0,001). As diferenças pareadas nas porcentagem e contagem absoluta de neutrófilos entre os grupos permaneceram altamente significativas após ajuste de Benjamini–Hochberg (BH) (q < 0,001).
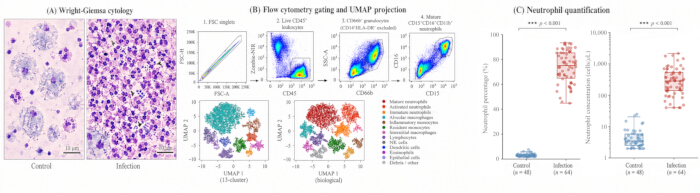
Figura 2: Visualização do recrutamento de neutrófilos no LBA. Campos representativos de citocentrifugação corados com Wright–Giemsa de um participante controle e de um participante infectado ilustram a mudança de um perfil celular do LBA predominantemente macrófago para um perfil predominantemente neutrófilo. Uma estratégia de seleção em citometria de fluxo em quatro etapas (FSC singletos → leucócitos viáveis CD45⁺ → granulócitos CD66b⁺ após exclusão de CD14⁺HLA-DR⁺ → neutrófilos maduros CD15⁺CD16⁺CD11b⁺), uma incorporação UMAP de dados de citometria de fluxo transformados com arcsinh e sobreposição de metaclusters FlowSOM 13 colorida por anotação biológica, e gráficos de caixa com porcentagem de neutrófilos no LBA e concentração absoluta de neutrófilos (células/µL, escala logarítmica) são mostrados lado a lado para permitir a comparação direta dos fenótipos celulares identificados nos grupos de infecção e controle. Abreviações: LBA = líquido de lavagem broncoalveolar; FSC = dispersão para frente; UMAP = aproximação uniforme e projeção de variedades. Clique aqui para visualizar uma versão maior desta figura.
Visualização dos perfis de citocinas inflamatórias no LBA
Um padrão de respostas coordenadas em múltiplos eixos de citocinas distinguiu o grupo de infecção do grupo controle, e as citocinas foram agrupadas em três módulos funcionais consistentes, conforme mostrado na Figura 3. O agrupamento das concentrações de citocinas transformadas em log₁₀ e normalizadas pelo método Ward.D2 produziu um claro dendrograma de duas categorias de amostras, no qual as amostras de infecção e os controles ocupavam extremos opostos do dendrograma, sendo observados apenas sete participantes mal classificados (seis controles agrupados com amostras de infecção, principalmente casos de tosse crônica com leve inflamação neutrofílica das vias aéreas, e uma amostra de infecção agrupada com controles, que representava pneumonia atípica precoce). O dendrograma dos analitos definiu três agrupamentos de citocinas. O agrupamento de quimiocinas, composto por CXCL8, CXCL1, CXCL10, CCL2 e CCL3, apresentou a maior variação entre os grupos de infecção e controle e a mais alta correlação intra-módulo. O agrupamento pró-inflamatório, contendo IL-1β, IL-6, IL-17A e TNF-α, mostrou elevações na mesma direção, embora um pouco menos acentuadas. O agrupamento regulatório, incluindo IL-10, IL-1RA, IFN-γ e G-CSF, também foi elevado nas amostras de infecção, indicando que a resposta não foi puramente pró-inflamatória, mas envolveu simultaneamente vias contra-regulatórias e antivirais.
As medianas (IIQs) de todos os analitos testados foram mais altas no grupo com infecção em comparação ao grupo controle, e o valor de p ajustado foi inferior a 0,001 para os 13 analitos após a correção da taxa de falsa descoberta baseada em BH (BH-FDR). Dentre os analitos, CXCL8/IL-8 apresentou a maior concentração e a maior variação de expressão (de 68 [32–142] pg/mL no grupo controle para 2.485 [842–6.520] pg/mL no grupo com infecção, um aumento de aproximadamente 36 vezes). Um padrão paralelo foi observado para CXCL1/GRO-α, com um aumento de aproximadamente 21 vezes (78 [36–148] versus 1.672 [524–3.890] pg/mL). IL-1β mostrou um aumento de aproximadamente 13 vezes (5,8 [2,6–11,4] versus 78 [29–184] pg/mL). IL-6, IL-1RA e G-CSF apresentaram aumentos de 13 a 16 vezes (16,4 [7,8–30,5] versus 248 [82–612] pg/mL; 112 [48–258] versus 1.748 [658–3.964] pg/mL; 24 [10–52] versus 384 [125–912] pg/mL, respectivamente). Outros aumentos menores incluíram TNF-α (~8 vezes), CXCL10/IP-10 (~9 vezes), CCL2/MCP-1 (~8 vezes), CCL3/MIP-1α (~10 vezes), IL-10 (~10 vezes), IFN-γ (~6 vezes) e IL-17A (~4 vezes).
A análise de características operacionais do receptor dentro da coorte identificou IL-8 (AUC 0,94), IL-1β (AUC 0,92), IL-6 (AUC 0,91), CXCL1 (AUC 0,91) e G-CSF (AUC 0,89) como os analitos com a melhor discriminação individual entre os grupos com infecção e controle; esses valores de AUC resumem a discriminação dentro da coorte analisada, na ausência de um conjunto externo de validação independente. A análise de sensibilidade mediante imputação múltipla por equações encadeadas (m = 20) produziu estimativas dentro de 5% das medianas dos casos completos para cada analito e não alterou a ordem dos tamanhos de efeito.
Análises de sensibilidade pré-especificadas foram utilizadas para avaliar a influência da exposição prévia a antibióticos e do subtipo de pneumonia nas diferenças observadas nas citocinas. Quando as comparações principais entre grupos foram repetidas após a exclusão dos 41 participantes do grupo de infecção (64,1%) que haviam recebido antibióticos nas 72 horas anteriores ao BAL, os 13 analitos permaneceram significativamente mais elevados nos 23 casos restantes de infecção do que nos controles, após correção por BH-FDR (ajustado p < 0,001 para os cinco principais discriminadores), com estimativas pontuais ligeiramente superiores, e não inferiores, às medianas do conjunto total da coorte (por exemplo, CXCL8/IL-8 2.860 [980–7.110] pg/mL e IL-1β 92 [34–210] pg/mL), consistente com a atenuação parcial dos citocinas da via aérea pela exposição prévia a antibióticos antes da BAL. A estratificação do grupo de infecção por subtipo de pneumonia mostrou a mesma ordem de classificação das quimiocinas e citocinas pró-inflamatórias entre pneumonia adquirida na comunidade (n = 35), pneumonia adquirida no hospital (n = 19) e pneumonia associada à ventilação mecânica (n = 10), sendo que o subgrupo de pneumonia associada à ventilação mecânica apresentou os níveis medianos mais elevados para CXCL8, CXCL1, IL-6 e G-CSF; além disso, o status de ventilação mecânica não alterou a direção de nenhuma comparação entre grupos.
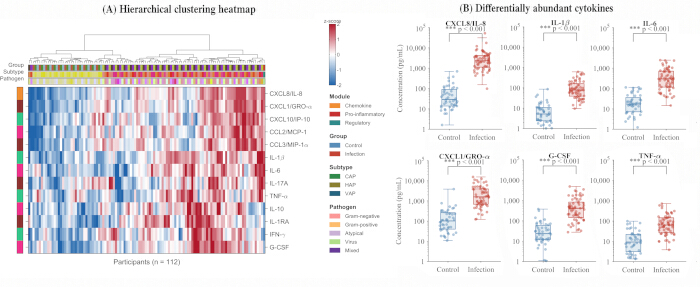
Figura 3: Visualização dos perfis de citocinas inflamatórias no LBA. Mapa térmico de agrupamento hierárquico das concentrações transformadas em log₁₀ e padronizadas por escore z dos 13 analitos medidos em todos os 112 participantes, com barras de anotação coloridas acima do mapa térmico indicando a alocação em grupos (controle, infecção), subtipo de pneumonia (pneumonia adquirida na comunidade, adquirida no hospital ou associada a ventilador) e categoria do patógeno causal (Gram-negativo, Gram-positivo, atípico, viral ou infecção mista). Gráficos em caixa das principais citocinas diferencialmente abundantes (CXCL8/IL-8, IL-1β, IL-6, CXCL1/GRO-α, G-CSF e TNF-α; escala log₁₀, pg/mL) comparam os grupos com infecção e controle. *** p < 0,001 após correção da taxa de falsa descoberta de Benjamini–Hochberg. Abreviaturas: LBA = líquido de lavado broncoalveolar; BH = Benjamini–Hochberg; PAC = pneumonia adquirida na comunidade; PAH = pneumonia adquirida no hospital; PAV = pneumonia associada a ventilador. Clique aqui para visualizar uma versão maior desta figura.
Visualização acoplada do recrutamento de neutrófilos e perfis de citocinas
O acoplamento entre os compartimentos celulares e solúveis revelou uma forte conexão biológica entre o recrutamento de neutrófilos e o sistema de quimiocinas, conforme mostrado na Figura 4. Uma representação bidimensional foi obtida por meio da análise de componentes principais (PCA) da matriz padronizada de células e citocinas, sendo que o PC1 explicou 51,1% da variância total e o PC2 mais 12,7%, totalizando 63,8% cumulativos. O PC1 separou o grupo com infecção dos controles, caracterizado por altas cargas positivas em neutrófilos do LBA, CXCL8, CXCL1, IL-6, IL-1β e G-CSF, e altas cargas negativas em macrófagos. O PC2 distinguiu entre uma trajetória rica em quimiocinas (altas cargas positivas em CXCL8 e CXCL1) e uma trajetória rica em componentes regulatórios (cargas positivas em IL-10, IL-1RA e IFN-γ), de modo que, dentro do grupo com infecção, os participantes tenderam a se separar de acordo com a gravidade, com os casos de pneumonia associada à ventilação mecânica caindo no quadrante de alta concentração de quimiocinas.
As correlações de postos de Spearman aos pares entre 17 características celulares e solúveis revelaram uma forte correlação positiva entre a contagem de neutrófilos no LBA e o eixo global de quimiocinas (CXCL8 ρ = 0,78; CXCL1 ρ = 0,74; CCL3 ρ = 0,69; CCL2 ρ = 0,61; CXCL10 ρ = 0,54; todos com p ajustado < 0,001). O segundo nível de correlações significativas foi detectado entre as contagens de neutrófilos e o eixo pró-inflamatório (G-CSF ρ = 0,65; IL-1β ρ = 0,62; IL-6 ρ = 0,58; TNF-α ρ = 0,51), seguido por correlações positivas moderadas com o eixo regulatório (IL-10 ρ = 0,45; IL-1RA ρ = 0,48). A porcentagem de macrófagos mostrou uma correlação negativa espelhada com os eixos de quimiocinas e pró-inflamatório, de intensidade semelhante. As correlações dentro do mesmo eixo foram substancialmente mais fortes do que as entre eixos (mediana |ρ| dentro do eixo = 0,68 vs. mediana |ρ| entre eixos = 0,33), apoiando a ideia de vias regulatórias upstream comuns que controlam os eixos de quimiocinas, pró-inflamatório e regulatório.
A rede de correlação mapeou esse acoplamento em um grafo no qual os neutrófilos do LBA foram o nó central mais proeminente, com todas as 13 conexões para citocinas resistindo à correção BH para testes múltiplos. Das 136 conexões pareadas possíveis entre as 17 características, 99 atenderam ao critério conjunto de |ρ| ≥ 0,30 e p ajustado por BH < 0,05 e foram mantidas. O grafo da rede de correlação exibiu uma arquitetura modular clara de três blocos, que reproduziu os agrupamentos obtidos a partir do agrupamento hierárquico: as conexões mais densas e fortes ocorreram entre o módulo de quimiocinas e a contagem e porcentagem de neutrófilos no LBA, conexões de peso intermediário ligaram o módulo pró-inflamatório tanto aos neutrófilos quanto ao módulo de quimiocinas, e conexões finas provenientes do módulo regulatório conectaram os blocos de quimiocinas e pró-inflamatório. O nó correspondente à porcentagem de macrófagos situou-se oposto ao bloco neutrófilo–quimiocina e foi ligado a ele por um leque de arestas com pesos negativos. Coletivamente, a ACP, a matriz de correlação e o grafo da rede revelaram um padrão coerente no qual a infiltração de neutrófilos no LBA e a resposta de quimiocinas estão fortemente associadas ao nível individual de participantes, e as vias pró-inflamatórias e regulatórias atuam como módulos bem definidos, porém interconectados, em torno desse eixo neutrófilo–quimiocina.
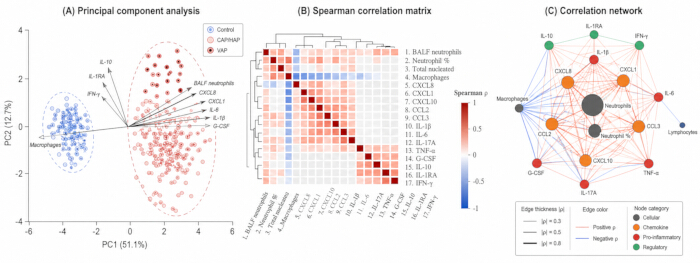
Figura 4: Visualização acoplada do recrutamento de neutrófilos e perfis de citocinas inflamatórias. Biplot da análise de componentes principais da matriz padronizada de células e citocinas, com participantes coloridos por grupo, mapa de calor da correlação de Spearman e gráfico em rede de todas as 17 características celulares e solúveis (nós dimensionados pelo grau, arestas dimensionadas por |ρ| e filtradas por p ajustado por BH < 0,05 e |ρ| ≥ 0,30), destacando o centro de quimiocinas–neutrófilos. Abreviações: BH = Benjamini–Hochberg; PC = componente principal. Clique aqui para visualizar uma versão maior desta figura.
DISPONIBILIDADE DE DADOS:
O conjunto de dados anonimizado em nível de participantes e o código de análise em R utilizados neste estudo são fornecidos como Tabela Suplementar S1 e Arquivo Suplementar 1. Outros dados que apoiam as descobertas deste estudo estão disponíveis junto ao autor correspondente mediante solicitação razoável.
Tabela Suplementar S1: conjunto de dados de LBA. Clique aqui para baixar este arquivo.
Arquivo Suplementar 1: Um arquivo ZIP contendo códigos de análise. Clique aqui para baixar este arquivo.
Discussão
A robustez deste protocolo depende de algumas decisões tomadas antes e durante a análise. Estabelecer a taxa de recuperação mínima em 40% e combinar a segunda alíquota e as subsequentes foi uma decisão intencional, já que a primeira alíquota contém um enriquecimento maior de materiais das vias aéreas brônquicas, enquanto a taxa de recuperação varia sistematicamente com a idade, sexo, histórico de tabagismo e o brônquio-alvo18. O bloqueio de receptores Fc e a titulação de anticorpos contra clones individuais para assegurar limites adequados de marcação entre neutrófilos maduros CD15⁺CD16⁺CD11b⁺ e macrófagos alveolares CD14⁺HLA-DR⁺ (as células dominantes na amostra de LBA com maior marcação inespecífica e fundo de autofluorescência) é essencial para manter a consistência entre os dois grupos19,20. A limitação do congelamento-descongelamento e o período de 2 h para a análise multiplex também não são aleatórios. Dados de LBA humano mostraram uma redução significativa nas porcentagens de neutrófilos entre 6 e 24 h, mesmo quando armazenados a 4 °C, enquanto as porcentagens de macrófagos e linfócitos permaneceram constantes13. Os parâmetros para os algoritmos t-SNE e UMAP, bem como os parâmetros para a grade FlowSOM de 100 nós e para 12–15 metaaglomerados, foram determinados previamente à análise dos grupos, a fim de evitar ajustes pós-hoc, que é uma das razões conhecidas para a irreprodutibilidade de pipelines de citometria16. Os operadores e a identificação das placas/execuções ainda podem ser mantidos por evento celular para aplicar métodos de correção de lote em futuras análises em larga escala21.
Existem vários modos comuns de falha que não exigem alterações no protocolo. A baixa recuperação (<40%) geralmente é causada por posicionamento inadequado da cunha ou sucção excessiva; esse problema deve ser corrigido ajustando a posição do broncoscópio e reduzindo a sucção para <100 mmHg antes de aspirar outra alíquota. A autofluorescência excessiva proveniente de macrófagos alveolares, o principal fator de confusão na análise de citometria de fluxo de células pulmonares, pode ser atenuada incluindo controles de células pulmonares não coradas em cada lote e definindo claramente o gate de macrófagos com alta dispersão lateral, em vez de depender exclusivamente de corantes de viabilidade19. Painéis multiplex frequentemente são comprometidos por contagens baixas de microesferas e valores elevados discrepantes. Realizar uma curva preliminar de diluição para um subconjunto de amostras infectadas e controles antes de fixar uma diluição 1:2 assegura a prevenção da saturação de sinal de CXCL8, CXCL1 e G-CSF, localizados na parte mais alta da curva padrão para amostras de pneumonia, devido ao efeito de matriz previamente descrito em amostras de LBA22. O protocolo pode ser ainda ajustado conforme as características específicas da coorte. Quando as amostras contêm predominantemente um único tipo de patógeno, reduzir o painel principal para incluir apenas quimiocinas e mediadores pró-inflamatórios preservaria poder estatístico suficiente. No caso de uma população mista contendo bactérias, vírus e patógenos atípicos, ainda será benéfico medir também mediadores regulatórios, já que a assinatura específica do patógeno em neutrófilos e macrófagos alveolares foi recentemente comprovada23, e uma combinação de citocinas pró-inflamatórias e regulatórias no LBA demonstrou refletir a gravidade da doença em pneumonias adquiridas na comunidade24.
A contribuição do presente fluxo de trabalho não é a observação isolada do influxo neutrófilo ou da elevação de quimiocinas e citocinas pró-inflamatórias em infecções respiratórias, já que ambos os aspectos são amplamente documentados, mas sim a combinação de um painel de citometria de fluxo de sete marcadores para neutrófilos e monócitos com um imunoensaio multiplex de 13 analitos, integrados a um mesmo pipeline de visualização aplicado à mesma amostra de LBA. A implementação de um painel de sete marcadores direcionado a neutrófilos e monócitos, juntamente com um imunoensaio multiplex de 13 analitos, capta a complexidade fenotípica e das citocinas; sem isso, a análise exigiria diversos testes independentes e um volume muito maior de LBA do que o obtido em uma amostra normal de broncoscopia. O primeiro alinha-se bem a trabalhos anteriores que demonstram que a citometria de fluxo multicolorida é tão confiável quanto a microscopia manual para a identificação de tipos celulares em amostras de LBA15, enquanto os critérios de aceitação do segundo refletem as melhores práticas de um reconhecido programa multicêntrico de proficiência em ensaios multiplex baseados em microesferas16. Em particular, o mapa de calor combinado, o gráfico de rede e a ACP, construídos com entradas padronizadas idênticas, revelam relações entre tipos celulares e seus fatores associados que anteriormente só podiam ser inferidas pela soma de gráficos de barras independentes. Isso é relevante porque as quimiocinas derivadas do LBA, CXCL8, CCL2 e CCL3, atuam em conjunto para recrutar neutrófilos e monócitos a partir de um leito circulatório compartilhado, e sua estrutura conjunta carrega informações que não podem ser obtidas a partir de leituras independentes de analitos únicos9,10. O LBA já é rotineiramente obtido com finalidades clínicas e não exige volume adicional, de modo que o fluxo de trabalho pode ser posicionado como um complemento translacional aos serviços existentes de broncoscopia, em vez de um procedimento diagnóstico autônomo.
O tempo prático de conclusão de todo o fluxo de trabalho, compreendendo transporte da amostra, coloração, aquisição por citometria de fluxo, incubação e leitura do ensaio multiplex e o pipeline computacional subsequente, é da ordem de 24 h em condições de laboratório de pesquisa. Portanto, o fluxo de trabalho é posicionado como uma ferramenta de fenotipagem profunda para caracterização mecanicista e monitoramento da resposta ao tratamento, e não como um ensaio de triagem imediata à beira do leito para decisões críticas no tempo, como a distinção imediata entre pneumonia associada à ventilação e síndrome do desconforto respiratório agudo estéril, para as quais ensaios microbiológicos mais rápidos e biomarcadores com um único marcador permanecem como padrão assistencial.
Existem várias limitações que precisam ser mencionadas. O LBA é coletado do espaço aéreo e representa as interações superficiais imediatas desse compartimento, mas não contém células localizadas na parede alveolar e no septo, onde muitos macrófagos ativados e linfócitos residentes no tecido se localizam. Assim, não há uma relação um-a-um entre os estados imunológicos do espaço aéreo e do parênquima, o que está de acordo com dados previamente publicados25. A detecção baseada em microesferas multiplex sofre com reatividade cruzada de anticorpos, bem como com efeitos de matriz, que são especialmente prevalentes no ambiente do LBA, rico em mucina e surfactante, em comparação com o soro sanguíneo; além disso, o processo de diluição do fluido de revestimento epitelial com solução salina não pode ser corrigido por nenhum marcador endógeno, como a ureia, conforme observado em críticas recentemente publicadas26. O volume recuperado de lavado foi, em média, 6 mL menor no grupo com infecção do que nos controles, de modo que as concentrações absolutas relatadas aqui estão sujeitas a uma diferença moderada entre grupos no fator de diluição, e nenhum marcador endógeno de diluição foi aplicado. A exposição prévia a antibióticos em 41 dos 64 participantes do grupo com infecção (64,1%) pode atenuar as concentrações de citocinas nas vias aéreas e a recuperação de patógenos. É importante destacar que o protocolo representa apenas um instantâneo em um único ponto temporal durante broncoscopia clinicamente indicada, o que impossibilita a análise da cinética do recrutamento de neutrófilos, da secreção máxima de quimiocinas e da resolução desses eventos em pacientes individuais. Os valores de AUC para analitos únicos foram derivados da mesma coorte utilizada para a identificação de biomarcadores, na ausência de uma coorte independente de validação, e devem ser interpretados como medidas de discriminação dentro da coorte, e não como desempenho diagnóstico validado externamente; a adoção de qualquer ponto de corte baseado em um único marcador na prática clínica exigiria validação prospectiva em uma coorte multicêntrica independente. Análises de sensibilidade pré-especificadas, restritas a espécimes com maior recuperação, a participantes sem uso prévio de antibióticos e estratificadas conforme o status de ventilação mecânica e o subtipo de pneumonia (adquirida na comunidade, adquirida no hospital ou associada à ventilação), não alteraram a direção das comparações entre grupos.
No futuro, essas limitações poderão ser superadas com a adição de sequenciamento de RNA em nível de célula única ou CITE-seq aos mesmos pellets de LBA utilizados para quantificação de proteínas e células, técnicas já aplicadas com sucesso em grandes coortes de pneumonia bacteriana e pneumonia pediátrica por Mycoplasma pneumoniae, para revelar subconjuntos de neutrófilos e macrófagos alveolares que não podem ser distinguidos pela citometria de fluxo tradicional27,28. A inclusão das informações obtidas por meio de análises do espaço aéreo àquelas fornecidas pela citometria de massa com imagem ou transcriptômica espacial de biópsias pareadas ou mesmo material de necropsia permitiria contextualizar esses dados29. Associar amostragens longitudinais de LBA à avaliação de antagonistas de CXCR1/CXCR2 e bloqueio do receptor de IL-6, ambos com benefícios comprovados em termos de sobrevivência ou suporte de órgãos na pneumonia grave e na síndrome do desconforto respiratório agudo (SDRA), também permitiria testar o eixo neutrófilo-quimiocina destacado por esse fluxo de trabalho como auxílio na tomada de decisões terapêuticas30,31.
Em conclusão, este estudo descreve um fluxo de trabalho integrado de visualização composto por procedimentos padronizados de coleta e preparação de LBA, um painel de citometria de fluxo com sete marcadores para quantificar a composição de neutrófilos e monócitos, um ensaio multiplex de citocinas que mede 13 citocinas e uma plataforma comum de visualização que inclui análises de UMAP, agrupamento hierárquico, rede de correlação e PCA. Ao aplicar esse fluxo de trabalho a uma coorte prospectiva de 112 adultos submetidos à broncoscopia clinicamente indicada, a análise identificou uma transição acentuada na composição celular imune alveolar, de macrófagos para neutrófilos em pacientes com infecção, detectou um padrão de resposta de citocinas em três módulos e revelou um eixo neutrófilo-quimiocina fortemente acoplado, que não é observável por meio de medições com um único marcador. O procedimento baseia-se exclusivamente em material coletado durante o diagnóstico clínico, não exige volume adicional de amostra e pode ser viável em laboratórios de atendimento terciário equipados para citometria de fluxo multiparamétrica e análise com matrizes multiplex de microesferas. A adoção mais ampla e o uso de analitos individuais como biomarcadores diagnósticos exigirão validação prospectiva em coortes multicêntricas independentes. Assim, o estudo apresenta uma metodologia reprodutível e rica em dados para caracterizar a inflamação das vias aéreas em infecções respiratórias e fornece uma base para seu desenvolvimento futuro em estudos longitudinais, análises de única célula e espaciais, e avaliação terapêutica da imunomodulação direcionada ao eixo neutrófilo-quimiocina.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Agradecemos sinceramente a todos os pacientes e voluntários que participaram deste estudo pela sua valiosa cooperação. Agradecemos com gratidão ao Comitê de Ética pela aprovação ética (Número de Aprovação 2026HL-038) e orientação normativa durante todo o processo de pesquisa.
Agradecemos à equipe médica do Departamento de Pneumologia, do Centro de Broncoscopia e do Laboratório Clínico pelo apoio na coleta de espécimes clínicos, no processamento de lavado broncoalveolar e na detecção microbiológica. Também agradecemos pelo apoio técnico da plataforma do laboratório central do hospital para experimentos de citometria de fluxo de alta dimensão e perfis multiplex de citocinas.
Esta pesquisa não recebeu nenhuma bolsa específica de agências financiadoras dos setores público, comercial ou sem fins lucrativos.
Agradecemos a todos os pesquisadores, técnicos e profissionais de enfermagem envolvidos neste projeto pelos seus esforços na triagem de pacientes, manejo de amostras, operação experimental e organização de dados.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Anticorpo anti-CD11b humano, Brilliant Violet 421, clone ICRF44 | BioLegend | Cat. No. 301323 | Marcador de ativação de neutrófilos; canal do laser violeta URL: https://www.biolegend.com |
| Anticorpo anti-CD14 humano, APC/Cyanine7, clone M5E2 | BioLegend | Cat. No. 301820 | Marcador de exclusão de monócito-macrófago; canal do laser vermelho URL: https://www.biolegend.com |
| Anticorpo anti-CD15 humano, PE, clone HI98 | BioLegend | Cat. No. 301906 | Marcador de linhagem de neutrófilos; canal do laser azul URL: https://www.biolegend.com |
| Anticorpo anti-CD16 humano, Brilliant Violet 510, clone 3G8 | BioLegend | Cat. No. 302048 | Marcador de maturação de neutrófilos e células NK; canal do laser violeta URL: https://www.biolegend.com |
| Anticorpo anti-CD45 humano, PerCP, clone HI30 | BioLegend | Cat. No. 304026 / RRID: AB_893338 | Marcador pan-leucocitário; canal do laser azul URL: https://antibodyregistry.org/AB_893338 |
| Anticorpo anti-CD66b humano, FITC, clone G10F5 | BioLegend | Cat. No. 305103 | Marcador de granulócitos; canal do laser azul URL: https://www.biolegend.com |
| Anticorpo anti-HLA-DR humano, PerCP/Cyanine5.5, clone L243 | BioLegend | Cat. No. 307629 | Marcador de células apresentadoras de antígeno; canal do laser azul URL: https://www.biolegend.com |
| Analisador hematológico automatizado (Sysmex XN-1000) | Sysmex Corporation | Instrumento (modelo XN-1000) | Utilizado para determinar a contagem total de células nucleadas para o cálculo absoluto de neutrófilos URL: https://www.sysmex.com |
| Albumina sérica bovina | Sigma-Aldrich (MilliporeSigma) | Cat. No. A7906 | Utilizada no tampão de marcação para citometria de fluxo (0,5% p/v em PBS com 2 mM EDTA) URL: https://www.sigmaaldrich.com/US/en/product/sigma/a7906 |
| Pacote ComplexHeatmap (R/Bioconductor) | Projeto Bioconductor | v2.20 (código aberto) | Utilizado para mapas de calor de agrupamento hierárquico de dados multiplex de citocinas URL: https://bioconductor.org/packages/ComplexHeatmap |
| Citocentrífuga (Cytospin 4) | Thermo Fisher Scientific | Cat. No. A78300003 | Utilizada para preparar lâminas citológicas a partir de suspensão celular de LBA URL: https://www.thermofisher.com/order/catalog/product/A78300003 |
| Solução concentrada de lise de eritrócitos (BD FACS Lysing Solution, 10X) | BD Biosciences | Cat. No. 349202 | Utilizada para lise de eritrócitos após marcação de superfície URL: https://www.bdbiosciences.com |
| Ácido etilenodiaminotetraacético (EDTA), 0,5 M pH 8,0 | Thermo Fisher Scientific (Invitrogen) | Cat. No. AM9260G | Utilizado no tampão de marcação para citometria de fluxo na concentração de 2 mM URL: https://www.thermofisher.com/order/catalog/product/AM9260G |
| Corante viável fixável (Zombie NIR Fixable Viability Kit) | BioLegend | Cat. No. 423105 | Exclusão de células mortas antes do gateamento; canal do laser vermelho URL: https://www.biolegend.com |
| Broncoscópio flexível com vídeo | Olympus Corporation (BF-1TQ290) | Instrumento (modelo BF-1TQ290) | Utilizado para LBA com sedação moderada URL: https://www.olympus-global.com |
| Citômetro de fluxo multicolorido (CytoFLEX LX) | Beckman Coulter Life Sciences | Instrumento (modelo CytoFLEX LX, configuração com seis lasers) | Utilizado para aquisição do painel de citometria de fluxo de sete marcadores para neutrófilos/monócitos URL: https://www.beckman.com |
| Software de análise de citometria de fluxo (FlowJo) | BD Biosciences (FlowJo LLC) | v10.10 | Utilizado para compensação e gateamento manual de arquivos FCS URL: https://www.flowjo.com |
| Pacote FlowSOM (R/Bioconductor) | Projeto Bioconductor | v2.12 (código aberto) | Utilizado para agrupamento por mapa auto-organizável e meta-agrupamento de dados de citometria de fluxo URL: https://bioconductor.org/packages/FlowSOM |
| GraphPad Prism (software de análise e representação gráfica estatística) | GraphPad Software (Dotmatics) | v10 | Utilizado para gerar as figuras finais URL: https://www.graphpad.com |
| Reagente bloqueador de receptor Fc humano (Human TruStain FcX) | BioLegend | Cat. No. 422301 / RRID: AB_2818986 | Bloqueio de receptor Fc antes da marcação com anticorpos URL: https://antibodyregistry.org/AB_2818986 |
| Pacote igraph (R) | CRAN | v2.0 (código aberto) | Utilizado para construir e visualizar o gráfico de rede de correlação URL: https://cran.r-project.org/package=igraph |
| Frascos criogênicos de baixa ligação proteica, 2,0 mL | Thermo Fisher Scientific (Nunc) | Cat. No. 375418 | Utilizados para alíquotas de sobrenadante de LBA para análise de citocinas URL: https://www.thermofisher.com/order/catalog/product/375418 |
| Plataforma de imunoensaio multiplex baseada em microesferas magnéticas (MAGPIX) | Luminex Corporation (DiaSorin) | Instrumento (modelo MAGPIX) | Utilizada para aquisição do ensaio multiplex de citocinas URL: https://www.luminexcorp.com |
| Solução de corante May-Grünwald-Giemsa | Sigma-Aldrich (MilliporeSigma) | Cat. No. GS500 | Utilizada para contagem diferencial de células em citospin URL: https://www.sigmaaldrich.com/US/en/product/sigma/gs500 |
| Pacote mice (R) | CRAN | v3.16 (código aberto) | Utilizado para imputação múltipla por equações encadeadas na análise de sensibilidade URL: https://cran.r-project.org/package=mice |
| Painel multiplex magnético de citocinas/quimiocinas (13-plex, personalizado; MILLIPLEX MAP Human Cytokine/Chemokine) | Merck / MilliporeSigma | Cat. No. HCYTOMAG-60K | Painel personalizado que mede os 13 analitos descritos na Seção 2.4 URL: https://www.merckmillipore.com |
| Peneira de malha de náilon, 70 µm | Corning (Falcon) | Cat. No. 352350 | Utilizada para filtração mecânica de LBA para remover coágulos de muco URL: https://www.corning.com |
| Solução salina tamponada com fosfato (PBS), pH 7,4 | Thermo Fisher Scientific (Gibco) | Cat. No. 10010023 | Tampão base para ressuspensão e marcação celular URL: https://www.thermofisher.com/order/catalog/product/10010023 |
| Pacote pROC (R) | CRAN | v1.18 (código aberto) | Utilizado para gerar curvas ROC e valores de AUC URL: https://cran.r-project.org/package=pROC |
| R (ambiente de computação estatística) | Equipe R Core | v4.4 (código aberto) | Plataforma para análises e visualizações estatísticas URL: https://www.r-project.org |
| Pacote rstatix (R) | CRAN | v0.7 (código aberto) | Utilizado para comparações entre grupos e estatísticas de correlação URL: https://cran.r-project.org/package=rstatix |
| Pacote Rtsne (R) | CRAN | v0.17 (código aberto) | Utilizado para incorporações t-SNE URL: https://cran.r-project.org/package=Rtsne |
| Controles de compensação com microesferas marcadas com um único corante (UltraComp eBeads Compensation Beads) | Thermo Fisher Scientific (Invitrogen) | Cat. No. 01-2222-42 | Utilizadas como controles de compensação monocromática URL: https://www.thermofisher.com/order/catalog/product/01-2222-42 |
| Solução de cloreto de sódio para injeção, 0,9% (solução salina estéril) | Baxter International | Cat. No. 2B1324 | Utilizada para instilação na LBA (100–150 mL, alíquotas de 20–40 mL a 37 °C) URL: https://www.baxter.com |
| Pacote uwot (R) | CRAN | v0.2 (código aberto) | Utilizado para redução de dimensionalidade UMAP URL: https://cran.r-project.org/package=uwot |
| xPONENT (software de aquisição de ensaio multiplex e ajuste de curva) | Luminex Corporation (DiaSorin) | v4.3 | Software proprietário do instrumento para ajuste de curva padrão 5PL URL: https://www.luminexcorp.com |
Referências
- Yu X, et al. Estimating the global and regional burden of lower respiratory infections attributable to leading pathogens and the protective effectiveness of immunization programs. Int J Infect Dis. 2024;149:107268.
- Rizo-Téllez SA, Filep JG. Beyond host defense and tissue injury: the emerging role of neutrophils in tissue repair. Am J Physiol Cell Physiol. 2024;326(3):C661-83.
- Zhou X, Jin J, Lv T, Song Y. A narrative review: the role of NETs in acute respiratory distress syndrome/acute lung injury. Int J Mol Sci. 2024;25(3):1464.
- Haynes ME, Sullivan DP, Muller WA. Neutrophil infiltration and function in the pathogenesis of inflammatory airspace disease. Am J Pathol. 2024;194(5):628-36.
- Davidson KR, Ha DM, Schwarz MI, Chan ED. Bronchoalveolar lavage as a diagnostic procedure: a review of known cellular and molecular findings in various lung diseases. J Thorac Dis. 2020;12(9):4991-5019.
- Cambier S, Gouwy M, Proost P. The chemokines CXCL8 and CXCL12: molecular and functional properties, role in disease and efforts towards pharmacological intervention. Cell Mol Immunol. 2023;20(3):217-51.
- Lin J, et al. Local and systemic cytokine profiles in children with pneumonia-associated lung consolidation. Front Immunol. 2025;16:1546730.
- Huang C, et al. Heparin-binding protein in bronchoalveolar lavage fluid as a biomarker for discriminating severe bacterial and viral pneumonia in critically ill children. Mediators Inflamm. 2023;2023:6123911.
- Polley DJ, et al. Identification of novel clusters of co-expressing cytokines in a diagnostic cytokine multiplex test. Front Immunol. 2023;14:1223817.
- Roca CP, et al. A cross entropy test allows quantitative statistical comparison of t-SNE and UMAP representations. Cell Rep Methods. 2023;3(1):100389.
- Hawerkamp HC, et al. Characterisation of the pro-inflammatory cytokine signature in severe COVID-19. Front Immunol. 2023;14:1170012.
- Meyer KC, et al. An official American Thoracic Society clinical practice guideline: the clinical utility of bronchoalveolar lavage cellular analysis in interstitial lung disease. Am J Respir Crit Care Med. 2012;185(9):1004-14.
- Shionoya Y, et al. Impact of storage conditions on bronchoalveolar lavage fluid analysis: a human study. Diagnostics (Basel). 2025;15(11):1386.
- Li J, et al. Diagnostic test accuracy of cellular analysis of bronchoalveolar lavage fluid in distinguishing pulmonary infectious and non-infectious diseases in patients with pulmonary shadow. Front Med (Lausanne). 2024;11:1496088.
- Bratke K, Weise M, Stoll P, Virchow JC, Lommatzsch M. Flow cytometry as an alternative to microscopy for the differentiation of BAL fluid leukocytes. Chest. 2024;166(4):793-801.
- Rountree W, et al. Sources of variability in Luminex bead-based cytokine assays: evidence from twelve years of multi-site proficiency testing. J Immunol Methods. 2024;531:113699.
- Tao W, Sinha A, Raddassi K, Pandit A. Parameter optimization for stable clustering using FlowSOM: a case study from CyTOF. Front Immunol. 2024;15:1414400.
- Shikano K, et al. What are the factors affecting the recovery rate of bronchoalveolar lavage fluid? Clin Respir J. 2022;16(2):142-51.
- Baumann Z, et al. Optimized full-spectrum flow cytometry panel for deep immunophenotyping of murine lungs. Cell Rep Methods. 2024;4(11):100885.
- Bonilla DL, et al. The power of reagent titration in flow cytometry. Cells. 2024;13(20):1677.
- Ogishi M, et al. Multibatch cytometry data integration for optimal immunophenotyping. J Immunol. 2021;206(1):206-13.
- Sudo K, et al. Case study observational research: inflammatory cytokines in the bronchial epithelial lining fluid of COVID-19 patients with acute hypoxemic respiratory failure. Crit Care. 2024;28(1):134.
- Williams JE, et al. Epigenetic regulation of neutrophils in ARDS. Cells. 2025;14(15):1151.
- Zhang Y, et al. Interleukin-6 in blood and bronchoalveolar lavage fluid of hospitalized children with community-acquired pneumonia. Front Pediatr. 2022;10:922143.
- Bailey JI, et al. Profibrotic monocyte-derived alveolar macrophages are expanded in patients with persistent respiratory symptoms and radiographic abnormalities after COVID-19. Nat Immunol. 2024;25(11):2097-109.
- Haeger S, et al. The bronchoalveolar lavage dilution conundrum: an updated view on a long-standing problem. Am J Physiol Lung Cell Mol Physiol. 2024;327(5):L807-13.
- Xiao K, et al. A pan-immune panorama of bacterial pneumonia revealed by a large-scale single-cell transcriptome atlas. Signal Transduct Target Ther. 2025;10(1):5.
- Shen X, et al. Single-cell transcriptome atlas revealed bronchoalveolar immune features related to disease severity in pediatric Mycoplasma pneumoniae pneumonia. MedComm (2020). 2024;5(10):e748.
- Megas S, Wilbrey-Clark A, Maartens A, Teichmann SA, Meyer KB. Spatial transcriptomics of the respiratory system. Annu Rev Physiol. 2025;87(1):447-70.
- Landoni G, et al. A multicenter phase 2 randomized controlled study on the efficacy and safety of reparixin in the treatment of hospitalized patients with COVID-19 pneumonia. Infect Dis Ther. 2022;11(4):1559-74.
- Sellarès-Nadal J, et al. Efficacy of tocilizumab for hospitalized patients with COVID-19 pneumonia and high IL-6 levels: a randomized controlled trial. Infection. 2025;53(5):1851-61.