Este protocolo descreve um modelo murino de lesão pulmonar associada à doença do coronavírus 2019 induzida pela administração intranasal combinada do coronavírus da síndrome respiratória aguda grave 2 e lipopolissacarídeo. O modelo permite a investigação de respostas inflamatórias pulmonares, respostas de interferon tipo I prejudicadas e possíveis intervenções terapêuticas.
Artigo de método
Um Modelo Murino de Lesão Pulmonar Associada à Doença do Coronavírus 2019 Induzida por Coronavírus 2 da Síndrome Respiratória Aguda Grave e Lipopolissacarídeo
33 visualizações
⸱
11 de setembro de 2026
* These authors contributed equally
Neste artigo
Resumo
Resumo
Apesar da ampla implementação de vacinação e terapias antivirais, a infecção por SARS-CoV-2 continua a causar morbidade e mortalidade significativas entre populações vulneráveis, destacando a necessidade urgente de modelos experimentais confiáveis para investigar a patogênese da COVID-19, elucidar os mecanismos de ação de fármacos e avaliar possíveis estratégias terapêuticas. A infecção por SARS-CoV-2 pode causar lesão pulmonar grave, caracterizada por respostas inflamatórias excessivas e imunidade antiviral mediada pelo interferon tipo I (IFN-I) prejudicada; no entanto, os modelos animais atuais ainda são limitados na recapitulação das respostas imunes e inflamatórias desreguladas associadas à COVID-19. Foi desenvolvido um modelo murino induzido por SARS-CoV-2 e LPS de lesão pulmonar associada à COVID-19 para recapitular características imunopatológicas-chave da doença. Este modelo induz características patológicas proeminentes no tecido pulmonar, incluindo infiltração de células inflamatórias, destruição da estrutura alveolar e expressão elevada de citocinas pró-inflamatórias, acompanhadas por respostas prejudicadas de IFN-I. Este estudo fornece uma descrição detalhada dos procedimentos utilizados para estabelecer o modelo murino de lesão pulmonar induzido por SARS-CoV-2 e LPS e caracteriza sistematicamente o modelo por meio de análises das alterações histopatológicas pulmonares, carga viral, citocinas inflamatórias e níveis de IFN-I. Este modelo oferece uma plataforma experimental para investigar os mecanismos imunes e inflamatórios subjacentes à lesão pulmonar associada à COVID-19 e os processos envolvidos na reparação do tecido pulmonar, além de fornecer uma base para avaliar estratégias terapêuticas destinadas a aliviar a desregulação imune-inflamatória e promover a recuperação da função pulmonar.
Introdução
Desde o seu surgimento no final de 2019, o SARS-CoV-2 causou um desafio global de saúde pública, e a contínua evolução viral continua a representar desafios para as vacinas e estratégias terapêuticas existentes1,2,3. Portanto, investigações adicionais sobre lesões pulmonares associadas à COVID-19 são essenciais para elucidar os mecanismos da doença e avançar nas estratégias terapêuticas.
A infecção por SARS-CoV-2 pode causar lesão pulmonar grave e pode até evoluir para síndrome do desconforto respiratório agudo (SDRA) e síndrome da disfunção de múltiplos órgãos4,5. Um número crescente de evidências sugere que a patogênese da lesão pulmonar associada à COVID-19 é altamente complexa, com uma característica fundamental sendo a desregulação das respostas imunes e inflamatórias6,7,8,9. Por um lado, a infecção por SARS-CoV-2 pode induzir uma resposta inflamatória excessiva, levando à liberação maciça de citocinas pró-inflamatórias, como interleucina-6 (IL-6), interleucina-1β (IL-1β) e fator de necrose tumoral-α (TNF-α), desencadeando assim uma chamada "tempestade de citocinas"10,11, considerada um dos principais fatores impulsionadores da lesão pulmonar e da progressão da doença. Por outro lado, no estágio inicial da infecção, o SARS-CoV-2 pode suprimir a resposta do hospedeiro ao IFN-I por meio de múltiplos mecanismos, resultando em imunidade antiviral mediada por IFN-I prejudicada12,13,14. Assim, uma resposta tardia ao interferon acompanhada por níveis elevados de citocinas pró-inflamatórias é considerada uma característica distintiva da COVID-196,15.
Os modelos animais atualmente disponíveis para a COVID-19 dependem amplamente de camundongos transgênicos para hACE2, cepas virais adaptadas para camundongos ou outras espécies, como furões e primatas não humanos16,17. No entanto, os modelos convencionais de infecção por SARS-CoV-2 em camundongos frequentemente não conseguem reproduzir completamente as características hiperinflamatórias da COVID-1918,19,20. O LPS, um agonista do TLR4, induz respostas inflamatórias robustas e é amplamente utilizado em modelos de lesão pulmonar aguda21. Portanto, o modelo induzido por SARS-CoV-2 e LPS descrito neste estudo foi desenvolvido para investigações focadas na lesão pulmonar associada à COVID-19, particularmente nos mecanismos subjacentes à ativação inflamatória excessiva e às respostas imunes antivirais prejudicadas. Em comparação com modelos que utilizam apenas SARS-CoV-2, esta abordagem enfatiza as características imuno-inflamatórias, mantendo o contexto da infecção viral. Este modelo possui um potencial considerável para investigar mecanismos imuno-inflamatórios, em vez de modelar a transmissão viral ou o curso natural completo da infecção por SARS-CoV-2.
Este protocolo descreve o estabelecimento procedural de um modelo murino de lesão pulmonar associada à COVID-19 induzida por SARS-CoV-2 e LPS. Diante das limitações dos modelos existentes em reproduzir a desregulação imune-inflamatória associada à COVID-19, esta abordagem fornece uma plataforma prática para o estudo dos mecanismos da doença e a avaliação de possíveis estratégias terapêuticas. O modelo foi avaliado sistematicamente por meio de histopatologia pulmonar, carga viral, citocinas inflamatórias e respostas de IFN-I.
Protocolo
Este estudo estabeleceu um modelo murino de lesão pulmonar associada à COVID-19 por meio da instilação intranasal de SARS-CoV-2 e LPS, fornecendo uma alternativa estável e de baixo custo aos modelos murinos transgênicos. O protocolo experimental foi aprovado pelo Centro de Controle e Prevenção de Doenças de Sichuan e recebeu aprovação ética para uso de animais [CDC de Sichuan (Aprovação Ética para Animais) N.º 005 (2025)]. Todos os procedimentos foram realizados em estrita conformidade com as diretrizes relevantes e as regulamentações de biossegurança.
Informações detalhadas sobre os reagentes e equipamentos principais são fornecidas na Tabela de Materiais.
1. Desenho do protocolo do estudo
- Atribua aleatoriamente camundongos BALB/c ao grupo controle ou ao grupo modelo.
- Administre SARS-CoV-2 por via intranasal aos camundongos do grupo modelo no dia 0.
- Administre LPS por via intranasal aos camundongos do grupo modelo no dia 2.
- Administre um volume igual de solução salina normal por via intranasal aos camundongos controles nos respectivos pontos de tempo.
- Sacrifique todos os camundongos no dia 3 após a infecção por SARS-CoV-2 e colete o tecido pulmonar para validação do modelo.
OBSERVAÇÃO: O fluxo experimental está ilustrado na Figura 1A.
2. Preparação
- Preparação dos animais
- Utilize camundongos fêmeas BALB/c livres de patógenos específicos (SPF) com idade entre 6 e 8 meses e peso aproximado de 25–30 g.
- Atribua aleatoriamente os camundongos a um grupo controle ou a um grupo modelo utilizando uma tabela de números aleatórios, com quatro animais por grupo.
- Mantenha os camundongos em condições padrão de laboratório com acesso livre a alimento e água.
NOTA: Estudos anteriores demonstraram que camundongos idosos são mais suscetíveis à infecção intranasal por SARS-CoV-2 do que camundongos jovens18,22. Portanto, camundongos BALB/c idosos foram selecionados neste estudo para facilitar o estabelecimento de um modelo de lesão pulmonar associada ao SARS-CoV-2. - Inocule cada camundongo intranasalmente com 100 µL de suspensão viral, correspondendo a uma dose infecciosa final de 4,5 x 10⁵ TCID₅₀ por camundongo.
NOTA: O SARS-CoV-2 foi fornecido pelo Centro de Controle e Prevenção de Doenças de Sichuan. A cepa utilizada neste estudo foi a variante Ômicron do SARS-CoV-2, com título do estoque viral de 4,5 x 10⁶ TCID₅₀/mL.
CAUTELA: Como o SARS-CoV-2 é um microrganismo altamente patogênico, realize todos os procedimentos relacionados ao vírus em uma instalação de Nível 3 de Biossegurança em Animais (ABSL-3). Otimize a dose infecciosa com base em experimentos preliminares ao utilizar diferentes variantes virais ou modelos animais.
- Preparação do estoque de trabalho
- Preparação da solução estoque de LPS: Pese 3 mg de pó de LPS e dissolva em 1 mL de solução salina normal. Agite suavemente ou vortexe continuamente até completa dissolução, obtendo uma solução estoque com concentração de 3 mg/mL. Antes da administração, dilua adicionalmente a solução estoque com solução salina normal até a concentração de trabalho desejada, de acordo com o peso corporal dos camundongos.
- Preparação da solução anestésica: Reconstitua o pó com a água estéril para injeção fornecida no kit Zoletil para preparar uma solução na razão massa/volume necessária para uso posterior.
- Preparação da solução viral de trabalho: Descongele lentamente 1 mL da suspensão viral de SARS-CoV-2 em gelo dentro de uma cabine de segurança biológica antes do uso.
NOTA: Siga as instruções dos respectivos fabricantes ao preparar e utilizar todas as soluções de trabalho.
3. Administração intranasal em camundongos
- Pese cada camundongo antes da administração e registre o peso corporal.
- Calcule as doses de Zoletil e LPS com base no peso corporal de cada camundongo.
- Prepare as soluções trabalho correspondentes e aspire os volumes necessários usando uma seringa apropriada para administração subsequente.
- Restrição do camundongo: Segure suavemente o camundongo pelo pelo da nuca com o polegar e o indicador da mão esquerda, segurando a pele atrás das orelhas e do pescoço.
- Coloque o animal na palma da mão, utilizando o dedo anelar e o mindinho para fixar as costas e a cauda. Posicione o camundongo em posição supina, com o abdômen totalmente exposto e o corpo estabilizado.
- Desinfecção: Desinfete o local da injeção abdominal com etanol a 75% utilizando um cotonete estéril.
- Anestesia: Insira a agulha da seringa contendo o Zoletil (25mg/kg) aproximadamente 0,5 cm lateral à linha média do abdômen inferior. Avance a agulha em um ângulo de 45° para dentro da cavidade peritoneal até uma profundidade de aproximadamente 2–3 mm após penetrar a pele. Aspire para garantir a ausência de sangue e, em seguida, administre lentamente o anestésico.
NOTA: Otimize a dose do anestésico com base em experimentos piloto para garantir anestesia adequada e minimizar a mortalidade. Evite punções repetidas para minimizar danos teciduais. - Confirmação da anestesia: Confirme o estado anestesiado observando uma respiração estável e regular, sem sinais de dispneia ou dificuldade respiratória.
- Instilação intranasal de SARS-CoV-2 (dia 0): Administre lentamente, gota a gota, 100 µL de suspensão viral do SARS-CoV-2 (50 µL por narina) nas narinas externas utilizando uma micropipeta ou seringa durante um ciclo respiratório estável e no início da inspiração.
- Alterne as narinas para facilitar a inalação uniforme. Trate os camundongos controle com um volume igual de solução salina normal utilizando o mesmo procedimento.
NOTA: Administre a solução gota a gota, garantindo que cada gota seja inalada na cavidade nasal antes de aplicar a próxima, até atingir o volume desejado. - Manuseio pós-administração: Mantenha a cabeça do camundongo ligeiramente elevada por aproximadamente 30–60 s após a instilação intranasal para facilitar a entrega da solução ao trato respiratório inferior. Retorne os camundongos às suas gaiolas assim que forem observados sinais de recuperação da anestesia e monitore-os até que a consciência plena seja restaurada.
- Registro e monitoramento: Registre o volume administrado e o número de identificação de cada camundongo. Monitore os animais continuamente durante todo o período experimental quanto ao status de sobrevivência e à condição fisiológica geral.
- Instilação intranasal de LPS (dia 2): Administre LPS aos camundongos no dia 2 após infecção pelo SARS-CoV-2. Realize a administração intranasal de LPS (5 mg/kg) seguindo o mesmo protocolo utilizado para a administração do SARS-CoV-2. Administre um volume igual de solução salina normal aos camundongos controle utilizando o mesmo procedimento.
NOTA: Nesta etapa, LPS e solução salina normal foram administrados seguindo o mesmo procedimento da inoculação de SARS-CoV-2, incluindo anestesia e entrega intranasal.
4. Dissecção de camundongo e coleta de tecido pulmonar
- Eutanizar os camundongos no dia 3 após a infecção por SARS-CoV-2 para coleta de tecidos. Anestesiar os animais primeiramente e, em seguida, sacrificá-los por dislocação cervical. Processar os camundongos controle utilizando o mesmo procedimento.
NOTA: Para procedimentos detalhados sobre dislocação cervical, consulte o Arquivo Suplementar 1. - Fixar o camundongo eutanizado em posição supina sobre uma placa de dissecação, com as regiões abdominal e torácica totalmente expostas. Umedecer o pelo abdominal com etanol a 75% para minimizar contaminação.
- Utilizar tesoura estéril para cortar cuidadosamente o esterno ao longo das margens costais bilaterais e abrir gradualmente a cavidade torácica. Usar pinça para retrair suavemente os tecidos e dissecar os pulmões progressivamente das estruturas torácicas circundantes, minimizando lesões mecânicas no tecido pulmonar.
NOTA: Controlar cuidadosamente a orientação das pontas da tesoura durante o corte para evitar danos ao coração, pulmões e estruturas vasculares principais. - Colocar imediatamente os tecidos pulmonares removidos em PBS pré-resfriado ou solução salina normal e lavá-los suavemente 2–3 vezes para remover sangue residual e debris. Remover o excesso de líquido da superfície com cuidado usando papel filtro livre de fiapos e evitar compressão para prevenir danos estruturais ao tecido.
- Pesar imediatamente os tecidos pulmonares processados utilizando uma balança eletrônica e registrar as medidas.
- Ressecar o lobo caudal direito e fixá-lo imediatamente em paraformaldeído a 4%, utilizando um volume dez vezes maior que o do tecido, para análise histopatológica subsequente.
ATENÇÃO: O paraformaldeído é tóxico; manipulá-lo de acordo com as diretrizes institucionais de segurança. - Coletar os tecidos pulmonares restantes, fracioná-los em criotubos, congelá-los rapidamente em nitrogênio líquido e armazená-los a −80 °C para preservação. Destinar o lobo cranial direito, o lobo médio direito e o lobo acessório para detecção da carga viral do SARS-CoV-2 e de citocinas pró-inflamatórias, e reservar o pulmão esquerdo para análise por ELISA.
ATENÇÃO: O nitrogênio líquido é extremamente frio; usar luvas criogênicas e óculos de segurança apropriados ao manipulá-lo para prevenir queimaduras por frio ou congelamento. - Limpar e esterilizar todos os instrumentos completamente de acordo com os procedimentos padrão após a conclusão da dissecação. Descartar cadáveres de animais e resíduos biológicos conforme as diretrizes institucionais e regulamentares para experimentos com animais.
5. Coloração com hematoxilina-eosina (HE)23
- Fixe tecidos pulmonares frescos em paraformaldeído 4% à temperatura ambiente por 24 h.
NOTA: Controle cuidadosamente o tempo de fixação. Evite fixação insuficiente, que pode resultar em preservação incompleta do tecido, e fixação prolongada, que pode causar reticulação excessiva de proteínas e afetar a qualidade da coloração. - Processe os tecidos fixados utilizando um processador de tecidos automatizado para desidratação progressiva, clareamento e infiltração com parafina.
NOTA: O protocolo para o processador de tecidos automatizado está descrito no Arquivo Suplementar 2. - Coloque os tecidos infiltrados com parafina em moldes para inclusão. Adicione parafina fundida e oriente cuidadosamente o tecido.
- Transfira os moldes para uma placa fria para solidificação. Remova os blocos de parafina dos moldes após completa endurecimento.
- Monte os blocos de parafina em um micrótomo e ajuste a superfície de corte para ficar paralela à lâmina. Obtenha cortes seriados com espessura de aproximadamente 3–5 µm.
- Transfira imediatamente os cortes para um banho-maria a aproximadamente 45 °C para flutuação, permitindo expansão completa.
- Recolha os cortes utilizando lâminas, mergulhando verticalmente uma extremidade da lâmina na água, e use pinça para auxiliar a adesão adequada dos cortes à superfície da lâmina.
- Coloque as lâminas em uma estufa para lâminas a 65 °C por aproximadamente 1 h para melhorar a aderência do tecido.
NOTA: Ajuste o tempo de secagem conforme o tipo de tecido, espessura dos cortes e condições do equipamento. Evite superaquecimento para prevenir danos ao tecido. - Realize a coloração HE nos cortes secos utilizando um coloridor automatizado.
NOTA: O protocolo para o coloridor automatizado está descrito no Arquivo Suplementar 3. - Remova os cortes corados e seque-os ao ar. Aplique uma gota de meio de montagem neutro e cubra com lamínula. Examine os cortes ao microscópio óptico após o meio de montagem ter solidificado.
6. Expressão da carga viral de SARS-CoV-2 e de citocinas pró-inflamatórias no tecido pulmonar
- Homogeneização do tecido pulmonar
- Prepare tubos de homogeneização livres de RNase adicionando 4–5 esferas de aço inoxidável (3 mm de diâmetro) e 900 µL de tampão de lise pré-resfriado como meio de homogeneização.
NOTA: Ajuste o volume do tampão de lise de acordo com o peso do tecido, normalmente em uma proporção de aproximadamente 9 mL para cada 1 g de tecido. - Pese cerca de 50 mg de tecido pulmonar, pique finamente o tecido e transfira-o para o tubo de homogeneização.
- Homogeneíze o tecido utilizando um triturador de tecidos (60 Hz, 60 s, por 2–3 ciclos com intervalos de 10 s entre os ciclos).
NOTA: Otimize os parâmetros de homogeneização de acordo com o instrumento e o tipo de tecido. - Inspecione a amostra após a homogeneização para garantir a completa ruptura. Repita o processo de homogeneização se houver fragmentos visíveis de tecido até obter um lisado homogêneo.
- Prepare tubos de homogeneização livres de RNase adicionando 4–5 esferas de aço inoxidável (3 mm de diâmetro) e 900 µL de tampão de lise pré-resfriado como meio de homogeneização.
- Extração de RNA total a partir de tecido pulmonar por método em coluna
NOTA: Extraia o RNA total do tecido pulmonar utilizando um método de purificação em coluna, conforme as instruções do fabricante. Utilize métodos alternativos de extração de RNA conforme os manuais dos produtos correspondentes, quando aplicável.- Transfira o homogeneizado para um novo tubo microcentrífugo de 2 mL livre de RNase. Adicione 100 µL da solução gDNA Eliminator. Feche bem a tampa do tubo e agite vigorosamente por 15–20 s.
- Abra brevemente a tampa, adicione 180 µL de clorofórmio e vortexie completamente por 15 s.
ATENÇÃO: O clorofórmio é volátil e tóxico; manipule-o em área bem ventilada ou capela de exaustão química e use equipamentos de proteção individual adequados para evitar inalação e contato com a pele. - Incube a amostra à temperatura ambiente por 2 min e, em seguida, centrifugue a 12.000 x g por 15 min a 4 °C.
- Transfira cuidadosamente a fase aquosa superior para um novo tubo. Adicione volume igual de etanol a 70% e misture completamente por vortex.
NOTA: Evite perturbar a interfase e a camada orgânica ao coletar a fase aquosa para garantir a pureza do RNA. Prossiga imediatamente para a próxima etapa após adicionar o etanol a 70%, sem centrifugação. - Transfira a mistura para uma coluna de centrifugação e centrifugue a 8.000 x g por 15 s. Descarte o fluxo passante.
- Adicione 700 µL de tampão de lavagem à coluna de centrifugação e centrifugue a 8.000 x g por 15 s. Descarte o fluxo passante.
- Adicione 500 µL de tampão de lavagem à coluna de centrifugação e centrifugue a 8.000 x g por 15 s. Repita esta etapa de lavagem uma vez.
- Transfira a coluna de centrifugação para um novo tubo coletor e centrifugue a 12.000 x g por 1 min para remover o tampão de lavagem residual.
- Coloque a coluna de centrifugação em um novo tubo microcentrífugo de 1,5 mL livre de RNase. Adicione 30 µL de água livre de RNase diretamente no centro da membrana e centrifugue a 8.000 x g por 1 min para eluir o RNA.
NOTA: Ajuste o volume de água livre de RNase entre 30–50 µL de acordo com as aplicações subsequentes. Utilize um volume de eluição menor quando for necessária uma maior concentração de RNA.
- Detecção da carga viral de SARS-CoV-2 por PCR digital de transcrição reversa (RT-dPCR)
NOTA: Um ensaio de RT-dPCR em uma etapa foi empregado para a quantificação absoluta do RNA de SARS-CoV-2. Conjuntos específicos de iniciadores e sondas direcionados ao gene da nucleocapsídeo (N) foram utilizados para determinar o número de cópias do RNA viral.- Deixe descongelar as amostras de RNA e os reagentes no gelo.
- Prepare a mistura de reação de RT-dPCR conforme as instruções do fabricante.
- Combine 20 µL da mistura de reação de RT-dPCR com 20 µL do molde de RNA. Vortexie brevemente a mistura, centrifugue com uma rotação rápida e mantenha no gelo.
- Carregue os poços do chip de PCR digital com a mistura de reação de 40 µL e selle o chip conforme o protocolo do instrumento.
- Realize a amplificação utilizando as seguintes condições de ciclagem térmica: 50 °C por 40 min (1 ciclo), 95 °C por 2 min (1 ciclo), seguido por 40 ciclos de 95 °C por 15 s e 57 °C por 60 s. Configure os canais de detecção para VERDE (250 ms) e VERMELHO (150 ms).
- Detecção da expressão de citocinas inflamatórias por PCR quantitativa de transcrição reversa (RT-qPCR)
- Determine a concentração e pureza do RNA utilizando um espectrofotômetro UV.
- Utilize 1.000 ng de RNA total por reação para a transcrição reversa e síntese de DNA complementar (cDNA), conforme as instruções do fabricante.
- Realize a RT-qPCR utilizando 100 ng de cDNA por reação como molde, com uma mistura mestra de PCR com SYBR Green e iniciadores específicos para o gene. Utilize as seguintes condições de ciclagem: 95 °C por 2 min, seguido por 40 ciclos de 95 °C por 5 s e 60 °C por 10 s. As sequências dos iniciadores estão listadas na Tabela 1.
NOTA: Otimize as condições de reação de acordo com os reagentes e instrumentos específicos utilizados e siga as instruções correspondentes do fabricante. - Utilize GAPDH como gene de referência interno e calcule os níveis relativos de expressão gênica utilizando o método 2−ΔΔCt.
7. Detecção de citocinas pró-inflamatórias em tecido pulmonar por ensaio imunoenzimático (ELISA)24
OBSERVAÇÃO: Utilize kits de ELISA de acordo com os protocolos específicos fornecidos pelos diferentes fabricantes. Siga rigorosamente as instruções do fabricante correspondente ao usar kits de fornecedores alternativos.
- Homogeneíze o tecido pulmonar conforme descrito acima. Utilize PBS ou tampão de lise tecidual específico para ELISA como meio de homogeneização.
- Centrifugue as amostras homogeneizadas (por exemplo, 12.000 x g, 4 °C, 10 min) e colete o sobrenadante para análises subsequentes.
- Equilibre o kit de ELISA à temperatura ambiente por 30 min antes do uso. Remova as tiras de microplaca necessárias do envelope de folha de alumínio.
- Prepare os padrões, poços de amostra e poços em branco de acordo com as instruções do fabricante. Adicione 50 µL dos padrões nos poços de padrão e 10 µL da amostra mais 40 µL de tampão de diluição da amostra nos poços de amostra. Realize duas réplicas técnicas para cada padrão e amostra.
- Adicione 100 µL de anticorpo de detecção conjugado à peroxidase do rabo-de-cavalo (HRP) a cada poço de padrão e amostra, exceto aos poços em branco. Sobreponha a placa com filme adesivo e incube a 37 °C por 60 min.
- Descarte o líquido de cada poço após a incubação e bata suavemente na placa sobre papel absorvente para remover o fluido residual.
- Adicione tampão de lavagem a cada poço, deixe repousar por 1 min e, em seguida, descarte o tampão. Seque a placa pressionando levemente. Repita este passo de lavagem cinco vezes no total.
- Adicione sequencialmente 50 µL da solução de substrato A e 50 µL da solução de substrato B a cada poço. Misture suavemente a placa e incube-a a 37 °C no escuro por 15 min para permitir o desenvolvimento da cor.
- Interrompa a reação adicionando 50 µL de solução de parada a cada poço. Meça a densidade óptica (DO) dentro de 10 min em 450 nm utilizando um leitor de microplacas.
- Gere uma curva padrão plotando as concentrações dos padrões (eixo x) contra os valores de DO (eixo y) e ajuste a curva. Calcule as concentrações das citocinas-alvo nas amostras substituindo os valores de DO na equação da curva padrão e multiplique pelos fatores de diluição correspondentes.
- Determine a concentração total de proteína no tecido pulmonar utilizando um kit de ensaio de proteína BCA. Normalize os níveis finais de citocinas ao teor total de proteína e expresse os resultados como quantidade de citocina-alvo por miligrama de proteína total (por exemplo, pg/mg de proteína).
Resultados
A validação do modelo foi realizada mediante a avaliação de alterações histopatológicas pulmonares, carga viral de SARS-CoV-2 e níveis de citocinas pró-inflamatórias e interferons do tipo I nos grupos controle e modelo.
Análise estatística
Os dados são apresentados como média ± erro padrão (EP). Um teste t de Student não pareado foi utilizado para comparações entre os grupos modelo e controle. Esse teste foi escolhido porque é apropriado para comparar as médias de variáveis contínuas entre dois grupos independentes. Neste estudo, os camundongos foram alocados independentemente e aleatoriamente nos dois grupos, atendendo à suposição de independência das amostras. Um valor de p- < 0,05 foi considerado estatisticamente significativo.
Alterações no peso corporal e no índice pulmonar de camundongos
Conforme mostrado na Figura 1B, em comparação com os valores basais antes da modelagem, o peso corporal dos camundongos no grupo modelo foi significativamente reduzido após a infecção, com diferença estatisticamente significativa (p < 0,05). Conforme mostrado na Figura 1C, o índice pulmonar dos camundongos no grupo modelo aumentou significativamente em comparação com o do grupo controle (p < 0,01), consistente com características típicas de lesão pulmonar. Nenhuma mortalidade foi observada durante o período experimental, e todos os camundongos sobreviveram até o ponto final do experimento.
Alterações histopatológicas no tecido pulmonar e carga viral de SARS-CoV-2 em camundongos
Figura 2 apresenta as alterações histopatológicas e a carga viral nos tecidos pulmonares de camundongos de ambos os grupos. A coloração HE mostrou que o grupo controle exibia arquitetura pulmonar intacta, enquanto o grupo modelo apresentava alterações patológicas pulmonares substanciais, incluindo espessamento do septo alveolar, infiltração de células inflamatórias e ruptura da estrutura alveolar (Figura 2A). A análise quantitativa confirmou ainda que tanto o escore de lesão pulmonar quanto o escore de inflamação alveolar estavam significativamente aumentados no grupo modelo em comparação com o grupo controle (p < 0,001), demonstrando a indução bem-sucedida de lesão pulmonar e respostas inflamatórias (Figura 2B,C).
Além disso, detectou-se um nível substancial de expressão de RNA do SARS-CoV-2 em tecidos pulmonares do grupo modelo. No terceiro dia após a infecção, a carga viral média no tecido pulmonar atingiu 5,5 x 10⁸ cópias/g (Figura 2D), indicando replicação viral bem-sucedida e presença sustentada em alto nível no pulmão.
Alterações nas citocinas pró-inflamatórias e no IFN-I em tecido pulmonar de camundongo
Figura 3 ilustra as alterações nas citocinas inflamatórias e no IFN-I no tecido pulmonar de camundongos. Os resultados mostraram que, em comparação com o grupo controle, as expressões de mRNA e os níveis proteicos de IL-6, IL-1β e TNF-α no tecido pulmonar do grupo modelo estavam significativamente aumentados (p < 0,05) (Figura 3A–F), indicando uma ativação acentuada da resposta inflamatória. Em contraste, os resultados de ELISA demonstraram que os níveis de IFN-α e IFN-β no tecido pulmonar do grupo modelo foram significativamente reduzidos em comparação com os do grupo controle (p < 0,001) (Figura 3G,H), sugerindo supressão da resposta imune antiviral.
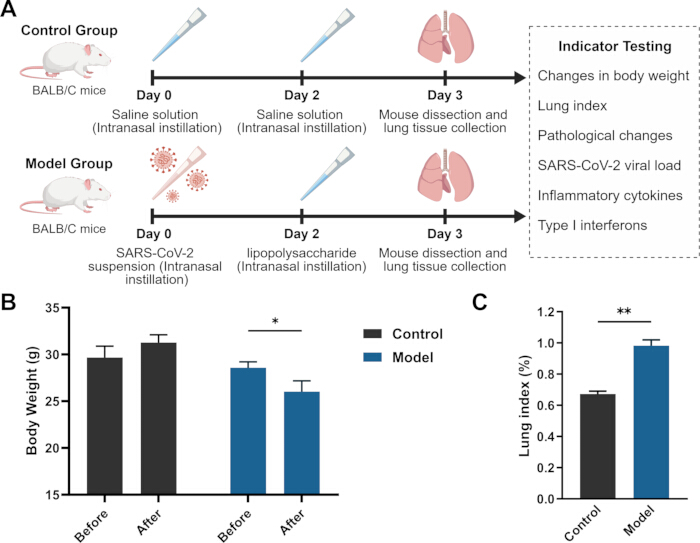
Figura 1: Fluxograma experimental e alterações no peso corporal e índice pulmonar de camundongos. (A) Fluxograma experimental. (B) Alterações no peso corporal dos camundongos. (C) Alterações no índice pulmonar dos camundongos. Os dados são apresentados como média ± erro padrão (EP) para cada grupo. O teste t de Student foi utilizado para avaliar as diferenças estatísticas entre os grupos. *p < 0,05; **p < 0,01; ***p < 0,001. Figura 1A foi criada com BioGDP.com25. Clique aqui para visualizar uma versão maior desta figura.
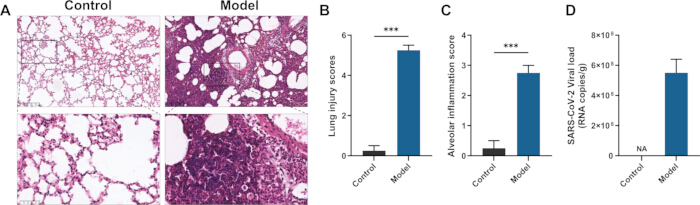
Figura 2: Alterações histopatológicas e carga viral de SARS-CoV-2 em tecido pulmonar de camundongo. (A) Coloração com HE de tecido pulmonar de camundongo. (B) Escore de lesão pulmonar (escore de Smith). (C) Escore de inflamação alveolar (escore de Szapiel). (D) Carga viral de SARS-CoV-2 no tecido pulmonar. Os dados são apresentados como média ± erro padrão (SE) para cada grupo. O teste t de Student foi utilizado para avaliar as diferenças estatísticas entre os grupos. *p < 0,05; **p < 0,01; ***p < 0,001. Clique aqui para visualizar uma versão maior desta figura.
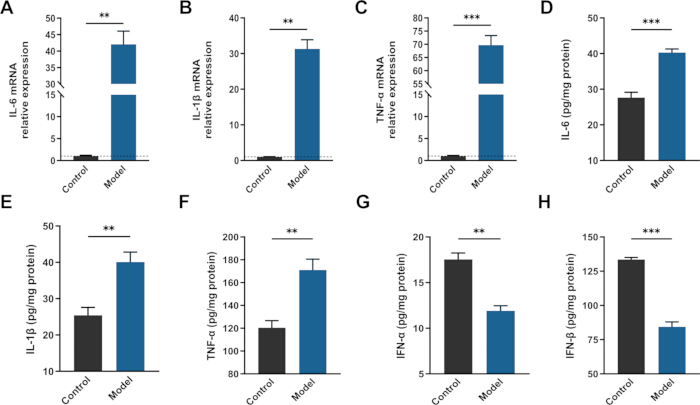
Figura 3: Alterações nas citocinas pró-inflamatórias e no IFN-I em tecido pulmonar de camundongo. (A–C) Expressão relativa de mRNA das citocinas pró-inflamatórias IL-6, IL-1β e TNF-α em tecido pulmonar de camundongo. (D–F) Níveis proteicos de IL-6, IL-1β e TNF-α em tecido pulmonar de camundongo. (G–H) Níveis de IFN-α e IFN-β em tecido pulmonar de camundongo. Os dados são apresentados como média ± EP para cada grupo. O teste t de Student foi utilizado para avaliar as diferenças estatísticas entre os grupos. *p < 0,05; **p < 0,01; ***p < 0,001. Clique aqui para visualizar uma versão maior desta figura.
| Primer | Sequência direta (5’ a 3’) | Sequência reversa (5’ a 3’) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
Tabela 1: Sequências dos iniciadores utilizadas neste estudo. As sequências dos iniciadores diretos e reversos (5′ a 3′) para os genes alvo e de referência interna estão listadas.
Arquivo Suplementar 1 Clique aqui para baixar este arquivo.
Arquivo Suplementar 2 Clique aqui para baixar este arquivo.
Arquivo Suplementar 3 Clique aqui para baixar este arquivo.
Discussão
Este estudo estabeleceu um modelo murino de lesão pulmonar associada à COVID-19 por meio da instilação intranasal de SARS-CoV-2 e LPS. Os resultados demonstraram que a administração intranasal conjunta de SARS-CoV-2 e LPS induz uma resposta inflamatória acentuada, acompanhada pela supressão da sinalização de IFN-I. Os camundongos do grupo modelo exibiram perda significativa de peso corporal e aumento do índice pulmonar, indicando caquexia sistêmica e agravamento da lesão pulmonar. A coloração com HE confirmou ainda que o grupo modelo apresentava lesão pulmonar difusa típica, caracterizada por ruptura da arquitetura alveolar e infiltrado extenso de células inflamatórias. Além disso, em comparação com o grupo controle, os tecidos pulmonares do grupo modelo mostraram expressão significativamente aumentada de citocinas pró-inflamatórias-chave, incluindo IL-6, IL-1β e TNF-α, enquanto os níveis de IFN-α e IFN-β foram acentuadamente reduzidos. Esses achados sugerem um estado de desequilíbrio imunológico caracterizado pela ativação excessiva de respostas pró-inflamatórias acompanhada por imunidade antiviral suprimida, reforçando ainda mais o valor potencial desse modelo em reproduzir as características imunopatológicas da doença.
A infecção por SARS-CoV-2 é considerada um fator central impulsionador no desenvolvimento de lesões orgânicas associadas à COVID-1926,27. Neste estudo, uma alta carga viral foi detectada nos tecidos pulmonares de camundongos modelo, acompanhada por lesão pulmonar difusa acentuada e infiltração de células inflamatórias, sugerindo que a infecção viral pode ser um gatilho chave da resposta inflamatória pulmonar. De acordo com relatos anteriores, a infecção por SARS-CoV-2 pode induzir alterações patológicas pulmonares e ativação imune28; no entanto, modelos convencionais de infecção por SARS-CoV-2 em camundongos frequentemente apresentam respostas inflamatórias limitadas e podem não reproduzir completamente o fenótipo hiperinflamatório observado em pacientes com COVID-1918,19,20. Portanto, pode ser necessária uma estimulação adicional da imunidade inata para investigar melhor os mecanismos subjacentes à desregulação imune-inflamatória associada à doença. O LPS, um ativador prototípico da imunidade inata, liga-se ao receptor tipo Toll 4 (TLR4) e ativa vias de sinalização dependentes de MyD88 e dependentes de TRIF, ativando assim programas transcripcionais inflamatórios essenciais, como o NF-κB, e induzindo a expressão de múltiplas citocinas pró-inflamatórias29. Estudos anteriores também demonstraram que a estimulação com LPS, isoladamente ou em combinação com componentes relacionados ao SARS-CoV-2, pode potencializar as respostas inflamatórias e contribuir para fenótipos semelhantes à lesão pulmonar aguda, apoiando a justificativa para o uso do LPS como estímulo inflamatório em pesquisas relacionadas à COVID-1930,31,32. No presente estudo, níveis significativamente elevados de IL-6, IL-1β e TNF-α foram observados nos tecidos pulmonares do grupo modelo, sugerindo que o LPS atua como um amplificador inflamatório no contexto da infecção por SARS-CoV-2, e não simplesmente como uma coinfecção bacteriana. Em comparação com modelos inflamatórios induzidos apenas por LPS, que não possuem o contexto de infecção viral, o modelo combinado estabelecido neste estudo integra alterações imunológicas induzidas pelo SARS-CoV-2 com ativação inflamatória mediada por LPS, fornecendo assim uma plataforma mais abrangente para o estudo da lesão pulmonar associada à COVID-19.
Os IFN-I são moléculas efetoras essenciais da imunidade antiviral do hospedeiro e exercem funções antivirais amplas ao induzir uma ampla gama de genes estimulados por interferon (ISGs)33. No entanto, demonstrou-se que o SARS-CoV-2 antagoniza a sinalização por IFN-I por meio de múltiplos mecanismos, incluindo interferência na transdução de sinal mediada por receptores de reconhecimento de padrão (PRR), supressão da ativação do fator regulador de interferon (IRF) e bloqueio da sinalização JAK-STAT downstream, prejudicando assim as defesas antivirais do hospedeiro14,34. Neste estudo, observaram-se níveis significativamente reduzidos de IFN-α e IFN-β nos tecidos pulmonares do grupo modelo, indicando que, sob os efeitos sinérgicos da infecção viral e da estimulação por LPS, o hospedeiro não apenas exibiu ativação inflamatória excessiva, mas também supressão concomitante da imunidade antiviral. Essa desregulação imunológica é considerada uma das principais características imunológicas-chave no desenvolvimento e progressão da COVID-198. Portanto, o modelo atual recapitula parcialmente esse processo patológico complexo, fornecendo uma ferramenta experimental valiosa para investigações adicionais sobre a desregulação imunológica associada à COVID-19 e para o desenvolvimento de intervenções terapêuticas relacionadas.
O modelo de camundongo para COVID-19 estabelecido neste estudo, com base na administração combinada de SARS-CoV-2 e LPS, é capaz de recapitular características-chave da patologia da doença, incluindo citocinas pró-inflamatórias elevadas e supressão da sinalização de IFN-I, imitando parcialmente o desequilíbrio imunológico observado na lesão pulmonar associada à COVID-19. Em comparação com modelos de infecção viral única, essa abordagem combinada incorpora um estímulo imunológico inato exógeno para potencializar respostas inflamatórias relevantes à doença, permitindo assim o estudo de processos patológicos associados à inflamação excessiva e à imunidade antiviral prejudicada. Assim, este modelo pode ser valioso para avaliar estratégias candidatas anti-inflamatórias, imunomoduladoras e de reparo pulmonar in vivo, particularmente aquelas que visam a desregulação imunológica e não apenas a replicação viral.
No entanto, várias limitações deste estudo devem ser reconhecidas. Primeiramente, o LPS induz inflamação principalmente pela ativação do TLR4, o que não reflete plenamente as interações complexas entre vírus e hospedeiro no quadro clínico da COVID-19 e pode alterar a resposta inflamatória. Em segundo lugar, embora experimentos comparativos com grupos somente SARS-CoV-2 e somente LPS tenham sido realizados durante a fase preliminar de otimização, esses dados não estão incluídos no manuscrito. Estudos futuros avaliarão mais detalhadamente os efeitos individuais e combinados do SARS-CoV-2 e do LPS para melhor definir a contribuição de cada componente. Terceiro, este modelo foi concebido para reproduzir características imunopatológicas-chave da lesão pulmonar associada à COVID-19, particularmente a desregulação imune-inflamatória, e não o curso natural completo da infecção pelo SARS-CoV-2. Por fim, embora a dose do SARS-CoV-2 e a concentração de LPS tenham sido determinadas com base em experimentos preliminares de otimização, variações nas linhagens de camundongos, variantes virais, métodos de teste e condições experimentais podem afetar a reprodutibilidade do modelo e exigir validação adicional em diferentes ambientes de pesquisa. Nas condições otimizadas descritas neste protocolo, a taxa geral de sucesso no estabelecimento do modelo foi de aproximadamente 90%; no entanto, essa taxa pode variar entre diferentes configurações experimentais. Estudos futuros poderiam otimizar ainda mais este modelo incorporando diferentes variantes do SARS-CoV-2, linhagens de camundongos geneticamente modificadas ou abordagens avançadas de perfilhamento imunológico, como a análise transcriptômica de única célula, para melhor caracterizar as interações entre vírus e hospedeiro e identificar alvos terapêuticos. Esses esforços poderão aumentar ainda mais a relevância translacional deste modelo para a pesquisa da COVID-19.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Esta pesquisa foi apoiada pela Fundação Nacional de Ciências Naturais da China (82374291); Programa de Ciência e Tecnologia de Sichuan (2024NSFJQ0059); Projeto temático especial de pesquisa científica da Administração de Medicina Tradicional Chinesa de Sichuan (2024zd005); Projeto 2022 "Plano Tianfu Qingcheng" de Talentos Líderes em Ciência e Tecnologia de Tianfu (nº Chuan Qingcheng 1090); Fundo de Inovação Conjunta da Comissão de Saúde de Chengdu e da Universidade de Medicina Tradicional Chinesa de Chengdu (WXLH202403091).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Processador Automatizado de Tecidos | Dakewe Biotech Co., Ltd. | HP300 | Utilizado para desidratação de tecidos. |
| Autostainer | Leica Biosystems | LEICA ST5010 | Utilizado para coloração com HE. |
| Centrífuga | DLAB Scientific | D3024R | Utilizada para centrifugação de amostras ou reagentes. |
| Banho-Maria com Temperatura Constante | Shanghai LICHEN-BX Instrument Techonology Co., Ltd. | HH-6 | Utilizado para banhos de água com temperatura constante. |
| Sistema de PCR Digital | QIAGEN | QIAcuity One | Utilizado para RT-dPCR. |
| TransScript All-in-One First-Strand cDNA Synthesis SuperMix para qPCR (One-Step gDNA Removal) | TransGen Biotech Co.,Ltd. | AT341 | Utilizado para transcrição reversa. |
| Solução de Eosina | BASO | BA4024 | Utilizada para coloração histológica. |
| Sistema de PCR Quantitativo Fluorescente | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | Utilizado para RT-qPCR. |
| Solução de Hematoxilina | BASO | BA4041 | Utilizada para coloração histológica. |
| Software IBM SPSS Statistics | IBM Corp., Armonk, NY, USA | versão 22.0 | Utilizado para análise estatística. |
| Lipopolissacarídeos de Escherichia coli O55:B5 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L2880 | Utilizados para modelagem em camundongos. |
| Leitor de Microplacas | Molecular Devices | SpectraMax Plus 384 | Utilizado para ELISA. |
| KIT ELISA para IFN-α em Camundongos | ZCIBIO Technology Co., Ltd. | ZC-37863W | Utilizado para detectar níveis de IFN-α em tecido pulmonar de camundongos. |
| KIT ELISA para IFN-β em Camundongos | ZCIBIO Technology Co., Ltd. | ZC-37887W | Utilizado para detectar níveis de IFN-β em tecido pulmonar de camundongos. |
| KIT ELISA para IL-1β em Camundongos | ZCIBIO Technology Co., Ltd. | ZC-37974W | Utilizado para detectar níveis de IL-1β em tecido pulmonar de camundongos. |
| KIT ELISA para IL-6 em Camundongos | ZCIBIO Technology Co., Ltd. | ZC-37988W | Utilizado para detectar níveis de IL-6 em tecido pulmonar de camundongos. |
| KIT ELISA para TNF-α em Camundongos | ZCIBIO Technology Co., Ltd. | ZC-39024W | Utilizado para detectar níveis de TNF-α em tecido pulmonar de camundongos. |
| Kit One-Step RT-PCR para PCR Digital | QIAGEN | 4829104 | Utilizado para PCR digital. |
| Máquina de Inclusão em Parafina | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | Utilizada para inclusão em parafina de tecido pulmonar de camundongos. |
| Kit QuantiNova SYBR PCR Mix | QIAGEN | 1129280 | Utilizado para RT-qPCR. |
| Kit RNeasy Plus Universal Mini | QIAGEN | 1062832 | Utilizado para extração de RNA total. |
| Cortador | Leica Biosystems | LEICA RM2235 | Utilizado para seções em parafina. |
| Esferas de Aço Inoxidável para Homogeneizador de Tecidos | Beyotime Biotechnology | F6621 | Utilizadas para homogeneização de tecido pulmonar. |
| Pool de Primers XG 1.0 para PCR Digital | QIAGEN | 4828104 | Utilizado para PCR digital. |
| Zoletil 50 | VIRBAC | BN9VS7A | Utilizado para anestesiar camundongos. |
Referências
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.