Este protocolo descreve abordagens in vivo e in vitro para investigar como o N-lactoil-fenilalanina afeta a cardiomiopatia diabética, o metabolismo lipídico cardíaco e a síntese de colesterol, com foco na via da proteína quinase ativada por monofosfato de adenosina alfa 1/3-hidróxi-3-metilglutaril-coenzima A redutase.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de investigação
N-Lactoil-fenilalanina Melhora a Função Cardíaca em um Modelo Murino de Cardiomiopatia Diabética por meio da Regulação do Metabolismo Lipídico
Neste artigo
Resumo
Resumo
A cardiomiopatia diabética (DCM) é uma das complicações mais graves do diabetes. A N-lactoil-fenilalanina (Lac-Phe), um metabólito endógeno, pode promover a perda de peso e melhorar a homeostase glicêmica. Este estudo teve como objetivo investigar o efeito terapêutico da Lac-Phe sobre a DCM e explorar ainda mais o mecanismo subjacente. Camundongos diabéticos tipo 2 com DCM foram tratados com Lac-Phe. A Lac-Phe melhorou a função contrátil cardíaca, atenuou o remodelamento patológico e reduziu o acúmulo lipídico no coração. In vitro, os efeitos da Lac-Phe foram investigados em células H9c2 estimuladas com glicose alta e ácido palmítico. A Lac-Phe reduziu o acúmulo lipídico ao diminuir a síntese de colesterol nas células H9c2. Mecanicamente, a Lac-Phe promoveu a fosforilação e ativação da proteína quinase ativada por monofosfato de adenosina alfa 1 (AMPKα1). Posteriormente, a AMPKα1 ativada fosforilou e inibiu seu alvo downstream, a 3-hidróxi-3-metilglutaril-coenzima A redutase (HMGCR), levando à redução da síntese de colesterol e, por fim, à melhora do desequilíbrio do metabolismo lipídico nas células H9c2. Esses achados indicam que a Lac-Phe melhora o metabolismo lipídico em células H9c2 na DCM por meio da via AMPKα1/HMGCR, melhorando assim a função contrátil cardíaca e atenuando o remodelamento patológico. A Lac-Phe pode representar uma abordagem terapêutica potencial para a cardiomiopatia diabética.
Introdução
O diabetes é uma doença metabólica caracterizada por hiperglicemia persistente1. Nas últimas duas décadas, o diabetes tornou-se uma das dez principais causas de morte no mundo, com mais de seis milhões de pessoas morrendo anualmente de diabetes e suas complicações.2. A cardiomiopatia diabética (DCM), uma condição cardíaca patológica resultante do diabetes, representa uma das complicações mais graves associadas ao diabetes3,4. Atua como um fator de risco independente para insuficiência cardíaca e é caracterizada por alterações estruturais e funcionais do miocárdio5,6, incluindo fibrose cardíaca e hipertrofia de cardiomiócitos, que acabam levando a disfunção diastólica e sistólica. Embora diversas terapias cardiovasculares convencionais, como βbloqueadores, inibidores da enzima conversora da angiotensina e bloqueadores do receptor do tipo 1 da angiotensina II são atualmente empregados no tratamento da miocardiopatia dilatada7,8, sua eficácia permanece subótima em ambientes clínicos. Como os mecanismos subjacentes à miocardiopatia dilatada (DCM) não foram amplamente estudados9, atualmente não existe uma estratégia de tratamento clara direcionada a esta doença10,11. As manifestações clínicas da miocardiopatia dilatada progridem de disfunção diastólica assintomática no estágio inicial até disfunção sistólica e insuficiência cardíaca clínica no estágio avançado, podendo levar inclusive à morte12,13Portanto, existe uma necessidade urgente de explorar e desenvolver opções de tratamento eficazes para esta condição.
O metabolismo lipídico desequilibrado é uma característica-chave da miocardiopatia diabética (DCM)14. Na DCM, níveis elevados de ácidos graxos livres (AGLs) no sangue podem levar à captação excessiva de ácidos graxos pelos cardiomiócitos15,16. O metabolismo de ácidos graxos nos cardiomiócitos depende principalmente da oxidação de ácidos graxos. Com o tempo, a oxidação de ácidos graxos nos cardiomiócitos é insuficiente para metabolizar completamente todos os ácidos graxos ingeridos, e ácidos graxos em excesso e seus metabólitos intermediários se acumulam nos cardiomiócitos17. Essa sobrecarga lipídica excessiva induz lipotoxicidade, interrompe o suprimento energético miocárdico e promove estresse oxidativo cardíaco e respostas inflamatórias, causando, em última instância, danos graves aos cardiomiócitos18,19. Portanto, regular ativamente o metabolismo lipídico cardíaco pode representar um alvo terapêutico potencial para a DCM20.
N-lactoil-fenilalanina (Lac-Phe) é um metabólito endógeno cuja concentração aumenta rapidamente após o exercício21. Mecanicamente, o Lac-Phe é sintetizado pela enzima citosólica carnosina dipeptidase 2 (CNDP2) por meio da condensação de lactato e fenilalanina. Esta via biossintética está amplamente distribuída entre diversos tipos celulares, incluindo macrófagos, células epiteliais e células-tronco mesenquimais, que secretam Lac-Phe na circulação após atividade física22. A administração crônica de Lac-Phe demonstrou reduzir efetivamente a ingestão alimentar, diminuir a obesidade e o peso corporal e melhorar a homeostase da glicose21. Um estudo recente mostrou que o Lac-Phe pode melhorar a capacidade de metabolismo lipídico das micróglias/macrófagos após lesão medular23. Curiosamente, estudos indicam que tanto a administração aguda quanto a crônica da metformina, um medicamento de primeira linha para diabetes tipo 2, podem elevar os níveis de Lac-Phe e que o Lac-Phe media os efeitos antiobesidade da metformina22. Além disso, Sha et al. demonstraram recentemente que o Lac-Phe atenua a morte celular miocárdica ao aliviar a disfunção mitocondrial, melhorando assim a insuficiência cardíaca induzida por constrição aórtica transversa (TAC)24. A hiperglicemia prolongada e a obesidade são fatores importantes que contribuem para a desregulação do metabolismo lipídico na miocardiopatia diabética (DCM)25. Em conjunto, essas evidências sugerem que o Lac-Phe pode ter um efeito terapêutico potencial na DCM. No entanto, até o momento, o papel específico do Lac-Phe na DCM não foi investigado.
Neste estudo, descobrimos que a administração exógena de Lac-Phe em camundongos com cardiomiopatia diabética melhorou efetivamente a função contrátil cardíaca e atenuou o remodelamento patológico cardíaco. Verificamos que o Lac-Phe melhorou a função cardíaca em camundongos com miocardiopatia dilatada (DCM) por meio da regulação do desequilíbrio do metabolismo lipídico. O Lac-Phe reduziu o acúmulo de gotículas lipídicas (LD) em cardiomiócitos de camundongos com DCM e diminuiu o conteúdo de colesterol no coração. Mecanicamente, o Lac-Phe promoveu a fosforilação e ativação da proteína quinase ativada por monofosfato de adenosina alfa 1 (AMPKα1), promovendo assim a fosforilação da 3-hidróxi-3-metilglutaril-coenzima A redutase (HMGCR). A fosforilação da HMGCR reduz sua atividade, resultando na diminuição da produção de colesterol e, consequentemente, na melhora do desequilíbrio do metabolismo lipídico em cardiomiócitos. Esses resultados fornecem uma base teórica para o potencial tratamento da DCM com Lac-Phe.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
The animal study protocol was approved by the Institutional Ethics Committee of Nanjing Drum Tower Hospital (Approval Number: 2025AE1065, 26 September 2025) and was conducted in accordance with the guidelines outlined in the Guidelines for the Care and Use of Laboratory Animals (8th Edition), published by the National Institutes of Health of the United States.
Animals
Thirty 5-week-old male C57BL/6J mice were used in this study. After 1 week of adaptive feeding, all mice were housed with access to food and water under an alternating 12 h day-night cycle at a temperature of 22°C ± 2°C and humidity of 40%–60%. An HFD combined with low-dose STZ was used to establish the DCM mouse model (Figure 1A). Four weeks after initiation of high-fat diet (HFD; 60% fat, 20% protein, and 20% carbohydrate) feeding, mice were fasted overnight and subsequently administered streptozotocin (STZ; 8 mg/mL dissolved in citrate buffer, pH 4.5) via intraperitoneal injection at a dosage of 35 mg/kg/day for three consecutive days. Control group mice were fed a control diet (10% fat, 20% protein, and 70% carbohydrate) and received equivalent volumes of citrate buffer. Following 15 additional weeks of high-fat diet maintenance, mice meeting both criteria, random blood glucose of ≥13.3 mmol/L and left ventricular ejection fraction (LVEF) of <55%, were defined as successfully established DCM models. These validated DCM mice were numbered and randomly assigned to the DCM and DCM + Lac-Phe groups using a random number table. Approximately half of the mice failed to develop the model; these animals were euthanized in accordance with animal ethics requirements. In brief, mice were divided into three groups: Control, DCM, and DCM + Lac-Phe (n = 10 for each group). All 10 mice per group underwent echocardiography, body weight measurement, and OGTT. Following the 28-day treatment period, hearts were collected for subsequent analyses. There were 10 mice in each group. Of these, three mice per group were used for transcriptome sequencing, three were used for transmission electron microscopy and histological staining, and three were used for protein expression analysis. The remaining mouse in each group was reserved as a backup. After successful establishment of the DCM model, Lac-Phe was dissolved in normal saline to a final concentration of 10 mg/mL. Mice in the DCM + Lac-Phe group received intraperitoneal Lac-Phe at 50 mg/kg/day in an injection volume of 5 mL/kg, once daily for 28 consecutive days. Mice in the Control and DCM groups were administered an equivalent volume of normal saline as vehicle control.
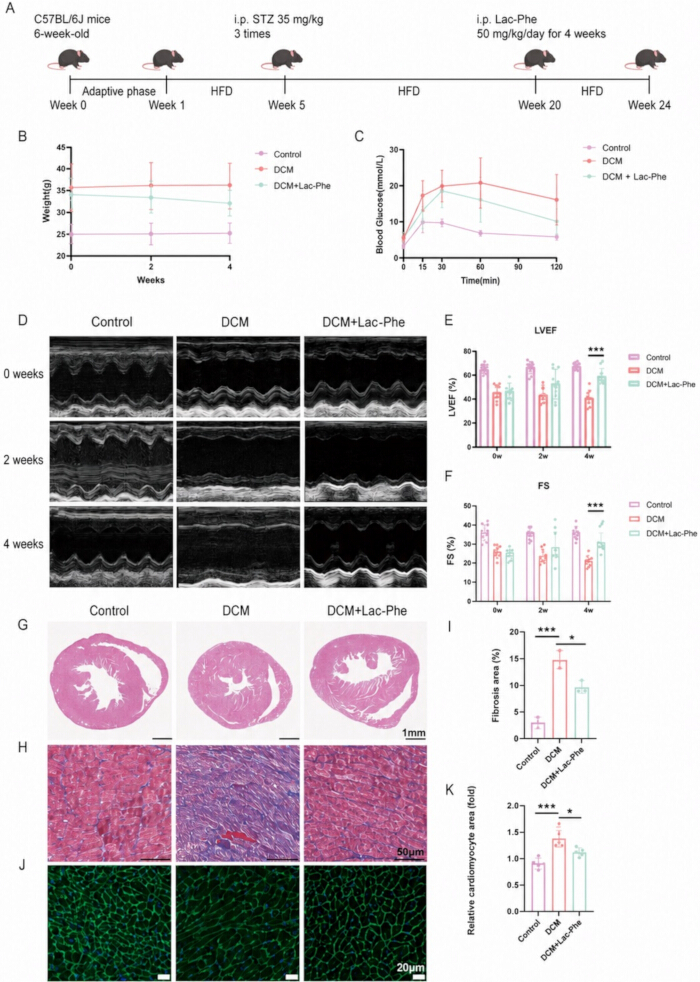
Figure 1. Lac-Phe improves cardiac function and pathological remodeling in mice with diabetic cardiomyopathy. (A) Schematic of the HFD/STZ-induced DCM mouse model and Lac-Phe treatment protocol. (B) Body weights of mice in the Control, DCM, and DCM + Lac-Phe groups during the 4-week treatment period; n = 10 per group. (C) Oral glucose tolerance test (OGTT) in the indicated groups; n = 10 per group. (D) Representative echocardiographic images at 0, 2, and 4 weeks of treatment. (E,F) Quantification of left ventricular ejection fraction (LVEF) (E) and fractional shortening (FS) (F); n = 10 per group. (G) Representative hematoxylin and eosin (H&E)-stained heart sections. Scale bar = 1 mm. (H,I) Representative Masson’s trichrome staining of heart sections (H) and quantification of fibrotic area (I); n = 3 per group. Scale bar = 50 μm. (J,K) Representative wheat germ agglutinin (WGA) staining of heart sections (J) and quantification of relative cardiomyocyte area (K); n = 3 per group. Scale bar = 20 μm. Data are presented as the mean ± standard deviation. P < 0.05, **P < 0.001. Please click here to view a larger version of this figure.
Cardiac function
Following anesthesia with isoflurane inhalation, mice were secured in a supine position on a temperature-controlled platform (37°C). Left ventricular dimensions and mitral valve blood flow velocity during diastole and systole were measured using an echocardiography machine equipped with a 40 MHz transducer, from which LVEF and shortening fraction (FS) were calculated. Three consecutive cardiac cycles were collected from each mouse.
Cell treatment
H9c2 cells were cultured in Dulbecco’s modified Eagle’s medium supplemented with 10% fetal bovine serum and 1% penicillin–streptomycin at 37°C in a humidified atmosphere containing 5% CO₂. Cells were passaged every 2–3 days upon reaching 70%–80% confluence. For experiments, cells were seeded in 10 cm dishes and then divided into three groups: Control, high glucose/palmitic acid (HG/PA), and HG/PA + Lac-Phe. Cells in the HG/PA and HG/PA + Lac-Phe groups were first exposed to 0.25 mM palmitic acid and 50 mM glucose for 24 h. Thereafter, cells in the HG/PA + Lac-Phe group were treated with 10 μg/mL Lac-Phe for an additional 24 h while HG/PA exposure was maintained; cells in the HG/PA group received an equivalent volume of PBS under the same HG/PA conditions. In the p-AMPK inhibition experiments, 10 μM AMPK-IN-3 (dissolved in DMSO) was added simultaneously with Lac-Phe for 24 h, and the corresponding control groups received an equal volume of DMSO. For the atorvastatin experiments, H9c2 cells under HG/PA conditions were treated with 10 μM atorvastatin for 24 h, either alone or in combination with 10 μg/mL Lac-Phe.
Histological staining
After 28 days of Lac-Phe administration, mouse hearts were harvested and immersion-fixed in 4% paraformaldehyde (pH 7.4) for 24 h. Fixed cardiac tissues were paraffin-embedded and sectioned into 6-μm-thick slices. Tissue sections were stained with hematoxylin and eosin, wheat germ agglutinin, and Masson’s trichrome. All staining procedures were performed strictly following the manufacturers’ protocols. Whole-slide imaging was performed at 20× magnification using a high-resolution brightfield microscope equipped with a digital camera system.
Western blot analysis
Protein concentration was determined using the Bradford assay. Tissue lysates were resolved by SDS-PAGE on 10% (w/v) acrylamide gels and electrophoretically transferred to polyvinylidene difluoride membranes. Nonspecific binding sites were blocked with 5% bovine serum albumin for 2 h at room temperature. Membranes were then incubated overnight at 4°C with primary antibodies (diluted 1:1,000), followed by six washes with TBST (5 min each) on a shaker. The membranes were then incubated with horseradish peroxidase-conjugated secondary antibodies (diluted 1:5,000) for 2 h at room temperature, followed by another six washes with TBST (5 min each). Protein bands were visualized using an enhanced chemiluminescence reagent kit. Quantification of western blot results was performed by densitometric analysis using ImageJ software. All antibodies used in this study are listed in the Table of Materials.
Transcriptomics
Total RNA was isolated from cardiac tissue of C57BL/6J mice using TRIzol Reagent and RNeasy mini kits. RNA quality was evaluated using a 2100 bioanalyzer, demonstrating high RNA purity and integrity. RNA-seq libraries were prepared according to the VAHTS Universal V10 RNA-seq Library Prep Kit and sequenced using an Illumina NovaSeq 6000 System (single-read, 150 bp). Differentially expressed genes were identified using DESeq2, with an adjusted P value < 0.05 and an absolute log₂ fold change > 1 considered statistically significant. Gene Ontology (GO) enrichment analysis was conducted on differentially expressed genes, and the significance of enrichment of differentially expressed genes in GO terms was calculated using the hypergeometric distribution algorithm.
Oil Red O staining and LD540 lipid staining
Cardiac tissue was embedded in OCT compound and then cut into 10-μm-thick sections. The frozen sections were equilibrated at room temperature for 30 min and fixed with 4% paraformaldehyde for 10 min. After washing with PBS, the sections were placed in 60% isopropyl alcohol for 15 s and covered with Oil Red O working solution for 30 min. The sections were then treated with 60% isopropyl alcohol for 15 s and washed three times with PBS. For LD540 lipid staining, H9c2 cells were washed with PBS and fixed with 4% paraformaldehyde for 10 min at room temperature. The cells were then incubated with 10 μM LD540 for 30 min at room temperature.
Transmission electron microscopy (TEM)
Fresh mouse heart tissues were cut into 1–2 mm3 pieces, fixed in electron microscope fixative at 4°C for 4 h, then washed with double-distilled water and immersed in ethanol solutions of progressively increasing concentrations. The samples were embedded, sectioned, and then observed under a transmission electron microscope.
Total cholesterol (TC) content
Total cholesterol (TC) levels in serum and H9c2 cell samples were measured using the Amplex Red Cholesterol and Cholesteryl Ester Assay Kit according to the manufacturer’s instructions.
Oral Glucose Tolerance Test (OGTT)
Mice were fasted for 14 h (from 19:00 to 9:00) and gavaged with glucose (20% stock, 2 g/kg). Blood glucose levels were determined using blood collected from the tail vein at 0, 15, 30, 60, and 120 min after gavage.
Cell counting kit-8 (CCK-8) measurement
CCK-8 was used to measure cell viability. H9c2 cells were seeded into 96-well plates at an initial density of 3 × 10⁴ cells/well. After treatment with different concentrations of Lac-Phe under HG/PA conditions for 24 h, 10 μL of the kit reagent was added to 100 μL of culture medium per well, followed by incubation at 37°C for 4 h. The absorbance was measured at 450 nm using a multimode microplate reader to obtain the optical density (OD) value.
Molecular docking
The crystal structures of Lac-Phe and AMPKα1 were downloaded from PubChem26. The molecular docking process was carried out using CB-DOCK227.
Statistical analysis
All echocardiographic measurements, histological staining, and image quantifications were performed by investigators blinded to group assignment. All data analyses were performed using Prism and SPSS 20.0. Each experiment was repeated at least three times, and the data were presented as the mean ± standard deviation. Homogeneity of variance was assessed using Levene’s test. Normality was confirmed by graphical inspection of residuals. Comparisons among multiple groups were conducted using one-way analysis of variance, followed by Tukey's post hoc test for pairwise comparisons. For OGTT data, two-way repeated-measures ANOVA was used, with group as the between-subjects factor and time as the within-subjects factor, followed by Bonferroni's post hoc test. P < 0.05 was considered statistically significant.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
Lac-Phe melhora a função cardíaca em camundongos com cardiomiopatia diabética
Induzimos DCM em camundongos C57BL/6J utilizando uma dieta rica em gordura combinada com injeções de STZ (Figura 1A) e atribuiu aleatoriamente os camundongos com DCM bem-sucedidos a um grupo não tratado (grupo DCM) e a um grupo tratado com Lac-Phe, utilizando camundongos C57BL/6J controle como controle negativo. De acordo com o estudo de Li et al.21
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
Neste estudo, apresentamos evidências que apoiam um efeito terapêutico do Lac-Phe na MCD. O Lac-Phe melhorou o remodelamento cardíaco e a disfunção cardíaca na MCD, ao mesmo tempo em que reduziu a produção de colesterol em cardiomiócitos e atenuou o desequilíbrio do metabolismo lipídico. Mecanicamente, o Lac-Phe aumentou a fosforilação de AMPKα1. Posteriormente, o aumento da fosforilação de AMPKα1 esteve associado ao aumento da fosforilação e inibição de seu alvo downstream HMGCR, levando à redução da síntese de colester...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Conflito de Interesse:
Os autores não têm nada a declarar.
Agradecimentos
Gostaríamos de expressar nossa sincera gratidão aos pesquisadores e funcionários do Hospital Clínico Colégio Nanjing Drum Tower e do Hospital Afiliado da Escola de Medicina da Universidade de Nanjing, pelo apoio técnico. Esta pesquisa foi financiada por concessões da Fundação Nacional de Ciências Naturais da China (Números de concessão 81870291 e 82300384), da Fundação Chinesa de Ciências Pós-Doutorais (Número de concessão 2023M731625) e da Fundação de Ciências Naturais da Província de Jiangsu (Número de concessão BK20220175). Agradecemos também os recursos e o apoio colaborativo fornecidos pelo Instituto de Síntese Avançada da Universidade de Tecnologia de Nanjing.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| AMPK-IN-3 (inibidor da p-AMPK) | MedChemExpress (MCE) | HY-132921 | Utilizado em 10 μM durante experimentos de inibição de AMPK para inibir a sinalização de AMPK em células tratadas com Lac-Phe. |
| Kit de Ensaios Amplex Red para Colesterol e Éster de Colesterol | Beyotime | S0211S | Utilizado para determinar os níveis totais de colesterol em amostras de soro e células H9c2. |
| Anti-AMPKα1 | Cell Signaling Technology | 2532; RRID: AB_330331 | Anticorpo primário utilizado para análise por western blot de AMPKα1. |
| Anti-GAPDH | Cell Signaling Technology | 5174; RRID: AB_10622025 | Anticorpo primário utilizado para análise por western blot de GAPDH. |
| Anti-HMGCR | Abcam | ab174830; RRID: AB_2749818 | Anticorpo primário utilizado para análise por western blot de HMGCR. |
| Anti-p-AMPKα1 (Thr172) | Cell Signaling Technology | 2535; RRID: AB_331250 | Anticorpo primário utilizado para análise por western blot de AMPK fosforiladaα1. |
| Anti-p-HMGCR (Ser872) | Abcam | ab124350 | Anticorpo primário utilizado para análise por western blot de HMGCR fosforilada. |
| anticorpo secundário anti-IgG de coelho conjugado à HRP | Cell Signaling Technology | 7074; RRID: AB_2099233 | Utilizado em diluição de 1:5.000 para detecção em blot de Western. |
| Anti-β-tubulina | Cell Signaling Technology | 2128; RRID: AB_823664 | Anticorpo primário utilizado para análise por western blot de β-tubulina |
| Atorvastatina | MedChemExpress (MCE) | HY-17379 | Utilizado isoladamente ou em combinação com Lac-Phe para avaliar os efeitos sobre o acúmulo de lipídios, níveis totais de colesterol e fosforilação de HMGCR em células H9c2 tratadas com HG/PA. |
| Albumina sérica bovina | Sigma-Aldrich | A7906 | Utilizado a 5% para bloquear a ligação inespecífica durante a análise por western blot. |
| reagente/kits de ensaio de Bradford | Thermo Fisher Scientific | 23200 | Utilizado para determinar a concentração de proteína antes da análise por western blot. |
| Camundongos C57BL/6J (5 semanas de idade, machos) | Centro de Pesquisa com Animais Modelo da Universidade de Nanquim | N/A | Utilizado para estabelecer o modelo murino de cardiomiopatia diabética induzida por dieta rica em gordura (HFD) e estreptozotocina (STZ). |
| Kit de Contagem de Células-8 (CCK-8) | Sharebio | SB-CCK8S | Utilizado para medir a viabilidade de células H9c2 após o tratamento. |
| Tampão citrato | Preparado internamente | N/A | Preparado em pH 4,5 e utilizado para dissolver STZ e como controle veicular correspondente. |
| Dieta controle (10% gordura, 20% proteína, 70% carboidrato) | Research Diets, Inc. | D12450J | Utilizado como dieta para os camundongos do grupo controle. |
| D-(+)-Glicose | Sigma-Aldrich | N/A | Utilizado para o tratamento de células HG/PA e para o teste de tolerância à glicose oral. |
| Dimetilsulfóxido (DMSO) | Sigma-Aldrich | D2650 | Utilizado como solvente para o AMPK-IN-3 e como controle veicular correspondente. |
| Dulbecco’s modificado de Eagle’meio s | Gibco, Thermo Fisher Scientific | 11965092 | Utilizado como meio de cultura basal para células H9c2. |
| Máquina de ecocardiografia com transdutor de 40 MHz | FUJIFILM VisualSonics | Vevo 3100 LT; transdutor de 40 MHz | Utilizado para medir as dimensões do ventrículo esquerdo e a velocidade do fluxo sanguíneo na válvula mitral e para derivar a FEVE e a SS. |
| Fixador para microscopia eletrônica | ServiceBio | G1102 | Utilizado para fixar tecido cardíaco fresco de camundongo para microscopia eletrônica de transmissão. |
| Etanol | Sigma-Aldrich | E7023 | Utilizado em concentrações progressivamente crescentes para desidratação durante o preparo de amostras para microscopia eletrônica de transmissão. |
| soro bovino fetal | Gibco, Thermo Fisher Scientific | 10099141 | Utilizado a 10% para suplementar o meio de cultura de células H9c2. |
| Linha celular H9c2 | Sunncell | RRID: CVCL_0286 | Utilizado como modelo celular cardíaco in vitro para experimentos de tratamento com HG/PA e Lac-Phe. |
| Coloração com hematoxilina e eosina | ServiceBio | G1005-1/2 | Utilizado para avaliação histológica de tecido cardíaco. |
| Dieta rica em gordura (60% de kcal provenientes de gordura) | Research Diets, Inc. | D12492 | Utilizado com STZ em baixa dose para estabelecer o modelo de camundongo de cardiomiopatia diabética. |
| Microscópio de campo claro de alta resolução | Leica | DM2500 | Utilizado para a imagem de lâmina inteira de tecido cardíaco corado em 20× ampliação |
| ImageJ | Institutos Nacionais de Saúde | N/A | Utilizado para a quantificação densitométrica dos resultados de western blot. |
| Isoflurano | Sigma-Aldrich | 792632 | Utilizado para anestesia durante ecocardiografia em camundongos. |
| álcool isopropílico | Sigma-Aldrich | I9516 | Utilizado a 60% durante a coloração com Óleo Vermelho O de cortes cardíacos congelados. |
| Corante lipídico LD540 | Beyotime | C2050S-1 | Utilizado em 10 μM para corar lipídios intracelulares. |
| Masson’coloração com tricrômio de Masson | ServiceBio | G1006 | Utilizado para coloração histológica de tecido cardíaco. |
| N-lactoil-fenilalanina (Lac-Phe) | MedChemExpress (MCE) | HY-146098 | Administrado a camundongos com miocardiopatia dilatada e utilizado para tratar células H9c2 expostas a glicose alta/ácido palmítico. |
| Solução de trabalho de Óleo Vermelho O | ServiceBio | G1015-100ML | Utilizado para corar lipídios em cortes congelados de tecido cardíaco. |
| Kit Omni-ECL de Quimioluminescência Eficiente | EpiZyme | SQ203L | Utilizado para a visualização quimioluminescente de bandas proteicas após o western blot. |
| Ácido palmítico | Sigma-Aldrich | P0500 | Utilizado a 0,25 mM com glicose alta para estabelecer o modelo de células H9c2 tratadas com HG/PA. |
| Paraformaldeído | Sigma-Aldrich | P6148 | Preparado como uma solução a 4% e utilizado para fixar tecido cardíaco e células antes de coloração histológica ou de lipídios. |
| Penicilina-estreptomicina | Gibco, Thermo Fisher Scientific | 15140122 | Utilizado a 1% no meio de cultura de células H9c2. |
| Salina tamponada com fosfato (PBS) | Gibco, Thermo Fisher Scientific | 10010023 | Utilizado para lavagem durante procedimentos de coloração e como veículo correspondente em experimentos de tratamento celular. |
| Prism | GraphPad Software | Versão 8.0 | Utilizado para análise estatística de dados experimentais. |
| membrana de transferência de PVDF, 0.45 μm | Thermo Fisher Scientific | 88518 | Utilizado para a transferência eletroforética de proteínas durante a análise de western blot. |
| RNeasy Mini Kit | QIAGEN | 74104 | Utilizado para o isolamento/purificação de RNA total de tecido cardíaco de camundongo. |
| Solução de cloreto de sódio, 0,9% (soro fisiológico) | Sigma-Aldrich | S8776 | Utilizado para dissolver Lac-Phe e como controle do veículo para camundongos Controle e DCM. |
| SPSS | IBM | Versão 20.0 | Utilizado para análise estatística de dados experimentais. |
| Streptozotocina (STZ) | Sigma-Aldrich | S0130 | Administrado com dieta rica em gordura (HFD) para estabelecer o modelo de camundongo de cardiomiopatia diabética. |
| Tampão TBS Tween-20 (20×) | Thermo Fisher Scientific | 28360 | Utilizado para lavar membranas após a incubação com anticorpos primário e secundário durante a análise de western blot. |
| Tissue-Tek O.C.T. Compound | Sakura Finetek | 4583 | Utilizado para embutir tecido cardíaco antes do preparo de cortes congelados para coloração com Óleo Vermelho O. |
| Microscópio eletrônico de transmissão | HITACHI | HT7800 | Utilizado para examinar alterações ultraestruturais no tecido cardíaco de camundongos. |
| Reagente TRIzol | Invitrogen | 15596026 | Utilizado para o isolamento de RNA total de tecido cardíaco de camundongo. |
| Kit VAHTS Universal V10 de Preparação de Biblioteca para RNA-seq | Vazyme | NR616-01 | Utilizado para preparar bibliotecas de RNA-seq para análise transcriptômica. |
| Lectina de germe de trigo (WGA) | ServiceBio | W7024 | Utilizado para avaliação histológica de tecido cardíaco. |
Referências
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve