A infecção por nematoides reniformes reduz significativamente a produtividade do algodoeiro e a qualidade da fibra. A lignina fortalece as paredes celulares das plantas e contribui para as defesas estruturais contra pragas, mas seu papel na resistência ao nematoide reniforme em algodoeiro ainda não foi examinado. Este estudo descreve um fluxo de trabalho histoquímico para visualizar a deposição de lignina em raízes de genótipos de algodoeiro (Gossypium arboreum) resistentes e suscetíveis ao nematoide reniforme, utilizando coloração com floroglucinol.
Artigo de investigação
Análise Histoquímica de Diferenças de Lignina Entre Genótipos de Algodoeiro Resistentes e Suscetíveis a Nematoides Reniformes
Neste artigo
Resumo
Resumo
Nematoides reniformes (Rotylenchulus reniformis) são uma limitação importante para a produção de algodão, especialmente no sul dos Estados Unidos. O nematoide reniforme é a segunda praga mais importante entre mais de 400 espécies de nematoides. Esses nematoides representam uma ameaça à segurança alimentar global. A crescente preocupação com o meio ambiente e a saúde humana, além do custo dos nematicidas, intensificou o interesse por germoplasma de algodoeiro resistente. A parede celular vegetal, especialmente a lignina, é um biopolímero crítico envolvido na resistência ao estresse biótico. Como os nematoides infectam os tecidos radiculares, componentes da parede celular, como a lignina, podem contribuir para a defesa; no entanto, as barreiras mediadas por lignina nas raízes do algodoeiro ainda não são bem caracterizadas. Este estudo utilizou um protocolo histoquímico padronizado de coloração com ácido floroglucinol-HCl para visualizar as diferenças no depósito de lignina em genótipos de algodoeiro resistentes (A2-514, A2-995) e suscetíveis (Gossypium arboreum) no estágio de folha verdadeira, sob condições não infectadas. Esta coloração liga-se especificamente a hidróxi-cinamaldeídos, como o aldeído conifílico e o aldeído sinapílico da lignina, na presença de ácido, gerando uma coloração roxo-acinzentada para visualizar a lignina. Padrões distintos de coloração da lignina foram observados entre genótipos resistentes e suscetíveis, apoiando um possível papel das defesas estruturais associadas à lignina.
Introdução
O algodoeiro é cultivado em todo o mundo por sua fibra e é altamente vulnerável a pragas do solo, especialmente nematoides, que podem causar perdas substanciais na produtividade. Dentre esses, o nematoide reniforme (Rotylenchulus reniformis) é um patógeno importante que afeta o algodoeiro e outras culturas globalmente, com impactos acentuados no sul dos Estados Unidos, onde infestações podem reduzir as produtividades em mais de 50%1. Esse organismo microscópico, que habita o solo, parasita as raízes do algodoeiro2, prejudicando a vigorosidade da planta, a biomassa e o rendimento da fibra por meio da interrupção da absorção de água e nutrientes e do estabelecimento de sítios de alimentação (Figura 1). A infecção pelo nematoide reniforme altera o crescimento da planta de algodoeiro, atrasando o florescimento, reduzindo o tamanho e o número de capulhos e comprometendo a qualidade da fibra3. Perdas severas já foram relatadas no Mississippi, Alabama e Louisiana4. Nematicidas são comumente utilizados para controlar infestações de nematoides, mas seu alto custo e impacto negativo sobre o meio ambiente e a saúde humana têm exigido a busca por alternativas5,6. O desenvolvimento de germoplasma resistente representa uma abordagem promissora para mitigar os danos causados pelo nematoide reniforme4. Como os nematoides se alimentam dentro dos tecidos radiculares, defende-se que as defesas baseadas na parede celular, particularmente a lignificação, possam restringir a invasão, inibir enzimas degradadoras da parede celular derivadas do patógeno e limitar o estabelecimento e expansão dos sítios de alimentação dos nematoides7,8,9. A lignificação aumentada tem sido correlacionada com menor suscetibilidade a patógenos em diversas espécies vegetais10,11,12,13,14. Pesquisas anteriores no algodoeiro associaram a expressão de genes da lignina e da lacase à resistência contra Verticillium dahliae15, e estudos em cultivares resistentes e suscetíveis ao Fusarium revelaram níveis mais elevados de lignina em cultivares resistentes16. Observações semelhantes em Arabidopsis e arroz, nas quais a supressão de genes biossintéticos da lignina aumentou a suscetibilidade, reforçam a importância da lignificação na defesa vegetal.
A lignina é um biopolímero fenólico complexo encontrado nas paredes celulares secundárias de plantas vasculares, onde confere rigidez estrutural, resistência mecânica e hidrofobicidade17. Sintetizada por meio das vias do shikimato e do fenilpropanoide, a lignina é o segundo biopolímero terrestre mais abundante após a celulose, representando aproximadamente 30% do carbono orgânico da Terra18,19. Ao reforçar a rede celulose-hemicelulose, a lignina fortalece tecidos de sustentação e apoia o desenvolvimento geral da planta. A lignina é especialmente proeminente em tecidos altamente especializados, como xilema, esclerênquima, fibras do floema e periderme, formando uma barreira hidrofóbica essencial para o transporte eficiente de água e minerais. Além das funções estruturais, a lignina atua como uma barreira de defesa bioquímica e física, restringindo a entrada de patógenos e minimizando danos causados por estresses bióticos e abióticos20,21,22. A lignificação é um processo dinâmico central na resistência contra um amplo espectro de patógenos, incluindo necrótrofos, biótrofos e hemibiótrofos. Sua biossíntese a partir dos monolignóis primários álcool sinapílico, álcool coniférlico e álcool p-cumarálico varia conforme a espécie, o tipo de tecido e o estágio de desenvolvimento, influenciando o grau de resistência. A invasão por patógenos ou estresse abiótico frequentemente desencadeia a deposição localizada de lignina, reforçando ainda mais as defesas da planta23,24.
Elucidar o papel da lignina na resistência ao nematoide renífero é fundamental para o avanço das estratégias de manejo do algodoeiro. A caracterização visual e bioquímica da distribuição da lignina oferece insights sobre a dinâmica espacial e temporal das modificações na parede celular que sustentam as respostas defensivas iniciais. Este estudo utiliza coloração histoquímica com floroglucinol para analisar os padrões de deposição de lignina que ocorrem naturalmente em genótipos de algodoeiro resistentes e suscetíveis ao nematoide renífero, fornecendo uma estrutura preliminar prática para avaliar características de resistência associadas à parede celular e orientar programas de melhoramento visando aumentar a resiliência da cultura.
Protocolo
Os experimentos foram realizados em uma estufa utilizando os materiais vegetais descritos abaixo. Todos os produtos químicos, equipamentos e reagentes utilizados neste estudo estão detalhados na Tabela de Materiais.
Material vegetal
Sementes foram obtidas tanto para germoplasma suscetível (A2‑20, PI 129742; A2‑40, PI 183202) quanto para o resistente (A2‑514, PI 616008; A2‑995, PI 629323). Adicionalmente, o cultivar suscetível Deltapine 16 foi incluído neste estudo. As sementes foram colocadas em água estéril e embebidas por 24 h à temperatura ambiente. Após a imersão, as sementes foram lavadas cuidadosamente com água estéril fresca para remover contaminantes residuais. As sementes lavadas foram então transferidas para placas de Petri estéreis forradas com toalhas de papel pré-umedecidas e autoclavadas e incubadas por 2 dias à temperatura ambiente para facilitar a germinação (Figura 2).
Plantio em estufa
Vasos plásticos foram preenchidos com uma mistura de substrato para vasos com controle de umidade previamente umedecida. O solo foi pré-umedecido por dois dias antes do transplante. Plântulas germinadas foram então cuidadosamente transplantadas para o solo pré-umedecido e mantidas em condições controladas de estufa a 28 °C/25 °C em ciclos dia/noite até o estágio de folhas verdadeiras (Figura 2). Três repetições biológicas foram plantadas para cada genótipo.
Coleta de amostras
Plantas na fase de folhas verdadeiras foram cuidadosamente removidas do solo ao afrouxar o meio de solo ao redor, a fim de minimizar danos às raízes. As raízes foram lavadas 2–3 vezes com água para remover partículas de solo aderidas. Tecidos de raiz e parte aérea de cada genótipo foram coletados para seccionamento (Figura 3).
Preparação da solução corante de floroglucinol
Uma solução a 3% de floroglucinol foi preparada dissolvendo 0,45 g de floroglucinol em uma mistura de duas partes de etanol a 100% (10 mL) e uma parte de HCl concentrado (5 mL) em uma capela. A solução corante foi preparada seguindo um método descrito anteriormente16.
Preparação de cortes e procedimento de coloração para análise histoquímica da lignina
Os tecidos radicular e caulinar foram seccionados usando uma lâmina de barbear estéril para obter cortes transversais finos (Figura 3). Cortes frescos foram transferidos para lâminas de microscopia e cobertos com 20 µL da solução corante de floroglucinol a 3% durante 1 minuto. Em seguida, os cortes foram lavados com água estéril, montados sob lamínulas e fotografados (Figura 4, Figura 5, Figura 6). O mesmo procedimento foi utilizado para os tecidos do caule (Figura Suplementar 1).
Imagem por microscopia
A imagem foi obtida utilizando um microscópio digital. Lâminas de vidro preparadas contendo amostras de tecido coradas foram colocadas sobre a plataforma do microscópio para a aquisição de imagens. Após a inicialização do software de imagem do microscópio, as ampliações desejadas de 100x, 200x e 300x foram selecionadas no modo de campo claro. Ajustes de foco grosso e fino foram realizados para visualizar claramente os padrões de coloração da lignina nas seções de tecido. As imagens foram registradas e salvas com seus respectivos números de identificação das amostras. Em seguida, foi realizada uma análise comparativa examinando imagens de genótipos resistentes e suscetíveis para avaliar as diferenças na coloração da lignina. Imagens de genótipos resistentes e suscetíveis foram comparadas utilizando o ImageJ para determinar as diferenças na porcentagem da área corada, usando limiares uniformes. Os resultados foram exportados como arquivos CSV após o processamento das três réplicas. Gráficos foram então elaborados para comparar os genótipos resistentes e suscetíveis.
Resultados
Análise histoquímica de genótipos de algodoeiro resistentes e suscetíveis
O exame histoquímico de seções transversais de raiz e caule no estágio da folha verdadeira revelou diferenças visuais entre genótipos resistentes e suscetíveis, conforme demonstrado na Figura 4, Figura 5 e Figura Suplementar 1 (seções transversais de caule). Ampliações maiores (100x–300x) permitiram visualizações detalhadas dessas diferenças (Figura 4A–C e Figura 5A–C para genótipos resistentes e Figura 4D–F e Figura 5D–F para genótipos suscetíveis). Os padrões de coloração da lignina diferiram conforme os tipos de tecido: os genótipos resistentes exibiram padrões de coloração de lignina menores ou semelhantes nos caules, enquanto os genótipos suscetíveis apresentaram visualmente uma lignificação relativamente maior no caule (Supplementary Figure 1A–D).
Análise quantitativa de imagens da coloração da lignina
Deltapine 16, um cultivar suscetível incluído neste estudo, exibiu menor coloração de lignina (Figura 6A–C) com valores percentuais de área colorida de 12, 17,8 e 16,3 (Figura 6D). O genótipo suscetível A2-40 apresentou valores percentuais de área colorida de 25,2, 19,9 e 28,75, enquanto o genótipo resistente, A2-995, mostrou valores percentuais de área colorida de 54,95, 58,71 e 69,85 (Figura 7). No entanto, A2-20 apresentou valores percentuais de área colorida de 16,6, 21,3 e 20,4, enquanto A2-514 mostrou valores percentuais de área colorida de 49,8, 34,1 e 43,38 (Figura 8). A comparação resultou em um valor de p de 0,06. Como esses valores foram gerados utilizando diferentes limiares, foi realizada uma análise no ImageJ com limiar uniforme, utilizando limiares idênticos de matiz, saturação e brilho para garantir a reprodutibilidade entre as réplicas. O genótipo resistente (A2-514) apresentou coloração relativamente maior do que o genótipo suscetível (A2-20). A porcentagem de área colorida foi calculada como a razão entre os pixels positivos para lignina e o total de pixels do tecido na seção. A comparação quantitativa com limiar uniforme entre o genótipo suscetível A2-20 e o genótipo resistente A2-514 é apresentada na Figura 9. No geral, a análise com limiar uniforme demonstra que existem diferenças específicas de genótipo na lignificação entre esses genótipos.
DISPONIBILIDADE DE DADOS:
Os dados brutos são adicionados como um Arquivo Suplementar.
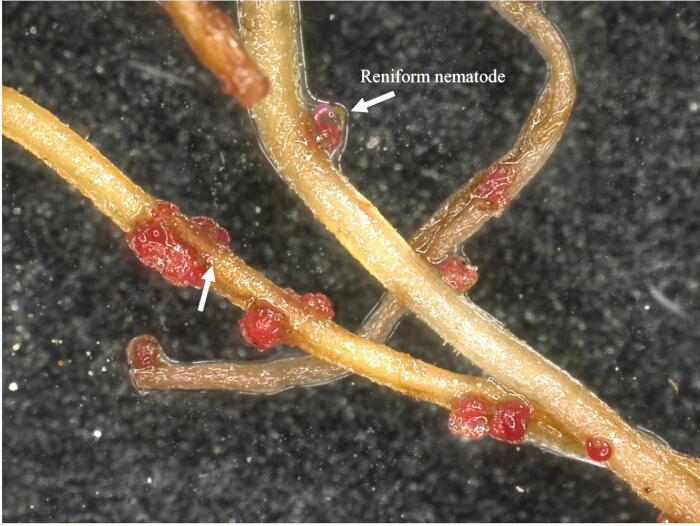
Figura 1: Vista microscópica de nematoides reniformes se alimentando de raízes de algodoeiro. Nematoides reniformes se alimentando de raízes de algodoeiro são mostrados com aumento de 50x após coloração com corante alimentar vermelho. Clique aqui para visualizar uma versão maior desta figura.
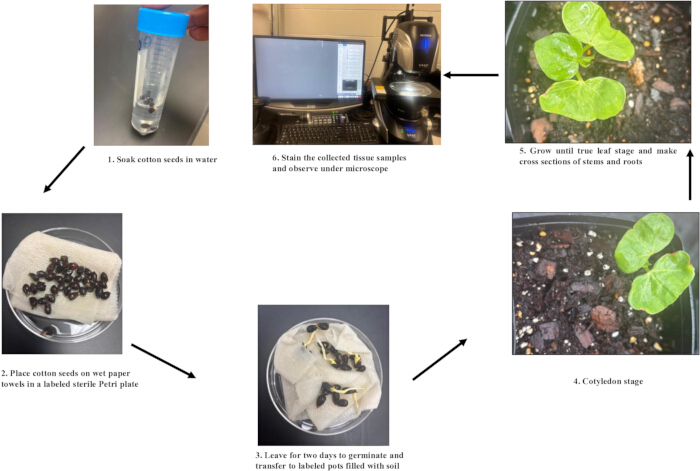
Figura 2: Preparação do material vegetal para análise histoquímica da lignina. O fluxo de trabalho consiste nas seguintes etapas: (1) embeber sementes de algodão em água; (2) colocar as sementes sobre toalhas de papel úmidas em uma placa de Petri estéril rotulada; (3) permitir a germinação das sementes por 2 dias e transferir as plântulas para vasos rotulados contendo solo; (4) cultivar as plântulas até o estágio de cotilédone; (5) continuar o cultivo das plantas até o estágio de folhas verdadeiras e preparar seções transversais dos caules e raízes; e (6) corar as seções de tecido coletadas e observá-las ao microscópio. Clique aqui para visualizar uma versão maior desta figura.
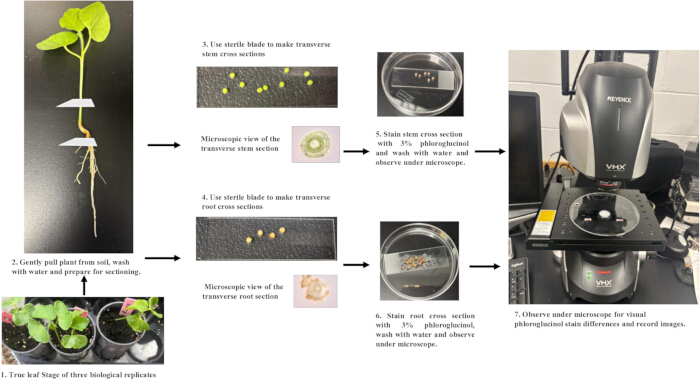
Figura 3: Coleta e coloração de seções de raiz e caule de algodoeiro utilizando ácido floroglucinólico-HCl. O fluxo de trabalho consiste nas seguintes etapas: (1) cultivar três repetições biológicas até o estágio de folhas verdadeiras; (2) remover cuidadosamente as plantas do solo, lavar com água e prepará-las para o corte em seções; (3) utilizar uma lâmina estéril para preparar seções transversais do caule; (4) utilizar uma lâmina estéril para preparar seções transversais da raiz; (5) colorir as seções do caule com ácido floroglucinólico-HCl a 3%, enxaguar com água e observar ao microscópio; (6) colorir as seções da raiz com ácido floroglucinólico-HCl a 3%, enxaguar com água e observar ao microscópio; e (7) observar as seções coradas ao microscópio para visualizar as diferenças na coloração com floroglucinol e registrar as imagens. Clique aqui para visualizar uma versão maior desta figura.
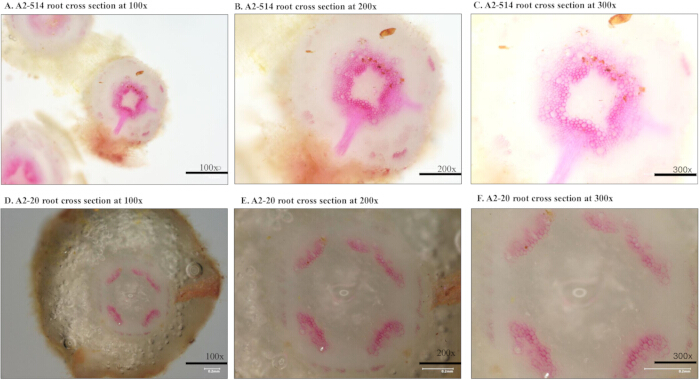
Figura 4: Coloração de lignina em seções transversais de raízes dos genótipos de algodão A2-514 e A2-20. Seções transversais de raízes coradas para lignina do genótipo resistente A2-514 em aumento de (A) 100x, (B) 200x e (C) 300x. Seções transversais de raízes coradas para lignina do genótipo suscetível A2–20 em aumento de (D) 100x, (E) 200x e (F) 300x. Clique aqui para visualizar uma versão maior desta figura.
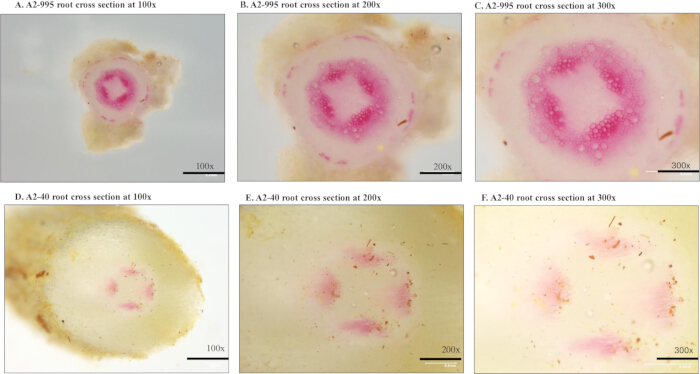
Figura 5: Coloração da lignina em seções transversais de raízes dos genótipos de algodão A2-995 e A2-40. Seções transversais de raízes coradas para lignina do genótipo resistente A2-995 em aumento de (A) 100x, (B) 200x e (C) 300x. Seções transversais de raízes coradas para lignina do genótipo suscetível A2-40 em aumento de (D) 100x, (E) 200x e (F) 300x. Clique aqui para visualizar uma versão maior desta figura.
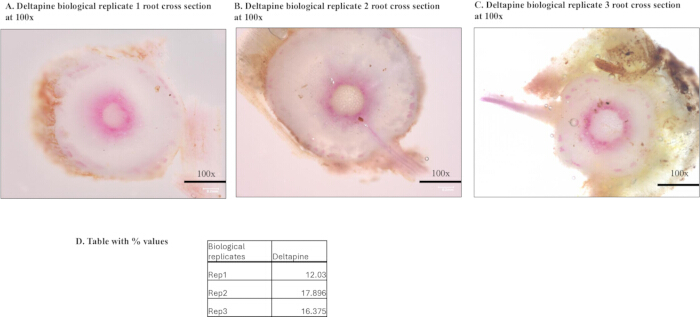
Figura 6: Coloração da lignina e análise quantitativa de seções transversais de raiz de Deltapine 16. Seções transversais de raiz coradas para lignina de três repetições biológicas do cultivar suscetível Deltapine 16 em aumento de 100x: (A) repetição biológica 1, (B) repetição biológica 2 e (C) repetição biológica 3. (D) Porcentagem de área corada para as três repetições biológicas determinada por análise quantitativa com ImageJ. Clique aqui para visualizar uma versão maior desta figura.
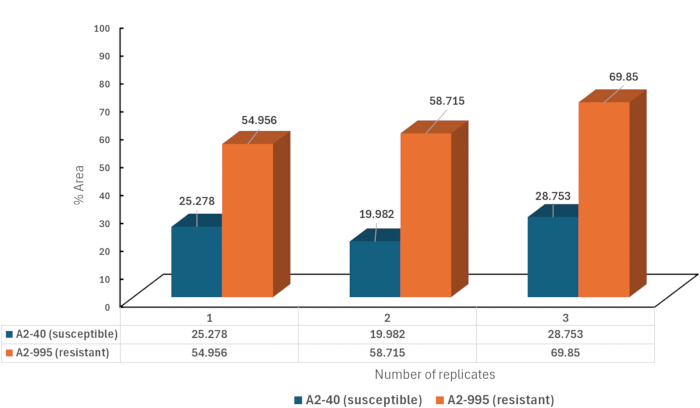
Figura 7: Análise quantitativa da coloração da lignina nos genótipos de algodão A2-40 e A2-995. Área colorida em porcentagem determinada pela análise com o ImageJ para três repetições biológicas do genótipo suscetível A2-40 e do genótipo resistente A2-995. Clique aqui para visualizar uma versão maior desta figura.
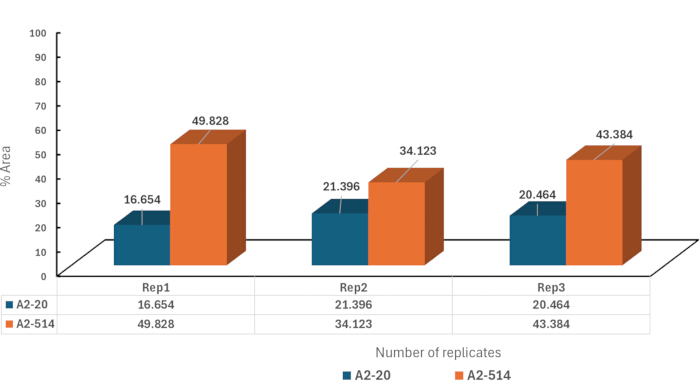
Figura 8: Análise quantitativa da coloração da lignina nos genótipos de algodão A2-20 e A2-514. Área colorida em porcentagem determinada pela análise com o ImageJ para três repetições biológicas do genótipo suscetível A2-20 e do genótipo resistente A2-514. Clique aqui para visualizar uma versão maior desta figura.
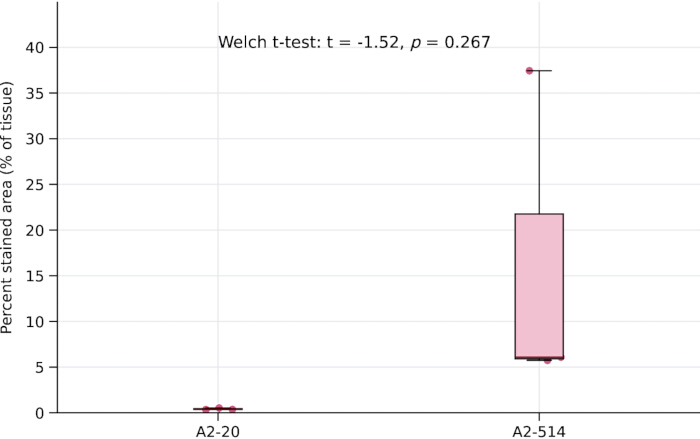
Figura 9: Quantificação com limiar uniforme da coloração da lignina em genótipos de algodão A2-20 e A2-514. Porcentagem de área colorida no genótipo suscetível A2-20 e no genótipo resistente A2-514 após análise de imagem com limiar uniforme. A comparação estatística foi realizada utilizando o teste t de Welch (t = −1,52, p = 0,267). Clique aqui para visualizar uma versão maior desta figura.
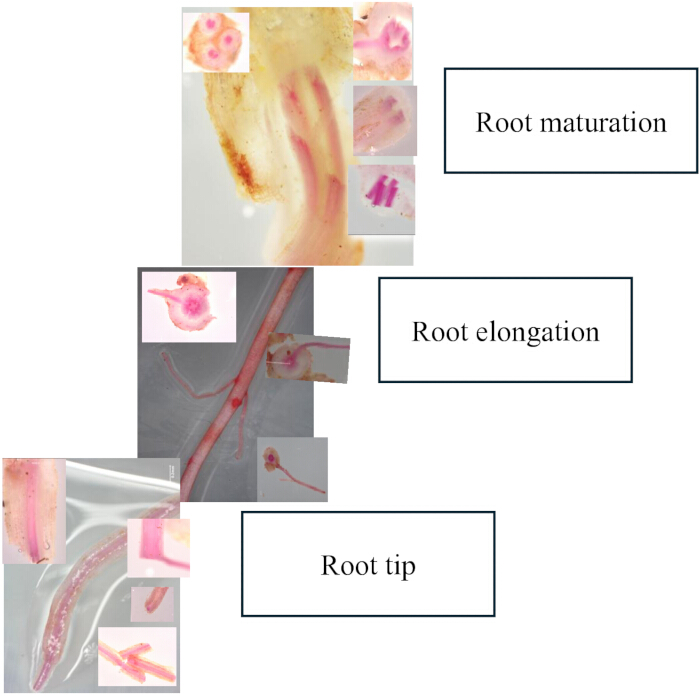
Figura 10: Visualização da coloração da lignina em diferentes regiões da raiz. Imagens representativas mostrando a coloração da lignina nas regiões de maturação da raiz, alongamento da raiz e ápice radicular. Clique aqui para visualizar uma versão maior desta figura.
Figura Suplementar 1: Coloração da lignina em seções transversais do caule de genótipos de algodoeiro resistentes e suscetíveis. Seções transversais do caule coradas para lignina em aumento de 100x de (A) A2-20 suscetível, (B) A2-514 resistente, (C) A2-40 suscetível e (D) A2-995 resistente. Clique aqui para baixar este arquivo.
Discussão
A lignina associada às paredes celulares das plantas atua como uma barreira física importante contra pragas, incluindo nematoides. No presente estudo, genótipos de algodoeiro resistentes e suscetíveis exibiram diferenças visuais distintas na coloração da lignina, seguindo um padrão semelhante ao previamente relatado em cultivares resistentes e suscetíveis ao Fusarium. A coloração permitiu a visualização clara da distribuição da lignina nas regiões radiculares — maturação, alongamento e ápice radicular — onde a intensidade da lignina aumentou progressivamente da parte superior da raiz em direção ao ápice (Figura 10). Embora esses padrões forneçam informações anatômicas úteis, a dinâmica da lignina em resposta à infecção por nematoide não foi avaliada no presente estudo e requer confirmação em pesquisas futuras. Estudos anteriores sugerem que a presença do patógeno pode induzir a biossíntese de lignina, reforçando a necessidade de examinar alterações na lignina sob pressão de nematoides. A incorporação de análises bioquímicas da quantidade e composição da lignina fortaleceria ainda mais a interpretação dos padrões de coloração observados nesses genótipos. De modo geral, esses resultados destacam o papel das defesas estruturais mediadas pela lignina na resistência do algodoeiro ao nematoide reniforme e demonstram a utilidade da coloração com floroglucinol para caracterizar essas características. A integração contínua de abordagens anatômicas, bioquímicas e moleculares aprofundará a compreensão da biossíntese da lignina e sua contribuição para o desenvolvimento de resistência durável aos nematoides reniformes.
Divulgações
Os autores não têm nada a declarar.
AVISOS
O USDA é um fornecedor, empregador e credor que garante igualdade de oportunidades. A menção a nomes comerciais ou produtos comerciais nesta publicação tem como finalidade exclusiva fornecer informações específicas e não implica recomendação ou endosso pelo Departamento de Agricultura dos Estados Unidos. As descobertas e conclusões deste artigo são de responsabilidade do(s) autor(es) e não devem ser interpretadas como representando qualquer determinação ou política oficial do USDA ou do Governo dos Estados Unidos.
Agradecimentos
Os autores agradecem à Dra. Katherine Parys pelo acesso concedido às instalações do laboratório de microscopia utilizadas neste estudo. Os autores também agradecem ao Dr. Junping Chen e ao Dr. Abdulraheem pelas sugestões e assistência na melhoria do manuscrito. Esta pesquisa foi apoiada pelo projeto USDA-ARS 6066-21000-053-00D.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Mistura de substrato para controle de umidade | Miracle-Gro | 073561005197 032247557832 | Amazon web site |
| Microscópio | Keyence VHX | VHX3000 | Pode ser usado qualquer microscópio de campo claro comparável |
| Lâminas de barbear estéreis | Workpro | W018057 | Amazon web site |
| Tábua de corte | Freshware | 15.75"L x 9.8"W x 0.3"Th | Amazon web site |
| Lâminas e lamínulas | Amscope | BS-50P-100S-22X4 | Qualquer marca pode ser utilizada. Esta está disponível na Amazon. |
| Água estéril/Água destilada/Água autoclavada | Gibco | 15230147 | Pode ser usada qualquer marca de água estéril autoclavada |
| Corante floglucinol | Fischer Scientific | AC241761000 | Disponível na Fischer Scientific |
| HCl concentrado | Fischer Scientific | CAS: 7647-01-0 | Disponível na Fischer Scientific |
| Etanol absoluto | Fischer Scientific | 64-17-5 | Disponível na Fischer Scientific |
| Vasos | BTPLASTIK | B0DSBQMXHN | Qualquer vaso plástico pode ser usado, disponível na Amazon |
| Placas de Petri | Kingdder | B0BS95MCGS | Disponível na Amazon e qualquer outra marca pode ser utilizada |
| Papel-toalha | Tork | MB540A | Disponível na Amazon e qualquer outra marca pode ser utilizada |
| Image J | Software | Available online | Software gratuito disponível para uso |
Referências
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.