Aqui, descrevemos uma abordagem para produzir embriões geneticamente modificados utilizando edição gênica CRISPR-Cas9 e transferência nuclear de células somáticas para gerar modelos ovinos de doenças humanas. Essa abordagem é ideal para edição gênica precisa em células doadoras e para produzir embriões clonados sem mosaicismo genético.
É necessária uma assinatura do JoVE para visualizar este conteúdo. Faça login ou inicie seu teste gratuito.
Artigo de método
Geração de Embriões Geneticamente Modificados Utilizando Edição Gênica e Transferência Nuclear de Células Somáticas para a Produção de Modelos Ovinos de Doenças Humanas
Neste artigo
Resumo
Resumo
Modelos animais de grande porte são ferramentas valiosas para investigar doenças humanas. Ovinos, suínos e caprinos frequentemente reproduzem com maior fidelidade a anatomia e fisiologia dos órgãos humanos e a complexidade das doenças humanas, aumentando assim sua relevância clínica em comparação com roedores. O sistema CRISPR-Cas9 e a transferência nuclear de células somáticas (SCNT) permitem a geração de modelos animais de grande porte com maior precisão, versatilidade e uniformidade genética. A principal vantagem dessa abordagem, em comparação com a microinjeção em zigotos, é a possibilidade de confirmar in vitro se a modificação genética desejada e eventuais mutações fora do alvo estão presentes nas células editadas antes da produção do animal. Além disso, a SCNT elimina a possibilidade de mosaicismo genético, que frequentemente ocorre após microinjeção em zigotos. Aqui, descrevemos a geração de células ovinas com edição gênica por meio da junção não homóloga de extremidades (NHEJ) e do reparo direcionado por homologia (HDR), seguida pela produção de embriões clonados portadores das mutações de interesse. As modificações genéticas são introduzidas por meio da transfeção de células somáticas cultivadas, tipicamente fibroblastos fetais, com o sistema CRISPR-Cas9. A eficiência de mutação em células agrupadas é avaliada por reação em cadeia da polimerase (PCR) e sequenciamento de Sanger dos genes editados, e analisada utilizando o software Tracking of Indels by DEcomposition (TIDE)/Tracking of Insertions, Deletions, and Recombination events (TIDER). É realizada diluição limitante das células agrupadas para obter colônias derivadas de célula única, que são triadas por PCR e sequenciamento de DNA dos genes editados. Células doadoras com a(s) edição(ões) de interesse são posteriormente expandidas e utilizadas para a geração de embriões por meio de SCNT. Após diluição limitante e triagem celular, 22/114 (19,3%) das colônias modificadas por NHEJ continham mutações de inativação (KO) e 4/56 (7,1%) das colônias modificadas com HDR continham a mutação F508del. Um total de 370 embriões geneticamente modificados foram criados a partir de quatro colônias. Esses métodos são utilizados com sucesso para edição gênica precisa em fibroblastos fetais e para a geração de embriões geneticamente modificados destinados à produção de modelos ovinos de doenças humanas.
Introdução
Modelos animais são ferramentas essenciais para compreender os mecanismos biológicos das doenças humanas e para o desenvolvimento de novos tratamentos terapêuticos. Modelos in vitro, como culturas celulares ou de organoides, não reproduzem a complexidade dos subtipos celulares e das interações célula-célula que ocorrem in vivo nos órgãos1,2. Assim, os animais fornecem modelos de organismo inteiro com maior detalhamento das interações em nível celular e sistêmico, da progressão da doença e da segurança de terapêuticas. Roedores são organismos modelo práticos devido ao seu baixo custo, tempo de geração curto e caracterização genética abrangente. No entanto, os modelos de roedores para doenças humanas são limitados por diferenças fisiológicas e anatômicas em relação aos humanos, bem como por seu metabolismo mais rápido e vida útil mais curta3,4. Isso é evidenciado pela alta proporção de terapias testadas em modelos animais que falham em ensaios clínicos, a maioria dos quais utiliza roedores5,6,7,8. Ovelhas, porcos, cabras, cães e primatas não humanos têm sido utilizados para produzir modelos para uma grande variedade de doenças humanas, o que pode ajudar a aumentar a taxa de tradução clínica de novas terapias e medicamentos3,9,10,11,12. Essas espécies também oferecem muitas vantagens em comparação com modelos de roedores devido à sua maior semelhança com os humanos. Assim, modelos de animais grandes para doenças humanas fornecem os modelos mais precisos disponíveis e desempenham um papel fundamental na tradução de estudos em animais para aplicações clínicas.
Repetições palindrômicas curtas e regularmente agrupadas (CRISPR)-Cas9 é um método versátil e programável para modificação genética de células animais e introdução de mutações precisas causadoras de doenças. A edição gênica mediada por CRISPR-Cas9 emprega um RNA guia (gRNA) complementar ao sítio alvo, permitindo que a proteína associada ao CRISPR 9 (Cas9) produza uma quebra em dupla fita (DSB) de maneira direcionada13. A reparação celular de DSBs ocorre principalmente por dois mecanismos: junção não homóloga de extremidades (NHEJ) e reparação direcionada por homologia (HDR). A via NHEJ repara uma DSB ligando as extremidades do DNA, um mecanismo propenso a erros que pode resultar na formação de inserções ou deleções aleatórias (indels) no local da quebra14. Essas mutações podem interromper (KO) o gene criando uma mutação de quadro de leitura ou um códon de parada prematuro, o que prejudica a função do gene. A HDR, que ocorre principalmente nas fases S e G2 do ciclo celular, acontece quando a célula repara uma DSB utilizando um alelo homólogo como molde de reparo15,16. A incorporação de inserções, deleções ou substituições específicas, conhecidas como knock-ins (KI), é possível mediante a introdução de um oligodesoxinucleotídeo monocatenário sintético (ssODN) ou outro DNA molde contendo a edição desejada, que a célula pode usar para reparar a quebra. O CRISPR-Cas9 também pode ser usado para edição multiplexada, permitindo a introdução simultânea de múltiplas mutações para modelar doenças multigênicas3. Em comparação com técnicas anteriores de edição gênica, como nucleases de dedo de zinco (ZFNs) ou nucleases efetoras semelhantes a ativadores de transcrição (TALENs), o CRISPR-Cas9 é muito mais simples e eficiente em termos de recursos para uso em células de animais grandes17. Diferentes locos podem ser direcionados facilmente projetando um novo gRNA, o que tem ajudado a acelerar a criação de novos modelos animais grandes usando CRISPR-Cas93,13. No entanto, várias limitações ainda permanecem, incluindo a eficiência de edição do CRISPR-Cas9, que pode variar consideravelmente dependendo da espécie, do ambiente celular e da natureza da edição18,19. As taxas de HDR, em particular, são menores do que as de NHEJ e dependem fortemente do tipo celular, dos locos genômicos e da fase do ciclo celular20,21. Além disso, a introdução de edições não intencionais em locos fora do alvo, ou mesmo em locos-alvo, ainda é um problema22. Apesar disso, o CRISPR-Cas9 tornou-se a principal plataforma de edição gênica para a produção de modelos animais grandes geneticamente modificados.
A transferência nuclear de células somáticas (SCNT) facilita a criação de embriões geneticamente modificados com alta precisão e homogeneidade. Esse processo, realizado com sucesso pela primeira vez em mamíferos em 1997, envolve a transferência de um núcleo celular para um ovócito enucleado23. A SCNT possui diversas vantagens em comparação com outras técnicas, como a microinjeção em zigoto, na qual material genético ou sistemas de edição de DNA são injetados diretamente no zigoto ou embrião inicial24,25,26. A microinjeção em zigoto apresenta o risco inerente de heterogeneidade genética, ou mosaicismo, entre as células do embrião, o que pode ocorrer se a replicação do DNA ou a divisão celular acontecerem antes da modificação genética27,28,29. O valor desses embriões mosaicados como modelos animais é reduzido devido à dificuldade de genotipagem e caracterização fenotípica29. Na SCNT, a edição gênica é desacoplada da produção do embrião; cada embrião clonado é derivado de uma única célula, eliminando o risco de mosaicismo e garantindo que o embrião seja geneticamente homogêneo30,31,32. Além disso, as células doadoras são editadas e cuidadosamente selecionadas in vitro para confirmar a clonalidade e a presença da modificação desejada antes do procedimento de SCNT, economizando tempo e recursos25,26. Isso é especialmente importante ao introduzir inserções específicas (KIs). A seleção celular também permite identificar mutações potenciais em sítios fora do alvo, reduzindo assim o risco de interrupção genética em outros loci. Essas vantagens atenuam muitas das preocupações associadas ao CRISPR-Cas9. Portanto, a SCNT oferece maior controle sobre a genética dos embriões resultantes em comparação com a microinjeção em zigoto, especialmente para edições mais complexas, como edições multiplexadas, inserções grandes e alelos humanizados33. Embora a SCNT seja limitada pela baixa eficiência de clonagem, requisitos técnicos e reprogramação epigenética anormal — esta última podendo levar a interrupções moleculares e fenotípicas nos clones, potencialmente mascarando os efeitos da modificação genética em animais fundadores — essas alterações epigenéticas não são transmitidas aos descendentes32,33. Apesar dessas limitações, a combinação de SCNT com CRISPR-Cas9 permite a engenharia genômica precisa com controle rigoroso sobre a genética dos embriões, favorecendo a produção confiável de modelos de doenças em animais de grande porte sem mosaicismo. Aqui, descrevemos uma abordagem detalhada para modificação genética de fibroblastos fetais de ovinos (SFF) utilizando NHEJ ou HDR, seguida por SCNT para produção de embriões clonados, com o objetivo final de gerar modelos ovinos de doenças humanas. Essa abordagem é amplamente aplicável a outras espécies de animais domésticos, embora a edição gênica possa exigir otimização em diferentes tipos celulares, servindo este protocolo como um ponto de partida útil.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Protocolo
Todos os procedimentos com animais foram aprovados pelo Comitê Institucional de Cuidado e Uso de Animais (IACUC: #15508 e #10089) da Utah State University e realizados de acordo com as diretrizes dos Institutos Nacionais de Saúde (NIH). Neste estudo, foram utilizadas ovelhas Romney domésticas (Ovis aries) para isolar fibroblastos fetais de ovelha (Arquivo Suplementar 134). Veja Figura 1 para uma visão geral do protocolo.
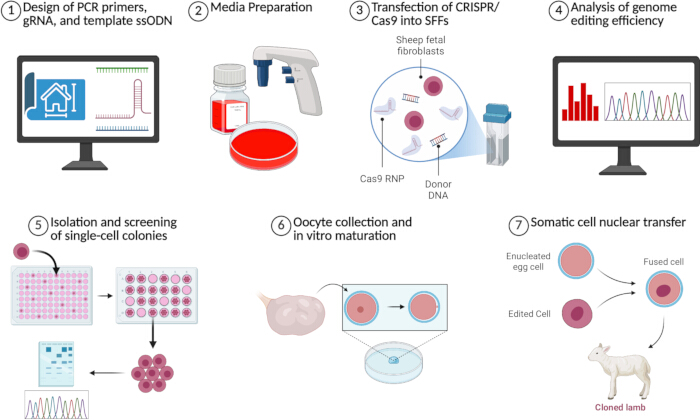
Figura 1: Visão geral dos métodos CRISPR-Cas9 e TCN utilizados para gerar embriões geneticamente modificados. Um resumo de cada um dos sete passos principais do protocolo é apresentado. Criado no BioRender. Perisse, I. (2026). Clique aqui para visualizar uma versão maior desta figura.
1. Projeto dos primers de PCR, gRNA e ssODN de modelo
- Abra a região genômica a ser editada no Benchling (https://www.benchling.com/academic).
- Projete primers de PCR para amplificar e sequenciar a região genômica de interesse.
- Destaque a região-alvo a ser amplificada, mais 200 pares de bases a montante e a jusante da região-alvo para garantir distância suficiente para chamadas de sequência de alta qualidade e análise precisa da eficiência de mutação com o software TIDE.
- Na barra de navegação do lado direito, clique em Primers > Create Primers > Wizard.
- Em Região, clique em Use Selection. Em Amplicon, ajuste o Tamanho conforme necessário e modifique outros parâmetros conforme desejado.
- Clique em Generate Primers. Selecione um ou mais pares de primers com pontuações de penalidade baixas para encomendar.
OBSERVAÇÃO: Dependendo da edição a ser introduzida, recomenda-se projetar primers que se liguem apenas ao DNA corretamente editado, permitindo triagem mais rápida de colônias positivas.
- Projete gRNA para editar o DNA com CRISPR-Cas9.
- No Benchling, destaque a região-alvo a ser editada e, na barra de navegação do lado direito, clique em CRISPR > Design and analyze guides.
- Clique no menu suspenso Genoma e selecione ou importe o genoma do organismo modelo. Ajuste outros parâmetros conforme desejado.
- Clique em Finish > +.
- Em Região do Genoma, clique em No region set e selecione ou insira a região genômica contendo o sítio-alvo. Clique em Set genome region.
- Selecione um ou mais guias com pontuações altas tanto para o alvo principal quanto para os alvos secundários (off-target) para encomendar.
- Se estiver realizando edições por KI (knock-in), projete um modelo de ssODN.
- Na barra de navegação do lado direito, clique em CRISPR > Design HR template (ssODN).
- Clique no menu suspenso Genoma e selecione ou importe o genoma do organismo modelo. Clique em Create.
- Clique na aba SEQUENCE MAP, destaque as bases a serem editadas e crie a versão modificada da sequência de DNA digitando as edições desejadas no teclado. Volte para a aba DESIGN HR TEMPLATE e clique em Next.
- Ajuste a Região do Modelo para incluir pelo menos 50 pares de bases de braços de homologia em cada lado da edição e clique em Next.
- Insira a sequência do gRNA selecionado na etapa 1.3.5 na caixa Guide para introduzir mutações silenciosas que interrompam o motivo adjacente ao protospaço (PAM). Clique em Next.
- Clique em Copy the template e encomende o modelo de ssODN gerado.
OBSERVAÇÃO: As sequências dos primers de PCR, gRNAs do CRISPR-Cas9 e modelos de ssODN projetados usando o Benchling para a geração de um modelo de fibrose cística em ovelha, portador de mutação de inativação (KO) ou da mutação F508del, estão apresentadas na Tabela 1.
2. Preparação do meio
- Prepare o meio de cultura celular suplementando o meio de Eagle modificado por Dulbecco (DMEM) com alta concentração de glicose com 15% de soro bovino fetal (SBF) e 1% de penicilina-estreptomicina (Pen/Estrept) (v/v). Pré-aqueça em banho-maria a 37 °C antes do uso.
- Prepare o meio de congelamento suplementando DMEM com 45% de FBS e 10% de dimetilsulfóxido (DMSO).
- Prepare o meio de coleta de ovócitos suplementando o meio M199 com 1% de Pen/Strep, 0,3% de albumina sérica bovina (BSA) fração V, 1% de SFB e 0,06% de sal sódico de heparina.
- Encomende meios de maturação in vitro (IVM) e de cultura in vitro (IVC), que são meios livres de soro disponíveis comercialmente, formulados para maturação de ovócitos bovinos e cultura de embriões, respectivamente.
OBSERVAÇÃO: As placas pós-fusão e IVC são preparadas com sete 40 µL gotas de meio IVC e coberto com óleo mineral testado para embriões. - Prepare o meio de privação celular suplementando o DMEM com alta concentração de glicose com 0,5% de FBS e 1% de Penicilina/Estreptomicina (v/v). Pré-aqueça em banho-maria a 37 °C antes do uso.
- Prepare o meio de fluido oviducal sintético suplementado com HEPES (HSOF), conforme descrito anteriormente35.
- Prepare o meio de enucleação suplementando 500 µL do meio HSOF com 4,5 mM de sacarose e 10 µg/mL Citocalasina B (CB).
- Prepare o meio de injeção suplementando 500 µL do meio HSOF com 10 µg/mL Citocalasina B (CB).
OBSERVAÇÃO: Os meios de enucleação e injeção são preparados frescos no dia da TCNS. Uma gota (200 µL) de cada meio é colocado em placas de 100 mm e recoberto com óleo mineral testado em embriões. - Prepare o meio de fusão conforme descrito anteriormente35. Remova 5–10 mL do meio de fusão de 4 °C e mantenha em temperatura ambiente até o uso.
- Prepare o Meio CB suplementando o meio IVC com 10 µg/mL CB.
NOTA: Uma placa CB é preparada com sete 40 µL gotas de meio CB e coberto com óleo mineral testado em embriões. - Prepare o meio com ionomicina suplementando o meio HSOF com 5 µM sal de cálcio da ionomicina
- Prepare o meio de ativação suplementando o meio IVC com 2 mM de 6-Dimetilaminopurina (DMAP) e 10 µg/mL Cicloeximida (CHX).
OBSERVAÇÃO: Uma placa de ativação é preparada com sete 40 µL gotas de meio de ativação e coberto com óleo mineral testado para embriões.
3. Transfecção de CRISPR-Cas9 em SFFs
- (Condições) Realize todos os procedimentos de cultura celular em uma cabine de segurança biológica ou capela de fluxo laminar. Cultive os SFFs em um frasco T-25 com meio de cultura celular a 37 °C em 5% CO2, 5% O2 e 90% N2 até atingirem cerca de 70%–80% de confluência antes da transfeção.
- Remova todo o meio do frasco e lave as células uma vez com 5 mL de solução salina tamponada com fosfato de Dulbecco (DPBS). Incube com 1 mL de enzima de dissociação semelhante à tripsina por 5–10 min até que as células se dissociem.
- Dilua a enzima de dissociação semelhante à tripsina usando um volume igual de meio de cultura celular e centrifugue as células a 200 × g por 5 min.
- (Temporização) Prepare o complexo ribonucleoproteico (RNP) gRNA:Cas9 incubando 2,5 µL de gRNA 100 µM com 2,5 µL de proteína Cas9 5 µg/µL por 10 min à temperatura ambiente.
NOTA: As proporções de RNP Cas9:gRNA podem exigir otimização dependendo do tipo celular, gene alvo e número de alvos. - Prepare a solução de nucleofecção combinando 82 µL de solução de nucleofecção com 18 µL de solução suplemento.
- Combine a solução de nucleofecção com o complexo RNP e, se estiver usando um ssODN, adicione 2 µL de ssODN 200 µM, depois misture suavemente por pipetagem.
- Após a centrifugação, descarte cuidadosamente o sobrenadante e coloque o tubo de cabeça para baixo sobre um tecido livre de fiapos para remover o meio residual.
NOTA: O meio de cultura residual pode afetar a eficiência de transfeção e a viabilidade celular. Certifique-se de que o excesso de líquido seja completamente removido antes de ressuspender o pellet celular na solução de nucleofecção. - (Etapa crítica) Ressuspenda os fibroblastos na solução de nucleofecção, depois transfira a mistura para uma nucleocuveta de 100 µL, evitando a formação de bolhas. Bata suavemente na nucleocuveta sobre uma superfície dura para fazer a mistura descer até o fundo da cuveta.
NOTA: Bolhas dentro da nucleocuveta podem interferir na eletroporação. - (Configuração relevante) Eletropore as células usando o programa EH-100 ou de acordo com as recomendações do fabricante. Deixe as células recuperarem por 10 min à temperatura ambiente.
- Transfira as células eletroporadas usando uma pipeta de transferência para 5 mL de meio de cultura celular pré-equilibrado suplementado com realçador de HDR em uma concentração final de 1–2 µM, o que pode exigir otimização em outros tipos celulares.
- (Condições) Cultive as células em meio de cultura celular a 37 °C em 5% CO2, 5% O2 e 90% N2 por 48 h antes do isolamento de DNA genômico.
- Remova o meio das células, lave uma vez com DPBS e adicione 1 mL de enzima de dissociação semelhante à tripsina.
- Após as células se desatacharem, adicione 1 mL de meio de cultura celular para diluir a enzima de dissociação semelhante à tripsina.
- Destine aproximadamente dois terços da suspensão celular para criopreservação e um terço para extração de DNA genômico em tubos de 1,5 mL rotulados. Centrifugue todos os tubos a 200 × g por 5 min.
- Ressuspenda o pellet celular destinado à criopreservação em 500 µL de meio de congelamento. Transfira as células ressuspensas para criovials e coloque-as em um recipiente de congelamento com taxa controlada a -80 °C, minimizando o tempo em que as células permanecem no meio de congelamento antes da transferência para -80 °C.
- Ressuspenda o pellet celular destinado à extração de DNA em 200 µL de DPBS. Extraia o DNA genômico utilizando um kit de purificação de DNA genômico de acordo com as instruções do fabricante.
4. Análise da eficiência da edição genômica
- Amplifique os locos alvo a partir do DNA isolado utilizando uma DNA polimerase de alta fidelidade e os iniciadores de PCR previamente projetados.
- Confirme a amplificação por PCR por meio de eletroforese em gel de agarose a 1% com uma escada de DNA de 1 kb.
- Purifique os produtos de PCR utilizando um kit de purificação de PCR e envie para sequenciamento Sanger.
- Se uma KO foi realizada, utilize o software TIDE (https://apps.datacurators.nl/tide) para avaliar a eficiência da edição36. Utilize cromatogramas de alta qualidade com sinal de fundo mínimo para uma análise precisa da eficiência de edição.
- Abra o TIDE e nomeie a amostra na caixa Título do gráfico. Em Sequência guia, insira a sequência do gRNA utilizado.
- Em Cromatograma da amostra controle, clique em Procurar e faça o upload do cromatograma da amostra controle não editada.
- Em Cromatograma da amostra teste, clique em Procurar e faça o upload do cromatograma da amostra teste editada.
- Navegue até a aba Decomposição para visualizar o espectro de indels e a eficiência da mutação. Verifique o valor de R2 no canto superior direito do espectro de indels.
- Se o valor de R2 for inferior a 0,9, marque a caixa Configurações avançadas em Parâmetros e ajuste os controles para a janela de alinhamento, janela de decomposição e tamanho de indel até que o valor de R2 seja superior a 0,9 e o alinhamento adequado seja alcançado.
- Se uma KI foi realizada, utilize o software TIDER (https://apps.datacurators.nl/tider) para avaliar a eficiência da edição37.
- Abra o TIDER. Nomeie a amostra na caixa Título do gráfico. Em Sequência guia, insira a sequência do gRNA utilizado.
- Em Cromatograma da amostra controle, clique em Procurar e faça o upload do cromatograma da amostra controle não editada.
- Em Cromatograma de referência, clique em Procurar e faça o upload de um cromatograma de uma amostra de referência que contenha a edição desejada.
NOTA: Caso não exista tal sequência, ela poderá ser gerada por meio de amplificação por PCR utilizando iniciadores extras projetados para introduzir a mutação em uma sequência de DNA38. - Em Cromatograma da amostra teste, clique em Procurar e faça o upload do cromatograma da amostra teste editada.
- Navegue até a aba Decomposição para visualizar o espectro de indels, a eficiência da mutação e a eficiência de HDR. Verifique o valor de R2 no canto superior direito do espectro de indels.
- Se o valor de R2 for inferior a 0,9, marque a caixa Configurações avançadas em Parâmetros e ajuste os controles para a janela de alinhamento, janela de decomposição, distância a montante do sítio de quebra e tamanho de indel até que o valor de R2 seja superior a 0,9 e o alinhamento adequado seja alcançado.
NOTA: (Crítico) Uma nova sequenciação poderá ser necessária se a qualidade da sequenciação do arquivo for baixa.
5. Isolamento e triagem de colônias unicelulares
- (Condições) Descongele e cultive os SFFs transfectados em um frasco T-25 durante a noite a 37 °C com 5% de CO2, 5% de O2 e 90% de N2, ou até que as células alcancem aproximadamente 80% de confluência.
- Remova o meio, lave as células uma vez com 5 mL de DPBS e dissocie as células com 1 mL de enzima de dissociação tipo tripsina.
- Adicione meio de cultura celular para diluir a enzima de dissociação tipo tripsina e transfira a suspensão celular para um tubo cônico de 15 mL. Centrifugue as células a 200 × g durante 5 min.
- Descarte o sobrenadante e ressuspenda o pellet celular em 1 mL de meio de cultura celular. Misture suavemente, mas completamente, para obter uma suspensão homogênea de células isoladas.
- (Crítico) Prepare uma diluição 1:10 da suspensão celular e conte as células utilizando um hemocitômetro com azul de tripano.
- Calcule o volume da suspensão celular diluída necessário para semear aproximadamente uma célula por poço.
NOTA: Para cinco placas de 96 poços, prepare aproximadamente 500 células. - Prepare 10 mL de meio de cultura celular por placa de 96 poços em um tubo cônico de 50 mL.
- Adicione o volume calculado da suspensão celular diluída 1:10 ao meio de cultura e misture bem por pipetagem suave e inversão.
- Despeje a suspensão celular diluída em um reservatório estéril para reagentes.
- Dispense 100 µL da suspensão celular em cada poço de uma placa de 96 poços.
- (Condições) Incube as placas a 37 °C com 5% de CO2, 5% de O2 e 90% de N2 por 5 dias.
- Examine cada poço ao microscópio e marque os poços que contêm uma única colônia. Exclua os poços que contêm mais de uma colônia.
NOTA: As colônias derivadas de uma única célula são geralmente arredondadas, compactas e morfologicamente homogêneas. - Retorne as placas ao incubador e cultive por mais 2 dias nas mesmas condições.
- Após 7 dias totais de cultura em placas de 96 poços, remova o meio dos poços que contêm uma única colônia em crescimento. Lave cada poço selecionado uma vez com DPBS.
- Adicione 100 µL de enzima de dissociação tipo tripsina a cada poço selecionado e incube até que as células se desprendam. Adicione 100 µL de meio de cultura celular a cada poço para diluir a enzima de dissociação tipo tripsina.
- Transfira todo o volume de cada poço para um único poço de uma placa de 24 poços.
- Lave o poço original da placa de 96 poços com meio de cultura adicional e transfira a lavagem para o poço correspondente da placa de 24 poços para maximizar a recuperação celular. Ajuste o volume final em cada poço da placa de 24 poços para 500 µL com meio de cultura celular.
- (Condições) Incube as placas de 24 poços a 37 °C com 5% de CO2, 5% de O2 e 90% de N2 por 3 dias.
- Examine os poços ao microscópio e selecione as colônias próximas à confluência.
- Remova o meio dos poços selecionados para coleta, lave uma vez com DPBS e adicione 500 µL de enzima de dissociação tipo tripsina.
- Após o desprendimento celular, adicione 1 mL de meio de cultura celular para diluir a enzima de dissociação tipo tripsina.
- Congele as células e isole o DNA genômico conforme os passos 3.14–3.16.
- Amplifique os locos-alvo por PCR e confirme o genótipo por sequenciamento de Sanger.
- Identifique colônias selvagens, KO e KI com base nos resultados do sequenciamento. Utilize a análise TIDE/TIDER conforme descrito nos passos 4.4 e 4.5 para estimar as taxas de HDR e os espectros de indel, a fim de validar a edição correta e identificar colônias não derivadas de uma única célula.
NOTA: A análise de alvos fora do alvo também pode ser realizada nesta etapa (Arquivo Suplementar 1). - Expanda apenas as colônias com o genótipo desejado e morfologia celular normal para experimentos subsequentes de SCNT.
6. Coleta de ovócitos ovinos e maturação in vitro
- Coletar ovários de ovelha de um matadouro local e transportar para o laboratório em solução salina a 0,9% 25 °C dentro de 4 h após a coleta.
- Óvulos maduros in vitro.
- Libere os complexos cumulus-óvulo (COCs) dos ovários utilizando uma lâmina de bisturi, cortando a superfície ovariana enquanto esta estiver submersa no meio de coleta de óvulos.
- (Temporização) Selecionar COCs com pelo menos 1–3 camadas de células do cumulus compactas e citoplasma uniforme para a MIV. Lavar os COCs em meio fresco de coleta de ovócitos e cultivar em meio de MIV pré-equilibrado, com até 40 COCs por poço de 500 µL de meio IVM em uma placa de 4 poços e incubam em 38.5 °C com 5% CO2 por 21–22 h.
- Verifique a maturação dos óvulos.
- Mova o número desejado de COCs utilizando um 200 µL pipetar em um tubo de microcentrífuga de 1,5 mL, adicionando o mesmo volume (1:1) de hialuronidase a 0,6 mg/mL no tubo.
- Pipete a solução mista para cima e para baixo até que todas as células do cumulus tenham sido removidas. Transfira os ovócitos para uma gota de HSOF de 1 mL e lave os ovócitos através de mais três gotas adicionais de HSOF.
- Usando uma pipeta bucal ou uma 10 µL pipetar e com a ponta, rolar e selecionar os ovócitos que apresentam um corpo polar sob um estereomicroscópio. As taxas aceitáveis de extrusão do corpo polar são de 50%–80%.
7. Transferência nuclear de célula somática
- Prepare as células doadoras antes da TCNS.
- Descongele as células criopreservadas 3–5 dias antes da TCNS em banho-maria a 37 °C por 1–2 min até que não reste gelo no tubo.
- Remova a suspensão celular e adicione um volume igual de meio de cultura celular em um tubo cônico de 15 mL e centrifugue a 406 x g por 5 min.
- Remova o sobrenadante e re-suspenda o pellet celular em 500 µL de meio de cultura celular.
- (Condições) Semeie as células em diferentes concentrações em uma placa de 4 poços com volume final de 500 µL por poço e cultive a 37 °C com 5% CO2, 5% O2 e 90% N2.
- Substitua o meio de cultura celular a cada 48 h. Após as células atingirem confluência total, substitua por meio de inanição celular 24 h–48 h antes da TCNS.
OBSERVAÇÃO: A inanição celular por mais de 48 h pode aumentar a proporção de apoptose39,40.
- Prepare as células doadoras (dia da TCNS).
- Remova o meio de inanição do poço e lave uma vez com 500 µL de DPBS (-).
- Adicione 250 µL de enzima de dissociação tipo tripsina e incube a 37 °C por 5 min, ou até que as células se desprendam do recipiente.
- Adicione 500 µL de meio de cultura celular para diluir a enzima de dissociação tipo tripsina.
- Transfira as células para um tubo cônico de 15 mL e centrifugue a 406 x g por 5 min.
- Remova o sobrenadante e re-suspenda as células em 60–80 µL de meio HSOF e mantenha a 4 °C até o uso.
- Enuclear os ovócitos.
- Prepare pipetas de contenção puxando capilares de parede fina com um puxador de micropipetas e modelando com um microforjador para obter diâmetro interno de 30 µm e diâmetro externo de 100 µm.
OBSERVAÇÃO: Ambas as pipetas também podem ser adquiridas de fornecedores comerciais. - Prepare as pipetas de injeção puxando capilares de parede fina com um puxador de micropipetas, afilando em ângulo de 45° com uma microesmerilhadeira e modelando com um microforjador para obter diâmetro interno de 20–25 µm. Os parâmetros para o puxador de micropipetas, microforjador e microesmerilhadeira podem ser encontrados em um relato anterior41.
- Transfira os ovócitos em estágio de metáfase II (MII) que apresentem corpo polar para a gota de meio de enucleação. Imobilize o ovócito usando uma pipeta de contenção com o corpo polar na posição das 4–5 horas.
OBSERVAÇÃO: Os procedimentos operacionais padrão para micromanipulação podem ser consultados no relato anterior41. - (Crítico) Use uma pipeta de injeção afiada com ponta biselada para perfurar a zona pelúcida e aspirar o corpo polar e 10%–20% do citoplasma sob o corpo polar.
- Empurre o citoplasma removido para a gota e libere o ovócito da pipeta de contenção.
- Repita os passos 7.3.2–7.3.4 em todos os ovócitos até que todos tenham sido enucleados. Retorne os ovócitos enucleados ao meio de MIV e incube a 38,5 °C e 5% CO2 por 30 min.
- Prepare pipetas de contenção puxando capilares de parede fina com um puxador de micropipetas e modelando com um microforjador para obter diâmetro interno de 30 µm e diâmetro externo de 100 µm.
- Injetar células doadoras nos ovócitos enucleados.
- Adicione a suspensão celular preparada na base da gota de meio de injeção e transfira os ovócitos enucleados para a mesma gota.
- Selecione 1–10 células saudáveis e arredondadas e aspire-as para dentro da pipeta de injeção.
- Use a pipeta de contenção para imobilizar um ovócito e use a pipeta de injeção para perfurar a zona pelúcida e colocar uma célula entre a zona e o ooplasma.
- Repita os passos 7.4.2–7.4.3 em todos os ovócitos enucleados e transfira-os para 2–3 mL de meio HSOF em uma placa de 35 mm antes da fusão celular.
- Fundir ovócitos enucleados e células doadoras.
- Conecte os cabos do gerador de pulsos eletrofusão aos fios da câmara de microdeslizamento (0,5 mm) e coloque a câmara sobre a platina do microscópio.
- Adicione 600 µL de meio de fusão à câmara.
- (Configuração crítica/relevante) Alinhe 4–6 pares citoplasma-célula entre os dois fios da câmara, com a célula doadora na posição das 6 ou 12 horas. Aplique dois pulsos elétricos contínuos de 2,0 kV/cm por 40 µs.
- Remova os pares citoplasma-célula da câmara de fusão e mantenha-os em uma nova placa de 35 mm contendo 2–3 mL de meio HSOF.
- (Condições) Repita os passos 7.5.3–7.5.4 até que todos os ovócitos injetados tenham passado pelo processo de fusão. Lave os casais em uma placa pós-fusão e incube a 38,5 °C com 5% CO2, 5% O2 e 90% N2 por 30 min. Substitua o meio de fusão na câmara a cada 15–20 min.
- Ativar e cultivar embriões.
- (Condições) 30 min após a fusão, todos os embriões fundidos são inicialmente incubados em meio CB a 38,5 °C com 5% CO2, 5% O2 e 90% N2 por 45 min.
- Posteriormente, os casais são ativados em 5 µM de ionomicina diluída em HSOF por 5 min, seguido de incubação em meio de ativação por 4 h.
OBSERVAÇÃO: O meio de ionomicina é preparado fresco antes do uso. Recomenda-se a ativação em 24–26 h pós-maturação para melhorar o desenvolvimento até o termo completo. - (Condições) Após a ativação, os embriões reconstruídos são lavados e cultivados em meio CIV, com no máximo 40 embriões por gota de 40 µL a 38,5 °C com 5% CO2, 5% O2 e 90% N2 durante a noite ou até a transferência embrionária.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Resultados
As principais etapas do protocolo são resumidas em Figura 1. Utilizamos CRISPR-Cas9 e TCNC para desenvolver um modelo ovino para fibrose cística (FC) contendo ou uma mutação indel de KO gerada por meio de NHEJ, ou a mutação F508del por meio de HDR. Partes desses resultados foram previamente publicadas42,43. Nós projetamos gRNAs e primers de PCR para ambas as estratégias com o objetivo de direcionar o Éxon 11 do Regulador da Condutânc...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Discussão
Neste procedimento, o planejamento de iniciadores eficazes, gRNAs e ssODNs é crucial para a edição gênica bem-sucedida. A ligação inadequada dessas moléculas pode dificultar a edição gênica e a identificação de colônias desejáveis, impedindo o avanço para a TCNE. Recomenda-se adquirir múltiplas variantes de cada sequência para testes e otimização antes de prosseguir com o isolamento de colônias monoclonais. A transfeção de plasmídeos Cas9 para KO em fibroblastos geralmente resulta em eficiência de edição subótima, sendo ...
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Divulgações
Os autores utilizaram o Grammarly (Grammarly Inc.) e o ChatGPT (OpenAI) para melhorar a linguagem e a legibilidade do manuscrito, conforme usos aceitos por editoras científicas. Essas ferramentas não foram usadas para gerar texto original, conceitos de pesquisa, dados, imagens ou figuras nesta proposta. Após utilizar essas ferramentas, os autores revisaram e editaram o conteúdo conforme necessário e assumem total responsabilidade por este conteúdo.
Agradecimentos
Este trabalho foi apoiado em parte pelo Utah Agricultural Experiment Station (UTAO1328) e pela Cystic Fibrosis Foundation (prêmio POLEJA23PO).
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Escada de DNA de 1 kb | Thermo Fisher Scientific | SM0313 | Marcador de tamanho de DNA |
| Tubo de centrífuga de 15 mL | Thermo Fisher Scientific | 12-565-269 | |
| Tubo microcentrífugo de 1,5 mL | Thermo Fisher Scientific | 05-408-129 | |
| Unidade 4D-Nucleofector Core | Lonza | AAF-1003B | |
| Unidade 4D-Nucleofector X | Lonza | AAF-1003X | |
| Placa de 4 poços | Nunc | 144444 | |
| Tubo de centrífuga de 50 mL | Thermo Fisher Scientific | 12-565-270 | |
| 6-DMAP | Sigma-Aldrich | D2629 | |
| Placa de 24 poços | Corning | 3524 | Expansão celular |
| Placa de 96 poços | Corning | 3596 | Isolamento de colônia de célula única |
| Agarose | Thermo Fisher Scientific | BP160-100 | Eletroforese em gel de agarose |
| Béquer (250 mL) | Kimble | 14000-250 | |
| Software Benchling | Benchling | https://www.benchling.com/academic | Alinhamento e análise de sequência |
| Meio IVC | IVF Bioscience | 71005 | |
| Meio IVM | IVF Bioscience | 71001 | |
| BSA | Gold Bio | A-421-250 | |
| BTX ECM | BTX | ECM-200 | Equipamento (Descontinuado) |
| Câmara de microplaca BTX | BTX | 450103 | |
| Proteína Cas9 | Integrated DNA Technologies | Custom | Edição do genoma com CRISPR-Cas9 |
| Clorhexidina Digluconato (2%) | Aspen Vet | 11584915 | |
| CHX | Sigma-Aldrich | C7698 | |
| Software CRISPOR | CRISPOR | https://crispor.gi.ucsc.edu/ | Software de predição de alvos fora do alvo |
| Criovial | Thermo Fisher Scientific | 12-565-163N | |
| Citocalasina B | Sigma-Aldrich | C6762 | |
| Dissulfóxido de dimetila | Fisher Scientific | BP231-100 | Reagente para criopreservação |
| DMEM com alta glicose | Cytiva | SH30022 | Meio de cultura para fibroblastos |
| Kit de purificação de DNA | Thermo Fisher Scientific | K0781 | Purificação de DNA genômico de sangue total |
| DPBS sem Ca/Mg | Cytiva | SH30256 | Usado para lavagem de células e tecidos |
| Etanol | Pharco | 111000200CSGL | |
| Soro bovino fetal | Cytiva | SH30396 | Suplemento para cultura celular |
| Pinceta | Skylar | 66-6112 | |
| Kit de purificação de DNA genômico | Qiagen | 69504 | Extração de DNA genômico |
| Solução de gentamicina | Gibco | 15750-060 | Usada no meio de enxágue |
| RNA guia | Integrated DNA Technologies | Custom | RNA guia do CRISPR |
| Realçador de reparo direcionado por homologia (HDR) | Integrated DNA Technologies | 10007921 | Realça o reparo direcionado por homologia |
| Hemocitômetro | Hausser Scientific | 02-671-10 | Contagem celular |
| Hemostatos | Roboz Surgical | RS-7884 | |
| Sulfato de heparina sódica | Sigma-Aldrich | H3149 | |
| Polimerase de DNA Hot-Start | Promega | M5123 | Amplificação por PCR |
| Hialuronidase | Sigma-Aldrich | H3506 | |
| Ionomicina | Sigma-Aldrich | I0634 | |
| Meio M199 | Cytiva | SH30253.01 | |
| Peneira de malha (40 mesh) | Sigma-Aldrich | S-0770 | Tamanho da abertura 380 μm |
| Microforge | Narishige | MF-9 | |
| Microrebarbador | Narishige | EG-4 | |
| Puxador de micropipetas | Sutter Instrument Co | P-87 | |
| Óleo mineral | Kitazato/Dibimed | 96014 | |
| Pipeta bucal | Thermo Fisher Scientific | 13-678-20D | Pipetas Pasteur descartáveis |
| Recipiente de congelamento Mr. Frosty | Thermo Fisher Scientific | 15-350-50 | Recipiente de congelamento com taxa controlada |
| Nucleocuveta | Lonza | V4XP-3032 | Cubeta para eletroporação |
| Kit P3 Primary Cell 4D-Nucleofector X Kit L | Lonza | V4XP-3024 | Inclui solução de nucleofecção, solução suplementar, nucleocuvetas e pipetas de transferência |
| Kit de purificação de PCR | Qiagen | 28006 | Purificação de produto de PCR |
| Penicilina-estreptomicina | Gibco | 15070-063 | Suplemento antibiótico |
| Placa de Petri (100 mm) | Nunc | 172958 | |
| Placa de Petri (35 mm) | Nunc | 150460 | |
| Reservatório de reagentes | CELLTREAT | 3054-1003 | |
| Escalpelo | MedBlades | MB 2-22 | |
| Tesoura | Roboz Surgical | RS-6802 | |
| Modelo doador de oligodesoxinucleotídeo de fita simples | Integrated DNA Technologies | Custom | Modelo doador HDR |
| Cloreto de sódio | Thermo Fisher Scientific | BP358-212 | Para solução salina |
| Sacarose | Sigma-Aldrich | S1888 | |
| Bandeja cirúrgica | Fornecedor Aprovado | 74262 | |
| Corante SYBR Safe para gel de DNA | Thermo Fisher Scientific | S33102 | Corante para gel de DNA |
| Frasco T-25 | Thermo Fisher Scientific | 156367 | Frasco de cultura celular |
| Frasco T-75 | Corning | 430641U | Frasco de cultura celular |
| Capilar de vidro de parede fina | World Precision Instruments | TW100-6 | |
| Software TIDE/TIDER | TIDE/TIDER | https://tide.nki.nl/ | Software de análise de edição do genoma |
| Azul de tripano | Cytiva | SV30084 | |
| TrypLE Express | Gibco | 12605-010 | Enzima de dissociação semelhante à tripsina |
Referências
- Chang MCJ, Grieder FB. The continued importance of animals in biomedical research. Lab Anim (NY). 2024;53(11):295-297.
- Bhaduri A, et al. Cell stress in cortical organoids impairs molecular subtype specification. Nature. 2020;578(7793):142-148.
- Lin Y, et al. Application of CRISPR/Cas9 system in establishing large animal models. Front Cell Dev Biol. 2022;10:919155.
- Seok J, et al. Genomic responses in mouse models poorly mimic human inflammatory diseases. Proc Natl Acad Sci U S A. 2013;110(9):3507-3512.
- Ineichen BV, et al. Analysis of animal-to-human translation shows that only 5% of animal-tested therapeutic interventions obtain regulatory approval for human applications. PLoS Biol. 2024;22(6):e3002667.
- Schuh JCL. Trials, tribulations, and trends in tumor modeling in mice. Toxicol Pathol. 2004;32(1):53-66.
- Mak IW, Evaniew N, Ghert M. Lost in translation: animal models and clinical trials in cancer treatment. Am J Transl Res. 2014;6(2):114-118.
- Domínguez-Oliva A, et al. The importance of animal models in biomedical research: current insights and applications. Animals (Basel). 2023;13(7):1223.
- Li XJ, Lai L. A booming field of large animal model research. Zool Res. 2024;45(2):311-313.
- Pinnapureddy AR, et al. Large animal models of rare genetic disorders: sheep as phenotypically relevant models of human genetic disease. Orphanet J Rare Dis. 2015;10(1):107.
- Polejaeva IA, Rutigliano HM, Wells KD. Livestock in biomedical research: history, current status and future prospective. Reprod Fertil Dev. 2015;28(2):112-124.
- Kelly OM, et al. Towards clinical translation of nanomedicines: formulation scale-up and model systems. Adv Drug Deliv Rev. 2026;234:115862.
- Jinek M, et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 2012;337(6096):816-821.
- Pfeiffer P, Vielmetter W. Joining of nonhomologous DNA double strand breaks in vitro. Nucleic Acids Res. 1988;16(3):907-924.
- Thomas KR, Capecchi MR. Site-directed mutagenesis by gene targeting in mouse embryo-derived stem cells. Cell. 1987;51:503-512.
- Takata M, et al. Homologous recombination and non-homologous end-joining pathways of DNA double-strand break repair have overlapping roles in the maintenance of chromosomal integrity in vertebrate cells. EMBO J. 1998;17(18):5497-5508.
- Jiang S, Shen QW. Principles of gene editing techniques and applications in animal husbandry. 3 Biotech. 2019;9(1):28.
- Javaid N, Choi S. CRISPR/Cas system and factors affecting its precision and efficiency. Front Cell Dev Biol. 2021;9:761709.
- Wang J, et al. Application of gene editing technology in livestock: progress, challenges, and future perspectives. Agriculture (Basel). 2025;15(20):2155.
- Saleh-Gohari N, Helleday T. Conservative homologous recombination preferentially repairs DNA double-strand breaks in the S phase of the cell cycle in human cells. Nucleic Acids Res. 2004;32(12):3683-3688.
- Miyaoka Y, et al. Systematic quantification of HDR and NHEJ reveals effects of locus, nuclease, and cell type on genome-editing. Sci Rep. 2016;6:23549.
- Wen W, Zhang XB. CRISPR-Cas9 gene editing induced complex on-target outcomes in human cells. Exp Hematol. 2022;110:13-19.
- Schnieke AE, et al. Human factor IX transgenic sheep produced by transfer of nuclei from transfected fetal fibroblasts. Science. 1997;278(5346):2130-2133.
- Tang L, González R, Dobrinski I. Germline modification of domestic animals. Anim Reprod. 2015;12(1):93-104.
- Perisse IV, et al. Improvements in gene editing technology boost its applications in livestock. Front Genet. 2021;11:614688.
- Kwon DH, Gim GM, Yum SY, Jang G. Current status and future of gene engineering in livestock. BMB Rep. 2024;57(1):50-59.
- Mehravar M, Shirazi A, Nazari M, Banan M. Mosaicism in CRISPR/Cas9-mediated genome editing. Dev Biol. 2019;445(2):156-162.
- Niu Y, et al. Generation of gene-modified cynomolgus monkey via Cas9/RNA-mediated gene targeting in one-cell embryos. Cell. 2014;156(4):836-843.
- Yen ST, et al. Somatic mosaicism and allele complexity induced by CRISPR/Cas9 RNA injections in mouse zygotes. Dev Biol. 2014;393(1):3-9.
- Ni W, et al. Efficient gene knockout in goats using CRISPR/Cas9 system. PLoS One. 2014;9(9):e106718.
- Polejaeva IA. 25th anniversary of cloning by somatic cell nuclear transfer: generation of genetically engineered livestock using somatic cell nuclear transfer. Reproduction. 2021;162(1):F11-F22.
- Hodges CA, Stice SL. Generation of bovine transgenics using somatic cell nuclear transfer. Reprod Biol Endocrinol. 2003;1:81.
- Galli C. Current techniques of gene editing in pigs for xenotransplantation. Transpl Int. 2025;38:13807.
- Concordet JP, Haeussler M. CRISPOR: intuitive guide selection for CRISPR/Cas9 genome editing experiments and screens. Nucleic Acids Res. 2018;46(W1):W242-W245.
- Liu Y, et al. A retrospective analysis of sheep generated by somatic cell nuclear transfer. Theriogenology. 2024;227:102-111.
- Brinkman EK, Chen T, Amendola M, van Steensel B. Easy quantitative assessment of genome editing by sequence trace decomposition. Nucleic Acids Res. 2014;42(22):e168.
- Brinkman EK, et al. Easy quantification of template-directed CRISPR/Cas9 editing. Nucleic Acids Res. 2018;46(10):e58.
- Brinkman EK, Van Steensel B. Rapid quantitative evaluation of CRISPR genome editing by TIDE and TIDER. Methods Mol Biol. 2019;1961:29-44.
- Dalman A, et al. Synchronizing cell cycle of goat fibroblasts by serum starvation causes apoptosis. Reprod Domest Anim. 2010;45(5):e46-e53.
- Sadeghian-Nodoushan F, et al. Mimosine as well as serum starvation can be used for cell cycle synchronization of sheep granulosa cells. Chin J Biol. 2014;2014(1):851736.
- Page RL, Malcuit CM. Micromanipulation techniques for cloning. In: Principles of Cloning. Elsevier; 2014. p. 39-51.
- Viotti Perisse I, et al. Sheep models of F508del and G542X cystic fibrosis mutations show cellular responses to human therapeutics. FASEB Bioadv. 2021;3(10):841-854.
- Fan Z, et al. A sheep model of cystic fibrosis generated by CRISPR/Cas9 disruption of the CFTR gene. JCI Insight. 2018;3(19).
- Berthault C, et al. Highly efficient ex vivo correction of COL7A1 through ribonucleoprotein-based CRISPR/Cas9 and homology-directed repair to treat recessive dystrophic epidermolysis bullosa. J Invest Dermatol. 2024;144(6):1322-1333.e13.
- Martufi M, et al. Single-step, high-efficiency CRISPR-Cas9 genome editing in primary human disease-derived fibroblasts. CRISPR J. 2019;2(1):31-40.
- Bloomer H, Khirallah J, Li Y, Xu Q. CRISPR/Cas9 ribonucleoprotein-mediated genome and epigenome editing in mammalian cells. Adv Drug Deliv Rev. 2022;181:114087.
- Blocher R, et al. Effect of laparoscopic ovum pick-up on ovine in vitro oocyte maturation and somatic cell nuclear transfer embryo development. Anim Reprod Sci. 2026;292:108251.
- Campbell KH, Loi P, Otaegui PJ, Wilmut I. Cell cycle co-ordination in embryo cloning by nuclear transfer. Rev Reprod. 1996;1(1):40-46.
- Chen Y, Niu Y, Ji W. Genome editing in nonhuman primates: approach to generating human disease models. J Intern Med. 2016;280(3):246-251.
- Liu D, Cao D, Han R. Recent advances in therapeutic gene-editing technologies. Mol Ther. 2025;33(6):2619-2644.
- Campbell K, Alberio R. Reprogramming the genome: role of the cell cycle. Biosci Proc. 2019.
- Chia G, et al. Genomic instability during reprogramming by nuclear transfer is DNA replication dependent. Nat Cell Biol. 2017;19(4):282-291.
- Wang X, et al. Epigenetic reprogramming during somatic cell nuclear transfer: recent progress and future directions. Front Genet. 2020;11:205.
- Loi P, Iuso D, Czernik M, Ogura A. A new, dynamic era for somatic cell nuclear transfer? Trends Biotechnol. 2016;34(10):791-797.
- Zhao J, et al. Histone deacetylase inhibitors improve in vitro and in vivo developmental competence of somatic cell nuclear transfer porcine embryos. Cell Reprogram. 2010;12(1):75-83.
- Huang J, et al. BIX-01294 increases pig cloning efficiency by improving epigenetic reprogramming of somatic cell nuclei. Reproduction. 2016;151(1):39-49.
- Han C, et al. Overexpression of TET3 in donor cells enhances goat somatic cell nuclear transfer efficiency. FEBS J. 2018;285(14):2708-2723.
- Wang S, et al. Application of gene editing technology in resistance breeding of livestock. Life (Basel). 2022;12(7):1070.
- Houdebine LM. Production of pharmaceutical proteins by transgenic animals. Comp Immunol Microbiol Infect Dis. 2009;32(2):107-121.
Acesso restrito. Inicie sessão ou comece um teste para visualizar este conteúdo.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve