A expressão do LINC00707 no plasma está elevada na lesão medular e promove inflamação e estresse oxidativo mediados por micróglias por meio do eixo de sinalização miR-145-5p/TRAF6. O silenciamento do LINC00707 atenua essas respostas patológicas, destacando seu potencial como alvo terapêutico.
Artigo de investigação
Silenciamento do LINC00707 Alivia a Inflamação e o Estresse Oxidativo em Micróglias BV2 Estimuladas por LPS via o eixo miR-145-5p/TRAF6 na lesão medular
110 visualizações
⸱
11 de setembro de 2026
* These authors contributed equally
Neste artigo
Resumo
Resumo
A lesão medular (SCI) causa incapacidade permanente, reduz profundamente o bem-estar e impõe um ônus socioeconômico substancial. Este estudo investigou o papel do LINC00707 na SCI por meio da regulação do eixo de sinalização miR-145-5p/TRAF6. Amostras de plasma de 30 indivíduos saudáveis e 75 pacientes com SCI foram analisadas quanto à expressão de LINC00707, miR-145-5p e TRAF6 utilizando RT-qPCR. As associações entre os níveis plasmáticos de LINC00707 e fatores pró-inflamatórios foram avaliadas em pacientes com SCI. Células microgliais BV2 foram expostas a 100 ng/mL de LPS, e fatores relacionados à inflamação e ao estresse oxidativo foram medidos. As interações moleculares foram avaliadas utilizando um ensaio de repórter de dupla luciferase. A análise de regressão logística foi utilizada para identificar fatores associados à expressão de LINC00707. Os níveis plasmáticos de LINC00707 e TRAF6 estavam aumentados em pacientes com SCI, enquanto os níveis de miR-145-5p estavam reduzidos. Os níveis plasmáticos de LINC00707 correlacionaram-se positivamente com os níveis plasmáticos de fatores inflamatórios. O LINC00707 atuou como uma esponja molecular para o miR-145-5p, e o TRAF6 foi um gene alvo do miR-145-5p. A inibição do LINC00707 diminuiu os fatores inflamatórios, substâncias pró-estresse oxidativo e os níveis de mRNA do TRAF6 em células BV2. A inibição do miR-145-5p produziu efeitos opostos. Esses achados sugerem que a expressão elevada de LINC00707 está associada à gravidade da SCI e que a supressão do LINC00707 pode atenuar a inflamação e o estresse oxidativo mediados por micróglias por meio da regulação do eixo de sinalização miR-145-5p/TRAF6.
Introdução
A lesão medular (SCI) é uma condição traumática que danifica a medula espinhal, um componente crítico do sistema nervoso central. A SCI interrompe diretamente as vias de condução neural entre a medula espinhal e o cérebro, causando graves comprometimentos nas funções motora, sensorial e autonômica1,2. Estudos epidemiológicos relataram uma incidência anual de aproximadamente 5 casos por 100.000 indivíduos, com mortalidade relacionada à doença chegando a 16,7%3,4. Uma pesquisa canadense estimou o custo vitalício de reabilitação para cada paciente com SCI em até US$ 336.0005. A alta incidência, mortalidade e os custos substanciais associados ao diagnóstico, tratamento e reabilitação tornam a lesão medular um grande desafio clínico que exige estratégias terapêuticas aprimoradas.
A progressão patológica da LME consiste em duas fases: lesão primária e lesão secundária. A lesão primária resulta da compressão mecânica traumática ou da ruptura do tecido da medula espinhal, enquanto a lesão secundária é mediada por processos patológicos, incluindo inflamação e estresse oxidativo6,7. Em condições fisiológicas, a neuroinflamação mediada por micróglias contribui para a homeostase do sistema nervoso central8,9,10. Após a LME, no entanto, as micróglias tornam-se excessivamente ativadas e liberam grandes quantidades de mediadores pró-inflamatórios11,12. Esses mediadores induzem a produção excessiva de espécies reativas de oxigênio (ERO), causando dano e morte neuronais e agravando a lesão medular secundária13,14. Portanto, suprimir a ativação excessiva das micróglias e interromper a cascata inflamatória representam estratégias terapêuticas promissoras para promover a recuperação neurológica e melhorar os resultados após a LME.
Os RNAs não codificantes longos (lncRNAs) são uma classe de RNAs não codificantes com mais de 200 nucleotídeos que não possuem potencial de codificação proteica15. Inicialmente considerados como "ruído" transcricional, os lncRNAs são agora reconhecidos como importantes reguladores de diversos processos fisiológicos e patológicos16. Estudos recentes demonstraram que os lncRNAs desempenham papéis cruciais na lesão neural. O RNA não codificante longo intergênico 707 (LINC00707) surgiu como um regulador importante de distúrbios do sistema nervoso. Estudos anteriores relataram que o LINC00707 agrava a lesão cerebral traumática ao potencializar a inflamação mediada por micróglias17. Além disso, Zhu et al. demonstraram que o silenciamento do LINC00707 atenuou significativamente a inflamação e a apoptose induzidas por lipopolissacarídeo (LPS) em células PC1218. Esses achados fornecem uma base teórica preliminar para explorar o envolvimento do LINC00707 na lesão medular (SCI). No entanto, ainda permanece a ser elucidado se o LINC00707 regula a inflamação mediada por micróglias durante a lesão medular.
Os lncRNAs atuam como esponjas moleculares por meio do mecanismo de RNA endógeno competitivo (ceRNA), sequestrando microRNAs (miRNAs) e regulando a expressão de genes alvo downstream19. Esse padrão regulatório está amplamente envolvido na patogênese de diversas doenças. Notavelmente, o miR-145-5p está significativamente subregulado nos tecidos de lesão medular (SCI)20 e durante lesões induzidas por LPS21, e sua superexpressão atenua efetivamente as respostas inflamatórias e de estresse oxidativo nas micróglias22. O fator associado ao receptor de fator de necrose tumoral 6 (TRAF6) também desempenha um papel fundamental na patologia da SCI23,24,25. No entanto, ainda não está esclarecido se LINC00707, miR-145-5p e TRAF6 exercem funções regulatórias coordenadas na SCI.
No presente estudo, a expressão de LINC00707 foi significativamente aumentada em células microgliais estimuladas com LPS. Portanto, formulamos a hipótese de que LINC00707 possa atuar como um regulador pró-inflamatório na microglia e que seu silenciamento possa atenuar a resposta neuroinflamatória, melhorando assim a progressão patológica da lesão medular (SCI). Este estudo investigou se LINC00707 regula as respostas inflamatórias da microglia e contribui para a patogênese da lesão medular.
Protocolo
Este estudo foi aprovado pelo Comitê de Ética do Hospital Zhangjiakou First (número de aprovação 2024-KY-18). Todos os participantes foram informados sobre os objetivos do estudo e os riscos potenciais e forneceram consentimento informado por escrito antes da inscrição. Amostras de sangue venoso foram coletadas de controles saudáveis durante exames físicos de rotina e de pacientes com LES imediatamente após a admissão hospitalar. As medições laboratoriais foram realizadas pelo laboratório clínico do hospital. As ferramentas de pesquisa utilizadas neste protocolo estão listadas na Tabela de Materiais.
1. Sujeitos
Um total de 75 pacientes com LME foram recrutados no Hospital Zhangjiakou Primeiro entre janeiro de 2023 e janeiro de 2025. Os critérios de inclusão foram LME confirmada por tomografia computadorizada (TC) ou ressonância magnética (RM) e um intervalo de tempo entre a lesão e a admissão hospitalar de ≤ 12 h. Os critérios de exclusão foram histórico de trauma ou cirurgia na medula espinhal ou cérebro nos últimos 6 meses; doença cardiovascular grave, incluindo infarto do miocárdio ou arritmia; gravidez ou lactação; e tumores malignos, disfunção hepática ou renal, doença cerebrovascular grave ou doenças infecciosas.
De acordo com os padrões de classificação neurológica da American Spinal Injury Association (ASIA)26, 75 pacientes com lesão medular foram classificados em grupos de função neurológica normal (n = 21), lesão medular incompleta (n = 36) e lesão medular completa (n = 18). A distribuição dos locais da lesão foi a seguinte: cervical, 36,0%; torácica, 30,7%; e lombar, 33,3%. Trinta indivíduos saudáveis, pareados com a população do estudo, foram recrutados aleatoriamente para servir como grupo controle. As informações clínicas basais foram coletadas para todos os participantes. Os critérios de inclusão para indivíduos saudáveis foram ausência de histórico de trauma medular ou cerebral, cirurgia ou distúrbios neurológicos; ausência de histórico de doenças inflamatórias crônicas, distúrbios autoimunes ou neoplasias; ausência de doenças cardiovasculares, hepáticas ou renais graves; ausência de infecção aguda ou crônica nas últimas 4 semanas; ausência de gravidez ou lactação; e pareamento por idade e sexo com o grupo de lesão medular.
A Medida de Independência Funcional (FIM) foi utilizada para avaliar a independência funcional nas atividades diárias. A pontuação máxima na FIM é 126. As pontuações de sensação tátil, acmestesia e motora foram utilizadas para avaliar as funções sensorial e motora. As pontuações máximas de sensação tátil e acmestesia eram 112, e a pontuação motora máxima era 100. Pontuações mais baixas indicam comprometimento neurológico mais grave.
2. Cultura celular, construção do modelo e transfeção
Células microgliais imortalizadas de camundongo BV2 foram obtidas a partir do Centro de Recursos Celulares do Instituto de Biotecnologia de Xangai. As células foram cultivadas em meio Dulbecco modificado por Eagle (DMEM) com alta concentração de glicose, suplementado com 10% de soro bovino fetal (SBF), penicilina (100 U/mL) e estreptomicina (100 U/mL). As células foram mantidas a 37 °C em incubadora umidificada contendo 5% de CO₂.
Para a construção do modelo, as células BV2 foram estimuladas com 0, 10, 20, 50, 100, 150 ou 200 ng/mL de lipopolissacarídeo (LPS) durante 24 h. A concentração ideal de LPS foi selecionada com base nos resultados experimentais.
Para a transfeção, as células BV2 foram semeadas em placas de 6 poços e transfectadas assim que atingiram a confluência apropriada. Um reagente de transfeção foi utilizado na concentração de 1,5 µL/poço, conforme as instruções do fabricante. Após 6 h, o meio de cultura foi substituído por meio fresco, e as células foram cultivadas por mais 24 h. O construto de silenciamento de LINC00707, o controle negativo correspondente, o oligonucleotídeo de miR-145-5p e o oligonucleotídeo controle correspondente foram utilizados cada um na concentração de 50 nM por poço. Todos os experimentos de transfeção foram repetidos independentemente pelo menos 5 vezes, com 3 réplicas paralelas por experimento independente. Os dados foram analisados estatisticamente utilizando os resultados de pelo menos 5 experimentos independentes.
3. ELISA
Os sobrenadantes culturais de células BV2 transfectadas e estimuladas com LPS foram coletados por centrifugação a 12.000 × g durante 10 min, e os níveis de interleucina-1β (IL-1β), IL-6 e fator de necrose tumoral-α (TNF-α) foram medidos utilizando os kits de ELISA correspondentes. Resumidamente, o ensaio foi realizado por incubação sequencial com um anticorpo biotinilado, um conjugado de estreptavidina-HRP e um substrato TMB, de acordo com as instruções do fabricante. A absorbância foi registrada a 450 nm utilizando um leitor de microplacas. Os níveis de citocinas foram determinados a partir de curvas-padrão. Cada amostra foi medida em triplicata, e foram realizados 6 experimentos independentes.
4. Medição de ESP
Os níveis intracelulares de ESP em células BV2 estimuladas com LPS foram medidos utilizando um kit de ensaio de espécies reativas de oxigênio. Resumidamente, as células foram incubadas com 10 µmol/L de DCFH-DA a 37 °C por 20 min. Após a incubação, o sobrenadante foi descartado e as células foram lavadas 3 vezes com solução salina tamponada com fosfato (PBS) para remover o excesso de sonda extracelular. A intensidade da fluorescência foi medida utilizando um leitor de microplacas com comprimentos de onda de excitação e emissão de 488 nm e 525 nm, respectivamente. Os níveis relativos de ESP foram calculados com base na intensidade da fluorescência. Todas as amostras foram analisadas em triplicata, e todo o experimento foi repetido independentemente pelo menos 5 vezes.
5. Detecção de malondialdeído, superóxido dismutase e glutationa
As células BV2 tratadas foram coletadas e os homogeneizados celulares foram preparados. As amostras foram centrifugadas a 12.000 × g durante 10 min a 4 °C para obtenção do sobrenadante. Kits comerciais de detecção para malondialdeído (MDA), superóxido dismutase (SOD) e glutationa (GSH) foram utilizados de acordo com as instruções do fabricante para determinar seus níveis nos sobrenadantes celulares. Todas as amostras foram analisadas em triplicata e todo o experimento foi repetido independentemente pelo menos 5 vezes.
6. Ensaio de repórter dual-luciferase
Fragmentos da região não traduzida 3' (3' UTR) de LINC00707 e TRAF6 contendo os sítios de ligação previstos para miR-145-5p, juntamente com as sequências mutantes correspondentes, foram clonados no vetor repórter de luciferase pmirGLO para gerar construtos repórter do tipo selvagem (WT-LINC00707 e WT-TRAF6) e mutantes (MUT-LINC00707 e MUT-TRAF6). Células BV2 foram co-transfectadas com os construtos repórter e oligonucleotídeos de miR-145-5p e cultivadas por 24 h. Em seguida, as células foram coletadas e as atividades de luciferase de firefly e Renilla foram medidas utilizando um leitor de microplacas.
7. RT-qPCR
O RNA total foi extraído utilizando um reagente de extração de RNA. A qualidade do RNA foi avaliada pelo índice OD₂₆₀/OD₂₈₀, considerando-se aceitáveis valores entre 1,8 e 2,0. Aproximadamente 1 µg de RNA total foi transcrito reversamente em cDNA utilizando um kit de transcrição reversa. A expressão gênica foi quantificada por RT-qPCR utilizando uma mistura mestra de PCR com SYBR Green. A transcrição reversa foi realizada a 42 °C por 15 min, seguida pela inativação da transcriptase reversa a 95 °C por 3 min. O cDNA sintetizado foi armazenado a −20 °C até a análise. A PCR em tempo real quantitativa foi realizada com uma etapa de pré-desnaturação a 95 °C por 1 min, seguida por 40 ciclos de desnaturação a 95 °C por 5 s e hibridização e extensão a 60 °C por 15 s. Os sinais de fluorescência foram coletados ao final de cada etapa de hibridização e extensão. A análise da curva de dissociação foi realizada a 95 °C por 15 s, seguida por 60 °C por 1 min. Os níveis relativos de expressão foram calculados utilizando o método 2⁻ΔΔCt. GAPDH ou 5S foi utilizado como referência interna para normalização da expressão gênica. As sequências dos iniciadores foram as seguintes: LINC00707, sentido 5'-CCAACAGGGTATCAGAATTCTC-3' e antissentido 5'-TGCTGACAATAGCCATTAGG-3'; miR-145-5p, sentido 5'-GCCGAGGTCCAGTTTTCCCA-3' e antissentido 5'-CTCAACTGGTGTCGTGGA-3'; TRAF6, sentido 5'-ATTACAACTGAGGTGCTTCT-3' e antissentido 5'-GCATCTGGTTCTGTTATAGGA-3'; GAPDH, sentido 5'-ATCCCATCACCATCTTCCAGG-3' e antissentido 5'-CGCCCCACTTGATTTTGG-3'; e 5S, sentido 5'-TCGTCTGATCTCGGAAGCTAA-3' e antissentido 5'-AAGCCTACAGCACCCGGTAT-3'.
8. Análise estatística
As análises estatísticas foram realizadas utilizando software estatístico. A normalidade da distribuição dos dados foi avaliada pelo teste de Shapiro-Wilk, com P > 0,05 indicando distribuição normal. Os dados com distribuição normal foram apresentados como média ± DP, enquanto os dados com distribuição não normal foram apresentados como mediana (P25, P75). Para variáveis contínuas com distribuição normal, comparações entre dois grupos foram realizadas utilizando o teste t de Student, e comparações entre múltiplos grupos foram realizadas utilizando ANOVA a um critério seguida pelo teste post hoc de Tukey. Para dados com distribuição não normal, o teste de Mann-Whitney U foi utilizado para comparações entre dois grupos, e o teste de Kruskal-Wallis foi utilizado para comparações entre múltiplos grupos. O teste qui-quadrado foi utilizado para analisar variáveis categóricas entre grupos. Análises de regressão logística univariada e multivariada foram utilizadas para avaliar fatores clínicos associados à expressão de LINC00707. As variáveis contínuas foram dicotomizadas na mediana da coorte (grupo de valor alto = 1; grupo de valor baixo = 0). As variáveis com P < 0,05 na análise de regressão logística univariada foram incluídas na análise de regressão logística multivariada. Os resultados foram apresentados como razões de chances (ORs) com intervalos de confiança de 95% (ICs), em que OR > 1 indicava uma associação positiva e OR < 1 indicava uma associação negativa. Todos os experimentos de fenótipo celular incluíram pelo menos 4 réplicas biológicas independentes, com 3 réplicas técnicas por réplica biológica. P < 0,05 foi considerado estatisticamente significativo.
Resultados
Os níveis plasmáticos de LINC00707 estavam elevados em pacientes com LME
As características clínicas basais de 30 indivíduos saudáveis e 75 pacientes com LME foram analisadas. Em comparação com indivíduos saudáveis, os pacientes com LME apresentaram pontuações significativamente mais baixas de sensação tátil, acmestesia, motricidade e Medida de Independência Funcional (MIF), indicando comprometimento das funções sensorial e motora. Além disso, os níveis séricos de citocinas pró-inflamatórias foram significativamente mais elevados em pacientes com LME do que nos controles saudáveis (Tabela 1, P < 0,001), sugerindo uma resposta inflamatória acentuada.
| Itens | HS | LE | P-valor |
| (n=30) | (n=75) | ||
| Idade (anos) | 45,83±10,06 | 46,17±9,92 | 0,786 |
| IMC (kg/m2) | 22,82±1,57 | 23,94±1,29 | 0,69 |
| Gênero (homens, n) | 18 | 41 | 0,619 |
| Fumantes (n) | 11 | 28 | 0,949 |
| Consumo de álcool (n) | 14 | 33 | 0,804 |
| Classificação ASIA da LE (n) | / | ||
| LE completa | / | 18 | |
| LE incompleta | / | 36 | |
| Função neural normal | / | 21 | |
| Nível da lesão medular (n, %) | / | ||
| Vértebra cervical | / | 27 (36,0%) | |
| Vértebra torácica | / | 23 (30,7%) | |
| Vértebra lombar | / | 25 (33,3%) | |
| Pontuação de sensação tátil | / | 53,42±22,12 | |
| Pontuação de acmestesia | / | 53,39±24,68 | |
| Pontuação de exercício | / | 49,07±18,74 | |
| Pontuação da Medida de Independência Funcional | / | 71,33±19,41 | |
| IL-1β (pg/mL) | 1,47±0,52 | 52,21±11,32 | <0,001 |
| IL-6 (pg/mL) | 2,14±0,97 | 88,47±23,52 | <0,001 |
| TNF-α (pg/mL) | 2,84±1,13 | 61,09±18,24 | <0,001 |
| PCR (mg/L) | 1,42±0,63 | 62,67±21,85 | <0,001 |
| Abreviações: HS, indivíduo saudável; LE, lesão medular; IMC, índice de massa corporal; ASIA, Associação Americana de Lesão Medular; FIM, Medida de Independência Funcional; IL, interleucina; TNF, fator de necrose tumoral; PCR, proteína C reativa. | |||
Tabela 1: Comparação das características clínicas basais entre indivíduos saudáveis e pacientes com lesão medular. Esta tabela compara as características demográficas, escores de função neurológica, variáveis relacionadas à lesão e níveis de marcadores inflamatórios entre indivíduos saudáveis e pacientes com lesão medular. Abreviaturas: HS, indivíduos saudáveis; SCI, lesão medular; ASIA, Associação Americana de Lesão Medular; FIM, Medida de Independência Funcional; IL, interleucina; TNF, fator de necrose tumoral; PCR, proteína C reativa.
A expressão plasmática de LINC00707 foi quantificada utilizando RT-qPCR. Em comparação com indivíduos saudáveis, pacientes com LME apresentaram expressão plasmática de LINC00707 significativamente aumentada (Figura 1A, P < 0,001). A análise da curva característica de operação do receptor (ROC) forneceu evidências preliminares de que a expressão de LINC00707 poderia ter algum valor discriminatório para diferenciar pacientes com LME de indivíduos saudáveis (Figura 1B). Além disso, a expressão plasmática de LINC00707 aumentou com a gravidade clínica crescente da LME (Figura 1C, P < 0,001). A análise de correlação mostrou que a expressão plasmática de LINC00707 estava positivamente associada aos níveis de IL-1β (r = 0,635, P < 0,001), IL-6 (r = 0,612, P < 0,001), TNF-α (r = 0,675, P < 0,001) e proteína C-reativa (PCR; r = 0,611, P < 0,001) (Figura 1D–G). Esses achados sugerem que a expressão elevada de LINC00707 está associada às respostas inflamatórias em pacientes com LME.
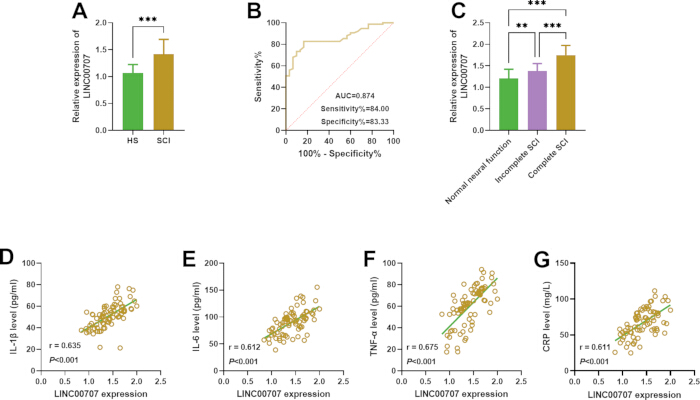
Figura 1: Expressão plasmática de LINC00707 e suas correlações com fatores inflamatórios plasmáticos. (A) A expressão plasmática de LINC00707 foi maior em pacientes com lesão medular (SCI) do que em indivíduos saudáveis. A análise estatística foi realizada utilizando o teste t para amostras independentes. (B) A análise da curva característica de operação do receptor (ROC) forneceu uma indicação inicial de que a expressão de LINC00707 pode ser útil para distinguir pacientes com SCI de indivíduos saudáveis. (C) A expressão plasmática de LINC00707 aumentou com a gravidade crescente da SCI de acordo com a classificação da American Spinal Injury Association (ASIA). A análise estatística foi realizada utilizando ANOVA de um fator seguida pelo teste post hoc de Tukey HSD. (D–G) A expressão plasmática de LINC00707 apresentou correlação positiva com os níveis dos fatores inflamatórios. A análise estatística foi realizada utilizando a análise de correlação de Pearson. *P < 0,01 e **P < 0,001. Indivíduos saudáveis, n = 30; pacientes com SCI, n = 75. Os dados são apresentados como média ± DP. Clique aqui para visualizar uma versão maior desta figura.
Os fatores associados à expressão de LINC00707 foram analisados utilizando regressão logística univariada e multivariada
Foram realizadas análises de regressão logística univariada e multivariada para identificar fatores associados à expressão de LINC00707. A análise univariada mostrou que a classificação ASIA da LME (OR = 3,912, IC 95%: 1,792–8,537, P < 0,001), escore FIM (OR = 0,281, IC 95%: 0,108–0,729, P = 0,009) e nível de PCR (OR = 4,600, IC 95%: 1,724–12,271, P = 0,002) estavam associados à expressão de LINC00707. Após ajuste para variáveis de confusão potenciais, a regressão logística multivariada mostrou que a classificação ASIA da LME (OR = 2,598, IC 95%: 1,088–6,203, P = 0,032), escore FIM (OR = 0,303, IC 95%: 0,102–0,902, P = 0,032) e nível de PCR (OR = 3,202, IC 95%: 1,024–10,015, P = 0,045) foram fatores independentes associados à expressão de LINC00707 (Tabela 2). Uma classificação ASIA mais grave e níveis elevados de PCR estavam associados a uma expressão maior de LINC00707, enquanto um escore FIM mais alto estava associado a uma expressão menor de LINC00707. Essas associações reforçam a possibilidade de que LINC00707 esteja envolvido no processo patológico da LME.
| Itens | Análise de regressão univariada | Análise de regressão multivariada | ||||
| OR | IC 95% | Valor P | OR | IC 95% | Valor P | |
| Idade | 1.176 | 0.475-2.914 | 0.725 | |||
| Gênero | 1.303 | 0.524-3.240 | 0.57 | |||
| Classificação ASIA da LES | 3.912 | 1.792-8.537 | <0.001 | 2.598 | 1.088-6.203 | 0.032 |
| Classificação ASIA da LES | 0.588 | 0.497-1.480 | 0.582 | |||
| Pontuação da sensação tátil | 0.85 | 0.343-2.105 | 0.725 | |||
| Pontuação da acmestesia | 0.854 | 0.345-2.119 | 0.734 | |||
| Pontuação do exercício | 0.392 | 0.153-1.006 | 0.051 | |||
| Pontuação FIM | 0.281 | 0.108-0.729 | 0.009 | 0.303 | 0.102-0.902 | 0.032 |
| IL-1β | 1.181 | 0.475-2.935 | 0.72 | |||
| IL-6 | 1.453 | 0.585-3.608 | 0.42 | |||
| TNF-α | 1.304 | 0.526-3.233 | 0.567 | |||
| PCR | 4.6 | 1.724-12.271 | 0.002 | 3.202 | 1.024-10.015 | 0.045 |
| Abreviações: OR, Razão de chances; IC, intervalo de confiança; ASIA, Associação Americana de Lesão Medular; FIM, Medida de independência funcional; IL, Interleucina; TNF, Fator de necrose tumoral; PCR, Proteína C-reativa. | ||||||
Tabela 2: Análise de regressão logística de fatores associados à expressão de LINC00707. Esta tabela apresenta as análises de regressão logística univariada e multivariada utilizadas para identificar fatores clínicos associados à expressão de LINC00707 em pacientes com lesão medular. Os resultados são apresentados como razões de chances com intervalos de confiança de 95% e valores P correspondentes. Abreviações: OR, razão de chances; CI, intervalo de confiança; ASIA, Associação Americana de Lesão Medular; FIM, Medida de Independência Funcional; IL, interleucina; TNF, fator de necrose tumoral; PCR, proteína C-reativa.
A diminuição de LINC00707 atenuou a inflamação e o estresse oxidativo em células BV2 estimuladas com LPS
As células BV2 foram tratadas com concentrações crescentes de LPS (0, 10, 20, 50, 100, 150 ou 200 ng/mL). A análise por RT-qPCR mostrou que a expressão de LINC00707 aumentou significativamente após o tratamento com 100, 150 e 200 ng/mL de LPS (Figura 2A, P < 0,001, n = 6). Com base nesses resultados e em relatos anteriores27˒28, optou-se por utilizar LPS na concentração de 100 ng/mL para estabelecer o modelo in vitro de LME. Em comparação com o grupo controle, a expressão de LINC00707 foi significativamente aumentada nas células BV2 estimuladas com LPS. A transfeção com si-LINC00707 suprimiu efetivamente a expressão de LINC00707 (Figura 2B, P < 0,001, n = 6).
Os efeitos do silenciamento de LINC00707 sobre a inflamação e o estresse oxidativo foram subsequentemente avaliados. A estimulação com LPS aumentou significativamente a secreção de IL-1β (Figura 2C, P < 0,001, n = 5), IL-6 (Figura 2D, P < 0,001, n = 5) e TNF-α (Figura 2E, P < 0,001, n = 5), bem como os níveis intracelulares de ERO (Figura 2F, P < 0,001, n = 6) e o conteúdo de MDA (Figura 2G, P < 0,001, n = 5). Em contraste, a estimulação com LPS reduziu significativamente os níveis dos marcadores antioxidantes SOD (Figura 2H, P < 0,001, n = 6) e GSH (Figura 2I, P < 0,001, n = 5). O silenciamento de LINC00707 reduziu significativamente a secreção de citocinas pró-inflamatórias e os níveis de marcadores de estresse pró-oxidativo, ao mesmo tempo que restaurou os níveis antioxidantes em células BV2 estimuladas com LPS. Esses achados indicam que o silenciamento de LINC00707 atenua as respostas inflamatórias induzidas por LPS e o estresse oxidativo em células BV2.
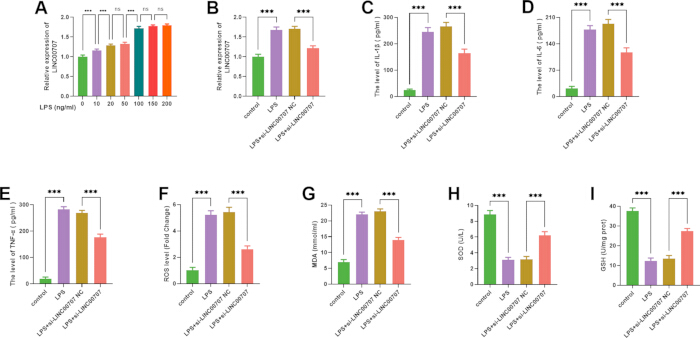
Figura 2: Efeitos do silenciamento de LINC00707 na inflamação e no estresse oxidativo em células BV2 estimuladas por LPS. Células BV2 foram estimuladas com 100 ng/mL de lipopolissacarídeo (LPS). (A) A expressão de LINC00707 foi medida por RT-qPCR em células BV2 tratadas com diferentes concentrações de LPS. (B) A expressão de LINC00707 aumentou no grupo tratado com LPS e reduziu após transfeção com si-LINC00707. (C–E) O ELISA mostrou que a secreção de fatores pró-inflamatórios aumentou no grupo LPS e diminuiu após o silenciamento de LINC00707. (F–G) Os níveis de espécies reativas de oxigênio (ROS) e o conteúdo de malondialdeído (MDA) aumentaram no grupo LPS e diminuíram após o silenciamento de LINC00707. (H–I) A atividade da enzima superóxido dismutase (SOD) e os níveis de glutationa reduzida (GSH) diminuíram no grupo LPS e aumentaram após o silenciamento de LINC00707. **P < 0,001; ns, não significativo. n ≥ 5. As análises estatísticas foram realizadas utilizando ANOVA de um fator seguida pelo teste post hoc de Tukey’s HSD. Os dados são apresentados como média ± DP. Clique aqui para visualizar uma versão maior desta figura.
LINC00707 atua como uma esponja molecular para o miR-145-5p
Para investigar o mecanismo molecular subjacente à função biológica do LINC00707, utilizou-se o banco de dados ENCORI para prever miRNAs-alvo potenciais. A análise bioinformática identificou sequências de ligação complementares entre o LINC00707 e o miR-145-5p (Figura 3A). Ensaios de repórter de dupla luciferase mostraram que a atividade de luciferase no construto WT-LINC00707 foi significativamente reduzida pelo mimetizador do miR-145-5p e aumentada pelo inibidor do miR-145-5p. Em contraste, nenhum dos tratamentos afetou a atividade de luciferase no construto MUT-LINC00707 (Figura 3B, P < 0,001, n = 4), confirmando a interação direta entre o LINC00707 e o miR-145-5p.
A análise por RT-qPCR mostrou que a expressão do miR-145-5p no plasma estava significativamente reduzida em pacientes com LME em comparação com indivíduos saudáveis (Figura 3C, P < 0,001). Além disso, a expressão de LINC00707 apresentou correlação negativa com a expressão do miR-145-5p (Figura 3D, P < 0,001), e os níveis plasmáticos de miR-145-5p diminuíram progressivamente com o aumento da gravidade da LME (Figura 3E, P < 0,001). In vitro, a expressão do miR-145-5p foi significativamente reduzida em células BV2 estimuladas com LPS em comparação com as células controle, enquanto o silenciamento de LINC00707 restaurou a expressão do miR-145-5p (Figura 3F, P < 0,001, n = 6). Esses achados sugerem que LINC00707 atua como um RNA endógeno competidor (ceRNA) ao sequestrar o miR-145-5p e, assim, regular sua expressão durante a progressão patológica da LME.
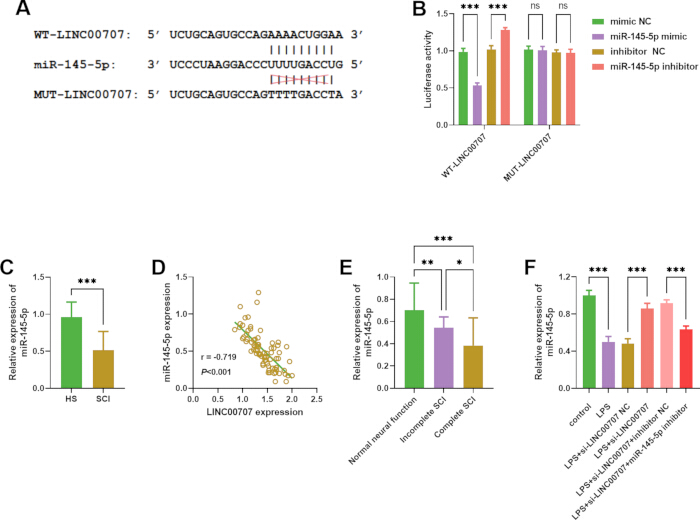
Figura 3. O LINC00707 atua como uma esponja molecular para o miR-145-5p. (A) O banco de dados ENCORI previu sequências de ligação complementares entre LINC00707 e miR-145-5p. (B) Um ensaio de repórter duplo com luciferase confirmou a interação entre LINC00707 e miR-145-5p. A análise estatística foi realizada utilizando ANOVA de dois fatores, seguida pelo teste post hoc de Tukey HSD. (C) A RT-qPCR mostrou que a expressão plasmática de miR-145-5p estava reduzida em pacientes com lesão medular. A análise estatística foi realizada utilizando o teste t para amostras independentes. (D) A expressão de LINC00707 foi negativamente correlacionada com a expressão de miR-145-5p em pacientes com lesão medular. A análise estatística foi realizada utilizando análise de correlação de Pearson. (E) A expressão plasmática de miR-145-5p diminuiu com o aumento da gravidade da lesão medular (SCI) de acordo com a classificação ASIA. A análise estatística foi realizada utilizando ANOVA unifatorial seguida pelo teste post hoc de Tukey HSD. (F) A expressão de miR-145-5p foi reduzida no grupo LPS, aumentada após transfeção com si-LINC00707 e diminuída após transfeção com o inibidor de miR-145-5p. A análise estatística foi realizado utilizando ANOVA de um fator seguida pelo teste post hoc de Tukey HSD. P < 0,05, *P < 0,01 e **P < 0,001; ns, não significativo. Sujeitos saudáveis, n = 30; pacientes com LME, n = 75; experimentos com células, n ≥ 4. Os dados são apresentados como média ± DP. Clique aqui para visualizar uma versão maior desta figura.
A inibição de miR-145-5p acentuou a inflamação e o estresse oxidativo em células BV2 estimuladas com LPS
Para investigar o papel de miR-145-5p, as células BV2 foram transfectadas com um inibidor de miR-145-5p ou o respectivo controle negativo. Os níveis de citocinas inflamatórias e marcadores de estresse oxidativo foram posteriormente avaliados. Em comparação com o grupo controle negativo do inibidor, a inibição de miR-145-5p aumentou significativamente a secreção de IL-1β (Figura 4A, P < 0,001, n = 5), IL-6 (Figura 4B, P < 0,001, n = 5) e TNF-α (Figura 4C, P < 0,001, n = 5). Além disso, os níveis intracelulares de ERO (Figura 4D, P < 0,001, n = 6) e o conteúdo de MDA (Figura 4E, P < 0,001, n = 5) aumentaram significativamente, enquanto os níveis de SOD (Figura 4F, P < 0,001, n = 6) e GSH (Figura 4G, P < 0,001, n = 5) diminuíram significativamente. Esses achados indicam que a inibição de miR-145-5p reverte os efeitos protetores do silenciamento de LINC00707 sobre a inflamação e o estresse oxidativo induzidos por LPS em células BV2.
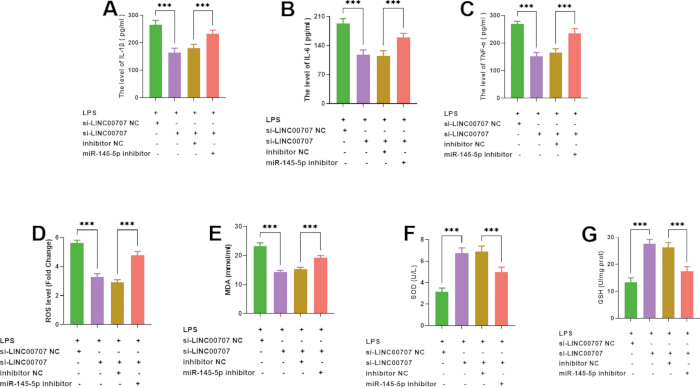
Figura 4: Efeitos da inibição do miR-145-5p na inflamação e no estresse oxidativo em células BV2. (A–C) O ensaio imunoenzimático (ELISA) mostrou que a secreção de fatores pró-inflamatórios foi significativamente aumentada após a transfeção com o inibidor do miR-145-5p. (D–E) Os níveis de espécies reativas de oxigênio (ROS) e o conteúdo de malondialdeído (MDA) foram significativamente aumentados após a transfeção com o inibidor do miR-145-5p. (F–G) A atividade da enzima superóxido dismutase (SOD) e os níveis de glutationa (GSH) foram significativamente reduzidos após a transfeção com o inibidor do miR-145-5p. **P < 0,001. n ≥ 5. As análises estatísticas foram realizadas utilizando ANOVA unidirecional seguida pelo teste post hoc de Tukey’s HSD. Os dados são apresentados como média ± DP. Clique aqui para visualizar uma versão maior desta figura.
TRAF6 foi identificado como um gene alvo do miR-145-5p
O banco de dados miRDB previu TRAF6 como um alvo potencial do miR-145-5p. Foram identificadas sequências de ligação complementares entre a região UTR 3′ de TRAF6 e o miR-145-5p (Figura 5A). Ensaios de repórter de dupla luciferase mostraram que a atividade de luciferase no construto WT-TRAF6 foi significativamente reduzida pelo mimetizador do miR-145-5p e aumentada pelo inibidor do miR-145-5p. Em contraste, nenhum dos tratamentos afetou a atividade de luciferase no construto MUT-TRAF6 (Figura 5B, P < 0,001, n = 4), confirmando que TRAF6 é um alvo direto do miR-145-5p.
A análise por RT-qPCR mostrou que a expressão de mRNA de TRAF6 no plasma foi significativamente aumentada em pacientes com LME (Figura 5C, P < 0,001). A expressão de TRAF6 apresentou correlação negativa com a expressão de miR-145-5p (Figura 5D, P < 0,001), e os níveis plasmáticos de mRNA de TRAF6 aumentaram com a gravidade da LME (Figura 5E, P < 0,001). In vitro, a expressão de TRAF6 foi significativamente aumentada em células BV2 estimuladas com LPS em comparação com o grupo controle, mas foi significativamente reduzida após o silenciamento de LINC00707 (Figura 5F, P < 0,001, n = 6). Por outro lado, a inibição de miR-145-5p restaurou a expressão de TRAF6 (Figura 5G, P < 0,001, n = 6). Esses achados indicam que LINC00707 regula a expressão de TRAF6 por meio da via de sinalização de miR-145-5p.
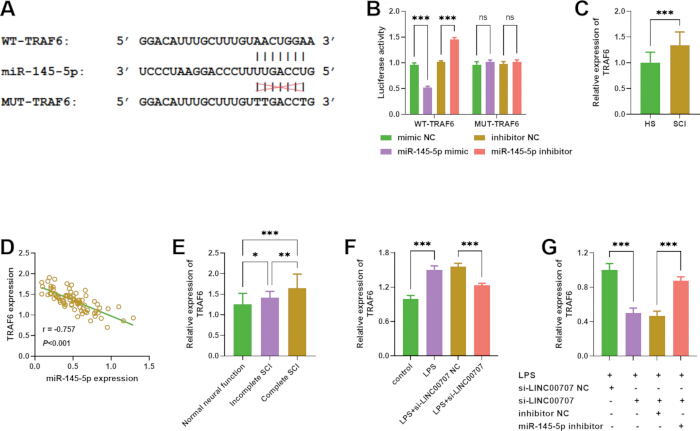
Figura 5: TRAF6 é um gene alvo de miR-145-5p. (A) O banco de dados miRDB previu sequências de ligação complementares entre TRAF6 e miR-145-5p. (B) Um ensaio de repórter de dupla luciferase confirmou a relação de direcionamento entre TRAF6 e miR-145-5p. A análise estatística foi realizada utilizando ANOVA de dois fatores, seguida pelo teste post hoc de Tukey’s HSD. (C) A RT-qPCR mostrou que a expressão plasmática de TRAF6 estava elevada em pacientes com LME. A análise estatística foi realizada utilizando o teste t para amostras independentes. (D) A expressão de TRAF6 no plasma apresentou correlação negativa com a expressão plasmática de miR-145-5p em pacientes com LME. A análise estatística foi realizada utilizando análise de correlação de Pearson. (E) A expressão plasmática de TRAF6 aumentou com o aumento da gravidade da LME de acordo com a classificação ASIA. A análise estatística foi realizada utilizando ANOVA de um fator, seguida pelo teste post hoc de Tukey’s HSD. (F) A expressão de TRAF6 aumentou em células BV2 estimuladas com LPS e reduziu após o silenciamento de LINC00707. A análise estatística foi realizada utilizando ANOVA de um fator, seguida pelo teste post hoc de Tukey’s HSD. (G) A expressão de TRAF6 aumentou após a inibição de miR-145-5p. A análise estatística foi realizada utilizando ANOVA de um fator, seguida pelo teste post hoc de Tukey’s HSD. P < 0,05, *P < 0,01 e **P < 0,001; ns, não significativo. Indivíduos saudáveis, n = 30; pacientes com LME, n = 75; experimentos em células, n ≥ 4. Os dados são apresentados como média ± DP. Clique aqui para visualizar uma versão maior desta figura.
DISPONIBILIDADE DE DADOS:
Os conjuntos de dados gerados e/ou analisados no presente estudo estão disponíveis no repositório Zenodo: https://doi.org/10.5281/zenodo.21470454.
Discussão
A lesão medular (SCI) é uma desordem traumática grave do sistema nervoso central que resulta em condução neural prejudicada ou perda completa da condução através da medula espinhal, levando a disfunções motoras, sensoriais e autonômicas ao longo da vida, além de consequências fisiológicas e psicológicas profundas29˒30. A gravidade desses prejuízos geralmente aumenta com a extensão da lesão medular. No presente estudo, a expressão plasmática de LINC00707 estava elevada em pacientes com lesão medular e correlacionou-se positivamente com os níveis circulantes de citocinas pró-inflamatórias, sugerindo um possível papel de LINC00707 na inflamação e estresse oxidativo associados à lesão medular. Com base nesses achados clínicos, investigamos mais a fundo o papel regulador de LINC00707 na inflamação e no estresse oxidativo em células BV2 tratadas com LPS, no contexto da patogênese da lesão medular.
Acredita-se que o LINC00707 esteja envolvido em uma variedade de processos biológicos por meio da regulação de múltiplas vias de sinalização31. Além de regular a proliferação celular, apoptose, migração e invasão, demonstrou-se que o LINC00707 participa de respostas inflamatórias e estresse oxidativo18˒32˒33. Estudos anteriores relataram expressão elevada do LINC00707 em cânceres de pulmão34, mama35, colo do útero36 e fígado37, onde promove a progressão da doença por meio da regulação de alvos moleculares downstream. Além disso, a silenciamento do LINC00707 promove a diferenciação osteogênica de células-tronco mesenquimais da medula óssea por meio da regulação do miR-103a-3p38. Zou et al. demonstraram ainda que o LINC00707 promove respostas inflamatórias induzidas por LPS em células MRC-5, reforçando seu papel pró-inflamatório33. De acordo com esses achados, o presente estudo mostrou que a expressão do LINC00707 aumentou significativamente em células BV2 estimuladas com LPS, enquanto o silenciamento do LINC00707 reduziu a produção de citocinas pró-inflamatórias e marcadores de estresse oxidativo. Esses achados reforçam ainda mais a participação do LINC00707 nas respostas inflamatórias e de estresse oxidativo.
Relatou-se também que o LINC00707 exerce função como RNA endógeno competidor (ceRNA) ao regular o miR-145-5p em diversas condições patológicas, incluindo doença cardíaca reumática39, câncer de bexiga40 e diferenciação osteogênica41. Estudos anteriores demonstraram que o miR-145-5p exerce efeitos protetores na lesão medular (SCI) por meio da supressão da inflamação e do estresse oxidativo42˒43 e pela promoção da angiogênese e da reparação neural44˒45. Em consonância com essas observações, o presente estudo mostrou que a expressão plasmática do miR-145-5p estava reduzida em pacientes com lesão medular e em células BV2 estimuladas com LPS. Confirmou-se ainda que o LINC00707 interage diretamente com o miR-145-5p, e o silenciamento do LINC00707 restaurou a expressão do miR-145-5p. Além disso, a inibição do miR-145-5p reverteu os efeitos protetores do silenciamento do LINC00707 sobre as respostas inflamatórias e o estresse oxidativo. Esses achados sugerem que o LINC00707 pode contribuir para a progressão da lesão medular ao regular as respostas inflamatórias e de estresse oxidativo mediadas pelo miR-145-5p.
Estudos anteriores demonstraram que o TRAF6 desempenha um papel importante em doenças do sistema nervoso central46. Evidências também indicam que a inibição do TRAF6 pode melhorar significativamente a LME47˒48. O presente estudo identificou ainda o TRAF6 como um alvo direto do miR-145-5p. A expressão do TRAF6 aumentou significativamente em pacientes com LME e em células BV2 estimuladas com LPS. Além disso, a diminuição do LINC00707 reduziu a expressão do TRAF6, enquanto a inibição do miR-145-5p restaurou a expressão do TRAF6. Esses achados sugerem que o LINC00707 pode regular a expressão do TRAF6 por meio do miR-145-5p durante a LME.
Este estudo sugere que o LINC00707 pode afetar as respostas inflamatórias mediadas por micróglias e a lesão por estresse oxidativo durante a lesão medular (SCI) por meio da regulação do eixo de sinalização miR-145-5p/TRAF6. Esse achado é consistente com um relato anterior de Zhu et al., que demonstraram que o silenciamento do LINC00707 atenuou a inflamação e a apoptose induzidas por LPS em células PC-12; no entanto, o mecanismo subjacente em seu estudo envolveu o eixo miR-30a-5p/Neurod118. Em conjunto, esses achados sugerem que o LINC00707 pode não atuar por meio de um único alvo de miRNA, mas sim por meio de redes distintas de miRNAs de maneira dependente do tipo celular, contribuindo assim para os processos patológicos da lesão medular (SCI).
Este estudo apresenta várias limitações. Primeiramente, apenas a expressão do mRNA do TRAF6 foi avaliada, enquanto a expressão proteica não foi examinada. Estudos futuros devem incluir a validação em nível proteico, como análise por Western blot, para caracterizar melhor a relação regulatória entre LINC00707, miR-145-5p e TRAF6. Em segundo lugar, este estudo foi conduzido exclusivamente em nível celular, utilizando um modelo de micróglia BV2 estimulada por LPS, sem validação in vivo. Dada a complexidade do microambiente da lesão medular (SCI), os achados atuais podem não recapitular plenamente as condições fisiopatológicas in vivo. Ainda permanece por confirmar se o LINC00707 exerce efeitos pró-inflamatórios semelhantes em modelos animais de SCI. Estudos futuros deverão estabelecer modelos animais de SCI para validar o papel regulatório do LINC00707 e seus mecanismos moleculares subjacentes. Terceiro, embora nossos resultados indiquem que o LINC00707 age por meio da via de sinalização miR-145-5p/TRAF6 para influenciar a inflamação, permanece desconhecido se o LINC00707 atua exclusivamente como esponja para miRNAs específicos ou também se liga diretamente a certas proteínas. Estudos adicionais são necessários para esclarecer esses detalhes mecanicistas. Quarto, a análise da curva ROC foi baseada em dados de um único centro médico e um número relativamente pequeno de pacientes. Isso pode ter introduzido viés, tornando os achados preliminares. São necessários estudos multicêntricos maiores, com maior número de pacientes, para confirmar o potencial diagnóstico dos biomarcadores identificados.
Os achados deste estudo sugerem que o LINC00707 pode representar um potencial biomarcador plasmático exploratório e alvo terapêutico para a lesão medular (SCI). No entanto, a tradução desses achados para aplicações clínicas exigirá várias etapas adicionais. Primeiro, o valor discriminatório potencial do LINC00707 plasmático deve ser avaliado em grandes coortes multicêntricas, coortes de validação independentes e grupos controle relevantes de trauma ou inflamação. A avaliação clínica e o exame radiológico permanecem as abordagens principais para o diagnóstico da lesão medular. Segundo, o potencial terapêutico do direcionamento do LINC00707 deve ser avaliado em modelos animais para analisar sua eficácia e segurança. Em última instância, a modulação da sinalização LINC00707/miR-145-5p/TRAF6 pode oferecer uma abordagem inovadora para atenuar a neuroinflamação e o estresse oxidativo em pacientes com lesão medular, embora ainda seja necessário um trabalho substancial para superar a lacuna entre a bancada e a clínica.
No geral, as expressões plasmáticas de LINC00707 e TRAF6 estavam aumentadas, enquanto a expressão de miR-145-5p estava diminuída, em pacientes com LME e em células BV2 estimuladas com LPS. A supressão de LINC00707 atenuou as respostas inflamatórias e o estresse oxidativo por meio do eixo de sinalização miR-145-5p/TRAF6, sugerindo que essa via regulatória pode representar um alvo terapêutico potencial para LME.
Divulgações
Os autores declaram que não possuem interesses concorrentes.
Agradecimentos
Este trabalho foi apoiado pelo Projeto de Pesquisa em Ciências Médicas de Hebei (Concessão nº 20251479).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| tubo microcentrífugo de 1,5 mL | KIRGEN | KG2211 | Tubo de polipropileno com tampa de encaixe, livre de DNase/RNase, não pirogênico, força centrífuga máxima de 20.000 × g, para armazenamento e centrifugação de amostras de RNA/proteína. |
| Placa de Cultura Celular de 6 Poços | Corning | 3516 | Placa de poliestireno tratada para cultivo celular, com fundo plano, estéril e individualmente embalada; volume do poço é de 16,8 mL com área de crescimento de 9,5 cm² |
| Agulha para Coleta de Sangue | Becton, Dickinson and Company | 367283 | Agulha descartável para coleta de sangue BD Vacutainer. Projeto de agulha de dupla ponta, com uma extremidade para punção venosa e a outra conectando-se ao suporte e ao tubo a vácuo para coleta em múltiplos tubos. Revestida com silicone para minimizar o desconforto do paciente durante a inserção. |
| Tubos para Coleta de Sangue | Becton, Dickinson and Company | 367605 | Tubos de coleta de sangue a vácuo BD Vacutainer. Tampas codificadas por cores diferentes indicam vários aditivos, correspondentes a testes laboratoriais específicos. |
| Linha celular imortalizada de micróglia de camundongo BV2 | Centro de Recursos Celulares do Instituto de Biotecnologia de Xangai | RRID: CVCL_0182 | Linhagem celular imortalizada de micróglias murinas que expressa de forma estável marcadores específicos de micróglias (Iba1, CD11b, F4/80). Após estimulação com LPS, as células BV2 secretam citocinas pró-inflamatórias (IL-1β, IL-6, TNF-α) e acumulam ROS intracelular, MDA para simular a ativação inflamatória de micróglias in vivo após lesão medular. As células são cultivadas em DMEM com alta concentração de glicose suplementado com 10% de FBS e 1× penicilina-estreptomicina, mantido a 37 °C com 5% CO2 incubadora umidificada; repassadas ao atingir 70% de confluência–80% de confluência para evitar superativação. |
| Kit de Ensaio de Malondialdeído (MDA) Celular | Nanjing Jiancheng Bioengineering Institute | A003-4-2 | Kit colorimétrico baseado em microplacas para detecção quantitativa de malondialdeído celular, um marcador de peroxidação lipídica. O MDA reage com ácido tiobarbitúrico (TBA) sob aquecimento, formando adutos vermelhos; a absorbância é detectada a 532 nm em espectrofotômetro de microplacas. Otimizado para amostras de lisados celulares, operação em alto rendimento em placas de 96 poços, faixa linear de quantificação abrange níveis baixos a moderados de oxidação lipídica em micróglia. |
| CO2 incubadora | Thermo Scientific | 3111 | CO₂ com jaqueta de água umidificada2 incubadora com volume interno de 184 L, CO₂ por IR2 sensor, sistema de filtração de ar HEPA para minimizar a contaminação microbiana. Mantém um ambiente de cultura estável em 37 °C, 5% CO₂2 e umidade saturada para cultivo de células aderentes de longo prazo. |
| Kit de Ensaio de Gene Repórter de Luciferase Dupla | Beyotime Biotechnology | RG028 | Este kit de dupla luciferase permite a detecção quantitativa sequencial da luciferase de vaga-lume e da luciferase de Renilla em lisados celulares. Primeiro, o sinal da luciferase de vaga-lume é medido utilizando o substrato luciferina; o reagente subsequente de detecção de Renilla contém um potente quenching que elimina >99,9% de luminiscência residual de luciferase de vaga-lume, garantindo leitura pura do sinal de Renilla com o substrato coelenterazina. O kit inclui tampão de lise celular dedicado para lise de células aderentes, compatível com luminômetro de microplaca de 96 poços. O reagente de luciferase de vaga-lume é um líquido pré-misturado para uso direto; os valores de luminiscência de vaga-lume e Renilla são registrados sequencialmente para calcular a atividade relativa normalizada da luciferase (razão vaga-lume/Renilla) na validação de alvos de ceRNA. |
| Meio Essencial Modificado de Dulbecco | Gibco | 11995065 | O DMEM é um meio basal amplamente utilizado para sustentar o crescimento de diversos tipos de células de mamíferos. Esta formulação contém glicose alta, L-glutamina, vermelho de fenol e piruvato de sódio. Requer suplementação, comumente com 10% de Soro Bovino Fetal (FBS), e 5–10% CO2 ambiente para manter o pH fisiológico. |
| Soro bovino fetal | TODOS OS VERDES | 13011-8611 | SFB de grau premium, baixo teor de endotoxinas, ausência de micoplasma & bacteriófago negativo, suplementado ao DMEM em 10% v/v para suportar o crescimento celular. |
| GraphPad Prism Versão 9 | GraphPad Software, San Diego, CA, EUA | NA | Software especializado em análise estatística e criação de gráficos científicos para dados experimentais de células in vitro. Todos os valores brutos de qPCR, ELISA, estresse oxidativo e absorbância de luminiscência dual-luciferase foram importados para o Prism 9 para realização da verificação de normalidade, comparações paramétricas/não paramétricas entre grupos, geração de todas as figuras quantitativas, cálculo da média ± DP, valores exatos de P e IC de 95%, e exportar figuras de alta resolução (300 dpi) que atendam aos padrões de publicação em periódicos. Os arquivos-fonte originais do projeto .prism de todos os gráficos são depositados no repositório público de dados, conforme exigido. |
| IBM SPSS Statistics Versão 26.0 | IBM Corporation, Armonk, NY, EUA | NA | Pacote abrangente de software estatístico utilizado para classificação de dados basais de amostras clínicas, teste de normalidade (teste de Shapiro-Wilk), teste t independente/não pareado, ANOVA unifatorial com Tukey’correção para múltiplas comparações, teste não paramétrico Mann-Whitney U e cálculo de valores exatos de P e intervalos de confiança de 95% para todos os conjuntos de dados quantitativos humanos e celulares. Todos os dados clínicos, demográficos e laboratoriais dos pacientes foram processados e analisados nesta plataforma. |
| IL-1β Kit SimpleStep ELISA | Abcam | ab255730 | Este kit ELISA colorimétrico sandwich com uma única etapa de lavagem utiliza a tecnologia proprietária SimpleStep, concluindo todo o procedimento de detecção em 90 minutos. Ele quantifica interleucina-1 de rato de forma quantitativaβ em sobrenadantes de cultivo celular, soro e amostras de plasma com EDTA/citrato/heparina. A sensibilidade de detecção atinge 26,58 pg/mL, com faixa de quantificação linear de 54,69–3500 pg/mL. Inclui-se uma microplaca de tiras removíveis pré-revestida com 8 poços. Os sinais de absorbância são detectados a 450 nm por meio de leitor de microplacas para calcular a IL-1β concentração |
| Kit ELISA SimpleStep para IL-6 | Abcam | ab234570 | Um kit colorimétrico ELISA SimpleStep em sanduíche otimizado para a detecção quantitativa da interleucina-6 (IL-6) de rato em sobrenadantes de cultivo celular, soro e amostras de plasma com citrato/EDTA/heparina. Adota um protocolo de incubação em um único passo e uma única lavagem, reduzindo o tempo total do ensaio para 90 minutos, com sensibilidade de detecção de 43 pg/mL e faixa linear de quantificação de 125 pg/mL a 8000 pg/mL. Inclui uma microplaca pré-revestida com tiras quebráveis de 8 poços; os valores de absorbância são lidos a 450 nm utilizando um espectrofotômetro de microplacas para o cálculo final da concentração de IL-6. |
| Placa Multipoços LightCycler 96, branca | Roche LifeScience, Suíça | 4729692001 | Placas de reação brancas de polipropileno com meia saia, de 96 poços, especialmente otimizadas para o instrumento de PCR em tempo real LightCycler 96. As paredes brancas dos poços reduzem a interferência da fluorescência de fundo e aumentam a reflexão do sinal, melhorando a sensibilidade de detecção para transcritos de baixa abundância. O design uniforme de paredes finas garante condutividade térmica consistente em todos os poços, compatível com volumes de reação variando de 10 a 50 μL. Livre de DNase/RNase e pirogênio para ensaios de amplificação de cDNA derivado de RNA. |
| Reagente de Transfecção LipofectamineTM 3000 | Thermo Fisher Scientific | L3000015 | Reagente de transfeção com nanopartículas lipídicas associado ao potencializador P3000 permite transfeção de siRNA/plasmídeo em microglia BV2 com alta eficiência e baixa citotoxicidade. |
| Kit lnRcute para Síntese de cDNA de Primeiro Fio de lncRNA | TIANGEN | KR202-02 | Este kit é especialmente otimizado para a transcrição reversa de RNAs não codificantes longos (lncRNAs) com baixa abundância, conteúdo variável de GC e estruturas secundárias complexas. Contém um tampão independente para remoção de DNA genômico (gDNA), eliminando a contaminação por DNA genômico antes da transcrição reversa, e uma mistura especializada de iniciadores lnR-RT para enriquecer modelos de lncRNA de comprimento completo. A transcriptase reversa modificada permite a síntese eficiente de cDNA de fita longa a partir de RNA total com entrada variando de 10 ng a 2 ng. |
| Kit de Detecção de lncRNA por qPCR lnRcute (SYBR Green) | TIANGEN | FP402 | Um premix quantitativo dedicado baseado em SYBR Green para a quantificação de lncRNA. A polimerase de DNA com início mediado por anticorpo garante alta especificidade de amplificação; os componentes H-competitor reduzem a interferência da estrutura secundária em moldes de lncRNA com alto teor de GC. Compatível com cDNA gerado a partir do kit de transcrição reversa lnRcute para lncRNA, e adequado para a quantificação da expressão relativa de lncRNA de baixa abundância. |
| oligonucleotídeos de miR-145-5p | Generalbiol (Wuhan, China) | NA | Mimético sintético de miR-145-5p, inibidor e oligonucleotídeos correspondentes de controle negativo utilizados para modular a atividade do miR-145-5p em células BV2. Utilizados em ensaios de expressão, inflamação, estresse oxidativo e repórter de dupla luciferase. |
| miRcute Plus miRNA First-Strand cDNA Kit | TIANGEN | KR211-02 | Adota uma reação combinada de caudalização com poli(A) e transcrição reversa em um único tubo para simplificar o fluxo de trabalho experimental. A mistura enzimática contém poli(A) polimerase de E. coli, transcriptase reversa deficiente em RNase H e inibidor de RNase, que direciona especificamente o miRNA maduro de fita simples e evita interferência na amplificação por pré-miRNA com estruturas em alfinete de cabelo. Indicado para miRNA extraído de lisado celular, plasma e amostras de tecido. |
| Kit de Detecção miRcute Plus miRNA qPCR (SYBR Green) | TIANGEN | FP411 | Pré-mistura SYBR Green otimizada para a quantificação de miRNAs maduros, compatível perfeitamente com os produtos de transcrição reversa miRcute. O sistema de tampão melhora a eficiência de hibridização dos iniciadores para amplicons curtos de miRNA, proporcionando sinais de fluorescência estáveis e alta sensibilidade na detecção de miRNAs fracamente expressos. O snRNA U6 é comumente utilizado como referência interna para normalização. |
| Solução de Penicilina-Estreptomicina (100×) | Beyotime Biotechnology | C0222 | Mistura filtrada estéril contendo 10.000 U/mL de penicilina e 10 mg/mL de estreptomicina; diluição de trabalho 1:100 no meio de cultura para prevenir contaminação bacteriana. |
| Kit de Ensaio para Espécies Reativas de Oxigênio com Diluente | Beyotime Biotechnology | S0034M | Este kit utiliza a sonda fluorescente DCFH-DA para quantificar espécies reativas de oxigênio (ROS) intracelulares. O DCFH-DA atravessa a membrana celular e é hidrolisado pela esterase intracelular em DCFH, o qual é oxidado pelas ROS para gerar DCF fluorescente. Compatível com microplacas de 96 poços e leitor de microplaca por fluorescência para detecção em alto rendimento (Ex = 488 nm, Em = 525 nm). Acompanha diluente específico para a sonda e reagente controle positivo Rosup para estabilizar os sinais de marcação, sendo adequado para a detecção de estresse oxidativo em microglia BV2 aderentes sem lise celular. |
| Kit de Dosagem de Glutationa Reduzida (GSH) | Instituto de Engenharia Bioquímica de Nanjing | A006-1-2 | Kit colorimétrico em microplaca para detecção de glutationa reduzida (GSH), o principal antioxidante intracelular. A GSH reage com ácido ditiobis-nitrobenzoico (DTNB) para produzir um produto cromogênico amarelo, cuja absorbância é medida a 405 nm em leitor de microplacas. O kit adapta o protocolo padrão em tubo para detecção em microplaca de 96 poços de alto rendimento, destinado à análise de antioxidantes em lisados celulares. |
| si-LINC00707 | GenePharma (Xangai, China) | NA | RNA interferente pequeno projetado para reduzir a expressão de LINC00707 em células BV2. Utilizado em experimentos de perda de função para avaliar os efeitos do silenciamento de LINC00707 nas respostas inflamatórias, estresse oxidativo, expressão de miR-145-5p e expressão de TRAF6. |
| si-LINC00707 NC | GenePharma (Xangai, China) | NA | RNA interferente pequeno sem alvo utilizado como controle negativo para a transfeção de si-LINC00707. Utilizado para controlar efeitos inespecíficos do procedimento de transfeção e da exposição ao siRNA. |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | 4992777 | Pré-mistura universal SYBR Green para PCR quantitativa de mRNA em quantificação relativa, contendo polimerase Taq hot-start, dNTPs, SYBR Green I e corante referência ROX para normalização de fluorescência. Baixa amplificação não específica, eficiência de amplificação estável, amplamente aplicada na quantificação de genes-alvo de mRNA (TRAF6, GAPDH etc.). |
| Thermo Scientific™ Sorvall™ ST 8 Centrífuga de Bancada Pequena | Thermo Scientific | 75200709 | A escolha clássica para laboratórios clínicos, capaz de processar até 24 × Tubos de coleta de sangue de 5/7 mL de uma só vez. A série R é uma versão refrigerada, que pode proteger melhor amostras que requerem centrifugação em baixa temperatura. |
| Kit TIANScript II de Síntese de cDNA de Primeira Fita | TIANGEN | GKR107-02 | Projetado para a transcrição reversa geral de mRNA, gerando cDNA de comprimento longo, até 12 kb. Equipado com primers Oligo (dT) 15 e hexâmeros aleatórios, permitindo estratégias flexíveis de iniciação. A transcriptase reversa M-MLV modificada lê eficientemente estruturas secundárias complexas e ricas em GC no mRNA, com ampla compatibilidade para amplificação posterior de mRNA por qPCR. |
| TNF-α Kit SimpleStep ELISA | Abcam | ab236712 | Um kit ELISA sanduíche SimpleStep com lavagem única rápida, otimizado para detecção quantitativa do fator de necrose tumoral de ratoα (TNF-α) em sobrenadante de cultura celular, soro e diversos espécimes de plasma. A duração total do ensaio é de 90 min, com sensibilidade ultraelevada de 1,04 pg/mL e faixa de detecção linear de 15,63 pg/mL a 1000 pg/mL. Equipado com 8 removível×placa pré-revestida de 12 poços; os valores de DO em 450 nm são registrados para o TNF finalα cálculo quantitativo |
| Kit de Dosagem de SOD Total (T-SOD) | Instituto de Engenharia Bioquímica de Nanjing | A001-3-2 | Kit cromogênico em microplaca WST-1 para detecção da atividade enzimática total de SOD. A SOD elimina os radicais ânion superóxido e inibe a reação de redução do WST-1. A absorbância é registrada a 450 nm por meio de leitor de microplacas para o cálculo da atividade. Indicado para amostras de homogeneizado celular, soro e tecidos, com desenvolvimento de cor estável e alta repetibilidade para avaliação da capacidade antioxidante. |
| Reagente TRIzol | Thermo Fisher Scientific | 15596018 | Reagente monofásico de fenol-guanidina isotiocianato para o isolamento em um único passo de RNA total de células de micróglia cultivadas; extrai simultaneamente DNA e proteína das mesmas amostras. |
Referências
- Trueblood CT, Singh A, Cusimano MA, Hou S. Autonomic dysreflexia in spinal cord injury: mechanisms and prospective therapeutic targets. Neuroscientist. 2024;30(5):597-611.
- Anderson MA, Squair JW, Gautier M, Hutson TH, Kathe C, Barraud Q, et al. Natural and targeted circuit reorganization after spinal cord injury. Nat Neurosci. 2022;25(12):1584-96.
- Liu Y, Yang X, He Z, Li J, Li Y, Wu Y, et al. Spinal cord injury: global burden from 1990 to 2019 and projections up to 2030 using Bayesian age-period-cohort analysis. Front Neurol. 2023;14:1304153. doi:10.3389/fneur.2023.1304153.
- Sekhon LH, Fehlings MG. Epidemiology, demographics, and pathophysiology of acute spinal cord injury. Spine (Phila Pa 1976). 2001;26(24 Suppl):S2-12.
- Chan BC, Cadarette SM, Wodchis WP, Krahn MD, Mittmann N. The lifetime cost of spinal cord injury in Ontario, Canada: a population-based study from the perspective of the public health care payer. J Spinal Cord Med. 2019;42(2):184-93.
- Van Broeckhoven J, Sommer D, Dooley D, Hendrix S, Franssen A. Macrophage phagocytosis after spinal cord injury: when friends become foes. Brain. 2021;144(10):2933-45.
- Xiao S, Zhong N, Yang Q, Li A, Tong W, Zhang Y, et al. Aucubin promoted neuron functional recovery by suppressing inflammation and neuronal apoptosis in a spinal cord injury model. Int Immunopharmacol. 2022;111:109163. doi:10.1016/j.intimp.2022.109163.
- Li F, Wang Y, Zheng K. Microglial mitophagy integrates the microbiota-gut-brain axis to restrain neuroinflammation during neurotropic herpesvirus infection. Autophagy. 2023;19(2):734-6.
- Beattie MS. Inflammation and apoptosis: linked therapeutic targets in spinal cord injury. Trends Mol Med. 2004;10(12):580-3.
- Brennan FH, Li Y, Wang C, Ma A, Guo Q, Li Y, et al. Microglia coordinate cellular interactions during spinal cord repair in mice. Nat Commun. 2022;13(1):4096. doi:10.1038/s41467-022-31797-0.
- Kwon HS, Koh SH. Neuroinflammation in neurodegenerative disorders: the roles of microglia and astrocytes. Transl Neurodegener. 2020;9(1):42. doi:10.1186/s40035-020-00221-2.
- Zhong J, Qiu X, Yu Q, Chen H, Yan C. A novel polysaccharide from Acorus tatarinowii protects against LPS-induced neuroinflammation and neurotoxicity by inhibiting TLR4-mediated MyD88/NF-κB and PI3K/Akt signaling pathways. Int J Biol Macromol. 2020;163:464-75.
- Han X, Xu T, Fang Q, Zhang H, Yue L, Hu G, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via .the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010. doi:10.1016/j.redox.2021.102010.
- Simpson DSA, Oliver PL. ROS generation in microglia: understanding oxidative stress and inflammation in neurodegenerative disease. Antioxidants (Basel). 2020;9(8):743. doi:10.3390/antiox9080743.
- Onoguchi-Mizutani R, Akimitsu N. Long noncoding RNA and phase separation in cellular stress response. J Biochem. 2022;171(3):269-76.
- Zhang Y. LncRNA-encoded peptides in cancer. J Hematol Oncol. 2024;17(1):66. doi:10.1186/s13045-024-01591-0.
- Hu W, Zhou J, Jiang Y, Bao Z, Hu X. Silencing of LINC00707 alleviates brain injury by targeting miR-30a-5p to regulate microglia inflammation and apoptosis. Neurochem Res. 2024;49(1):222-33.
- Zhu S, Zhou Z, Li Z, Shao J, Jiao G, Huang YE, et al. Suppression of LINC00707 alleviates lipopolysaccharide-induced inflammation and apoptosis in PC-12 cells by regulating miR-30a-5p/Neurod1. Biosci Biotechnol Biochem. 2019;83(11):2049-56.
- Long J, Lan W, Shen B, Liao F, Cai H, Li J, et al. LncRNA-miRNA-mRNA network in schizophrenia. J Mol Neurosci. 2025;75(3):104.
- De Gasperi R, Graham ZA, Harlow LM, Bauman WA, Qin W, Cardozo CP. The signature of microRNA dysregulation in muscle paralyzed by spinal cord injury includes downregulation of microRNAs that target myostatin signaling. PLoS One. 2016;11(12):e0166189.
- Lin Y, Liu L, Lin Y, Yang R, Liao S, Xu M, et al. MiR-145 alleviates sepsis-induced inflammatory responses and organ injury by targeting ADAM17. Front Biosci (Landmark Ed). 2024;29(1):44. doi:10.31083/j.fbl2901044.
- Wang C, Gu L, Yang Z, Su J, Wen X. Mume Fructus total flavonoids modulate miR-145-3p expression to inhibit lipopolysaccharide-induced inflammatory cytokine production in BV2 cells. Comb Chem High Throughput Screen. 2026;29. doi:http://dx.doi.org/10.2174/0113862073447531260414195911
- Chen S, Wei J, Huang L, Feng B, Guo W. MiRNA-194-5p inhibits inflammatory response after spinal cord injury via .regulating TRAF6. Minerva Med. 2020;111(6):603-6.
- Lu Y, Jiang BC, Cao DL, Zhang ZJ, Zhang X, Ji RR, et al. TRAF6 upregulation in spinal astrocytes maintains neuropathic pain by integrating TNF-α and IL-1β signaling. Pain. 2014;155(12):2618-29.
- Zhao Y, Li T, Zhang L, Yang J, Zhao F, Wang Y, et al. TRAF6 promotes spinal microglial M1 polarization to aggravate neuropathic pain by activating the c-JUN/NF-κB signaling pathway. Cell Biol Toxicol. 2024;40(1):54. doi:10.1007/s10565-024-09900-6.
- Kirshblum SC, Memmo P, Kim N, Campagnolo D, Millis S, American Spinal Injury Association. Comparison of the revised 2000 American Spinal Injury Association classification standards with the 1996 guidelines. Am J Phys Med Rehabil. 2002;81(7):502-5.
- Xue MT, Sheng WJ, Song X, Shi YJ, Geng ZJ, Shen L, et al. Atractylenolide III ameliorates spinal cord injury in rats by modulating microglial/macrophage polarization. CNS Neurosci Ther. 2022;28(7):1059-71.
- Zhang H, Xiang L, Yuan H, Yu H. PTPRO inhibition ameliorates spinal cord injury through shifting microglial M1/M2 polarization via .the NF-κB/STAT6 signaling pathway. Biochim Biophys Acta Mol Basis Dis. 2024;1870(5):167141. doi:10.1016/j.bbadis.2024.167141.
- Eli I, Lerner DP, Ghogawala Z. Acute traumatic spinal cord injury. Neurol Clin. 2021;39(2):471-88.
- Brouwers E, van der Meent H, Curt A, Maier DD, Abel RF, Weidner N, et al. Recovery after traumatic thoracic and lumbar spinal cord injury: the neurological level of injury matters. Spinal Cord. 2020;58(9):980-7.
- Yao Q, Li Z, Chen D. Review of LINC00707: a novel lncRNA and promising biomarker for human diseases. Front Cell Dev Biol. 2022;10:813963. doi:10.3389/fcell.2022.813963.
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Zou X, Gao C, Shang R, Chen H, Wang B. Knockdown of lncRNA LINC00707 alleviates LPS-induced injury in MRC-5 cells by acting as a ceRNA of miR-223-5p. Biosci Biotechnol Biochem. 2021;85(2):315-23.
- Ma T, Ma H, Zou Z, He X, Liu Y, Shuai Y, et al. The long intergenic noncoding RNA 00707 promotes lung adenocarcinoma cell proliferation and migration by regulating Cdc42. Cell Physiol Biochem. 2018;45(4):1566-80.
- Li H, Liu Q, Hu Y, Yin C, Zhang Y, Gao P. LINC00707 regulates autophagy and promotes the progression of triple-negative breast cancer by activation of the PI3K/AKT/mTOR pathway. Cell Death Discov. 2024;10(1):138. doi:10.1038/s41420-024-01906-7.
- Fang F, Guo C, Zheng W, Li Q. LINC00707 promotes cell proliferation in cervical cancer via .the miR-374c-5p/SDC4 axis. Biomed Res Int. 2022;2022:5793912. doi:10.1155/2022/5793912.
- Wei M, Lu L, Ma J, Luo Z, Tan X, Wang J. LINC00707 impairs natural killer cell antitumor activity in hepatocellular carcinoma by decreasing YTHDF2 stability. J Cell Mol Med. 2024;28(5):e18106.
- Liu J, Wu M, Feng G, Li R, Wang Y, Jiao J. Downregulation of LINC00707 promotes osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating DKK1 via .targeting miR-103a-3p. Int J Mol Med. 2020;46(3):1029-38.
- Zhao W, Huang G, Ye J. LINC00707 inhibits myocardial fibrosis and immune disorder in rheumatic heart disease by regulating miR-145-5p/S1PR1. Biotechnol Genet Eng Rev. 2024;40(4):3073-86.
- Gao T, Ji Y. Long noncoding RNA LINC00707 accelerates tumorigenesis and progression of bladder cancer via .targeting the miR-145/CDCA3 regulatory loop. Urol Int. 2021;105(9–10):891-905.
- Cai WL, Zeng W, Liu HH, Zhu BY, Liu JL, Liu Y. LncRNA LINC00707 promotes osteogenic differentiation of hBMSCs through the Wnt/β-catenin pathway activated by the LINC00707/miR-145/LRP5 axis. Eur Rev Med Pharmacol Sci. 2020;24(1):18-28.
- Jiang L, Wei ZC, Xu LL, Yu SY, Li C. Inhibition of miR-145-5p reduces spinal cord injury-induced inflammatory and oxidative stress responses via .affecting the Nurr1-TNF-α signaling axis. Cell Biochem Biophys. 2021;79(4):791-9.
- Jiang Z, Zhang J. Mesenchymal stem cell-derived exosomes containing miR-145-5p reduce inflammation in spinal cord injury by regulating the TLR4/NF-κB signaling pathway. Cell Cycle. 2021;20(10):993-1009.
- Park AJ, Fandl HK, Garcia VP, Coombs GB, DeSouza NM, Greiner JJ, et al. Differential expression of vascular-related microRNA in circulating endothelial microvesicles in adults with spinal cord injury: a pilot study. Top Spinal Cord Inj Rehabil. 2023;29(2):34-42. doi:10.46292/sci22-00032.
- Gao C, Yin F, Li R, Ruan Q, Meng C, Zhao K, et al. MicroRNA-145-mediated KDM6A downregulation enhances neural repair after spinal cord injury via .the NOTCH2/Abcb1a axis. Oxid Med Cell Longev. 2021;2021:2580619. doi:10.1155/2021/2580619.
- Dou Y, Tian X, Zhang J, Wang Z, Chen G. Roles of TRAF6 in the central nervous system. Curr Neuropharmacol. 2018;16(9):1306-13.
- Huang T, Jia Z, Fang L, Cheng Z, Qian J, Xiong F, et al. Extracellular vesicle-derived miR-511-3p from hypoxia-preconditioned adipose mesenchymal stem cells ameliorates spinal cord injury through the TRAF6/S1P axis. Brain Res Bull. 2022;180:73-85.
- Wei J, Wang J, Zhou Y, Yan S, Li K, Lin H. MicroRNA-146a contributes to SCI recovery via .regulating TRAF6 and IRAK1 expression. Biomed Res Int. 2016;2016:4013487.