Este protocolo estabelece um método reproduzível para gerar suspensões monocelulares altamente viáveis a partir de tecidos da glândula mamária murina e de tumores mamários, preservando epítopos de superfície celular para análises subsequentes, incluindo citometria de fluxo e sequenciamento de RNA em única célula.
Artigo de método
Dissociação de Tecidos da Glândula Mamária e de Tumores Murinos para a Criação de Suspensões de Células Únicas Altamente Viáveis
Neste artigo
Resumo
Resumo
A dissociação de tecidos em suspensões de células isoladas para análise auxilia na compreensão do que ocorre no nível celular no microambiente tumoral. Um desafio persistente na obtenção e utilização de células primárias é a produção de suspensões celulares de alta qualidade que preservem as características celulares para processamentos posteriores, incluindo sequenciamento de RNA de célula única (scRNA-Seq) ou imunofenotipagem por citometria de fluxo. Normalmente, os tecidos são dissociados usando uma combinação de disruptura mecânica, digestão enzimática e filtração, e diversos fatores em cada etapa introduzem variabilidade no produto final. Portanto, etapas de otimização devem ser realizadas para identificar um método que funcione melhor para cada tipo específico de tecido. Por exemplo, o tecido do coxim adiposo mamário é rico em adipócitos, o que torna mais difícil obter uma suspensão celular limpa e preservar com sucesso células viáveis. Como resultado, gerar suspensões celulares comparáveis a partir de tecido do coxim adiposo mamário e tumores epitelioides é desafiador. Este protocolo estabelece um método reprodutível e economicamente eficaz para gerar suspensões de células únicas altamente viáveis a partir de tecidos mamários e tumorais de camundongos, preservando epítopos de superfície celular para análises posteriores. Este procedimento tem sido usado para produzir bibliotecas de scRNA-Seq de alta qualidade e para realizar imunofenotipagem utilizando citometria de fluxo multiparamétrica.
Introdução
A dissociação tecidual permite a obtenção de suspensões de células isoladas e a caracterização dos tipos celulares presentes nos tecidos. Isso é particularmente importante ao analisar a resposta à imunoterapia, pois as células imunes infiltrantes podem ajudar a elucidar o mecanismo subjacente das respostas imunológicas específicas do tecido. A vacinação com ácido desoxirribonucleico (DNA) que codifica o oncogene HER2/neu leva a uma proteção aumentada contra tumores mamários espontâneos induzidos pelo HER2/neu em modelos murinos1. Além disso, demonstrou-se que a vacinação com DNA induz uma resposta sistêmica caracterizada pela produção de anticorpos e por células T secretoras de interferon-γ (IFN-γ)1,2,3. Por esse motivo, concentramo-nos no desenvolvimento de um protocolo para dissociação de tumores mamários e tecidos da glândula mamária ricos em tecido adiposo, a fim de permitir a quantificação da imunidade local. A dissociação de tecidos em células individuais requer métodos enzimáticos, mecânicos ou ambos. Um dos desafios associados à dissociação enzimática é que esses métodos exigem exposição a enzimas por um período prolongado, muitas vezes durante a noite inteira4. A superexposição resulta na degradação das células individuais e dos marcadores de superfície, com efeitos mais prejudiciais sobre as células imunes5,6. A digestão mecânica pode ser uma boa opção para liberar células imunes, como linfócitos e macrófagos, embora não quebre efetivamente o estroma para obter uma amostra representativa de células epiteliais e estromais. Recentemente, a microfluídica para dissociação tecidual tem sido explorada e foi inicialmente empregada para desagregar agregados celulares em solução7. Um grupo implementou uma abordagem microfluídica para promover a quebra adicional de tecido picado, utilizando forças de cisalhamento no dispositivo8. Após 60 minutos de dissociação otimizada, esse método resultou em um aumento de 2 vezes no número de células epiteliais e de 4 vezes no número de células endoteliais, em comparação com um protocolo tradicional de digestão enzimática em tecido mamário. No entanto, surgiram desafios ao medir o rendimento de hepatócitos em uma amostra de fígado, com redução do rendimento ao longo do tempo, provavelmente devido ao tamanho e à fragilidade dos hepatócitos. Portanto, encontrar um equilíbrio que permita obter uma amostra representativa e limpa de múltiplos tipos celulares, ao mesmo tempo que preserva a integridade celular e os epítopos de superfície, é de extrema importância.
As enzimas utilizadas em misturas de digestão geralmente incluem alguma combinação de colagenases gerais9,10, tripsina (Um Guia para Dissociação de Tecidos Sólidos)4,10,11, hialuronidase9,10,11 ou dispase4,9,10, e requerem quantidades variáveis de tempo para uma digestão eficaz. O protocolo descrito aqui utiliza dois tipos específicos de colagenase, colagenase tipo II e colagenase D, como enzimas principais para digestão, com o ácido etilenodiaminotetraacético (EDTA) desempenhando um papel secundário ao enfraquecer ainda mais as ligações entre células por meio da quelatação. A colagenase tipo II é uma enzima primária de dissociação produzida por Clostridium histolyticum e auxilia na digestão de pequenos fragmentos de colágeno na matriz extracelular. A colagenase D também é produzida por C. histolyticum e tem sido amplamente utilizada para dissociar uma variedade de tecidos, como pulmão, cardíaco, muscular, ósseo, neural e endotelial. Essa colagenase ajuda a preservar a funcionalidade e a integridade das proteínas da superfície celular, um fator importante para imunofenotipagem subsequente por citometria de fluxo. Além da colagenase, os tecidos são digeridos na presença da desoxirribonuclease I (DNase I), que degrada o DNA livre, eliminando-o assim da suspensão celular resultante.
Outro desafio exclusivo à dissociação de glândulas mamárias é a presença de adipócitos na amostra. Conforme o camundongo envelhece, o coxim adiposo mamário acumula um número significativo de adipócitos. Essas células são mais frágeis e suscetíveis à ruptura durante o processamento subsequente, o que pode liberar RNA e detritos intracelulares na suspensão celular, aumentando o RNA ambiental e prejudicando a preparação da biblioteca de scRNA-Seq, além de reduzir a qualidade da amostra. O DNA extracelular pode causar agregados celulares; portanto, quaisquer adipócitos remanescentes após a dissociação enzimática inicial devem ser removidos para manter a integridade da amostra. Felizmente, a natureza flutuante dos adipócitos pode ser aproveitada para auxiliar na separação das demais células durante a centrifugação. Ao utilizar um protocolo de centrifugação, os adipócitos permanecem na superfície do sobrenadante. Isso permite que sejam descartados junto com o sobrenadante, evitando sua incorporação ao pellet celular primário. Embora não seja obrigatório, incluir uma desaceleração gradual reduz as forças de Coriolis dentro do tubo, ajudando a manter os adipócitos em uma camada distinta na parte superior, especialmente ao trabalhar com tecido mamário particularmente rico em adipócitos ou quando os adipócitos são removidos como foco do estudo12,13.
Tendo em vista essas considerações específicas para o tecido, buscamos estabelecer um protocolo que seja econômico, não exija equipamentos especializados e forneça uma amostra celular representativa do tecido original com qualidade e reprodutibilidade consistentemente altas.
Protocolo
Todos os procedimentos deste protocolo foram realizados de acordo com a Política do Serviço de Saúde Pública dos EUA sobre o Uso de Animais de Laboratório e com a aprovação do Comitê Institucional de Cuidado e Uso de Animais da Universidade Estadual de Michigan.
1. Geração de uma suspensão de células isoladas a partir de tecido tumoral murino e tecido da glândula mamária:
Digestão do tecido
- Descarte todos os tecidos excedentes ou não utilizados de camundongos no lixo biológico. Coloque plásticos contaminados com tecidos ou células murinas no lixo biológico para descarte. Colete soluções contendo células em um recipiente para resíduos líquidos biológicos e trate com hipoclorito a 10% antes do descarte.
- Assegure-se de que o coquetel fresco para digestão tecidual seja preparado imediatamente antes da digestão. Cada amostra requer 10 mL do coquetel de digestão (10 mL de meio Roswell Park Memorial Institute (RPMI), 60 U de DNAse I, 25 mg de Colagenase D, 50 mg de Colagenase tipo II). Armazene à temperatura ambiente (TA) até o uso.
- Eutanazie os camundongos por dislocação cervical, com pneumotórax bilateral como método secundário de eutanásia, com ou sem exsanguinação.
- Posicione o camundongo em posição supina, com as pernas esticadas para fora e fixadas.
- Pulverize completamente o camundongo com etanol a 70% para evitar contaminação da amostra por pelos soltos.
- Realize uma única incisão ao longo da linha média do camundongo, desde a bolsa de gordura inguinal até o pescoço, tomando cuidado para não perfurar o peritônio, seguida por uma incisão em cada perna, formando um formato de incisão em “Y” invertida.
- Estique a pele, utilizando técnicas de dissecação romba para separar a pele do peritônio subjacente, e fixe a pele plana contra a mesa de necropsia.
- Remova tumores de tamanho médio ou glândulas mamárias/bolsas de gordura e coloque em um tubo cônico de 50 mL com 5 mL de meio de lavagem celular R10 (meio R10 é RPMI) contendo 10% de soro bovino fetal (SBF).
- Evite o uso de tumores necróticos ou cheios de sangue (que apresentam aparência muito escura e textura mole), se possível.
- Em uma cabine de segurança biológica, transfira apenas as bolsas de gordura mamárias e tumores para uma placa de Petri limpa. Pique finamente o tecido utilizando duas lâminas cirúrgicas até obter uma consistência pastosa, depois transfira para um tubo cônico de 50 mL limpo. Realize este passo à temperatura ambiente.
- Adicione 10 mL de coquetel de digestão por amostra.
- Incube em incubadora com agitação a 37 °C e 250 rotações por minuto (rpm) por 30 minutos.
- Adicione EDTA 0,5 M para uma concentração final de 10 mM (200 µL de EDTA/10 mL de tampão de digestão).
- Retorne à incubadora com agitação a 37 °C e 250 rpm por mais 5 minutos.
- Adicione 40 mL de meio de lavagem celular R10 para interromper a reação.
- Filtre as células digeridas através de um filtro de 70 µm para um tubo cônico de 50 mL limpo para remover fragmentos maiores.
- Centrifugue a 500 x g, com aceleração no nível 9 e desaceleração no nível 6, a 4 °C por 10 minutos (se apenas células linfocíticas forem de interesse, a força de centrifugação pode ser reduzida para 300 x g por 5 minutos)14 para obter o pellet celular. Como este procedimento envolve a dissociação de tecido da glândula mamária, rico em adipócitos, um protocolo de frenagem reduzida ajuda a manter o gradiente formado pela natureza flutuante dos adipócitos durante a centrifugação13.
- Descarte o sobrenadante no lixo biológico, desfaça o pellet, adicione 40 mL de meio de lavagem celular e centrifugue novamente conforme descrito no passo 1.15. A frenagem pode retornar à desaceleração total nas etapas subsequentes. A não realização disso não afetará negativamente a amostra.
- Lave com 40 mL de meio de lavagem celular R10 e centrifugue conforme o passo 1.15, totalizando 3 lavagens.
- Desfaça o pellet e re-suspenda as células em 2 mL de PBS 1 × frio.
- Adicione duas vezes o volume de tampão de lise de hemácias 1×. Dilua o concentrado de tampão de lise 10× para 1× usando água (ou seja, 2 x = 2 mL de PBS 1× + 4 mL de tampão de lise). Realize este passo à temperatura ambiente.
- Incube à temperatura ambiente por 5 minutos, misturando suavemente de vez em quando invertendo o tubo.
- Neutralize o tampão de lise de hemácias adicionando um volume igual de meio de lavagem celular R10.
- Filtre a solução celular através de um filtro de 30 µm para um tubo de 15 mL para remover detritos celulares.
- Complete o volume para 15 mL com meio de lavagem celular R10.
- Centrifugue a 500 x g por 10 minutos a 4 °C.
- Remova completamente o sobrenadante e re-suspenda em meio de lavagem celular até um volume final de até 5 mL para contagem e avaliação de viabilidade. Re-suspenda na diluição desejada. Prossiga para coloração para citometria de fluxo ou preparação para scRNA-seq.
- Mantenha as células no gelo entre os passos, salvo indicação em contrário.
2. Coloração de uma suspensão de células isoladas para citometria de fluxo
- Transfira as células desejadas para um tubo cônico de polipropileno de 5 mL e mantenha no gelo.
- Prepare uma solução de marcação celular utilizando anticorpos monoclonais (AcM) conjugados a marcadores fluorescentes, em um volume total de (n + 1) × 100 µL, usando PBS para citometria (490 mL de PBS 1x, 10 mL de soro bovino fetal, 0,5 g de azida de sódio). Prepare (n+1) × 100 µL da solução de marcação, em que n = número de amostras (por exemplo, 6 × 100 µL = 600 µL para 5 amostras)
NOTA: A azida de sódio é carcinogênica na forma de pó. Use equipamento de proteção individual adequado e lave todo o material para garantir que a azida esteja em solução antes do descarte no recipiente de resíduos químicos. - Centrifugue cada amostra a ser marcada por 5 min a 4 °C a 500 x g. Re-suspenda no volume de 100 µL da solução de marcação. Re-suspenda os controles não marcados em 1000 µL de PBS para citometria.
- Cubra os tubos para proteger da luz e incube a 4 °C por 15 min.
NOTA: Anticorpos marcados com fluoróforos podem se degradar com exposição prolongada à luz e devem permanecer cobertos durante a incubação e armazenamento subsequente das amostras. - Adicione 1 mL de PBS para citometria a cada tubo marcado e centrifugue a 500 x g, 4 °C, por 5 min para lavagem.
- Descarte o sobrenadante, desagregue o pellet e re-suspenda as células em 1 mL de PBS para citometria. Centrifugue novamente conforme anterior (Passo 2.5).
- Repita o passo 2.6, totalizando três lavagens. Descarte o sobrenadante e desagregue os pellets.
- Re-suspenda as células em solução de fixação ou em PBS para citometria, conforme necessário para as colorações subsequentes.
- Use se for fixar as células ou realizar uma coloração intracelular. Caso contrário, prossiga para o Passo 2.10:
- Adicione 200 µL de solução de permeabilização/fixação a cada amostra para permitir a coloração intra-nuclear.
- Cubra as amostras com papel alumínio e incube por pelo menos 20 min a 4 °C. Se as amostras forem analisadas em outro dia, podem permanecer cobertas a 4 °C durante a noite neste passo.
- Após a fixação, centrifugue as amostras a 500 x g por 5 min e re-suspenda em 1 × tampão de permeabilização (diluído em água).
- Se for preparar coloração secundária ou intracelular, marque as amostras na diluição desejada em tampão de permeabilização 1x. Coloque os tubos cobertos no incubador a 4 °C por 15–20 min.
- Adicione 1 mL de tampão de permeabilização 1x a cada tubo marcado e centrifugue a 500 x g por 5 min para lavagem.
- Descarte o sobrenadante, desagregue o pellet e re-suspenda as células em 1 mL de tampão de permeabilização 1x. Centrifugue novamente conforme anterior (Passo 9.5).
- Repita o passo 2.9.6, totalizando três lavagens. Descarte o sobrenadante e desagregue os pellets.
- Re-suspenda as células em 200 µL de tampão de permeabilização 1x e mantenha no gelo até o momento da análise em citômetro de fluxo.
- Se não for fixar as células, re-suspenda em 200 µL de PBS para citometria e mantenha no gelo até o momento da análise em citômetro de fluxo.
- Para análise de scRNA-Seq, siga os protocolos para remoção de detritos e células mortas, avaliação da qualidade do RNA e geração de bibliotecas.
3. Avaliação da qualidade da biblioteca de scRNA-Seq
- Procure uma alta porcentagem de leituras mapeadas com confiança nas células. Idealmente, esse número será maior que 90%.
- Compare as contagens de identificadores moleculares únicos (UMI) com os códigos de barras. Uma amostra de alta qualidade apresentará uma queda acentuada nas contagens de UMI em aproximadamente 10.000 códigos de barras (o ponto de “dobradura” no gráfico de classificação de códigos de barras).
- Examine as projeções e aproximações de variedades uniformes (UMAPs). Uma amostra de alta qualidade proveniente de tecidos complexos, como glândulas mamárias ou tumores mamários espontâneos, apresentará agrupamentos celulares distintos e bem separados.
- Identifique o número de genes mitocondriais (mt-) expressos; agrupamentos com alto número de genes mitocondriais indicam que as células estão mortas ou em processo de morte.
Resultados
O HER2 é um oncogene tumoral que induz tumores mamários agressivos em mulheres, e até 70% das mulheres tratadas com terapias monoclonais direcionadas ao HER2 não responderão ou desenvolverão resistência ao tratamento direcionado ao HER215,16,17,18. O objetivo final é ativar uma resposta imune contra o HER2/neu para melhorar a imunidade ao HER2 e aumentar a sobrevida. Para estudar a imunidade ao HER2/neu, utilizam-se modelos murinos imunocompetentes que desenvolvem tumores mamários espontâneos induzidos pelo HER2/neu2,19. O HER2 é codificado pelo Erbb2 humano e o neu pelo Erbb2 de rato. Os camundongos BALB NeuT portam um transgene de neu de rato transformante (NeuT), controlado pelo promotor MMTV19. O neu é expresso nas glândulas mamárias de camundongos fêmeas pubescentes com fundo genético BALB, resultando no desenvolvimento de carcinoma ductal (Figura 1A, inseto) em todas as fêmeas transgênicas, em uma ou mais glândulas mamárias. A expressão contínua do neu leva ao surgimento de tumores palpáveis entre 14 e 19 semanas de idade, que crescem progressivamente1. A vacinação de camundongos transgênicos com DNA plasmidial que codifica tanto o neu autólogo quanto o HER2 heterólogo (denominado pNeuE2TM) pode romper a tolerância imunológica ao neu, levando ao aumento de anticorpos policlonais sistêmicos direcionados ao neu e de células T esplênicas secretoras de IFN-γ1. Essa resposta imune resultou na rejeição de células tumorais TUBO que expressam neu. Embora a resposta sistêmica seja informativa, ela não permite compreender o mecanismo de ação no local do tumor. Assim, propusemo-nos a desenvolver um protocolo de dissociação de tecidos de glândula mamária e tumor mamário que produza células únicas com alta viabilidade, mantendo os marcadores de superfície celular. A Figura 1 apresenta uma visão geral do fluxo de trabalho. Resumidamente, após a coleta, o tecido é finamente picado com bisturis (Figura 1B) e colocado em um tampão de digestão tecidual à base de RPMI contendo uma combinação de 2 partes de colagenase tipo II para 1 parte de colagenase D e DNase I, durante 30 minutos em um incubador com agitação (Figura 1C–D), seguido por mais 5 minutos com EDTA 0,5 M (Figura 1E). A digestão é interrompida pela adição de um tampão de lavagem contendo soro bovino fetal (FBS), e a mistura é filtrada para remover detritos teciduais (Figura 1F). Após etapas de lavagem e lise de hemácias (Figura 1G–H), as células são passadas por uma peneira de 30 µm e contadas (Figura 1I–K e Figura 2). Neste ponto, as células podem ser alocadas para fluxos de trabalho subsequentes, como citometria de fluxo ou scRNA-Seq.
Para comparação direta, a dissociação foi realizada em paralelo utilizando um kit comercial. O protocolo publicado foi seguido para tumores “resistentes”, e após a neutralização da enzima, as amostras foram tratadas da mesma maneira (ou seja, lise de hemácias, etc.). Utilizando o kit comercial, recuperaram-se 1,3 × 10⁶ células/mL com viabilidade de 76%, enquanto com o protocolo aqui descrito, recuperaram-se 4,5 × 10⁶ células/mL com viabilidade de 89% (Figura 2A,B). Os detritos entre os dois protocolos foram semelhantes após a lise de hemácias. Para remover células mortas, 1 × 10⁷ células de cada protocolo foram processadas pela etapa de remoção de células mortas. O kit comercial recuperou 1,3 × 10⁶ células/mL com viabilidade de 96%, comparado a 1,94 × 10⁶ células/mL e viabilidade de 98% para o protocolo aqui relatado (Figura 2C,D). Assim, o protocolo aqui descrito proporcionou um maior rendimento de células viáveis para análises posteriores, sem necessidade de equipamentos especializados.
Para avaliar especificamente a qualidade e a reprodutibilidade de suspensões celulares obtidas a partir do protocolo descrito aqui, amostras de glândula mamária de camundongos fêmeas ingênuos BALB e BALB NeuT com idade entre 16 e 18 semanas foram coletadas. O tecido BALB NeuT continha tanto tecido da glândula mamária quanto tecido tumoral. O tecido dos coxins adiposos mamários inguinais (glândulas mamárias 4 e 9) foi coletado, incluindo o tecido tumoral de BALB NeuT, e dissociado em uma solução homogênea para análises posteriores. Observe que os linfonodos sentinela foram removidos antes da coleta da glândula mamária.
Após o processamento, as amostras foram avaliadas por citometria de fluxo para confirmar a retenção de marcadores de superfície celular e a viabilidade celular (Figura 3) e analisadas por scRNA-Seq (Figura 4) para verificar a qualidade da preparação celular para a geração de bibliotecas. A viabilidade de células únicas derivadas de glândula mamária ou tumor variou em média ≥85% antes da remoção de células mortas. Para gerar uma preparação celular inicial altamente viável para scRNA-Seq, podem ser utilizados kits comerciais disponíveis para remoção de células mortas e detritos. Após esses protocolos, a viabilidade das preparações de células únicas variou de 94% a 98% (Figura 2C,F). Células desse protocolo foram fixadas e comparadas com o método de fixação recomendado para scRNA-Seq, denominado protocolo comercial de dissociação com fixação prévia, utilizando uma termolisina comercial (Figura 2E,F). O protocolo comercial de dissociação com fixação prévia gerou 1,5 × 10⁷ células/mL, e a viabilidade não foi medida porque o tecido é fixado antes da dissociação, enquanto este protocolo resultou em 8,6 × 10⁶ células/mL a partir de uma viabilidade inicial de 94%. Assim, o método do protocolo comercial de dissociação com fixação prévia gerou um número comparável ou ligeiramente maior de células do que o protocolo descrito neste trabalho.
As células foram coradas e avaliadas quanto aos marcadores de superfície celular por citometria de fluxo. Células epiteliais (Figura 3A) e fibroblastos (Figura 3B) foram identificados pela marcação com EpCAM e anticorpo monoclonal contra Pdgfrb/CD140a, respectivamente. Como a vacinação tripla de camundongos BALB NeuT com DNA HER2/neu resultou em um atraso significativo no início do tumor e em imunidade sistêmica, foi particularmente interessante avaliar as células imunes nas glândulas mamárias e nos tumores. Células CD45+ da linhagem imune compreenderam cerca de 50% da suspensão celular (Figura 3C). A presença de células B e T foi avaliada utilizando B220/CD45R e CD3 (Figura 3D), e as células T CD3+ foram subdivididas ainda mais em CD4 e CD8 (Figura 3E). Para avaliar a capacidade de reter populações raras de células, as amostras foram coradas para células T reguladoras. Para isso, a amostra de células foi fixada e corada para o fator de transcrição específico de Treg, Foxp3. Células T reguladoras normalmente compõem uma pequena proporção da população imune total do organismo, embora seu papel na modulação do sistema imunológico seja de grande interesse nas áreas de pesquisa do câncer e doenças autoimunes. Portanto, a captura confiável de populações imunes pequenas, porém robustas, como as células T reguladoras, é fundamental ao considerar um protocolo de dissociação tecidual. Células T reguladoras Foxp3+ foram identificadas primeiramente subgating células CD3+CD4+ quanto à expressão de CD25 (o receptor de alta afinidade para IL-2) e Foxp3. Utilizando essa estratégia de gating, cerca de 5% das células CD4+ foram positivas para ambos os marcadores, enquanto cerca de 25% foram positivas para Foxp3, mas baixas ou negativas para CD25 (Figura 3F). CD64 foi avaliado em uma amostra tumoral separada para garantir que macrófagos CD64+ pudessem ser isolados com sucesso utilizando essa técnica de dissociação (Figura 3G). Para identificar grupos mieloides mais amplos, macrófagos F4/80+ e células F4/80- CD11c+, identificadas como células dendríticas (Figura 3H). Células dendríticas compreenderam aproximadamente 3% do total de células, enquanto neutrófilos CD11b+Ly6G+ compreenderam cerca de 5% (Figura 3H,I). Assim, obteve-se recuperação e preservação confiáveis de epítopos de superfície em células CD45+ após a dissociação de tecidos de glândula mamária e tumor utilizando o protocolo descrito acima.
Antes da submissão para a geração de biblioteca de scRNA-Seq, as amostras podem ser avaliadas quanto à integridade do RNA. Amostras frescas preparadas usando o protocolo comercial ou o protocolo descrito aqui apresentaram razões A260/230 de 1,9 e 2,2, respectivamente. Amostras fixadas são avaliadas determinando a porcentagem de leituras com mais de 200 nucleotídeos (nt). O protocolo descrito aqui, seguido por fixação imediata e armazenamento a –80 °C, resultou em 83% da amostra contendo leituras > 200 nt.
Qualidade das amostras
Após a preparação da biblioteca de scRNA-Seq e o sequenciamento, a qualidade da amostra foi avaliada (Figura 4). As bibliotecas de amostras de scRNA-Seq são inicialmente avaliadas por meio de métricas de chamada de células e qualidade de mapeamento, o gráfico de classificação de códigos de barras, a saturação de sequenciamento e as projeções UMAP. A dissociação do tecido mamário BALB utilizando o protocolo de dissociação descrito aqui gerou 16.182 células, com 97% das leituras atribuídas a células, indicando uma amostra saudável, já que poucas leituras foram atribuídas ao RNA extracelular. Um percentual significativo de leituras registradas fora da célula indica níveis aumentados de contaminação por mRNA ambiental proveniente de células mortas ou em degeneração. A qualidade de mapeamento é a porcentagem de sondas que foram mapeadas no conjunto de sondas; foi de 99,1%. A saturação de sequenciamento estava se estabilizando, indicando replicação de genes já identificados em vez de genes únicos. O gráfico de classificação de códigos de barras mostra as contagens de UMI versus códigos de barras, e uma amostra de alta qualidade apresenta uma queda acentuada distinta, ou "curva de joelho", em aproximadamente 10 mil UMIs (Figura 4A). Por fim, a projeção UMAP mostra diversos agrupamentos distintos (Figura 4A). Todas essas métricas indicam uma biblioteca de scRNA-Seq de alta qualidade.
Para comparar a qualidade deste protocolo com o protocolo comercial recomendado de dissociação com fixação prévia para a química Flex, realizou-se paralelamente um protocolo comercial de dissociação com fixação prévia ao protocolo aqui relatado, e a biblioteca resultante foi avaliada quanto à qualidade. O protocolo comercial de dissociação com fixação prévia para amostras de glândula mamária de camundongos BALB recuperou 720 células, com 68% das leituras nas células e qualidade de mapeamento de 89,3%. Da mesma forma, a saturação estava começando a estabilizar, mas as contagens de genes por célula foram claramente menores do que com a dissociação em células vivas (4.500 genes/célula para células vivas versus 1.000 genes/célula para o protocolo comercial de dissociação com fixação prévia). O gráfico de classificação de códigos de barras não mostra uma curva de joelho (Figura 4B), e embora existam agrupamentos distintos, eles são menos numerosos (Figura 4B).
As bibliotecas de tecido mamário contendo tumor BALB NeuT também foram avaliadas quanto à qualidade (Figura 4C,D). Utilizando a dissociação viável descrita aqui, 18.077 células foram sequenciadas, com 97% das leituras nas células e 99,1% mapeadas para o conjunto de sondas. Um ponto de inflexão foi evidente (Figura 4C), bem como uma clara separação entre os agrupamentos (Figura 4C). O protocolo comercial de dissociação com fixação prévia apresentou melhor desempenho na presença de tumor, com 7.119 células sequenciadas, 91% das leituras nas células e 98,6% das leituras mapeadas para o conjunto de sondas. Houve um ponto de inflexão mais acentuado no gráfico de classificação de códigos de barras (Figura 4D), mas, apesar da saturação no sequenciamento, as projeções UMAP continham poucos agrupamentos distintos (Figura 4D).
Métricas adicionais de qualidade incluem a determinação do número de genes mitocondriais expressos pelos agrupamentos celulares. Uma boa separação celular é indicativa da qualidade da amostra, sendo uma alta porcentagem de 'leituras na célula' um demonstrativo da saúde da amostra. Células com grande quantidade de genes mitocondriais (denotados como 'mt-') podem ser identificadas e removidas utilizando ferramentas de agrupamento de código aberto e fornecidas pelo fabricante. A comparação direta de amostras pode ser realizada agregando amostras com o aplicativo Cell Ranger, o que permite uma comparação bioinformática direta, ou utilizando o script de 'integração' em ferramentas de agrupamento de código aberto e fornecidas pelo fabricante. Os agrupamentos celulares são identificados por meio da consulta a marcadores conhecidos de linhagem celular (por exemplo, CD45/Ptprc para células imunes, EpCAM para células epiteliais, Fap ou Pdgfra para fibroblastos). Caso um agrupamento celular não possa ser definido por marcadores de linhagem conhecidos, os 10 a 15 genes mais altamente expressos podem ser analisados utilizando ferramentas de enriquecimento de conjuntos de genes para obter insights sobre o possível tipo celular. Alternativamente, os genes mais expressos podem ser consultados utilizando ferramentas de atlas celular de referência quanto à sua expressão em tipos celulares conhecidos.
Células com altos números de genes mitocondriais foram removidas de cada amostra, restando 16.114 células (0,5% das células contendo genes mitocondriais elevados) na glândula mamária BALB e 18.024 células (0,3%) no BALB NeuT. Dentro das amostras do protocolo comercial de dissociação com fixação primeiro, a glândula mamária BALB manteve 627 células (13% das células contendo genes mitocondriais elevados), e o BALB NeuT manteve 6.181 células (14%).
A integração entre as glândulas mamárias BALB e BALB NeuT foi realizada para o protocolo de dissociação de células vivas descrito aqui e é mostrada na Figura 4E,F. A comparação das amostras revelou populações celulares semelhantes entre as bibliotecas (Figura 4E, F, e Tabela 1). Os agrupamentos celulares foram rotulados utilizando marcadores conhecidos de linhagem celular, e comparações foram feitas entre as amostras. As populações de células imunes incluíram células T, células B e agrupamentos de macrófagos, enquanto as populações de células não imunes incluíram células epiteliais, fibroblastos e células endoteliais. Como era esperado, a amostra BALB NeuT apresentou uma população adicional de células tumorais (Figura 4F). Ao analisar populações celulares específicas, observou-se um maior número de macrófagos na amostra BALB NeuT com tumor, mas menor quantidade de células T e células epiteliais não tumorais. A análise de scRNA-Seq mostrou uma população comparável de células epiteliais derivadas da glândula mamária BALB e uma população significativa de células epiteliais/tumorais na contraparte NeuT. O gráfico de redução dimensional mostra uma distinção clara entre a população de células epiteliais residentes normais da glândula mamária e as células epiteliais tumorais específicas da amostra BALB NeuT (Figura 4E,F).
Após o estabelecimento das populações epiteliais, as células estromais foram avaliadas entre as amostras BALB e BALB NeuT. A análise do gene do receptor alfa para fator de crescimento derivado de plaquetas (Pdgfrα), expresso por fibroblastos, identificou uma população distinta de fibroblastos tanto nas amostras BALB quanto nas BALB NeuT. Na amostra de scRNA-Seq BALB, os fibroblastos que expressavam Pdgfrα representaram 15% das células, uma proporção um pouco menor do que a análise por citometria de fluxo, que identificou fibroblastos em 29% das células (Figura 3B). Após seleção por viabilidade e status de célula única, os fibroblastos foram identificados por citometria de fluxo utilizando o marcador PDGFRα (CD140a). Os resultados observados nas amostras, independentemente dos métodos de análise downstream, apoiam a consistência deste protocolo de dissociação ao longo do tempo e em múltiplas repetições.
A proteína CD45 é codificada pelo gene Ptprc gene e sequenciamento de RNA de células que expressam Ptprc revelaram aglomerados linfocíticos altamente identificáveis dentro da amostra (Figura 4E). Para avaliar mais detalhadamente as populações de linfócitos, as células foram analisadas quanto às populações de linfócitos B e T utilizando Cd3e+ ou Cd79a+ (Figura 4E,). Essas populações eram distintas ao serem avaliadas por meio de dados de sequenciamento de célula única, embora o scRNA-Seq tenha identificado ainda várias subaglomerações Cd3células T que expressam. Contagens adicionais de células imunes a partir da análise de sequenciamento mostraram um aumento de macrófagos na amostra BALB NeuT, conforme indicado pela expressão de Itgam e Adgre1 (F4/80) (Figura 4F). Para avaliar a identificação de populações raras de células em scRNA-Seq, células T reguladoras foram identificadas pela sua expressão de Foxp3 (Figura 4F). As células T reguladoras estão presentes nas bibliotecas de scRNA-Seq, mas não eram abundantes o suficiente para serem identificadas como um agrupamento distinto. Em vez disso, agruparam-se com as células T e com as células natural killer (NK).
Por fim, a capacidade de identificar neutrófilos (PMNs) dentro de bibliotecas de scRNA-Seq tem sido uma fonte de consternação e não foi alcançada com outros protocolos comerciais disponíveis de dissociação mamária20. Utilizando citometria de fluxo, cerca de 5% das células imunes foram identificadas como neutrófilos que expressam Ly6G e CD11b (Figura 3H). Para identificar neutrófilos dentro das bibliotecas de scRNA-Seq, recomenda-se refazer o agrupamento celular utilizando os pipelines do fabricante para identificar células abaixo do ponto padrão de inflexão. Essa prática foi realizada tanto para as bibliotecas da glândula mamária de camundongos BALB quanto BALB NeuT. Dotplots de genes tipicamente associados a macrófagos (Ptprc, Adgre1, Mrc1) foram comparados com aqueles expressos por neutrófilos (S100a8, Trem1, Clec4). Nenhuma das bibliotecas, nem a de BALB nem a de BALB NeuT, continha números significativos de neutrófilos (Figura 5A,B). No entanto, isso parece depender do background do modelo, já que camundongos F1 NeuT em um background BALB x PWK abrigavam um agrupamento celular que expressava marcadores de neutrófilos (Figura 5C).
Assim, este protocolo de dissociação permitiu elucidar os tipos celulares presentes nas glândulas mamárias de camundongos BALB e camundongos BALB NeuT que desenvolvem tumores mamários espontâneos. Como essas células são altamente viáveis, esta técnica pode ser utilizada para avaliar a imunidade antitumoral e a funcionalidade anti-HER2/neu de populações celulares imunes isoladas.
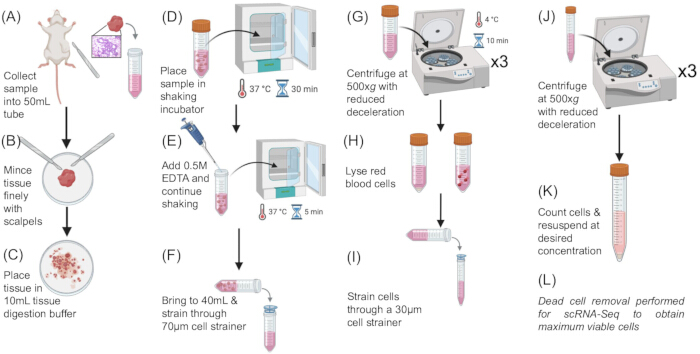
Figura 1: Fluxograma do protocolo de dissociação tecidual. (A) Glândulas mamárias ou tumores foram removidos (B, C), picado finamente (D) e digeridos a 37 °C, agitação em uma mistura de colagenase tipo II, colagenase D e DNase I (E). EDTA foi adicionado e a digestão continuou por mais 5 min. (FA digestão foi interrompida com volume final para 40 mL com RPMI contendo 10% de soro bovino fetal (meio de lavagem R10), e a suspensão foi então filtrada através de 70 µm filtros. (G) As suspensões celulares foram centrifugadas a 4 °C e 500 × g por 10 min, depois lavado 3 vezes com meio de lavagem RPMI. (H) As hemácias (RBC) foram lisadas utilizando solução 10 × de lise de hemácias à base de cloreto de amônio.IO tampão de lavagem R10 foi usado para interromper a lise, e as suspensões celulares foram filtradas através de 30 µm filtros. (J,KApós a lise das hemácias, as células são lavadas mais três vezes antes da avaliação da concentração e viabilidade.L) Se as células estiverem sendo utilizadas para a geração de bibliotecas de scRNA-Seq, células mortas e debris são removidos utilizando kits comercialmente disponíveis, conforme seus protocolos. Clique aqui para visualizar uma versão maior desta figura.
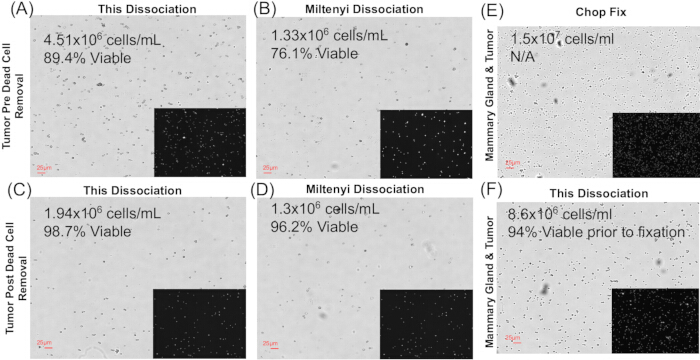
Figura 2: Comparação de dissociação. Dados de contagem celular e viabilidade para comparar o protocolo de dissociação descrito aqui com o protocolo comercial da Miltenyi e um protocolo comercial de dissociação com fixação prévia recomendado para scRNA-Seq. As contagens celulares após a dissociação foram obtidas usando um contador celular automatizado com coloração de células mortas por acridina laranja/iodeto de propídio (AO/PI). As células foram contadas e a viabilidade registrada após a remoção de células mortas. (A–B) Contagens celulares e viabilidade imediatamente antes da remoção de células mortas. (C–D) Contagens celulares e viabilidade após a remoção de células mortas, representando o que seria típico da amostra que entra no fluxo de trabalho do scRNA-Seq. (E–F) Contagens celulares e viabilidade ao comparar o protocolo descrito aqui com um protocolo comercial de dissociação com fixação prévia. A viabilidade não pôde ser avaliada após a dissociação utilizando o protocolo contendo Liberase, pois a amostra de tecido foi fixada antes da dissociação. Clique aqui para visualizar uma versão maior desta figura.
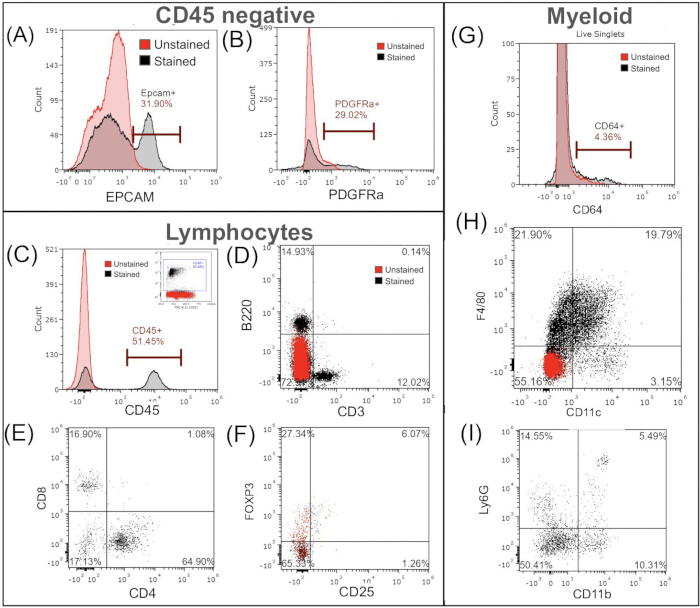
Figura 3: Análise citométrica de fluxo de tecidos dissociados. Para garantir a presença e viabilidade de células imunes, amostras representativas de BALB e BALB NeuT foram analisadas. As células foram inicialmente selecionadas quanto à viabilidade e, em seguida, os singletos foram identificados antes da identificação dos subgrupos. Para assegurar a recuperação de células das linhagens epitelial e estromal, estas foram primeiramente avaliadas. O EpCAM foi utilizado para identificar células derivadas do epitélio (A), e o PDGFRa foi usado para identificar fibroblastos (B). Para avaliar as populações imunes, 51% das células totais eram positivas para CD45 na glândula mamária (C). As populações de células B (B220+) e células T (CD3+) foram obtidas a partir de tecido mamário murino dissociado (D), e as populações CD8+ e CD4+ foram subselecionadas a partir do tecido tumoral (E). Para determinar se este protocolo pode isolar efetivamente populações celulares mais raras, (F) os linfócitos T reguladores (Treg) no tecido tumoral foram avaliados pela expressão de Foxp3+. Isso foi feito primeiramente selecionando uma população CD3+ e CD4+ e, dentro dessa população, identificando células que expressam Foxp3+ e CD25+ (aproximadamente 6%). (G) Avaliação de macrófagos CD64+ provenientes do tecido tumoral. (H) Células CD11b+ foram analisadas mais detalhadamente quanto à expressão de F4/80 e CD11c, sendo as células F4/80− CD11c+ identificadas como células dendríticas. (I) Neutrófilos foram identificados como células que expressam CD45+, Ly6G+ e CD11b+, mas são F4/80−. Clique aqui para visualizar uma versão maior desta figura.
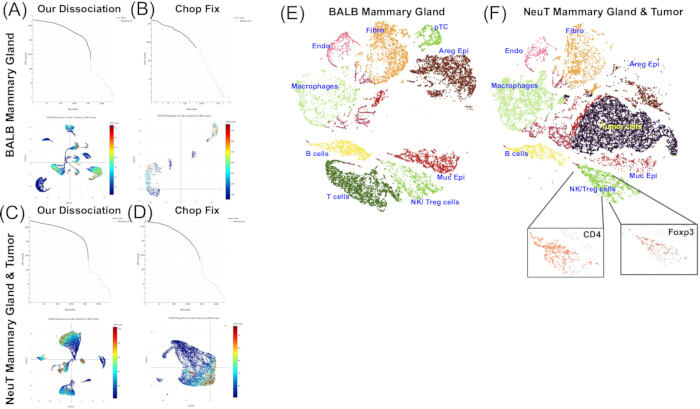
Figura 4: Avaliação de bibliotecas de scRNA-Seq. Amostras fixadas foram utilizadas para gerar bibliotecas de scRNA-Seq; seja utilizando o protocolo de dissociação de células vivas descrito aqui, seguido pela fixação conforme relatado neste manuscrito, ou o protocolo comercial recomendado de fixação primeiro e depois dissociação. (A) Controle de qualidade da biblioteca de scRNA-Seq de glândula mamária BALB obtida pelo protocolo de dissociação de células vivas. Foram sequenciadas 16.182 células, com 97,1% das leituras mapeadas com confiança dentro das células e 98,8% mapeadas com confiança ao conjunto de sondas filtrado. Os gráficos de cotovelo estão mostrados na parte superior e as projeções UMAP abaixo. Um ponto de inflexão acentuado e agrupamentos celulares distintos indicam bibliotecas de alta qualidade. (B) A avaliação da qualidade de uma biblioteca de scRNA-Seq de glândula mamária BALB obtida com o protocolo comercial de fixação primeiro mostra ausência de ponto de inflexão e poucas células (n = 720). (C) A biblioteca de scRNA-Seq de mama BALB NeuT foi gerada a partir do protocolo descrito aqui. Foram sequenciadas 18.077 células, com 97% das leituras mapeadas às células e 98,9% mapeadas ao conjunto de sondas filtrado. Um ponto de inflexão acentuado, juntamente com agrupamentos distintos, demonstra boa qualidade, enquanto uma biblioteca BALB NeuT obtida com o protocolo comercial de fixação primeiro (D) mostra um ponto de inflexão fraco e agrupamentos celulares não distintos entre as 7.119 células sequenciadas. Após a geração das bibliotecas, o Cell Ranger foi utilizado para integrar as bibliotecas de glândula mamária BALB e BALB NeuT, seguido de agrupamento por K-médias no Loupe Cell Browser para comparação direta. Dez agrupamentos únicos definem as células que compõem a glândula mamária BALB/c, conforme mostrado nos gráficos T-SNE (E,F). Na glândula mamária transgênica NeuT (F) houve uma população adicional de células tumorais. Dentro do agrupamento de linfócitos, células que expressam Cd4- e CD8a estão distribuídas por toda a região. A expressão de Cd4 é mostrada no inseto. Células T reguladoras, definidas pela expressão de Foxp3, não foram numerosas o suficiente para formar um agrupamento separado, mas se agruparam com as células T, conforme mostrado no gráfico de características destacado. Clique aqui para visualizar uma versão maior desta figura.
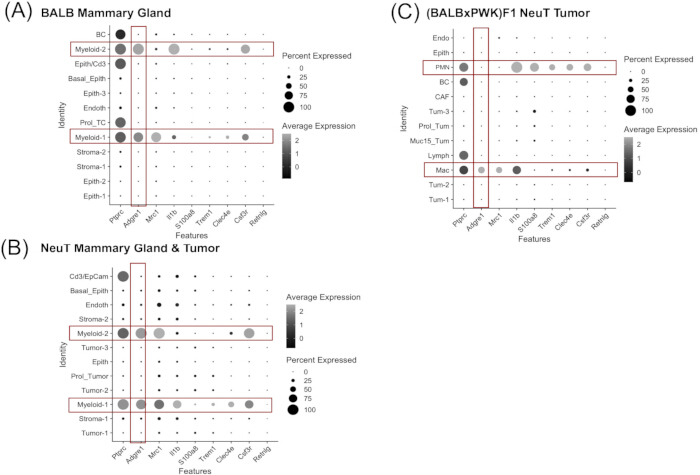
Figura 5: Identificação de neutrófilos (PMN). Os PMN são notoriamente difíceis de identificar em bibliotecas de scRNA-Seq devido aos seus baixos níveis de transcritos de RNA e baixa qualidade Ly6g expressão. Os PMN em bibliotecas de scRNA-Seq podem ser identificados utilizando o comando 'count' no Cell Ranger e incluindo a opção 'force cell = 8000' na linha de comando. Essa análise foi realizada tanto para o BALB (A) e BALB NeuT (B) bibliotecas de glândula mamária, mas poucas células expressavam genes específicos de PMN. Todos os agrupamentos de células mieloides em BALB e BALB NeuT também expressaram Adgre1 (F4/80) e Mrc1 (CD206). Muito poucas células nas populações mieloides expressam os genes específicos de neutrófilos S100a8, Trem1, e Clec4e. No entanto, essa descoberta se deve ao background BALB do modelo, já que bibliotecas de scRNA-Seq preparadas utilizando a técnica de dissociação a partir de camundongas fêmeas NeuT (BALBxPWK)F1, conforme descrito aqui (C), sem o comando da célula de força, foram observadas abrigando um agrupamento de células que expressam genes específicos de PMN, mas não Adgre1. Isso destaca que este protocolo de dissociação pode, de fato, capturar PMNs além de outras populações mieloides. Caixas retangulares vermelhas destacam aglomerados que expressam Adgre1. Clique aqui para visualizar uma versão maior desta figura.
| Tumor de BALB NeuT | Citometria de Fluxo | scRNA-Seq |
| CD3 / Linfócitos | 6% das células totais (12% das células CD45+) | 7% das células totais |
| CD4 / Cd4 | 3,9% das células totais (65% das células CD45+CD3+) | 4% das células totais |
| CD8 / Cd8a | 1% das células totais (17% das células CD45+CD3+) | 0,9% das células totais |
| Foxp3 / Foxp3 | 0,8% das células totais (33% das células CD3+CD4+) | 0,7% das células totais |
| F4/80 / Adgre1 | 20% das células totais | 16% das células totais |
| CD64 / Fcgr1 | NT | 14% das células totais |
| PMN/neutrófilos | 2% das células totais (5% das células CD45+) | 0,05% das células totais |
| PDGFRa (CD140a) / Estroma | 29% das células totais | 10% das células totais |
| EpCAM / Epitelial | 32% das células totais | 54% das células totais |
| NT, não testado |
Tabela 1: Comparação das porcentagens de células obtidas a partir deste protocolo de dissociação utilizando técnicas subsequentes, incluindo sequenciamento de RNA de única célula e citometria de fluxo.
Discussão
Este protocolo de dissociação produz consistentemente suspensões de células isoladas compostas por populações representativas do tecido original. Para isolar tipos celulares representativos — incluindo fibroblastos maiores e células-tronco adipogênicas — do tecido mamário, foi utilizada uma força centrífuga de 500 x g14,21,22. A viabilidade e os epítopos de superfície celular são confiavelmente mantidos em múltiplos tipos celulares, incluindo populações imunes, epiteliais e estromais. Uma das vantagens logísticas deste protocolo de dissociação é o tempo relativamente curto necessário para avançar da coleta inicial do tecido até uma suspensão celular limpa, pronta para processamento adicional, sem a necessidade de equipamentos especializados. No geral, este fluxo de trabalho leva aproximadamente três horas para ser concluído do início ao fim, uma vantagem em relação a protocolos semelhantes de dissociação enzimática que podem exigir exposição noturna da amostra à enzima. Este protocolo foi desenvolvido e tem sido utilizado neste e em outros laboratórios no formato fornecido desde 2023. Somente nos últimos 6 meses, o laboratório realizou o protocolo 37 vezes com resultados semelhantes, e todos os níveis de treinamento conseguiram completá-lo com sucesso. Além da citometria de fluxo e da geração de bibliotecas para scRNA-Seq, o protocolo tem sido usado para isolar linfócitos infiltrantes no tumor (TIL) e macrófagos associados ao tumor (TAM) para análise funcional ex vivo. Embora os resultados demonstrem que o protocolo de dissociação pode identificar as principais populações celulares, é importante observar que a citometria de fluxo e o scRNA-Seq são fundamentalmente diferentes. A citometria de fluxo é projetada para estudar células quanto à expressão de múltiplos marcadores ao nível de célula única e utiliza estratégias de seleção (gating) e subseleção (sub-gating) para alcançar esse objetivo. O scRNA-Seq, por outro lado, é projetado para identificar alterações na expressão gênica em um agrupamento de células sem o uso de seleção e subseleção.
A solução de problemas do protocolo incluiu: 1) Digestão incompleta: A digestão de amostras de tecido é altamente influenciada pela dissociação física. Pique o tecido até que se assemelhe a uma pasta, espalhando-o para observar o(s) tamanho(s) dos fragmentos de tecido. Esta etapa leva mais tempo do que geralmente se espera. A dissociação incompleta resulta em um número reduzido de células estromais e epiteliais em comparação com células imunes. 2) Baixa viabilidade: A viabilidade celular é influenciada pelo tempo de digestão e pela manutenção da proporção 2:1 de colagenase tipo II para colagenase D. A falta de colagenase tipo II resultará em viabilidade celular significativamente reduzida. Além disso, se a viabilidade da amostra estiver entre 70–85%, sistemas comerciais de remoção de células mortas são eficazes para melhorar a viabilidade e são recomendados antes do envio das amostras para a geração de bibliotecas de scRNA-Seq. 3) Alto nível de debris celular: O debris celular é frequentemente um efeito colateral da dissociação física e da digestão. O debris é mais eficazmente removido utilizando um meio de gradiente de densidade ou uma solução comercial de remoção de debris com densidade significativamente reduzida. 4) Baixa recuperação do pellet: A baixa recuperação da amostra é influenciada principalmente pela quantidade de tecido inicial. Este protocolo foi otimizado para 2 glândulas mamárias ou tumores de tamanho médio variando entre 10 e 20 mg. Se o tamanho da amostra inicial contiver menos do que uma única glândula mamária ou um tumor menor que ~200 mm3, o rendimento celular será baixo. Se os tamanhos de tecido forem pequenos, os volumes podem ser reduzidos em 50%. Da mesma forma, se houver tumores grandes ou múltiplas glândulas mamárias (mais de 4 glândulas mamárias ou tumores maiores que ~25 mg), os volumes podem ser aumentados para 1,5 ×. Amostras maiores que ~25 mg devem ser divididas para processamento. 5) Baixa qualidade do scRNA-Seq: A qualidade das bibliotecas de scRNA-Seq depende quase inteiramente da qualidade da amostra original. Ao trabalhar com tecidos tumorais, o momento inicial da formação de géis com microgotas em emulsão (GEM) e da geração de cDNA é essencial. Por essa razão, ter um protocolo que transite naturalmente para fixação imediata de RNA, como um sistema de química de célula única baseado em sonda com RNA fixado, elimina o tempo como variável que afeta a qualidade da amostra. Dito isso, avaliar a qualidade do RNA antes de entrar no fluxo de trabalho do scRNA-Seq garante que as bibliotecas resultantes sejam informativas. 6) Número inferior ao esperado de agrupamentos celulares: Quando os resultados do scRNA-Seq mostram baixos níveis de expressão gênica em alguns agrupamentos únicos, as bibliotecas podem ser sequenciadas novamente para aumentar o número de leituras (profundidade de sequenciamento). Além disso, se o estudo estiver buscando apenas células imunes, então a purificação da população CD45+ antes da geração da biblioteca aumentará a sensibilidade do sequenciamento.
O protocolo comercial de fixação e dissociação referenciado acima apresentou dificuldades no processamento de tecido adiposo. Principalmente, o tecido adiposo fixado era flutuante e difícil de dissociar e filtrar eficazmente. Por esse motivo, não se recomenda o uso do protocolo comercial de fixação e dissociação empregado aqui para tecido adiposo. A fixação do tecido antes da dissociação em uma suspensão de células únicas eliminou etapas de controle de qualidade, como a medição da viabilidade pós-fixação e da eficiência de dissociação. Isso dificultou a estimativa da qualidade da amostra antes do envio para sequenciamento de RNA em única célula (scRNA-seq), uma etapa necessária no processo de dissociação tecidual. A fixação do tecido para scRNA-seq em etapas subsequentes pode degradar o RNA. A qualidade do RNA pode ser avaliada mediante a análise do comprimento das leituras de nucleotídeos (nt) em amostras de células fixadas. Quanto maior a porcentagem da amostra com leituras de >200 nt, melhor será a qualidade. Amostras com pontuação de integridade de RNA apresentarão >30% da amostra com leituras >200 nt e, nesse caso, podem ser utilizadas para gerar bibliotecas de scRNA-seq com alta confiabilidade. As amostras fixadas de glândula mamária BALB e de tecidos tumorais BALB NeuT relatadas aqui apresentaram 83% e 82% das leituras com >200 nt, respectivamente.
Tecidos com alto teor de gordura, como glândulas mamárias, apresentam um problema porque os adipócitos podem interferir na obtenção de preparações celulares de alta qualidade. A maioria dos adipócitos permanece na parte superior do tubo cônico e pode ser removida por vácuo ou por decantação do sobrenadante. Descobrimos que glândulas mamárias extremamente gordurosas, como as de fêmeas com fundo genético New Zealand Obese (NZO), exigem uma etapa adicional: passar um lenço laboratorial limpo e livre de fiapos na superfície superior do tubo para facilitar a remoção dos adipócitos, seguido de etapas adicionais de lavagem para remover completamente o tecido adiposo. Os tecidos mamários também tendem a apresentar rendimentos mais baixos. Para mitigar esse problema, as amostras são agrupadas sempre que possível, a fim de aumentar o rendimento celular. Em tumores muito firmes, o piqueamento adequado é essencial, pois proporciona uma área superficial reduzida para a digestão pelas colagenases no tempo necessário para gerar células únicas com alta viabilidade.
Este protocolo, no entanto, possui suas limitações. Digestar completamente as células epiteliais em uma suspensão única é desafiador ao obter uma mistura heterogênea de células. Os tumores mamários BALB NeuT são geralmente firmes, com uma cápsula tumoral e um componente estromal robusto. Em contraste, a coleta de células imunes infiltrantes exige pouca exposição à enzima, e a superexposição pode alterar seu estado fenotípico. Assim, para coletar células tumorais e estromais, é necessário encontrar um equilíbrio que mantenha a qualidade dessa diversa gama de tipos celulares, incluindo neutrófilos infiltrantes. Portanto, as proporções de células epiteliais e estromais obtidas por este protocolo podem ser menores do que as realmente representadas no tecido original. Este protocolo foi otimizado por meio de diversos ensaios que avaliaram as proporções da enzima colagenase e os tempos de dissociação, a fim de determinar as melhores práticas para coletar uma amostra altamente viável, ainda que heterogênea, de células de alta qualidade. Utilizando este protocolo, as perspectivas futuras incluem a análise funcional ex vivo de células imunes infiltrantes durante o início e a progressão de tumores mamários, com o objetivo de identificar janelas de oportunidade para o tratamento.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Os dados apresentados aqui foram adquiridos, em parte, utilizando instrumentação do Núcleo de Genômica (RRID: SCR_012406), com apoio do Escritório de Pesquisa da Michigan State University & Inovação.
Este trabalho foi financiado pelo CA278818.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| RPMI | Gibco | 11875-093 | |
| DNAse | Invitrogen | 18047019 | |
| Colagenase D | Sigma | 11088866001 | |
| Colagenase II | Worthington Biochemical | LS004177 | |
| Soro bovino fetal | VWR | 97068-085 | |
| PBS 10x | Gibco | 70011-044 | |
| Azida de sódio | VWR | 0639-250G | |
| MACS Smart Strainer, 70 µm | Miltenyi Biotec | 130-110-916 | |
| MACS Smart Strainer, 30 µm | Miltenyi Biotec | 130-110-915 | |
| EDTA | Millipore | 324506-100ML | |
| Tampão de lise de eritrócitos 10x | eBioscience/Invitrogen | 00-4300-54 | |
| Kit de fixação/permeabilização para Foxp3/fator de transcrição | eBioscience/Invitrogen | 00-5523-00 | |
| Brilliant Stain Buffer | Invitrogen | 00-4409-42 | |
| Kit Mojosort de remoção de células mortas | Biolegend | 580157 | |
| Tampão Mojosort (5x) | Biolegend | 480017 | |
| Quick-RNA Miniprep Plus Kit | Zymo Research | R1057 | |
| Kit de dissociação tumoral, camundongo | Miltenyi Biotec | 130-096-730 | |
| PDGFRα PerCP-eFluor710 | Invitrogen | 46-1401-80 | |
| Epcam eF450 | Invitrogen | 48-5791-82 | |
| CD11c APC | Biolegend | 117310 | |
| CD11b AF700 | Invitrogen | 56-0112-82 | |
| Corante de viabilidade fixável eF780 | Invitrogen | 65-0865-14 | |
| B220/CD45R AF488 | Biolegend | 103225 | |
| CD3 PE-Cy7 | Invitrogen | 25-0031-82 | |
| CD49b PerCP-eFluor710 | Invitrogen | 46-5971-82 | |
| CD8a BV480 | Invitrogen | 414-0081-80 | |
| CD4 SB600 | Invitrogen | 63-0041-82 | |
| CD45 BV711 | Invitrogen | 407-0451-80 | |
| FOXP3 APC | Invitrogen | 17-5773-82 | |
| Ly6G APC | Invitrogen | 17-5931-82 | |
| Ly6C PECy7 | Invitrogen | 25-5932-82 | |
| CD64 PerCP-eFluor710 | 46-0641-80 | ||
| TruStain | Biolegend | 101320 | |
| Kit de reagentes 10x Genomics GEM-X Flex para expressão gênica | 10x Genomics | (https://www.10xgenomics.com/blog/answering-your-questions-about-single-cell-analysis-in607 clinical-ffpe-samples);1000781 | |
| Citômetro de fluxo Attune NxT | Thermo Fisher Scientific | Utilizado para coleta de dados de citometria de fluxo com canais a laser vermelho, azul e violeta. | |
| FCS Express | De Novo Software | Utilizado para análise de dados de citometria de fluxo. | |
| Kit de dissociação tumoral da Miltenyi | um kit comercial de dissociação tumoral | ||
| Kit da Miltenyi / protocolo da Miltenyi | o kit comercial" ou "o kit de referência | ||
| Enzima Liberase | uma mistura comercial de termolisina/colagenase | ||
| Chop Fix | um protocolo comercial de dissociação com fixação prévia | ||
| Química Flex / sistema de química Flex | uma química de RNA fixado baseada em sonda para análise de célula única | ||
| Seurat | (https://satijalab.org/seurat/ | ferramentas de agrupamento de código aberto e de fornecedor | |
| Cell Ranger | ferramentas de agrupamento de código aberto e de fornecedor | ||
| Loupe Cell Browser | ferramentas de agrupamento de código aberto e de fornecedor | ||
| EnrichR | https://maayanlab.cloud/Enrichr/) | ferramentas de enriquecimento de conjuntos gênicos e de atlas celular de referência | |
| Tabula Muris | https://tabula400 muris.sf.czbiohub.org/visualizations | ferramentas de enriquecimento de conjuntos gênicos e de atlas celular de referência | |
| Tabula Sapiens | https://tabula-sapiens.sf.czbiohub.org/ | ferramentas de enriquecimento de conjuntos gênicos e de atlas celular de referência | |
| Instrumento Cellometer K2" e "acrídio laranja / iodeto de propídio (AOPI)" | um contador celular automatizado com coloração de viabilidade por acrídio laranja/iodeto de propídio (AO/PI) | ||
| Kimwipe | um lenço laboratorial sem fiapos | ||
| STEMCELL Technologies | um meio de gradiente de densidade (por exemplo, um meio tipo Ficoll ou Percoll) | ||
| Ficoll/Percoll | lâminas de bisturi #10 | ||
| dois bisturis #10 | |||
| Cellometer K2 + reagente AOPI | um contador celular automatizado com coloração de viabilidade por acrídio laranja/iodeto de propídio (AO/PI) | ||
| STEMCELL Technologies | STEMCELL Technologies, www.stemcell.com, 2018 | ||
| Ficoll/Percoll | um meio de gradiente de densidade | ||
| Bisturis #10 | lâmina de bisturi cirúrgico | ||
| Kit de fixação/permeabilização para Foxp3/fator de transcrição | solução comercialmente disponível que permite coloração intra-nuclear |
Referências
- Jacob JB, et al. Identification of actionable targets for breast cancer intervention using a diversity outbred mouse model. iScience. 2023;26(4):106320. doi:10.1016/j.isci.2023.106320.
- Jacob J, et al. Activity of DNA vaccines encoding self or heterologous HER-2/neu in HER-2 or neu transgenic mice. Cell Immunol. 2006;240(2):96–106.
- Radkevich-Brown O, Jacob J, Kershaw M, Wei WZ. Genetic regulation of the response to HER-2 DNA vaccination in human HER-2 transgenic mice. Cancer Res. 2009;69(1):212–8.
- Lee SH, et al. Activation function 1 of progesterone receptor is required for mammary development and regulation of RANKL during pregnancy. Sci Rep. 2022;12(1):12286. doi:10.1038/s41598-022-16289-x.
- Autengruber A, et al. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur J Microbiol Immunol (Bp). 2012;2(2):112–20.
- Bondonese A, et al. Impact of enzymatic digestion on single cell suspension yield from peripheral human lung tissue. Cytometry A. 2023;103(10):777–85.
- Jankelow A, et al. Recent advancements in tissue dissociation techniques for cell manufacturing single-cell analysis and downstream processing. Stem Cells Transl Med. 2025;14(11):szaf055. doi:10.1093/stcltm/szaf055.
- Lombardo JA, et al. Microfluidic platform accelerates tissue processing into single cells for molecular analysis and primary culture models. Nat Commun. 2021;12(1):2858. doi:10.1038/s41467-021-23238-1.
- Sun H, Xu X, Deng C. Preparation of single epithelial cells suspension from mouse mammary glands. Bio Protoc. 2020;10(4):e3530. doi:10.21769/BioProtoc.3530.
- Rodriguez de la Fuente L, Law AMK, Gallego-Ortega D, Valdes-Mora F. Tumor dissociation of highly viable cell suspensions for single-cell omic analyses in mouse models of breast cancer. STAR Protoc. 2021;2(4):100841. doi:10.1016/j.xpro.2021.100841.
- Prater M, Shehata M, Watson CJ, Stingl J. Enzymatic dissociation, flow cytometric analysis, and culture of normal mouse mammary tissue. Methods Mol Biol. 2013;946:395–409.
- Burl RB, et al. Deconstructing adipogenesis induced by β3-adrenergic receptor activation with single-cell expression profiling. Cell Metab. 2018;28(2):300–9.e4.
- Rondini EA, et al. Single cell functional genomics reveals plasticity of subcutaneous white adipose tissue during early postnatal development. Mol Metab. 2021;53:101307. doi:10.1016/j.molmet.2021.101307.
- Sharifian Gh M, Norouzi F. Guidelines for an optimized differential centrifugation of cells. Biochem Biophys Rep. 2023;36:101585. doi:10.1016/j.bbrep.2023.101585.
- Pohlmann PR, Mayer IA, Mernaugh R. Resistance to trastuzumab in breast cancer. Clin Cancer Res. 2009;15(24):7479–91.
- Gajria D, Chandarlapaty S. HER2-amplified breast cancer: mechanisms of trastuzumab resistance and novel targeted therapies. Expert Rev Anticancer Ther. 2011;11(2):263–75.
- Swain SM, et al. Pertuzumab, trastuzumab, and docetaxel for HER2-positive metastatic breast cancer (CLEOPATRA): end-of-study results from a double-blind, randomised, placebo-controlled, phase 3 study. Lancet Oncol. 2020;21(4):519–30.
- Swain SM, Shastry M, Hamilton E. Targeting HER2-positive breast cancer: advances and future directions. Nat Rev Drug Discov. 2023;22(2):101–26.
- Boggio K, et al. Interleukin 12-mediated prevention of spontaneous mammary adenocarcinomas in two lines of HER-2/neu transgenic mice. J Exp Med. 1998;188(3):589–96.
- Gsell L, et al. Multi-cellular phenotypic dynamics during the progression of an immunocompetent breast cancer model. iScience. 2025;28(11):113808. doi:10.1016/j.isci.2025.113808.
- Kilroy G, et al. Isolation of murine adipose-derived stromal/stem cells for adipogenic differentiation or flow cytometry-based analysis. Methods Mol Biol. 2018;1773:137–46.
- Orr JS, Kennedy AJ, Hasty AH. Isolation of adipose tissue immune cells. J Vis Exp. 2013;(75):e50707. doi:10.3791/50707.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve