Este trabalho apresenta um protocolo para obtenção de embriões clonados de uma espécie de veado ameaçada utilizando ovócitos enucleados de bovinos. Aqui, descrevemos detalhadamente a metodologia de transferência nuclear de células somáticas interespecífica e o uso de ovócitos sem zona pelúcida como citoplasmas. Além disso, os resultados obtidos são discutidos em detalhes.
Artigo de método
Transferência Nuclear de Células Somáticas Interspecífica Utilizando Oócitos Livres de Zona Pellúcida de Bovinos (Bos taurus) e Fibroblastos de Veado (Mazama americana)
Neste artigo
Resumo
Resumo
As biotecnologias reprodutivas utilizadas em animais permitem aumentar populações de espécies com alto valor genético. Além disso, essas tecnologias auxiliam na conservação, preservação e disseminação de material genético de indivíduos com características superiores. O resgate genético de indivíduos selecionados tem levado a inúmeros estudos em espécies domésticas com o objetivo de extrapolar os resultados para outras populações animais ou indivíduos específicos. Uma dessas abordagens é a transferência nuclear de células somáticas (SCNT), ou clonagem, utilizada para produzir embriões com material genético idêntico ao de um espécime existente. Entre as limitações dessa técnica está a disponibilidade restrita de ovócitos de animais selvagens. Assim, como alternativa, surgiu a transferência nuclear de células somáticas interespecífica (iSCNT), que utiliza uma célula somática (carioplasto) da espécie a ser clonada como doadora do núcleo, inserindo-a em um ovócito enucleado (citoplasma) obtido de uma espécie pertencente a uma ordem ou táxon diferente. Essa abordagem permite obter embriões clonados viáveis. No Brasil, existem nove espécies de veados, muitas das quais estão ameaçadas de extinção devido à caça indiscriminada, perda de habitat e outras causas. O veado-catingueiro (Mazama americana) é uma das espécies afetadas por essas condições. Portanto, este trabalho apresenta uma metodologia para obtenção de embriões clonados de veado-catingueiro utilizando a técnica de iSCNT, com o objetivo de estabelecer um banco de embriões para posterior transferência a fêmeas receptoras e, assim, contribuir para a sobrevivência da espécie.
Introdução
A família Cervidae compreende atualmente 55 espécies de mamíferos ungulados com chifres verdadeiros – estruturas ósseas expostas na parte superior dos crânios dos machos, com exceção do rena (Rangifer tarandus), em que ambos os sexos os possuem1, e do veado-d'água-chinês (Hydropotes inermis), em que nenhum dos sexos os possui2. Os cervídeos pertencem à ordem Cetartiodactyla, que também inclui as famílias dos antílopes, bóvidos, suínos, tajassuídeos, camelos, tanges, girafas e hipopótamos. De modo geral, os cervídeos são ruminantes herbívoros que habitam uma grande variedade de ambientes em todo o mundo, exceto no continente antártico3.
Nove espécies pertencentes à família Cervidae são atualmente reconhecidas no Brasil: Odocoileus virginianus (cervo-de-cauda-branca), Blastocerus dichotomus (cervo-do-pântano), Ozotoceros bezoarticus (cervo-do-pampas), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira, e Passalites nemorivagus4.
Essa taxonomia reflete estudos moleculares recentes que mostram que o gênero Mazama é politifilético5, o que levou ao reconhecimento de Subulo6 e Passalites7 como gêneros válidos e distintos. Muitos desses cervídeos neotropicais estão cada vez mais ameaçados por pressões antrópicas, incluindo perda de habitat, fragmentação da paisagem e a consequente redução da diversidade genética associada ao isolamento populacional8.
Ao longo dos últimos 100 anos, as técnicas reprodutivas assistidas foram implementadas com sucesso inicialmente em mamíferos de laboratório e estão sendo gradualmente transferidas para espécies selvagens com alta prioridade de conservação9. Consequentemente, a grande maioria das biotecnologias reprodutivas evoluiu utilizando o modelo de mamíferos, e, portanto, esse grupo recebeu a maior parte da atenção nas pesquisas. Várias tecnologias reprodutivas foram adaptadas com sucesso para mamíferos, incluindo inseminação artificial, transferência de embriões, fertilização in vitro, sexagem de gametas e embriões, e a criopreservação de recursos genéticos10. No entanto, uma técnica em particular, a transferência nuclear de células somáticas (SCNT), destacou-se das demais devido aos seus resultados e ao potencial impacto quando utilizada em espécies ameaçadas11.
Entre as biotecnologias reprodutivas disponíveis, a clonagem permite a geração de indivíduos geneticamente idênticos ao animal doador. A transferência nuclear de células somáticas (SCNT) é a principal estratégia utilizada para clonagem, na qual o núcleo de uma célula somática é introduzido em um ovócito enucleado. No contexto de espécies selvagens, no entanto, sua aplicação é frequentemente limitada pela escassez de doadoras de ovócitos e pelas dificuldades técnicas associadas à recuperação de ovócitos12. Essas limitações levaram ao desenvolvimento da transferência nuclear de células somáticas interespecífica (iSCNT) como uma abordagem complementar em programas de conservação, na qual ovócitos de animais domésticos são usados como citoplasmas receptores para núcleos derivados de espécies ameaçadas (Figura 1). A viabilidade dessa abordagem foi demonstrada pela produção bem-sucedida de descendentes vivos de várias espécies selvagens utilizando iSCNT13,14,15.
Diferentes estratégias foram propostas para a produção de embriões clonados, dependendo da forma como os óocitos e as células doadoras são manipulados. Na abordagem convencional, óocitos com zona pelúcida intacta são enucleados, após o que a célula doadora é introduzida no espaço perivitelino e fundida por eletrofusão16. Outra possibilidade é a injeção direta do núcleo somático em um óocito com zona pelúcida, utilizando técnicas de micro-manipulação, como microinjeção17. Em contraste, os sistemas livres de zona pelúcida (ZP-free) simplificam o procedimento de clonagem ao evitar várias etapas de micro-manipulação, já que a enucleação pode ser realizada com uma pipeta rombuda sem a necessidade de equipamentos complexos18. Neste ensaio, propomos utilizar óocitos livres de zona pelúcida como citoplasmas durante a iSCNT para obter embriões clonados usando citoplasma bovino e carioplasma de veado.
Protocolo
Uma fêmea adulta de veado-mateiro foi recuperada pelas autoridades ambientais em Guaramiranga, Ceará, Brasil (4°13'53,0'' S, 38°56'42,6'' W). O animal foi recebido morto no Laboratório de Conservação de Cervídeos Neotropicais (LACCERNE), da Universidade Estadual do Ceará (UECE), Fortaleza, Brasil. Os achados da necropsia indicaram que a morte resultou de múltiplas lesões traumáticas causadas por um projétil de arma de fogo que penetrou pela região abdominal dorsolateral esquerda. O uso deste espécime foi autorizado pelo Comitê de Ética em Experimentação Animal da Universidade Estadual do Ceará (CEUA-UECE, número do protocolo 450620/2022) e pelo Instituto Brasileiro do Meio Ambiente e dos Recursos Naturais Renováveis (IBAMA, número do protocolo 02027.014734/99-34). Adicionalmente, o uso de ovários bovinos foi aprovado pelo CEUA/UECE (número do protocolo 31032.004671/2024-81). Os detalhes de todos os reagentes e equipamentos utilizados estão listados na Tabela de Materiais. Os dados que apoiam este estudo estão disponíveis no Zenodo no número DOI 10.5281/zenodo.22129414.
1. Soluções e meios de cultura
OBSERVAÇÃO: Realize todas as operações de filtração por meio de um filtro estéril de 0,22 µm e armazene o filtrado a 4 °C por até uma semana. Armazene a solução estoque a -20 °C.
- Meio de transporte: Adicione 8,1 g de NaCl e 0,045 g de pentabiótico e complete até 900 mL com água destilada.
- Solução salina tamponada com fosfato (PBS): Adicione 0,4 g de NaCl, 0,01 g de KCl, 0,077 g de NaH2PO4 e 0,01 g de KH2PO4, e complete até 50 mL com água ultrapura.
- Meio de cultura celular: Meio de Eagle Modificado por Dulbecco (DMEM) suplementado com 10% (v/v) de soro bovino fetal (FBS) e 1,0% (v/v) de solução de penicilina, estreptomicina e anfotericina B (ATB).
- Solução de criopreservação de fibroblastos: DMEM suplementado com 10% (v/v) de FBS, 10% (v/v) de dimetilsulfóxido (DMSO) e 2,0% (v/v) de solução ATB.
- Tripsina-EDTA (0,25%).
- Meio de manipulação: Meio de Tyrode tamponado com HEPES contendo albumina, lactato e piruvato (H-TALP). Utilize este meio para todos os procedimentos realizados fora da incubadora. Para 1 L, adicione 6,763 g de NaCl, 0,239 g de KCl, 0,294 g de CaCl2·2H2O, 0,048 g de MgCl2, 0,168 g de NaHCO3 e 3,575 g de HEPES a 981,86 mL de água estéril testada para embriões. Agite suavemente e adicione 10 mL de antibiótico–antimicótico, 1 mL de vermelho de fenol, 1,44 mL de lactato de sódio, 1 mL de estoque de piruvato de sódio 100 mM e 3 g de albumina sérica bovina (BSA). Ajuste a osmolaridade para 280 mOsm e o pH para uma faixa de 7,2 a 7,4. Divida em alíquotas de 50 mL e armazene a 4 °C por até um mês.
- Meio de maturação in vitro: Meio 199 (TCM-199) suplementado com 10% (v/v) de FBS, 10 ng/mL de fator de crescimento epidérmico (EGF), 1 mM de piruvato de sódio, 100 µM de cisteína, 10 µg/mL de hormônio folículo-estimulante (FSH), 1 µg/mL de estradiol e 1% (v/v) de solução ATB. Ajuste o pH para 7,2–7,4.
- Solução de hialuronidase (concentração final: 1 mg/mL): Dissolva 10 mg de hialuronidase em 10 mL de H-TALP. Prepare alíquotas de 200 µL em tubos de 1,5 mL, prontas para uso.
- Solução de pronase (concentração final: 1,5 mg/mL): Dissolva 15 mg de pronase em 10 mL de H-TALP. Prepare alíquotas de 200 µL em tubos de 1,5 mL, prontas para uso.
- Demecolcina (concentração final: 0,4 µg/mL): Dissolva 5 mg de demecolcina (DMC) em 125 µL de DMSO e prepare alíquotas de 5 µL (solução estoque). Congele as alíquotas até o uso. Dilua-as misturando 2 µL da solução estoque com 1998 µL de TCM para obter a solução de trabalho. Antes do uso, adicione 5 µL da solução de trabalho a 495 µL de fluido sintético de oviduto (SOF).
- Hoechst (concentração final: 10 µg/mL): Dissolva 1 mg/mL de Hoechst 33342 em H-TALP. Prepare alíquotas de 5 µL e diluições 1:100 em meio de cultura SOF.
CAUTION: O Hoechst 33342, usado para visualizar o DNA nuclear sob luz UV, é um agente intercalante e um forte mutagênico. Manipule-o com os devidos equipamentos de proteção individual. - Fitohemaglutinina (concentração final: 1 mg/mL): Dissolva 5 mg de fitohemaglutinina (PHA) em 500 µL de H-TALP. Prepare alíquotas de 10 µL em tubos de 200 µL. Para uso, adicione 90 µL de H-TALP.
- Meios para fusão celular: 0,3 M de manitol, 0,1 mM de MgSO4, 0,05 mM de CaCl2, 0,5 mM de HEPES e 1 mg/mL de álcool polivinílico (PVA) em água ultrapura. Utilize no mesmo dia da preparação.
- Ionomicina (concentração final: 5 µM): Adicione 1 mL de DMSO ao frasco de ionomicina (1 mg/frasco). Adicione 1,67 mL de TCM-199. Congele alíquotas de 10 µL em tubos de 1,5 mL a -20 °C. Para uso, adicione 990 µL de H-TALP ao conteúdo de cada tubo de 1,5 mL. Proteja da luz.
- 6-Dimetilaminopurina (concentração final: 2 mM): Dissolva 10 mg de 6-dimetilaminopurina (6-DMAP). Congele alíquotas de 50 µL em tubos de 1,5 mL a -20 °C. Para uso, adicione 950 µL de SOF ao conteúdo de cada tubo de 1,5 mL.
- Meio de cultura de embriões: 0,2 mM de L-glutamina, 0,2 mM de piruvato de sódio, 2% de aminoácidos essenciais do Meio Basal Eagle (BME), 1% de aminoácidos não essenciais MEM 100×, 1,0% (v/v) de solução ATB, 2,77 mM de mio-inositol, 2,5% (v/v) de FBS, 10 µL/mL de ITS (mistura de insulina, transferrina humana e selenito de sódio) e 3 g/L de BSA.
2. Coleta e manipulação da amostra de tecido doador
- Lave e depile a superfície da orelha da fêmea doadora com sabão e água; em seguida, desinfete a área com álcool (70%).
- Retire uma pequena amostra da orelha (1 × 2 cm) com uma lâmina de bisturi, coloque-a em uma solução de PBS contendo 4% de ATB e transporte-a para o laboratório mantendo-a a 4 °C.
- Corte o espécime da biópsia em pequenos pedaços usando uma lâmina de bisturi e coloque-os em uma placa de Petri de 35 mm coberta com meio de cultura. Incube a 38,5 °C sob umidade saturada com 5% de CO₂.
- Substitua o meio de cultura a cada 48 h até que as células atinjam confluência, a fim de prevenir contaminação.
- Remova o meio de cultura da placa confluente e adicione 1 mL de tripsina-EDTA 0,25% a uma placa de Petri de 35 mm durante 2 min.
- Para inativar a tripsina, adicione 2 mL de meio de cultura celular. Transfira a suspensão celular para um tubo de 15 mL e centrifugue a 200 x g durante 10 min à temperatura ambiente (≈ 25 °C).
- Remova o sobrenadante e ressuspenda o pellet celular em 10 mL de meio de cultura. Passe a cultura de fibroblastos a cada 5 dias.
- Criopreserve os fibroblastos ressuspendendo o pellet celular em 1 mL de solução criopreservante. Transfira a suspensão celular para criovials, coloque-os a -80 °C em um recipiente de congelamento com taxa controlada por 18 h e, em seguida, transfira-os para um tanque de nitrogênio líquido (-196 °C) até o uso. Após a criopreservação dos fibroblastos, a manipulação celular pode ser interrompida e reiniciada apenas no momento da sincronização do ciclo celular.
- Descongele e cultive os fibroblastos 1-2 semanas antes de seu uso para iSCNT.
3. Sincronização do ciclo celular
- Sincronize o ciclo celular por confluência na fase G0/G1.
- Remova o meio de cultura da placa confluente e adicione 1 mL de tripsina-EDTA 0,25% a uma placa de Petri de 35 mm durante 2 min no incubador de CO₂ a 38,5 °C. Adicione 2 mL de meio de cultura para inativar a tripsina.
- Transfira a suspensão celular para um tubo de 15 mL e centrifugue a 200 x g durante 10 min.
- Remova o sobrenadante e re-suspenda o sedimento celular em 1-3 mL de meio de cultura celular para iSCNT.
4. Coleta de óvulos
- Colete ovários de novilhas ou vacas imediatamente após o abate e transporte-os para o laboratório em um termocontêiner contendo meio de transporte, mantendo uma temperatura de 25-30 °C.
- Lave os ovários duas vezes com meio de cultura e coloque-os em um béquer em banho-maria a 38,5 °C.
- Aspire o líquido folicular de folículos com diâmetro entre 2-8 mm utilizando uma agulha de 18 gauge acoplada a uma seringa de 10 mL contendo meio H-TALP.
- Transfira o líquido folicular aspirado para um tubo cônico de 50 mL e deixe repousar por pelo menos 15 min em banho-maria a 38,5 °C.
5. Maturação e desnudamento de ovócitos
- Após 15 min, transfira cuidadosamente todo o pellet usando uma pipeta Pasteur de plástico para uma placa de Petri (100 × 15 mm).
- Utilize um estereomicroscópio para selecionar os complexos cumulus-óvulo (COCs) que apresentem pelo menos três camadas compactas de células do cumulus e correspondam aos graus I a III (Tabela 1)19.
- Lave os COCs três vezes com H-TALP pela metade e, em seguida, duas vezes com meio de maturação in vitro.
- Transfira 20-25 COCs para cada gota de 100 µL de meio de maturação in vitro recoberta com óleo mineral. Incube-os a 38,5 °C em uma atmosfera contendo 5% de CO₂ e umidade saturada por 20-22 h.
- Remova as células do agregado de COC pipetando suavemente em 200 µL de solução de hialuronidase por 2 min.
- Lave os ovócitos livres das células do cumulus em 2 mL de meio H-TALP.
- Em um estereomicroscópio, selecione os ovócitos que apresentem extrusão do primeiro corpo polar (metáfase II - MII) para os passos subsequentes.
6. Remoção da zona pelúcida, enucleação e reconstrução de ovócitos livres de zona pelúcida
- Incube os ovócitos em estágio MII em uma gota de 100 µL de solução de pronase a 38,5 °C por 1-2 min. Observe ao microscópio estereoscópico até que a zona pelúcida comece a afinar.
- Recupere imediatamente os ovócitos e coloque-os no meio de cultura suplementado com 20% de soro bovino fetal (FBS) para inativar a pronase.
- Incube os ovócitos sem a zona pelúcida em meio SOF contendo 0,4 µg/mL de demecolcina por 20 min para induzir uma protrusão citoplasmática contendo DNA, seguido por uma segunda incubação de 20 min no mesmo meio suplementado com 10 µg/mL de Hoechst.
- Transfira os ovócitos sem zona pelúcida para gotas de H-TALP e realize a enucleação utilizando micromanipuladores acoplados a um microscópio invertido.
- Posicione o ovócito ao lado da pipeta de fixação.
- Rotacione o ovócito até que a protrusão esteja posicionada na posição das três horas e aspire a protrusão junto com 5-10% do citoplasma utilizando uma pipeta de injeção com ponta romba de 25 µm.
- Confirme a enucleação bem-sucedida observando o citoplasma aspirado sob luz ultravioleta (Figura 2).
CAUTELA: A exposição dos ovócitos a corantes de DNA e luz ultravioleta danifica o material genético e induz estresse oxidativo. Minimize o tempo de exposição.
7. Fusão celular
- Monte a câmara de fusão sob um microscópio estereoscópico e preencha-a com 2 mL de meio de fusão com pH 7.
- Em uma placa de Petri de 60 mm, prepare cinco gotas de 100 µL e uma gota de 30 µL de H-TALP e adicione 50 µL de PHA.
- Adicione 5 µL de fibroblastos à gota de 30 µL de H-TALP, selecione as células uniformes e refrativas e transfira-as para uma gota de 100 µL de H-TALP.
- Transfira os ovócitos enucleados para uma gota de 100 µL de H-TALP.
- Exponha o ovócito à gota de PHA por 4 s, coloque-o sobre uma célula e confirme a adesão entre ambos. Em seguida, transfira o complexo para uma gota de TALP-H livre de qualquer conteúdo.
- Após a adesão entre o ovócito e a célula, transfira-os para uma placa contendo 2 mL de meio de fusão para permitir sua sedimentação. Em seguida, posicione o complexo na câmara de fusão entre os eletrodos, com a célula na posição seis ou 12 horas.
CAUTION: Os tampones de ativação utilizados durante a eletrofusão contêm ionomicina, que altera a homeostase de cálcio celular. Campos elétricos de alta voltagem representam risco de choque elétrico ou arco elétrico se o equipamento estiver úmido ou for manipulado incorretamente. - Realize a fusão utilizando uma câmara de microfusão com distância de 0,2 mm entre os eletrodos. Com um eletroporador, aplique uma única sequência de pulsos composta por dois pulsos diretos unidirecionais a 0,72 kV/cm, com duração de 30 µs cada pulso e intervalo de 0,1 s entre eles.
- Após aplicar o pulso, transfira cada par ovócito-célula individualmente para microgotas de 5 µL de SOF suplementado com 2,5% de FBS e cultive-os a 38,5 °C em atmosfera com 5% de CO₂.
- Avalie a fusão individualmente após 30 min sob microscópio estereoscópico.
- Submeta as estruturas não fundidas a uma segunda rodada de fusão.
- Considere os complexos fundidos como embriões reconstituídos sem zona pelúcida e incube-os por 2 h até a ativação (tempo de reprogramação).
8. Ativação de ovócitos e cultura de embriões
- Incubar as estruturas reconstruídas em gotas de 100 µL de meio H-TALP contendo 5 µM de ionomicina durante 4 min.
- Lavar as estruturas reconstruídas em quatro gotas de 100 µL de meio H-TALP.
- Incubar as estruturas reconstruídas em gotas de 100 µL de meio SOF contendo 2 mM de 6-DMAP durante 3 h.
- Lavar as estruturas reconstruídas em quatro gotas de 100 µL de meio SOF.
- Produzir placas de microcavidades usando uma micropipeta de vidro aquecida levemente pressionada contra o fundo de uma placa de Petri de 35 × 10 mm. Produzir entre 20 e 25 microcavidades, cada uma com 500 µm de diâmetro e 250 µm de profundidade20.
- Colocar os embriões reconstruídos individualmente nas cavidades da microplaca modificada, cobri-los com 100 µL de meio SOF e, finalmente, com 3 mL de óleo mineral. Colocar as microplacas em um incubador de gás triplo com 5% de CO₂, 5% de O₂ e 90% de N₂ por 7 dias.
Resultados
Os resultados foram analisados utilizando o software R (v.4.5.2). As taxas de clivagem e de blastocisto foram comparadas entre os pares (veado/bovino vs bovino/bovino) utilizando o teste exato de Fisher. Foram realizadas dez repetições: quatro do par veado/bovino e seis do par bovino/bovino. Adicionalmente, para todas as análises, o nível de significância foi estabelecido em 5%.
Durante o ensaio, 472 oócitos bovinos obtidos de um matadouro local foram utilizados como receptores de citoplasma. No entanto, após a maturação in vitro e subsequente eletrofusão, 73 estruturas não conseguiram se fundir e foram excluídas das etapas seguintes, resultando em 399 estruturas de cariocélula/citoplasma com fusão bem-sucedida. Deste total, os seguintes pares (cariocélula/citoplasma) foram utilizados: quatro repetições de cervo/bovino (n = 175) e seis repetições de bovino/bovino (n = 224) (Tabela 2).
Para avaliar o impacto da iSCNT, embriões reconstruídos sem zona pelúcida foram cultivados em microcavidades até o dia 7. Microfotografias representativas de mórulas e blastocistos sem zona pelúcida são mostradas na Figura 3.
Tabela 2 apresenta as taxas de clivagem e de blastocisto obtidas neste experimento. A taxa de clivagem não mostrou diferenças significativas (P = 0,74) entre os grupos (pares cervo/bovino e bovino/bovino). Por outro lado, em relação à taxa de formação de blastocisto, observou-se uma diferença estatística (P=0,02), com uma porcentagem maior no grupo de clonagem intrasspecífica. No entanto, é importante destacar a limitação de poder para este tipo de experimento, no qual o número de clones interespecíficos é comumente pequeno.
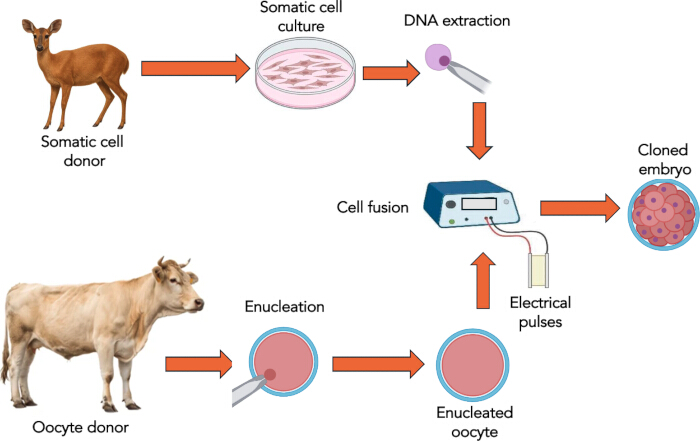
Figura 1: Estágios esquemáticos da Transferência Nuclear de Células Somáticas interespecífica. Vacas são utilizadas como doadoras de citoplasma, enquanto veados são utilizados como doadores de carioplasma. Após a obtenção do embrião clonado, ele pode ser transferido para fêmeas receptoras ou criopreservado para transferência futura. Clique aqui para visualizar uma versão maior desta figura.
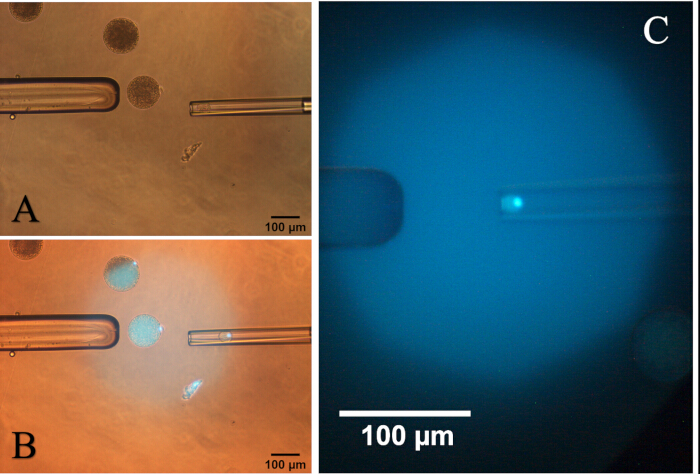
Figura 2: Fotomicrografia de oócito ativado com uma protrusão citoplasmática. (A) Rotação do oócito para posicionar a protrusão na posição das três horas. (B) Aspiração da protrusão com 5-10% do citoplasma sob exposição à luz ultravioleta. (C) Citoplasma e sua protrusão dentro da pipeta de aspiração sob luz ultravioleta. Clique aqui para visualizar uma versão maior desta figura.
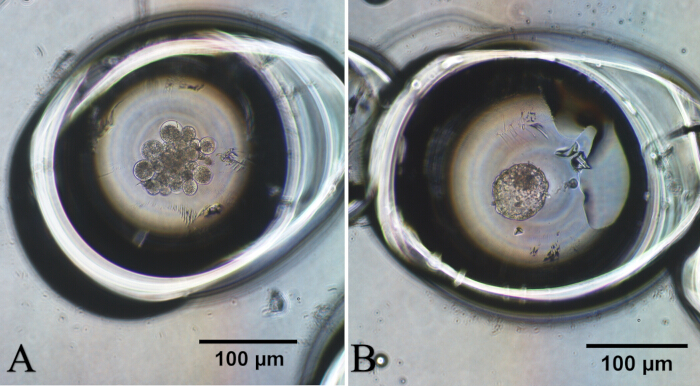
Figura 3: Fotomicrografia de embriões de veado produzidos por Transferência Nuclear de Célula Somática interespecífica. (A) Embrião clonado em estágio de mórula. (B) Embrião clonado em estágio de blastocisto. Clique aqui para visualizar uma versão ampliada desta figura.
| Nota | Nº de camadas de cumulus | Expansão do cumulus |
| I | > 3 | Cobertura completa do cumulus com várias camadas celulares compactas e ligeiramente soltas |
| II | 2 - 3 | Leve expansão nas camadas celulares externas |
| III | 1 | Cobertura parcial do cumulus e camadas celulares soltas |
| IV | 0 | Sem cumulus |
Tabela 1: Classificação de oócitos bovinos a serem posteriormente enucleados e utilizados como citoplasmas durante a transferência nuclear de células somáticas interespecífica (adaptado de Aguila et al.)19.
| Grupos (carioplasto/citoplasma) | Nº de réplicas | Nº de embriões reconstruídos | Nº de clivagem (%) | Nº de blastocisto (%) |
| Cervo/bovino | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| Bovino/bovino | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Letras diferentes na mesma coluna indicam diferença estatística. | ||||
| Taxa de clivagem: P = 0,74 | ||||
| Taxa de blastocisto: P = 0,02 | ||||
Tabela 2: Desenvolvimento in vitro de embriões clonados de veado-catingueiro utilizando citoplasma bovino. Foram realizadas dez repetições: quatro com pares veado-boi e seis com pares boi-boi. As taxas de clivagem e de blastocisto foram calculadas utilizando o número de embriões reconstruídos como denominador.
Discussão
Já está bem documentado que o genoma de espécies ameaçadas pode ser reprogramado usando ovócitos de animais domésticos, especialmente bovinos e suínos, que são a maior fonte de citoplasmas21. Um dos maiores avanços alcançados na iSCNT foi a clonagem da cabra-montês-dos-pirenéus (Capra pyrenaica pyrenaica), uma subespécie que havia desaparecido após a morte de seu último indivíduo conhecido. Os embriões reconstruídos foram obtidos pela fusão de células epiteliais da cabra-montês com ovócitos de cabra-doméstica (Capra hircus). Os autores obtiveram o nascimento de uma fêmea, sem anormalidades morfológicas externas. No entanto, a prole apresentou insuficiência respiratória grave e morreu alguns minutos após o nascimento22.
Um dos candidatos mais fortes para a "ressurreição" é o mamute-lanoso (Mammuthus primigenius). Para que a clonagem seja possível, é fundamental a disponibilidade de tecido viável com núcleos identificáveis, o que é difícil para uma espécie que desapareceu há aproximadamente 10.000 anos. Mesmo assim, os corpos de mamutes encontrados na camada de terra congelada atendem aos requisitos mínimos para iSCNT23. No entanto, talvez as espécies ameaçadas sejam candidatas mais adequadas para se beneficiarem do uso dessa técnica.
A taxa de segmentação observada em nosso estudo demonstrou que a ativação e a primeira divisão embrionária não foram afetadas pela combinação interespecífica de núcleo e citoplasma. Durante a fase de reconstrução, a manipulação e a fusão das estruturas (carioplasto/citoplasto) apresentaram a mesma facilidade técnica em ambos os grupos, sugerindo compatibilidade estrutural entre as espécies. Em relação à taxa de blastocisto, os resultados sugerem que, embora a reconstrução e a ativação inicial do embrião iSCNT não sejam um fator limitante, existe uma incompatibilidade nucleocitoplasmática que se manifesta em estágios posteriores do desenvolvimento, provavelmente relacionada à reprogramação epigenética incompleta ou à transição materna-zigótica, afetando a capacidade do embrião híbrido de atingir o estágio de blastocisto24. A eficiência da iSCNT tende a ser maior quando carioplastos e citoplastos são derivados de espécies filogeneticamente próximas, já que a produção natural de descendentes híbridos viáveis indica um certo grau de compatibilidade nucleocitoplasmática entre as duas espécies23. Assim, a SCNT entre subespécies já demonstrou produzir descendentes saudáveis. Os autores utilizaram citoplasma de cadela e fibroblasto de lobo e transferiram os embriões para 12 fêmeas, resultando no nascimento de um descendente25.
O uso da iSCNT enfrenta uma grande "limitação de eficiência" em sua eficácia biológica e desenvolvimental, que diminui drasticamente à medida que aumenta a distância evolutiva entre o núcleo doador e o ovócito receptor. Embora tenha sucesso entre espécies estreitamente relacionadas (por exemplo, gado doméstico e gaur)26, falha rotineiramente em produzir descendentes viáveis ou linhagens celulares embrionárias estáveis ao tentar atravessar fronteiras taxonômicas mais distantes.
A clonagem representa uma ferramenta importante para programas de melhoramento animal e conservação, pois permite a multiplicação de indivíduos geneticamente superiores, apoia a geração de animais transgênicos e contribui para a preservação a longo prazo de recursos genéticos valiosos por meio de bancos de genes. No entanto, a adoção da clonagem em programas de melhoramento de animais de criação ainda é limitada pelo baixo número de animais vivos produzidos em relação ao número de embriões transferidos18. As abordagens atuais para a produção de embriões clonados são geralmente divididas em duas categorias: clonagem convencional e clonagem sem zona pelúcida (ZP-free). Na abordagem convencional, é necessário um micromanipulador para remover o núcleo do ovócito e introduzir a célula somática doadora no citoplasma receptor26. Diferentemente da clonagem convencional, o método sem zona pelúcida é realizado sem micromanipulação27. Os resultados obtidos em nosso estudo foram muito semelhantes aos verificados com o uso de iSCNT, tanto para a taxa de clivagem quanto para a produção de blastocistos20,21.
Por fim, levando em consideração as diferentes etapas deste procedimento, é importante destacar os pontos críticos e a solução prática de problemas. Em relação à remoção da ZP, a clonagem sem ZP oferece diversas vantagens, incluindo facilidade de operação, custo-benefício e uma taxa de nascidos vivos por embrião transferido comparativamente melhorada28. Confirmar a remoção completa do núcleo (enucleação) sem induzir danos fatais ao citoplasma determina se a estrutura reconstruída pode sustentar com sucesso um embrião clonado. Embora se saiba que a exposição à luz ultravioleta tem efeitos prejudiciais29, ela tem sido rotineiramente utilizada na maioria dos laboratórios de clonagem. Por fim, o cultivo de embriões sem ZP carece da camada externa protetora de glicoproteínas, levando a problemas significativos, como alta fragilidade física durante o manuseio e dissociação de blastômeros30.
Em conclusão, os resultados obtidos em nosso estudo devem ser interpretados como evidência preliminar da viabilidade técnica do protocolo de iSCNT na combinação cervo/bovino, e não como prova definitiva de sua eficácia produtiva. Assim, estudos adicionais com um número maior de réplicas são necessários para confirmar esses achados.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Este trabalho foi apoiado pela Fundação Cearense de Apoio ao Desenvolvimento Científico e Tecnológico (FUNCAP, Fortaleza, Brasil, número do projeto 11212233/2022) e pelos Institutos Nacionais de Ciência e Tecnologia (INCT/CNPq, número do projeto 406866/2022-8).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Agulha de Aspiração (18G) | LABIMPORT | 353601 | Agulha descartável, corte curto |
| 6-Dimetilaminopurina (6-DMAP) | Sigma-Aldrich | D2629 | |
| Antibiótico–antimicótico | Gibco, Thermo Fisher Scientific | 15240062 | |
| Albumina Sérica Bovina | Sigma-Aldrich | A9647 | |
| Cloreto de Cálcio Dihidratado (CaCl2·2H2O) | Sigma-Aldrich | C7902 | |
| Frasco de Cultivo Celular T-25 | Corning | 430639 | |
| Microinjetor CellTram | Eppendorf | 5196 000.021 | |
| Centrífuga | Eppendorf | 5702 | Utilizada para centrifugação de células a 200 × g durante 10 minutos para formar o pellet e lavar as amostras antes dos procedimentos de transferência nuclear. |
| Tubos de Centrífuga (50 mL) | Corning | CLS430291 | |
| Crioviales (1,8 mL) | Nunc / Thermo Fisher | 368632 | |
| Cisteína | Sigma-Aldrich | M9768 | |
| Demecolcina | Sigma-Aldrich | D1925 | |
| Água destilada. | _ | _ | |
| DMSO (congelação celular) | Sigma-Aldrich | D2650 | Crioprotetor a 10% para criopreservação de células doadoras |
| Meio de Eagle Modificado de Dulbecco (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| Pipeta de Enucleação (20–25 µm ID) | Narishige | GD-1 | |
| Fator de Crescimento Epidérmico (EGF) | Sigma-Aldrich | E4127 | |
| Ácidos Aminoácidos Essenciais BME | Sigma-Aldrich | M5550 | |
| Estradiol | Sigma-Aldrich | E8875 | |
| Incubadora EVE (5% O2, 5% CO2, 90% N2) | WTA medical | REF. 23578 | |
| Soro Bovino Fetal (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| Capilar de Vidro com Filamento | Narishige | GD-1 | Este capilar de vidro é usado para fazer micropoços na placa de Petri |
| Placa Aquecida | WTA medical | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (corante de DNA) | Sigma-Aldrich | B2261 | |
| Pipeta de Retenção (120 μm OD) | Narishige | GD-1 | |
| Hialuronidase | Sigma-Aldrich | H4272 | |
| Microscópio Invertido ECLIPSE | Nikon | TE2000-U | |
| Ionomicina (Ionóforo de Cálcio A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Cabinet de Fluxo Laminar Isocide | Esco | 2120765 | Cabinet de fluxo laminar que fornece um ambiente de trabalho estéril para procedimentos de cultura de embriões e células. |
| L-Glutamina | Sigma-Aldrich | G8540 | |
| Recipiente de Armazenamento em Nitrogênio Líquido (Dewar) | Nitroagro | Varia | |
| Sulfato de Magnésio (MgSO4) | Sigma-Aldrich | M2643 | |
| Meio de Fusão com Manitol (0,3 M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microfusão MF-900 | Narishige | MF-900 | |
| Sistema de Micromanipulação | Narishige | MM-89 / TransferMan 4r | |
| Puxador de Micropipetas | Narishige | Narishige PC-100 | |
| Micropipetas (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Série Research Plus | |
| Câmara de Microfusão | Eppendorf | 12816532 | É um acessório especializado com intervalo de 0,2 mm projetado para aplicações de eletroporação |
| Óleo Mineral (testado para embriões) | Sigma-Aldrich | M8410 | |
| Multiporador | Eppendorf | 4308 000.015 | |
| Mio-inositol | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Ácidos Aminoácidos Não Essenciais MEM | Sigma-Aldrich | M7145 | |
| Pentabiótico | Zoetis | 10005048 | Frasco com 2.400.000 UI. |
| Placa de Petri 35 mm (testada para embriões) | Corning | 430165 | |
| Placa de Petri 60 mm (testada para embriões) | Corning | 430196 | |
| Fenol vermelho | Sigma-Aldrich | P0290 | |
| Pontas de Pipeta 1000 µL | Eppendorf | 9401030 | |
| Pontas de Pipeta 200 µL | Eppendorf | 94052300 | |
| Pontas de Pipeta Sem Filtro (0,5–10 µL) | Axygen | T-300 | |
| Poli(vinil álcool) (PVA) | Sigma-Aldrich | P8136 | |
| Pronase (Protease de S. griseus) | Sigma-Aldrich | P8811 | |
| Lactato de Sódio | Sigma-Aldrich | L7900 | |
| Piruvato de Sódio | Sigma- Aldrich | P4562 | |
| Stereo-microscópio | Nikon | SMZ800 | |
| Água estéril testada para embriões | Sigma-Aldrich | W3500 | |
| Filtro estéril (0,22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Incubadora de Três Gases (5% O2, 5% CO2, 90% N2) | WTA medical | REF. 23578 | |
| Tripsina-EDTA (0,25%) | Gibco / Thermo Fisher | 25200056 | |
| Água ultrapuraágua | Sigma-Aldrich | W3500 | |
| Lâmpada UV / Módulo de Fluorescência | Leica / Olympus | Varia | Exposição breve à luz UV para verificar a enucleação; minimizar a fototoxicidade |
Referências
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve