Este estudo integra farmacologia de rede, acoplamento molecular validado e experimentos in vitro para avaliar as relações candidatas entre compostos e alvos entre os constituintes do Cordyceps sinensis e processos relacionados à glomerulonefrite crônica. O β-sitosterol foi selecionado para validação em nível de composto e demonstrou atenuar a ativação inflamatória e profibrótica em modelos de células mesangiais.
Artigo de método
Avaliação Guiada por Rede do $\beta$-sitosterol em Modelos de Células Mesangiais Inflamatórias e Profibróticas Relevantes para Glomerulonefrite Crônica
* These authors contributed equally
Neste artigo
Resumo
Resumo
A nefrite glomerular crônica (NGC) caracteriza-se por lesão inflamatória persistente e remodelação fibrótica progressiva, porém as relações entre compostos e alvos subjacentes às intervenções baseadas em produtos naturais ainda não são completamente definidas. Este estudo integrou farmacologia de redes, acoplamento molecular validado e experimentos in vitro para avaliar os constituintes candidatos de Cordyceps sinensis (C. sinensis) em processos patológicos relacionados à NGC. Os constituintes candidatos de C. sinensis foram selecionados, e os alvos associados aos compostos provenientes da plataforma de análise e banco de dados de farmacologia sistêmica da medicina tradicional chinesa foram cruzados com genes associados à NGC. Análises de enriquecimento funcional e de interação proteína-proteína foram utilizadas para priorizar processos biológicos e alvos centrais. PTGS2 foi identificado como um alvo central com sobreposição significativa. O acoplamento molecular foi realizado utilizando uma estrutura da COX-2 ligada à celecoxibe. O reacoplamento do ligante celecoxibe co-cristalizado reproduziu a conformação cristalográfica com um RMSD de 0,876 Å, validando o protocolo de acoplamento. O β-sitosterol e o acetato de linoleila mostraram compatibilidade prevista com a região de acoplamento da COX-2, com afinidades de ligação de −7,2 e −7,5 kcal/mol, respectivamente. O β-sitosterol foi selecionado para validação em nível de composto em células mesangiais glomerulares de rato HBZY-1. Nas concentrações de 0,5 a 10 µM, o β-sitosterol não reduziu significativamente a viabilidade celular. Em células estimuladas com lipopolissacarídeo (LPS), o β-sitosterol reduziu a expressão de Tnf, Il6 e Ptgs2, diminuiu a produção de prostaglandina E2 (PGE2) e reduziu a abundância da proteína ciclo-oxigenase-2 (COX-2). Em células tratadas com fator de crescimento transformador β1 (TGF-β1), o β-sitosterol reduziu a expressão de Col1a1 e Acta2 e diminuiu a abundância da proteína alfa-actina de músculo liso (α-SMA). Esses achados fornecem evidências geradoras de hipóteses de que o β-sitosterol modula a ativação inflamatória e pró-fibrótica em modelos de células mesangiais, mas não comprovam inibição direta da atividade enzimática da COX-2 nem eficácia terapêutica na NGC.
Introdução
A glomerulonefrite crônica (CGN) compreende um grupo heterogêneo de distúrbios glomerulares que podem evoluir para doença renal crônica e doença renal em estágio terminal1. Caracteriza-se por lesão glomerular persistente, ativação inflamatória e remodelamento fibrótico progressivo2,3. Embora corticosteroides e agentes imunossupressores sejam utilizados em pacientes selecionados, o controle da doença a longo prazo permanece difícil em muitos casos, e os efeitos adversos relacionados ao tratamento são comuns1,4,5. A progressão da CGN envolve processos patológicos interativos, incluindo ativação imunológica, disfunção endotelial, estresse oxidativo e acúmulo de matriz extracelular3,6,7. Portanto, identificar nós moleculares que conectem respostas inflamatórias e pró-fibróticas pode ajudar a gerar hipóteses testáveis para estratégias de intervenção relevantes à doença.
Cordyceps sinensis (C. sinensis) tem sido utilizada em contextos clínicos e experimentais relacionados aos rins e demonstrou exercer efeitos anti-inflamatórios, antiapoptóticos e citoprotetores em diversos modelos de doenças8,9,10. No entanto, a base molecular pela qual seus constituintes candidatos podem interagir com alvos relevantes para a glomerulonefrite permanece insuficientemente definida11. Dada a natureza multicomponente do C. sinensis e a heterogeneidade mecanicista da NCG, a farmacologia de rede fornece uma estrutura útil para priorizar relações candidatas entre compostos, alvos e vias12,13.
Neste estudo, foram integrados triagem de compostos, recuperação de alvos, análise de interseção entre genes e doenças, enriquecimento funcional, análise de rede de interação proteína-proteína, acoplamento molecular e validação in vitro para explorar possíveis relações moleculares entre os constituintes candidatos de C. sinensis e os processos patológicos relacionados à CGN. A prostaglandina-endoperoxido sintase 2 (PTGS2) foi priorizada como um alvo central na rede composto-doença e avaliada por acoplamento molecular utilizando uma estrutura da ciclo-oxigenase-2 (COX-2) ligada à celecoxiba, com validação por redocking. Com base nos resultados da rede, na análise de acoplamento e em evidências prévias de atividade anti-inflamatória e anti-fibroticativa, o β-sitosterol foi selecionado como um composto candidato representativo para validação posterior14,15,16. Células mesangiais estimuladas por lipopolissacarídeo (LPS) foram utilizadas para avaliar a ativação inflamatória e a resposta associada à COX-2/prostaglandina E2 (PGE2), enquanto um modelo induzido por fator de crescimento transformador β1 (TGF-β1) foi incluído para avaliar a expressão de marcadores pró-fibroticos.
Protocolo
As análises de farmacologia de rede e bioinformática basearam-se em bancos de dados publicamente disponíveis e não envolveram participantes humanos ou animais. Os experimentos in vitro foram realizados utilizando uma linhagem celular estabelecida e não exigiram aprovação ética conforme as exigências institucionais.
Triagem de constituintes candidatos e recuperação de alvos
Os constituintes candidatos e seus respectivos alvos foram recuperados do Banco de Dados e Plataforma de Análise de Farmacologia de Medicina Tradicional Chinesa (TCMSP) utilizando o termo de busca “dongchongxiacao” em 13 de julho de 2025. Foram mantidos os compostos com biodisponibilidade oral prevista de pelo menos 30% e semelhança a fármacos de pelo menos 0,18. Sete constituintes candidatos atenderam a ambos os critérios de triagem. O peso molecular, biodisponibilidade oral, semelhança a fármacos e outros descritores farmacocinéticos disponíveis foram registrados do TCMSP para comparação descritiva.
As informações sobre compostos-alvo associadas aos constituintes mantidos foram baixadas diretamente do TCMSP. Entradas duplicadas de alvos foram removidas manualmente durante a construção do conjunto não redundante de alvos, enquanto as relações originais entre compostos e alvos foram mantidas para a construção subsequente da rede. Como o TCMSP forneceu os nomes dos alvos em sua forma completa, e não em símbolos gênicos padronizados, cada alvo foi pesquisado na base de dados UniProt (acessada em 14 de julho de 2025). A entrada correspondente humana foi selecionada e o nome do alvo foi convertido para seu símbolo gênico oficial. O conjunto padronizado de dados de compostos e alvos foi utilizado para a interseção entre alvos de doenças e análise da rede de compostos-alvos.
Coleta de genes associados à glomerulonefrite e interseção de alvos
Os genes associados à doença foram recuperados do GeneCards, DisGeNET, PharmGKB e do Banco de Dados de Alvos Terapêuticos utilizando o termo de busca “glomerulonefrite” em 14 de julho de 2025. Para o GeneCards, foram mantidas as entradas com pontuações de relevância superiores à pontuação mediana de 10. As entradas elegíveis dos outros bancos de dados foram incluídas de acordo com suas anotações curadas de doença-alvo. Os nomes dos genes foram padronizados para os símbolos oficiais dos genes humanos, e as entradas duplicadas foram removidas. Esse procedimento resultou em 1.134 genes únicos associados à glomerulonefrite. Como a busca utilizou o termo mais amplo “glomerulonefrite”, considerou-se que o conjunto de dados resultante é relevante para os processos moleculares associados à glomerulonefrite crônica, e não específico a um único subtipo histopatológico.
Os alvos associados aos compostos derivados do TCMSP foram cruzados com o conjunto de genes associados à doença usando R. Vinte e três alvos sobrepostos foram identificados. Diagramas de Venn foram gerados utilizando o pacote venn do R, e a rede de alvos sobrepostos aos compostos foi construída e visualizada usando o Cytoscape. As relações entre os constituintes candidatos e os alvos sobrepostos são resumidas na Tabela 1.
Análises de enriquecimento funcional e interações proteína-proteína
Análises de enriquecimento da Gene Ontology (GO) e do Kyoto Encyclopedia of Genes and Genomes (KEGG) foram realizadas em R utilizando os pacotes clusterProfiler e org.Hs.eg.db. Os termos da Gene Ontology foram analisados nas categorias processo biológico, componente celular e função molecular. Os valores de P foram ajustados para testes múltiplos utilizando o método de Benjamini-Hochberg, e termos ou vias com valores de P ajustados abaixo de 0,05 foram mantidos. Os termos e vias enriquecidos foram exibidos utilizando gráficos de barras e gráficos de pontos gerados independentemente.
Os 23 alvos sobrepostos foram submetidos ao STRING, com Homo sapiens selecionado como o organismo e pontuação mínima de interação superior a 0,4. A rede de interação proteína-proteína resultante foi importada para o Cytoscape. A topologia da rede foi avaliada utilizando o CytoNCA com base no grau, centralidade de intermediação, centralidade de proximidade, centralidade do vetor próprio, conectividade média local e centralidade da rede. Os alvos centrais foram definidos como nós nos quais os valores de grau, centralidade de intermediação, centralidade de proximidade, centralidade do vetor próprio, conectividade média local e centralidade da rede eram todos superiores aos valores medianos correspondentes da rede. Essa análise priorizou nove alvos centrais para interpretação subsequente.
Validação de docking e redocking moleculares
O encaixe molecular foi realizado utilizando a estrutura da ciclo-oxigenase-2 ligada ao celecoxibe, com ID PDB 3LN1. A cadeia A e seu grupo heme associado foram mantidas como receptor, enquanto as moléculas de água cristalográficas e o ligante de celecoxibe co-cristalizado foram removidos durante a preparação do receptor. A conformação nativa do celecoxibe foi extraída separadamente da cadeia A para validação por redocking. Átomos de hidrogênio polares e cargas de Gasteiger foram adicionados usando o AutoDockTools, e o receptor foi salvo no formato PDBQT. O ID PDB 3LN1 corresponde a uma estrutura de 2,40 Å da COX-2 murina ligada ao celecoxibe. As estruturas do β-sitosterol e do acetato de linoleila foram obtidas do PubChem e preparadas usando o Open Babel. Átomos de hidrogênio e cargas parciais de Gasteiger foram adicionados, ligações rotatórias foram definidas, e cada ligante foi convertido para o formato PDBQT. Celecoxibe, β-sitosterol e acetato de linoleila foram submetidos ao encaixe molecular usando o AutoDock Vina com os mesmos parâmetros do receptor e da busca.
A caixa de encaixe foi centralizada na região nativa de ligação da celecoxiba usando as seguintes coordenadas: center_x = 30,9886 center_y = -22,2836 center_z = -16,5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. O valor de exaustividade foi definido como 16, o número de modos de saída como 10 e a faixa de energia como 3 kcal/mol. A conformação com a maior classificação, com base na menor energia de ligação prevista, foi mantida para visualização. Para validação do protocolo, a celecoxiba nativa foi reencaixada nas mesmas condições, e o desvio quadrático médio dos átomos pesados entre as conformações cristalográfica e reencaixada foi calculado usando o PyMOL. Um desvio quadrático médio inferior a 2 Å foi considerado uma reprodução aceitável da conformação de referência. Os resíduos localizados a menos de 4 Å de cada ligante encaixado foram identificados no PyMOL. Os escores de encaixe e as conformações foram interpretados como estimativas de compatibilidade estrutural e não como evidência direta de ligação ao alvo ou inibição enzimática.
Cultura celular e preparação do composto
Células mesangiais glomerulares de rato HBZY-1 foram cultivadas em meio Eagle modificado de Dulbecco com alta concentração de glicose, suplementado com 10% de soro bovino fetal e 1% de penicilina-estreptomicina, a 37 °C em condições úmidas com 5% de CO₂. Células entre as passagens 2–7 foram utilizadas em todos os experimentos, e o status livre de micoplasma foi verificado antes do uso. β-Sitosterol e celecoxib foram utilizados como compostos quimicamente definidos. O β-sitosterol foi dissolvido em etanol absoluto para gerar uma solução estoque de 10 mM (aproximadamente 4,15 mg/mL). Quando necessário, realizou-se breve sonicação e aquecimento a 50–60 °C para obter uma solução visualmente clara. A celecoxib foi dissolvida em dimetilsulfóxido para preparar uma solução estoque de 10 mM (aproximadamente 3,81 mg/mL). As soluções estoque foram aliquotadas e armazenadas a −20 °C. Antes do tratamento, os estoques foram diluídos diretamente no meio de cultura pré-aquecido e misturados imediatamente.
As concentrações de veículo foram igualadas dentro de cada experimento. No ensaio de viabilidade celular, a concentração final de etanol foi ajustada para 0,2% v/v em todos os grupos, pois a maior concentração de β-sitosterol testada foi de 20 µM. No experimento inflamatório induzido por LPS, as concentrações finais de etanol e dimetil sulfóxido foram ajustadas para 0,1% e 0,01% v/v, respectivamente, em todos os grupos. No experimento profibrótico induzido por TGF-β1, a concentração final de etanol foi ajustada para 0,1% v/v em todos os grupos. Volumes equivalentes dos veículos correspondentes foram adicionados aos grupos Controle, LPS e TGF-β1.
Ensaio de viabilidade celular
As células foram semeadas em placas de 96 poços a uma densidade de 5 × 10³ células por poço em 100 µL de meio completo e mantidas em incubação por 24 h para aderência. Para avaliar a faixa de concentração de β-sitosterol, as células foram incubadas com 0,5, 1, 5, 10 ou 20 µM de β-sitosterol por 24 h. Para o ensaio de viabilidade celular relacionado à LPS, as células foram pré-tratadas com β-sitosterol nas concentrações de 1, 5 ou 10 µM por 2 h, seguido de exposição a 1 µg/mL de lipopolissacarídeo por mais 24 h.
Os grupos de tratamento foram Controle, β-sitosterol a 0,5 µM, β-sitosterol a 1 µM, β-sitosterol a 5 µM, β-sitosterol a 10 µM, β-sitosterol a 20 µM, LPS, LPS mais β-sitosterol a 1 µM, LPS mais β-sitosterol a 5 µM e LPS mais β-sitosterol a 10 µM. O reagente do Kit de Contagem de Células-8 foi adicionado na quantidade de 10 µL por poço e as placas foram incubadas por 2 h. A absorbância foi então registrada em 450 nm. A viabilidade celular foi determinada após a subtração do branco sem células e expressa em relação ao grupo Controle. Cada condição incluiu seis poços técnicos em cada um dos seis experimentos biológicos independentes. Os valores dos poços técnicos de cada experimento foram médios para gerar um valor por replicata biológica para análise estatística.
Ativação inflamatória induzida por LPS
Para experimentos de ativação inflamatória, as células HBZY-1 foram semeadas em placas de 6 poços com uma densidade de 2 × 10⁵ células por poço e tratadas após atingirem cerca de 70%–80% de confluência. As células foram mantidas em meio suplementado com 1% de soro bovino fetal durante 12 h antes do tratamento. β-Sitosterol ou celecoxib foram administrados 2 h antes da estimulação com LPS. Posteriormente, as células foram expostas a 1 µg/mL de LPS por 24 h.
Os grupos experimentais foram Controle, β-sitosterol a 10 µM, LPS, LPS mais β-sitosterol a 1 µM, LPS mais β-sitosterol a 5 µM, LPS mais β-sitosterol a 10 µM, e LPS mais celecoxibe a 1 µM. O celecoxibe foi incluído como controle positivo funcional para inibição da produção de prostaglandinas dependente de COX-2. Ao final do tratamento, os sobrenadantes de cultura foram coletados para a medição de PGE2. As células foram coletadas separadamente para análise de PCR quantitativa em tempo real de Tnf, Il6 e Ptgs2 e para análise de western blot de COX-2.
Ativação profibrótica induzida por TGF-β1
Um modelo independente induzido por TGF-β1 foi utilizado para avaliar a ativação profibrótica. As células HBZY-1 foram semeadas em placas de 6 poços numa densidade de 2 × 10⁵ células por poço e mantidas em meio suplementado com 1% de soro bovino fetal durante 12 h antes do tratamento. As células foram pré-tratadas com β-sitosterol durante 2 h, seguidas de estimulação com TGF-β1 recombinante 10 ng/mL durante 48 h.
Os grupos de tratamento incluíram Controle, β-sitosterol (10 µM), TGF-β1, TGF-β1 + β-sitosterol (5 µM) e TGF-β1 + β-sitosterol (10 µM). Ao final do período de tratamento, as células foram coletadas para análise quantitativa por PCR em tempo real de Col1a1 e Acta2 e para análise por western blot de actina alfa-lisa muscular (α-SMA).
PCR quantitativa em tempo real
O RNA total foi isolado de células tratadas utilizando um reagente de extração de RNA baseado em fenol-guanidínio, conforme o protocolo do fabricante. A concentração e a pureza do RNA foram determinadas utilizando um espectrofotômetro. Apenas amostras com uma razão A260/A280 entre 1,8 e 2,0 foram utilizadas para a transcrição reversa. Para cada amostra, 1 µg de RNA total foi transcrito reversamente em DNA complementar em um volume final de reação de 20 µL. O DNA complementar resultante foi diluído cinco vezes com água livre de nucleases antes da PCR quantitativa. A PCR quantitativa foi realizada em um volume total de 20 µL contendo 10 µL de mix mestre 2× SYBR Green, 0,4 µL de cada iniciador (sentido e antissentido) a 10 µM, 2 µL de DNA complementar diluído e 7,2 µL de água livre de nucleases. As condições de amplificação consistiram em uma etapa inicial de desnaturação a 95 °C por 30 s, seguida por 40 ciclos de desnaturação a 95 °C por 5 s e anelamento-extensão a 60 °C por 30 s. Uma análise de curva de dissociação foi subsequentemente realizada de 65 °C a 95 °C para verificar a especificidade da amplificação.
Os genes medidos foram Tnf, Il6, Ptgs2, Col1a1, Acta2 e Gapdh. O gene Gapdh foi utilizado como gene de referência interno. A expressão gênica relativa foi determinada pelo método 2−ΔΔCt, utilizando o grupo Controle como calibrador. As sequências dos primers estão fornecidas na Tabela Suplementar 1. Cada amostra foi analisada em triplicata técnica, e seis experimentos biológicos independentes foram realizados. Os valores obtidos das réplicas técnicas foram médias antes da análise estatística.
Medição de PGE2 por ensaio imunoenzimático (ELISA)
Os sobrenadantes de cultura foram coletados após 24 h de estimulação com LPS e centrifugados a 1.000 ×g durante 10 min a 4 °C para remover debris celular. As concentrações de PGE2 foram determinadas utilizando um kit comercialmente disponível de ensaio imunoenzimático segundo as instruções do fabricante.
Os padrões e amostras foram carregados na placa do ensaio em duplicata. Após a conclusão das etapas de ligação do anticorpo e desenvolvimento da cor, a absorbância foi registrada a 450 nm utilizando um leitor de microplacas. As concentrações de PGE2 foram determinadas a partir de uma curva padrão logística de quatro parâmetros e expressas em pg/mL. Os sobrenadantes de seis experimentos celulares independentes foram analisados. As medidas em duplicata de cada amostra biológica foram médias antes da análise estatística.
Western blotting
As células tratadas foram lisadas em tampão de ensaio de radioimunoprecipitação suplementado com uma mistura de inibidores de protease. Os lisados foram incubados em gelo durante 30 min e centrifugados a 12.000 × g durante 15 min a 4 °C. As concentrações de proteína nos sobrenadantes foram determinadas utilizando um ensaio de proteína com ácido bicinconínico. Quantidades iguais de proteína (30 µg por poço) foram misturadas com tampão de carga e desnaturadas a 95 °C por 5 min. As proteínas dos experimentos com LPS foram separadas em géis de poliacrilamida a 10% com dodecilsulfato de sódio, enquanto aquelas dos experimentos com TGF-β1 foram separadas em géis a 12%. As proteínas separadas foram posteriormente transferidas para membranas de fluoreto de polivinilideno.
As membranas foram bloqueadas com leite desnatado a 5% em solução salina tamponada com Tris contendo 0,1% de Tween 20 por 1 h à temperatura ambiente e, em seguida, incubadas durante a noite a 4 °C com anticorpos primários contra COX-2 (1:1000), α-SMA (1:1000) e GAPDH (1:5000). A COX-2 foi analisada em amostras do experimento com LPS, enquanto o α-SMA foi analisado em amostras do experimento com TGF-β1. Após lavagem, as membranas foram incubadas com anticorpos secundários conjugados à peroxidase do rábano (1:5000) por 1 h à temperatura ambiente. As bandas proteicas foram visualizadas utilizando um substrato de quimioluminescência aprimorado e capturadas com um sistema de imagem de quimioluminescência. Os tempos de exposição foram de aproximadamente 10 s para COX-2, 10 s para α-SMA e 2 s para GAPDH.
As intensidades das bandas foram quantificadas utilizando o ImageJ. Os sinais de COX-2 e α-SMA foram normalizados em relação ao sinal correspondente de GAPDH. O Western blotting foi realizado utilizando amostras proteicas obtidas de seis experimentos independentes de cultivo celular e tratamento.
Análise estatística
As análises estatísticas foram realizadas utilizando o GraphPad Prism. Os dados são apresentados como média ± desvio padrão. Seis experimentos independentes de cultura celular e tratamento foram realizados para cada análise quantitativa, sendo cada experimento independente considerado uma replicata biológica. As medidas das réplicas técnicas obtidas do mesmo experimento biológico foram médias antes da análise estatística e não foram consideradas observações independentes.
Para o ensaio de viabilidade celular, cada experimento biológico incluiu seis poços técnicos por condição. As reações de PCR quantitativo foram realizadas em triplicata técnica para cada amostra biológica, e as medições de PGE2 foram realizadas em duplicata. A quantificação por Western blot foi baseada em seis amostras de proteína preparadas independentemente. Assim, cada barra quantitativa contém seis valores individuais de réplicas biológicas.
As diferenças entre múltiplos grupos foram analisadas utilizando análise de variância unidirecional seguida pelo teste de comparação múltipla de Tukey. Um valor P bilateral < 0,05 foi considerado estatisticamente significante. Os valores individuais de réplicas biológicas foram apresentados juntamente com a média e o desvio padrão.
Resultados
Triagem de Constituintes Candidatos, Recuperação de Alvos e Interseção de Alvos
O fluxo de trabalho para identificação de alvos sobrepostos candidatos entre compostos e doenças é resumido na Figura 1A. Sete compostos candidatos de C. sinensis atenderam aos critérios predefinidos de triagem de OB ≥30% e DL ≥0,18, incluindo ácido araquidônico, acetato de linoleila, β-sitosterol, peroxiergosterol, cerevisterol, palmitato de colesterol e CLR (Tabela 2). Paralelamente, foram recuperados 1.134 genes associados à glomerulonefrite a partir das bases GeneCards, DisGeNET, PharmGKB e TTD, e sua distribuição nas quatro bases de dados é apresentada na Figura 1B. A análise de interseção entre o conjunto de alvos associados aos compostos e o conjunto de genes associados à doença identificou 23 alvos sobrepostos (Tabela 1, Figura 1C). A rede correspondente entre compostos e alvos sobrepostos é apresentada na Figura 1D, ilustrando as relações entre os compostos candidatos representativos, os alvos sobrepostos e a CGN. Esses alvos sobrepostos incluíram diversos genes relacionados à regulação inflamatória, apoptose e sinalização associada aos vasos sanguíneos, tais como PTGS2, CASP3, MAPK1, PPARG, TNFRSF1A e NOS3.
Análises de Enriquecimento Funcional e Interações Proteína-Proteína
Para investigar a significância biológica dos 23 alvos sobrepostos, foram realizadas análises de enriquecimento de vias GO e KEGG. Os resultados revelaram que esses alvos estão significativamente enriquecidos em múltiplas vias relacionadas à inflamação e ao metabolismo.
A análise de GO classificou os alvos nas categorias de processo biológico (BP), componente celular (CC) e função molecular (MF). Os termos BP mais significativamente enriquecidos incluíram resposta ao lipopolissacarídeo, resposta a moléculas de origem bacteriana e regulação de processos do sistema muscular. Ao nível celular, os alvos foram enriquecidos nos compartimentos de rafts de membrana, caveolas e grânulos alfa de plaquetas, enquanto termos de MF, como atividade de oxidoredutase e ligação a receptores nucleares, indicaram ainda papéis no estresse oxidativo e na regulação transcricional (Figura 2A).
A análise KEGG revelou que a via de lipídios e aterosclerose (hsa05417) foi a mais significativamente enriquecida (valor q <1 × 10⁻⁶), juntamente com vias como sinalização AGE–RAGE em complicações diabéticas, sinalização de TNF, sinalização de IL-17 e sinalização de HIF-1 (Figura 2B). Notavelmente, a via de lipídios e aterosclerose envolveu 10 dos 23 alvos, incluindo CASP3, MAPK1, PPARG, NOS3 e TNFRSF1A.
Coletivamente, esses resultados de enriquecimento indicam que os alvos sobrepostos estão funcionalmente associados a processos biológicos inflamatórios, de resposta ao estresse e relacionados ao endotélio, relevantes para a CGN.
Análise da Rede de Interação entre Proteínas
Uma rede de interação entre proteínas (PPI) foi construída para os 23 alvos sobrepostos utilizando o STRING, resultando em uma rede contendo 23 nós e 102 arestas (Figura 3A). A análise topológica usando o CytoNCA identificou nove alvos centrais altamente conectados: PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2 e PRKCA (Figura 3B). Dentre esses alvos, PTGS2 apresentou centralidade de rede proeminente e foi, portanto, selecionado para análise subsequente de docking molecular. Esses resultados destacam um subconjunto de reguladores candidatos priorizados pela rede, potencialmente relevantes para a interseção composto–doença.
Validação de Acoplamento Molecular e Reacoplamento
Para avaliar mais amplamente a plausibilidade estrutural das relações candidatas associadas ao PTGS2 identificadas pela análise de rede, realizou-se o encaixe molecular (docking) utilizando uma estrutura da COX-2 ligada à celecoxiba. A estrutura cristalográfica com ID PDB 3LN1 foi selecionada porque contém celecoxiba ligada ao sítio ativo da COX-2, fornecendo uma bolsa de ligação ao ligante definida experimentalmente para validação do encaixe. O ligante celecoxiba co-cristalizado foi primeiramente extraído e reencaixado na mesma bolsa de ligação. A pose da celecoxiba reencaixada reproduziu de maneira muito próxima a pose cristalográfica, com um desvio padrão médio quadrático (RMSD) de reencaixe de 0,876 Å e uma afinidade de ligação prevista de -12,3 kcal/mol (Figura 4A). Esse resultado indicou que o protocolo de encaixe foi capaz de reproduzir a pose conhecida de ligação do ligante nas condições de encaixe selecionadas.
Utilizando o mesmo receptor, caixa de grade e parâmetros de docking, o β-sitosterol foi encaixado na região de ligação da COX-2 definida pela celecoxiba. O β-sitosterol apresentou uma afinidade de ligação prevista de -7,2 kcal/mol (Figura 4B). A conformação encaixada localizou-se dentro da região de docking pré-definida da COX-2, e os resíduos ao redor da conformação do β-sitosterol encaixado incluíram ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 e TYR341.
O acetato de linoleila também foi avaliado como um candidato computacional secundário, pois foi mantido na lista de constituintes candidatos e foi associado ao PTGS2 na análise de rede. Nas mesmas condições de docking, o acetato de linoleila apresentou uma afinidade de ligação prevista de -7,5 kcal/mol, ligeiramente mais favorável do que a do β-sitosterol (Figura 4C). Sua posição prevista localizou-se próxima ao ligante referência celecoxib dentro da região de docking. Os resíduos ao redor do acetato de linoleila incluíram ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 e VAL509.
Viabilidade Celular, Ativação Inflamatória e Ativação Profibrótica
O β-sitosterol foi selecionado para validação em nível de composto porque foi identificado como um candidato associado a PTGS2 na análise de rede e possui suporte experimental prévio quanto à atividade anti-inflamatória e anti-fibrotizante. Primeiramente, a viabilidade celular foi avaliada para determinar a faixa de concentração adequada para experimentos subsequentes. O tratamento com β-sitosterol nas concentrações de 0,5, 1, 5 e 10 µM não reduziu significativamente a viabilidade celular em comparação com o grupo controle, enquanto 20 µM de β-sitosterol causaram uma leve diminuição. A exposição ao LPS reduziu a viabilidade celular, e o tratamento combinado com β-sitosterol melhorou parcialmente a viabilidade celular sob estimulação com LPS, com o efeito mais evidente observado em 10 µM (Figura 5A). Com base nesses resultados, utilizaram-se as concentrações de 1, 5 e 10 µM de β-sitosterol nos experimentos seguintes de ativação inflamatória induzida por LPS.
A estimulação com LPS aumentou acentuadamente a expressão de mRNA de genes inflamatórios em células HBZY-1. Em comparação com o grupo controle, o grupo tratado com LPS apresentou níveis mais elevados de expressão de Tnf, Il6 e Ptgs2 (Figura 5B-D). O tratamento com β-sitosterol reduziu a superexpressão induzida por LPS desses genes de maneira dependente da concentração. A tendência inibitória foi mais evidente no grupo com LPS mais 10 µM de β-sitosterol. A celecoxiba, incluída como controle funcional de inibidor da COX-2, também reduziu a expressão dos genes inflamatórios até certo ponto, embora seu efeito tenha sido menos acentuado do que o observado com 10 µM de β-sitosterol para diversos marcadores transcricionais (Figura 5B-D).
Como Ptgs2 codifica a COX-2 e o PGE2 é um importante produto prostaglandínico downstream da atividade da COX-2, a secreção de PGE2 foi medida por ELISA. O tratamento com LPS aumentou a concentração de PGE2 no sobrenadante da cultura em comparação com o grupo controle. O β-sitosterol reduziu a produção de PGE2 induzida por LPS de maneira dependente da concentração. A celecoxiba também reduziu a produção de PGE2 e serviu como controle positivo para a inibição funcional do eixo COX-2/PGE2 (Figura 5E). A análise por Western blot mostrou ainda que o LPS aumentou a abundância da proteína COX-2. O tratamento com β-sitosterol reduziu os níveis da proteína COX-2 sob estimulação com LPS, com uma redução mais acentuada observada na concentração mais alta. Em contraste, a celecoxiba reduziu a produção de PGE2, mas apresentou um efeito mais limitado na abundância da proteína COX-2 (Figura 5F).
Para complementar o modelo inflamatório induzido por LPS, utilizou-se um modelo de ativação profibrótica induzida por TGF-β1 para avaliar se o β-sitosterol afetava a expressão de marcadores fibróticos em células mesangiais. O TGF-β1 aumentou acentuadamente a expressão de mRNA de Col1a1 e Acta2 em comparação com o grupo controle (Figura 6A,B). O β-sitosterol reduziu o aumento induzido por TGF-β1 em ambos os marcadores, sendo a redução mais evidente em 10 µM do que em 5 µM (Figura 6A,B). A análise por Western blot mostrou aumento correspondente na expressão proteica de α-SMA após estimulação com TGF-β1, enquanto o tratamento com β-sitosterol diminuiu a abundância da proteína α-SMA em células tratadas com TGF-β1 (Figura 6C).
DISPONIBILIDADE DE DADOS:
Os dados brutos e processados que apoiam este estudo foram depositados no Zenodo sob o DOI: https://zenodo.org/records/21649482. As imagens de varredura completa do western bolt estão fornecidas no Arquivo Suplementar 1.
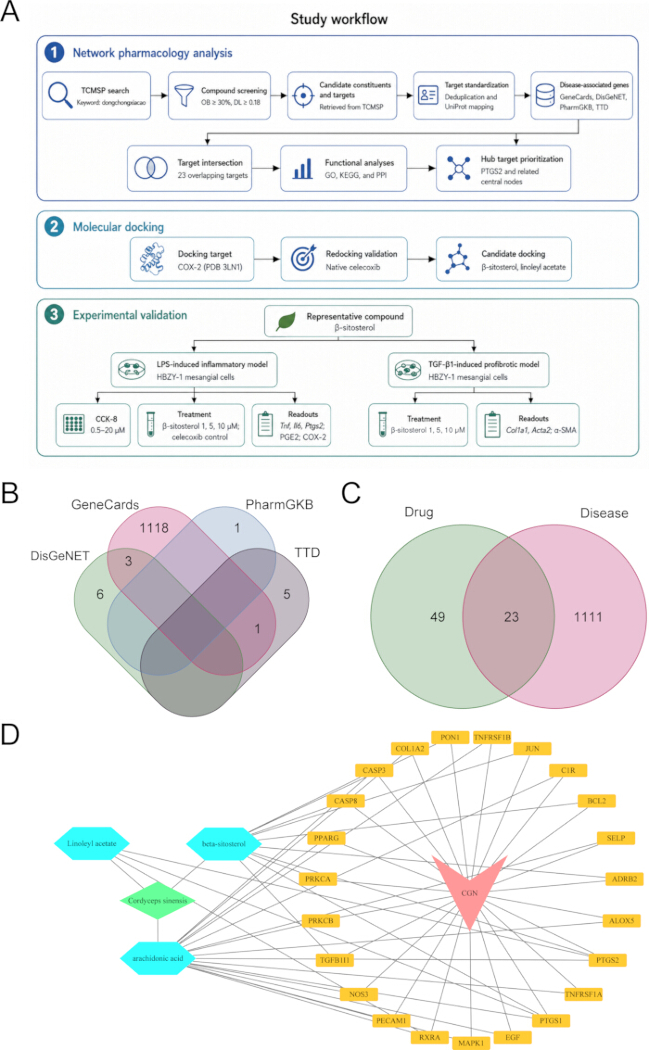
Figura 1. Fluxograma e identificação baseada em rede de alvos sobrepostos candidatos a compostos e doenças de C. sinensis na glomerulonefrite. (A) Fluxograma esquemático mostrando a identificação de compostos candidatos, recuperação e padronização de alvos associados a compostos, recuperação de genes associados à glomerulonefrite, análise de interseção e construção da rede de compostos–alvos sobrepostos. (B) Diagrama de Venn ilustrando a distribuição de genes associados à glomerulonefrite recuperados do GeneCards, DisGeNET, PharmGKB e TTD. (C) Diagrama de Venn mostrando a sobreposição entre alvos associados a compostos derivados do TCMSP e genes associados à doença, resultando em 23 alvos sobrepostos. (D) Rede de compostos–alvos sobrepostos. O losango verde representa C. sinensis, os hexágonos azuis indicam compostos candidatos, os círculos amarelos indicam alvos sobrepostos e o triângulo rosa representa CGN. As arestas denotam as relações correspondentes entre composto–alvo ou doença–alvo. Clique aqui para visualizar uma versão maior desta figura.
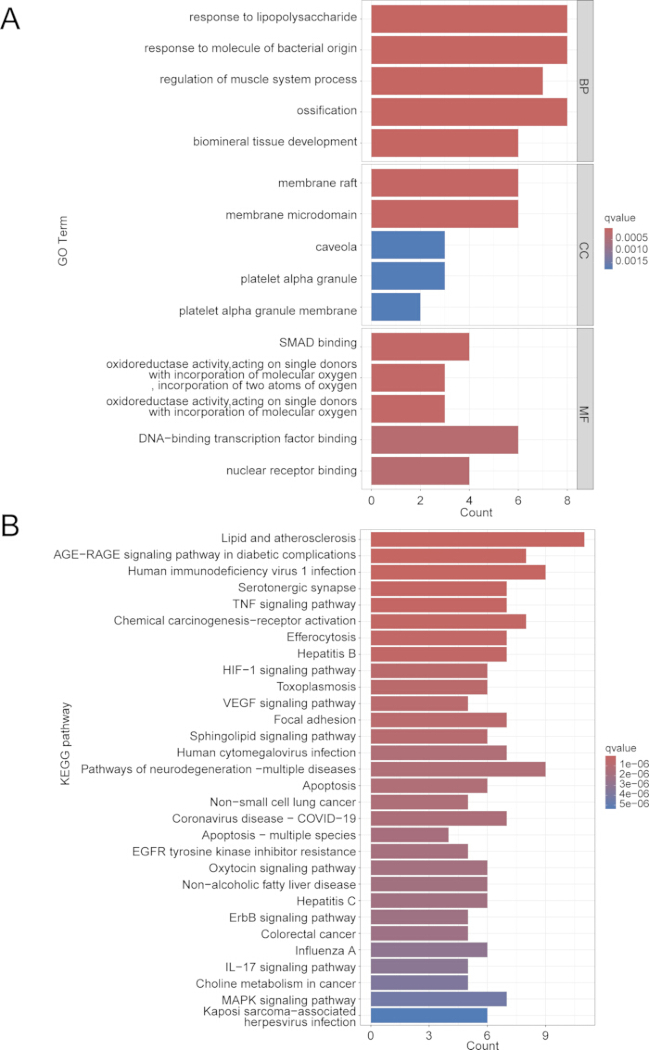
Figura 2. Análise de enriquecimento funcional dos alvos sobrepostos. (A) Análise de enriquecimento GO dos 23 alvos sobrepostos. Os termos BP, CC e MF principais foram identificados. O comprimento das barras indica a contagem de genes; o gradiente de cor representa o valor q. (B) Análise de enriquecimento KEGG dos 23 alvos sobrepostos. As vias são classificadas por contagem de genes e significância estatística. Clique aqui para visualizar uma versão maior desta figura.
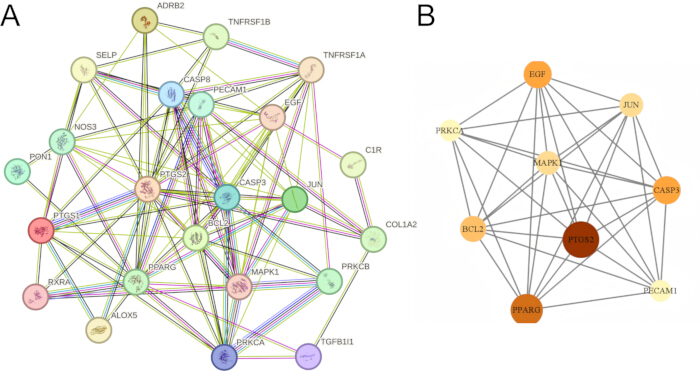
Figura 3. Rede de interação proteína-proteína e priorização de alvos centrais dos alvos sobrepostos. (A) Rede de interação proteína-proteína construída a partir dos 23 alvos sobrepostos utilizando o STRING com limiar de pontuação de interação >0,4. (B) Os nove principais alvos centrais são priorizados por meio da análise de topologia de rede baseada no CytoNCA. PTGS2 apresentou centralidade proeminente na rede e foi selecionado para a análise subsequente de acoplamento molecular. Clique aqui para visualizar uma versão maior desta figura.
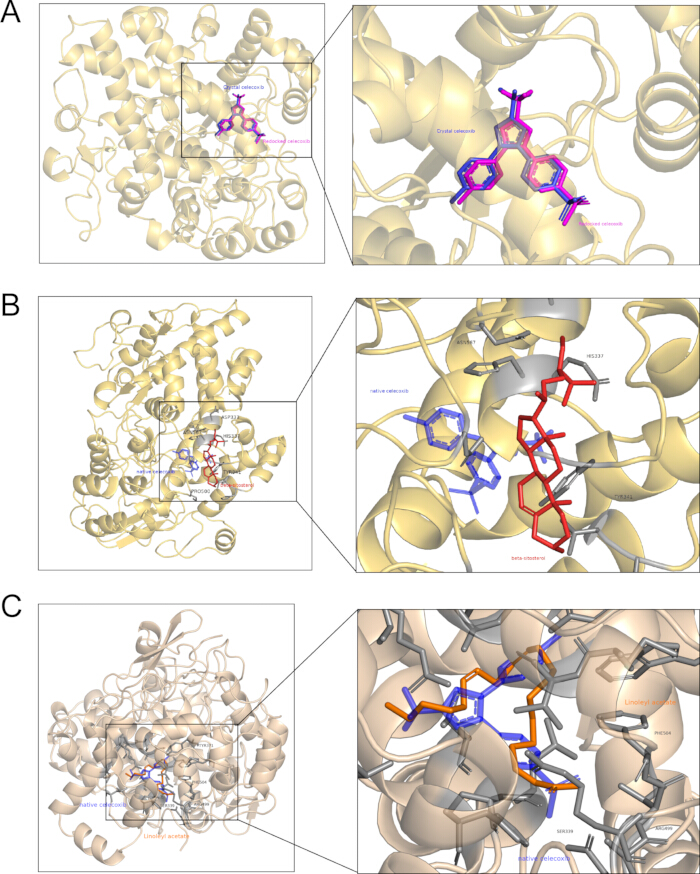
Figura 4. Encaixe molecular e validação por reencaixe de compostos candidatos selecionados com a COX-2. (A) Sobreposição da pose cristalográfica da celecoxiba e da pose reencaixada com melhor classificação na estrutura da COX-2 murina ligada à celecoxiba (ID PDB 3LN1). O reencaixe reproduziu a orientação experimental de ligação. (B) Pose de encaixe com melhor classificação do β-sitosterol dentro da região de encaixe da COX-2 definida pela celecoxiba. A pose cristalográfica da celecoxiba é incluída como referência espacial. (C) Pose de encaixe com melhor classificação do acetato de linoleila dentro da mesma região de encaixe. Clique aqui para visualizar uma versão maior desta figura.
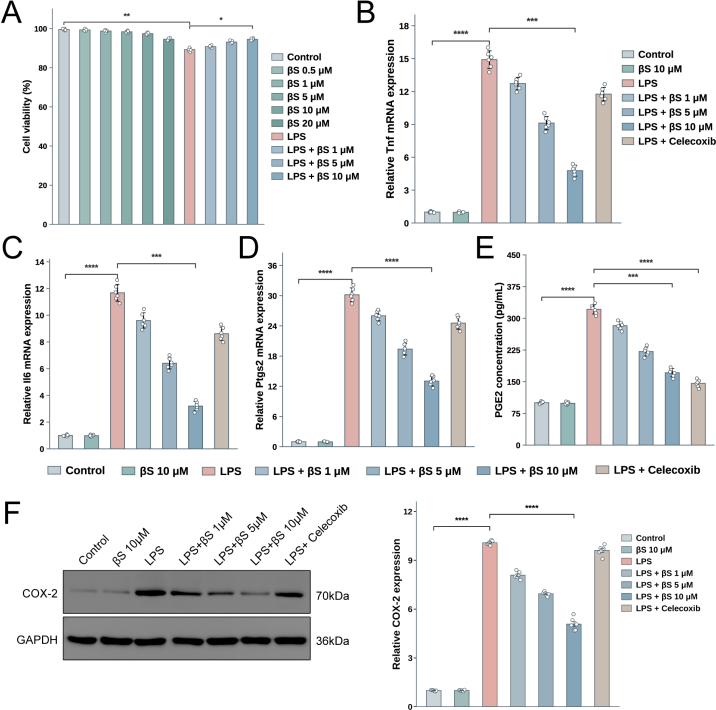
Figura 5. β-Sitosterol atenua a ativação inflamatória induzida por LPS e a produção de PGE2 em células mesangiais HBZY-1. (A) A viabilidade celular foi medida utilizando o ensaio com o Kit de Contagem Celular-8. As células foram tratadas com β-sitosterol nas concentrações de 0,5, 1, 5, 10 ou 20 µM durante 24 h. Nos grupos estimulados com LPS, as células foram pré-tratadas com β-sitosterol nas concentrações de 1, 5 ou 10 µM durante 2 h antes da exposição a 1 µg/mL de LPS por 24 h. A viabilidade celular foi expressa em relação ao grupo Controle. (B–D) Análise por PCR quantitativa em tempo real da expressão de mRNA de Tnf (B), Il6 (C) e Ptgs2 (D). A expressão gênica foi normalizada em relação a Gapdh e expressa em relação ao grupo Controle. (E) Concentrações de PGE2 nos sobrenadantes de cultura medidas por ensaio imunoenzimático (ELISA). Celecoxibe foi incluído como controle positivo funcional para supressão da produção de prostaglandinas dependente de COX-2. (F) Imagens representativas de western blot de COX-2 e GAPDH nos grupos de tratamento indicados. Os dados são apresentados como média ± DP de seis experimentos biológicos independentes, com os valores individuais de cada réplica biológica mostrados. Os valores das réplicas técnicas foram previamente médias antes da análise. As comparações foram realizadas utilizando ANOVA de um fator seguida pelo teste de comparação múltipla de Tukey. A significância é indicada por colchetes nos respectivos painéis: *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001. Clique aqui para visualizar uma versão ampliada desta figura.
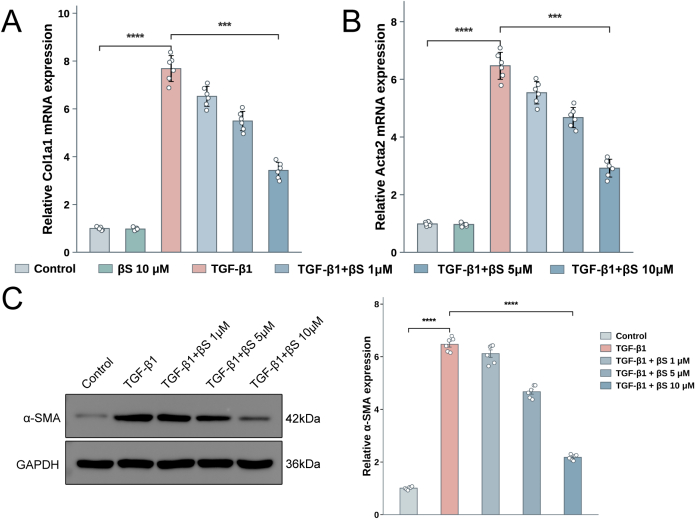
Figura 6. β-Sitosterol reduz a expressão de marcadores profibróticos induzida por TGF-β1 em células mesangiais HBZY-1. (A–B) Análise por PCR quantitativa em tempo real da expressão de mRNA de Col1a1 (A) e Acta2 (B). A expressão gênica foi normalizada em relação a Gapdh e expressa em relação ao grupo Controle. (C) Imagens representativas de blot de western de α-SMA e GAPDH nos grupos de tratamento indicados. Os dados são apresentados como média ± DP de seis experimentos biológicos independentes, com os valores individuais de cada replicata biológica mostrados. Os valores das réplicas técnicas foram previamente médios antes da análise. As comparações foram realizadas utilizando ANOVA de um fator seguida pelo teste de comparação múltipla de Tukey. A significância é indicada por colchetes nos respectivos painéis: *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001. Clique aqui para visualizar uma versão maior desta figura.
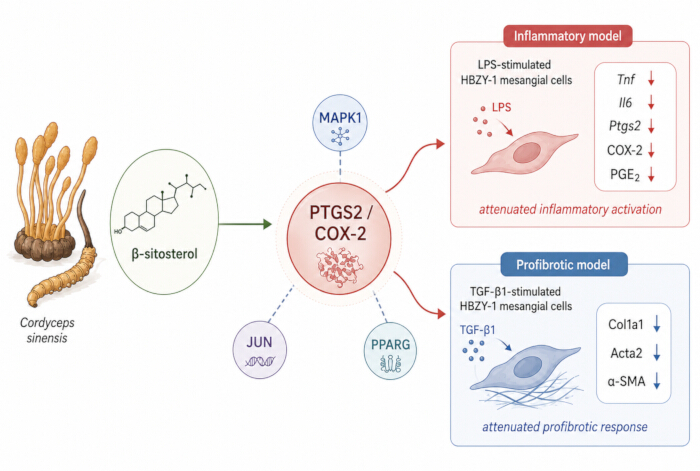
Figura 7. Interpretação integrada das respostas inflamatórias e pró-fibróticas associadas ao β-sitosterol em células HBZY-1. As análises de rede e de docking priorizaram PTGS2/COX-2 dentro de um contexto mais amplo que incluiu MAPK1, JUN e PPARG. O tratamento com β-sitosterol foi associado à redução da expressão de Tnf, Il6 e Ptgs2 induzida por LPS, à menor abundância da proteína COX-2 e à produção de PGE2, bem como à redução da expressão de Col1a1, Acta2 e α-SMA induzida por TGF-β1. Clique aqui para visualizar uma versão maior desta figura.
| Nº | Alvo sobreposto | Composto(s) candidato(s) associado(s) ao alvo |
| 1 | PTGS1 | β-sitosterol; acetato de linoleila; ácido araquidônico |
| 2 | PTGS2 | β-sitosterol; acetato de linoleila; ácido araquidônico |
| 3 | CASP3 | β-sitosterol; ácido araquidônico |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | acetato de linoleila; ácido araquidônico |
| 12 | TNFRSF1A | ácido araquidônico |
| 13 | TNFRSF1B | ácido araquidônico |
| 14 | ALOX5 | ácido araquidônico |
| 15 | SELP | ácido araquidônico |
| 16 | C1R | ácido araquidônico |
| 17 | COL1A2 | ácido araquidônico |
| 18 | PPARG | ácido araquidônico |
| 19 | PRKCB | ácido araquidônico |
| 20 | NOS3 | ácido araquidônico |
| 21 | PECAM1 | ácido araquidônico |
| 22 | MAPK1 | ácido araquidônico |
| 23 | EGF | ácido araquidônico |
Tabela 1: Alvos sobrepostos entre os alvos associados aos compostos derivados do TCMSP e os genes associados à glomerulonefrite. Os registros de compostos-alvo foram recuperados do TCMSP, deduplicados manualmente e padronizados para os símbolos oficiais dos genes humanos utilizando o UniProt.
| Nome da Molécula | MW | AlogP | OB (%) | Caco-2 | BBB | DL | FASA | HL |
| Ácido araquidônico | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| Acetato de linoleila | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-sitosterol | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Peroxiergosterol | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| Cerevisterol | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| Palmitato de colesterol | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| Colesterol (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
Tabela 2: Constituintes candidatos de C. sinensis recuperados do TCMSP utilizando critérios de triagem de biodisponibilidade oral e semelhança a fármacos. Foram mantidos os compostos com biodisponibilidade oral de pelo menos 30% e semelhança a fármacos de pelo menos 0,18. MW, peso molecular; ALogP, coeficiente predito de partição octanol-água; OB, biodisponibilidade oral; Caco-2, permeabilidade predita em Caco-2; BBB, penetração na barreira hematoencefálica; DL, semelhança a fármacos; FASA, área de superfície acessível negativa fracionária; HL, meia-vida.
Tabela Suplementar 1. Sequências de iniciadores utilizadas para PCR quantitativa em tempo real em células mesangiais glomerulares de rato HBZY-1. Todas as sequências são apresentadas no sentido 5′ para 3′.Clique aqui para baixar este arquivo.
Arquivo Suplementar 1. Imagens completas dos blots ocidentais.Clique aqui para baixar este arquivo.
Discussão
Este estudo integrou farmacologia de rede, encaixe molecular validado por ligantes de referência e experimentos em nível de compostos para examinar uma hipótese associada ao PTGS2 derivada de constituintes candidatos de C. sinensis. Sete constituintes atenderam aos critérios pré-definidos de triagem do TCMSP, e 23 alvos apresentaram sobreposição com o conjunto de genes associados à glomerulonefrite. A análise de interação proteica priorizou nove alvos centrais, dentre os quais o PTGS2 foi selecionado para avaliação por encaixe molecular e experimental. O reencaixe da celecoxiba reproduziu sua conformação cristalográfica, enquanto o β-sitosterol e o acetato de linoleila mostraram compatibilidade moderada prevista com a região de encaixe da COX-2. Em células mesangiais HBZY-1, o β-sitosterol reduziu a expressão gênica inflamatória induzida por LPS, a abundância de COX-2 e a produção de PGE2, além de reduzir a expressão de marcadores profibróticos induzida por TGF-β1. Esses achados conectam a priorização computacional com fenótipos celulares, mas apoiam uma relação regulatória candidata, e não um mecanismo terapêutico definido.
Os resultados de enriquecimento posicionaram os alvos sobrepostos em processos biológicos relacionados à estimulação inflamatória, estresse celular, regulação de lipídios, função vascular e remodelamento tecidual. O enriquecimento das respostas ao lipopolissacarídeo e a produtos bacterianos foi compatível com o modelo inflamatório utilizado para a validação experimental. As vias relacionadas a TNF, IL-17, AGE-RAGE e HIF-1 também forneceram um contexto funcional plausível para a inflamação glomerular e o remodelamento maladaptativo6,17,18,19. Contudo, o enriquecimento de vias reflete a concentração estatística de genes anotados e não estabelece a ativação ou inibição de uma via pelo β-sitosterol12. A anotação proeminente de lipídios e aterosclerose deve, portanto, ser interpretada como biologia inflamatória, apoptótica e vascular compartilhada, e não como evidência de que a aterosclerose represente o mecanismo principal da doença na NCG. Da mesma forma, dados de biodisponibilidade oral, semelhança a fármacos e alvos com base no TCMSP foram utilizados para priorizar candidatos.
PTGS2 surgiu como um nó relevante porque estava presente na interseção da doença composta, exibia alta centralidade na rede e estava ligado experimentalmente a alterações na transcrição de Ptgs2, na abundância da proteína COX-2 e na produção de PGE2. Esse acordo entre os níveis computacional e celular reforça a justificativa para examinar a resposta associada a PTGS2. No entanto, isso não implica que PTGS2 seja uniformemente patogênico no rim. Os prostanoides derivados da COX participam do fluxo sanguíneo renal, do manejo de sal e da homeostase adaptativa, podendo exercer efeitos protetores ou prejudiciais conforme o tipo celular, a distribuição de receptores, a fase da doença e a concentração local20,21. Na nefrite experimental, o celecoxibe reduziu a produção relacionada ao PGE2, enquanto o próprio PGE2 influenciou a expressão dos receptores de prostaglandina em células mesangiais22. Essas observações ilustram que as consequências biológicas da COX-2 e do PGE2 vão além de uma simples via pró-inflamatória linear20,23. A comparação com o celecoxibe ajuda a distinguir a expressão do alvo da função enzimática. O celecoxibe produziu a redução mais clara no PGE2, consistente com seu papel como inibidor funcional da COX-2, mas exerceu um efeito mais limitado sobre a expressão de Ptgs2 e a abundância da proteína COX-222. O β-sitosterol mostrou um padrão mais amplo, incluindo níveis reduzidos de Tnf, Il6, Ptgs2, COX-2 e PGE2. Essa diferença não indica potência inibitória superior sobre a COX-2. Pelo contrário, sugere que o β-sitosterol pode alterar o estado inflamatório no qual PTGS2 é induzido, enquanto o celecoxibe limita principalmente a síntese de prostaglandinas por meio da inibição da atividade catalítica. Ensaios enzimáticos diretos, estudos de engajamento do alvo e perturbação de PTGS2 seriam necessários para determinar se o β-sitosterol também interage funcionalmente com a COX-2.
Os resultados da rede também sugerem que PTGS2 não deve ser interpretado como um nó molecular isolado. MAPK1, JUN e PPARG foram co-priorizados na rede de interação proteica, situando a síntese de prostanoides em um contexto mais amplo de sinalização e regulação transcricional. Em células mesangiais renais, a esfingosina 1-fosfato aumentou a expressão de COX-2 e a formação de PGE2 por meio da sinalização p42/p44 MAPK dependente do receptor S1P 2, fornecendo evidência direta de que a atividade de MAPK pode estar acima da resposta COX-2/PGE2 nesse tipo celular24. Como JUN é um componente principal do complexo fator de transcrição AP-1, o AP-1 pode fornecer uma interface entre a ativação de MAPK e a transcrição de PTGS2. De acordo com essa possibilidade, a 15-desoxi-Δ12,14-prostaglandina J2 suprimiu a expressão induzida por IL-1β de COX-2 juntamente com a atividade de AP-1 em células mesangiais cultivadas25. Em modelos celulares não renais, o β-sitosterol reduziu a ativação de ERK e p38, a sinalização de NF-κB, a expressão de COX-2 e a produção de citocinas inflamatórias após exposição ao LPS14,15. Essas observações fornecem um contexto plausível para as reduções coordenadas em Tnf, Il6, Ptgs2, COX-2 e PGE2 observadas no presente estudo. No entanto, os estudos citados com β-sitosterol foram realizados em células microgliais ou endoteliais, e não em células mesangiais renais, e a fosforilação de MAPK1 e a atividade de JUN não foram medidas aqui. Os resultados atuais, portanto, não estabelecem um mecanismo de regulação de PTGS2 dependente de MAPK1 ou de JUN pelo β-sitosterol. PPARG pode interagir com a rede centrada em PTGS2 por meio da regulação transcricional sensível a lipídios e da modulação do fenótipo profibrótico da célula mesangial, e não como um efetor linear simples e downstream de PTGS2. Em células mesangiais glomerulares, ligantes naturais e sintéticos de PPARγ inibiram a expressão de fibronectina induzida por TGF-β1, enquanto outro trabalho mostrou que agonistas de PPARγ reduziram a ativação da célula mesangial induzida por TGF-β, a expressão de α-SMA e o acúmulo de colágeno IV por meio da atenuação da sinalização de PKA e CREB26,27. Trabalhos mais recentes em camundongos diabéticos e em células mesangiais glomerulares estimuladas com alta concentração de glicose situaram NF-κB/COX-2 e PPARγ/UCP2 em eixos regulatórios paralelos associados à inflamação e fibrose renal, apoiando uma convergência funcional potencial sem demonstrar acoplamento direto entre PTGS2 e PPARG28. Esses achados fornecem um contexto biologicamente plausível para as reduções em Col1a1, Acta2 e α-SMA observadas no presente modelo com TGF-β1. No entanto, a expressão de PPARG, sua atividade transcricional e o engajamento de ligantes não foram avaliados. Os dados atuais, portanto, não podem atribuir a resposta profibrótica observada à ativação de PPARG nem definir uma via de sinalização sequencial MAPK1-PTGS2-PPARG. É importante destacar que MAPK1 e PPARG foram priorizados no nível da rede integrada de composto-doença e não devem ser interpretados como alvos diretos do β-sitosterol com base na análise atual.
A análise de docking deve ser interpretada dentro do mesmo limite de evidência. Um RMSD de redocking de 0,876 Å indicou que o protocolo de docking selecionado poderia reproduzir a orientação conhecida do celecoxibe na estrutura 3LN1. As afinidades preditas substancialmente menos favoráveis do β-sitosterol e do acetato de linoleila em comparação com o celecoxibe apoiaram acomodação espacial dentro da região pré-definida, mas não uma força de ligação equivalente ou ação farmacológica29,30. A diferença de 0,3 kcal/mol entre o acetato de linoleila e o β-sitosterol é pequena demais para justificar uma classificação biológica isoladamente. O β-sitosterol foi selecionado para testes subsequentes porque sua associação na rede foi acompanhada por uma literatura experimental mais ampla relevante para inflamação e fibrose14,15,16. Estudos anteriores relataram reduções em TNF-α, IL-6 e COX-2 em células microgliais e endoteliais expostas ao LPS, juntamente com alterações na sinalização de MAPK e NF-κB14,15. O ácido araquidônico exige uma interpretação diferente porque é um substrato endógeno da COX21. Sua presença na rede derivada do TCMSP não indica uma ação inibitória anti-inflamatória e ilustra que as relações entre compostos e alvos baseadas em bancos de dados não definem a direcionalidade. As reduções relacionadas à concentração em marcadores inflamatórios observadas em células HBZY-1 são consistentes com essas descobertas celulares anteriores, ao mesmo tempo em que estendem as evidências para um contexto mesangial glomerular14,15. O modelo com TGF-β1 abordou um aspecto distinto do processo da doença31. O β-sitosterol reduziu a transcrição de Col1a1 e Acta2 e diminuiu a abundância de α-SMA após estimulação com TGF-β1. Trabalhos anteriores em células epiteliais alveolares humanas encontraram similarmente que o β-sitosterol reduziu a expressão de colágeno, fibronectina e α-SMA induzida por TGF-β1, embora aquele estudo tenha envolvido um tecido e um processo celular diferentes16. Os achados atuais, portanto, apoiam uma atividade contra um fenótipo profibrótico em células mesangiais, mas não estabelecem a inibição de um receptor específico de TGF-β ou de um mecanismo dependente de SMAD31.
Várias limitações definem o escopo da interpretação. O conjunto de genes da doença foi gerado usando o termo amplo glomerulonefrite e não é específico a um subtipo clínico ou histológico de GNC. A análise computacional utilizou anotações humanas, o encaixe molecular usou uma estrutura murina de COX-2 e os experimentos foram realizados em células HBZY-1 de rato. Relações ortólogas sustentam a comparação, mas diferenças dependentes da espécie na regulação e no reconhecimento de ligantes permanecem possíveis. Uma única linhagem celular mesangial imortalizada não pode representar as interações entre células mesangiais, podócitos, células endoteliais, células imunes infiltrantes e o compartimento tubulointersticial. O estudo também não avaliou a ligação direta, atividade enzimática da COX-2, dependência de PTGS2, células renais humanas primárias, eficácia in vivo, farmacocinética ou exposição renal. Por fim, testar uma preparação definida de β-sitosterol resolve a inconsistência anterior entre constituintes previstos e um extrato não caracterizado, mas não estabelece que o β-sitosterol seja responsável pelos efeitos do C. sinensis inteiro ou que outros constituintes sejam inativos.
Em conjunto, as descobertas baseadas em rede, em docking e em células apoiam o β-sitosterol como um candidato representativo associado à redução da ativação inflamatória e pró-fibrótica em células HBZY-1. Os resultados são consistentes com a modulação de uma resposta relacionada a PTGS2/COX-2/PGE2, mas não estabelecem ligação direta com COX-2, causalidade dependente de PTGS2 ou eficácia terapêutica na NCG. São necessários estudos adicionais de engajamento de alvo, perturbação genética, células primárias e in vivo (Figura 7).
Divulgações
Os autores declaram que não possuem interesses concorrentes. Ferramentas baseadas em inteligência artificial (ChatGPT, OpenAI) foram utilizadas para auxiliar na edição da linguagem e no design preliminar das figuras esquemáticas. A inteligência artificial generativa foi usada para auxiliar na preparação de rascunhos gráficos preliminares das Figuras 1A e 7, que posteriormente foram revisados e modificados pelos autores para garantir a consistência com os métodos e resultados relatados. Todas as saídas assistidas por IA foram criticamente avaliadas e aprovadas pelos autores. Os autores verificaram o conteúdo final das figuras e assumiram total responsabilidade pela integridade e precisão do manuscrito.
Agradecimentos
Este estudo foi apoiado pela Especialidade Característica de Nefropatia pela Medicina Integrada Chinesa Tradicional e Ocidental (ZYTSZK2-3) e pelo Estudo sobre Estratégia de Intervenção da MTC na Doença Renal Crônica sob a Perspectiva do Manejo de Doenças Crônicas (202240169).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Etanol absoluto | Sigma-Aldrich/Merck | E7023 | Etanol grau biologia molecular não desnaturado, 200 provas; solvente para estoque de β-sitosterol. |
| AutoDock Vina | Scripps Research | Versão 1.1.2 | Simulação de encaixe molecular |
| Cabinet de biossegurança | Thermo Fisher Scientific | Série 1300 A2 | Operações estéreis de cultura celular |
| Celecoxib | MedChemExpress | HY-14398 | Inibidor seletivo da COX-2 utilizado como controle positivo; estoque de 10 mM em DMSO. |
| Kit de contagem celular-8 | Dojindo Molecular Technologies, Inc. | CK04 | Ensaio colorimétrico WST-8 para viabilidade celular; absorbância medida a 450 nm. |
| Sistema de imagem de quimioluminescência | Bio-Rad Laboratories | ChemiDoc MP | Aquisição de imagem de Western blot |
| Pacote R clusterProfiler | Bioconductor | Versão 4.10.0 | Análise de enriquecimento GO e KEGG |
| Incubadora de cultura celular com CO2 | Thermo Fisher Scientific | Forma Série II 3111 | Incubação de cultura celular a 37 °C e 5% CO2 |
| Anticorpo monoclonal de coelho contra COX-2 (D5H5) | Cell Signaling Technology | 12282 | Validado para Western blot de COX-2 humano, de camundongo e de rato; utilizado na diluição 1:1.000. |
| Plugin CytoNCA | Loja de Aplicativos Cytoscape | Versão 2.1.6 | Análise topológica de alvos centrais |
| Software Cytoscape | Consortium Cytoscape | Versão 3.8.0 | Visualização e análise de redes |
| Dissulfóxido de dimetila | Sigma-Aldrich/Merck | D2650 | Reagente BioReagent filtrado esterilmente, ≥99,7%; solvente para estoque de celecoxib. |
| Banco de dados DisGeNET | Grupo de Informática Biomédica Integrativa | Não aplicável | Recuperação de genes associados à glomerulonefrite |
| Meio de Eagle modificado por Dulbecco (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | Meio basal para cultura celular HBZY-1 |
| Substrato de quimioluminescência aprimorado | Beyotime Biotechnology | P0018S | Visualização de bandas em Western blot |
| Soro bovino fetal | Gibco/Thermo Fisher Scientific | 10099-141C | Suplemento sérico para cultura celular |
| Anticorpo monoclonal de coelho contra GAPDH (D16H11) | Cell Signaling Technology | 5174 | Controle de carga em Western blot; reativo com GAPDH humano, de camundongo e de rato; utilizado na diluição 1:5.000 após otimização interna. |
| Banco de dados GeneCards | Instituto Weizmann de Ciência | NA | Recuperação de genes associados à glomerulonefrite |
| GraphPad Prism | GraphPad Software | Versão 9.0.0.121 | Análise estatística de dados experimentais in vitro |
| IgG de cabra anti-coelho conjugado com HRP | Proteintech Group | SA00001-2 | Anticorpo secundário para anticorpos primários de coelho |
| Software ImageJ | Institutos Nacionais de Saúde | Versão 1.54 | Análise densitométrica de Western blot |
| Microscópio invertido de contraste de fase | Olympus | CKX53 | Observação da morfologia celular |
| Pacote R org.Hs.eg.db | Bioconductor | Versão 3.18.0 | Anotação gênica humana para análise de enriquecimento |
| Solução de penicilina-estreptomicina | Gibco/Thermo Fisher Scientific | 15140122 | Suplemento antibiótico para cultura celular |
| Kit de ensaio para parâmetros de PGE2 | R&D Systems, uma marca Bio-Techne | KGE004B | ELISA competitivo multiespécies para sobrenadantes de cultura celular; faixa do ensaio 39–2.500 pg/mL; detecção colorimétrica a 450 nm. |
| Banco de dados PharmGKB | Pharmacogenomics Knowledgebase | NA | Recuperação de alvos relacionados à doença |
| Banco de dados PubChem | Centro Nacional de Informação Biotecnológica | NA | Recuperação de estruturas de ligantes |
| Membrana de PVDF | Millipore/Merck | IPVH00010 | Membrana de transferência proteica para Western blotting |
| Sistema gráfico molecular PyMOL | Schrödinger, LLC | Versão 2.6.2 | Visualização de poses de encaixe |
| Software R | R Foundation for Statistical Computing | Versão 4.3.2 | Análise de interseção de alvos e enriquecimento |
| Linhagem celular de mesângio glomerular de rato (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | Modelo in vitro para validação de células mesangiais |
| Banco de Dados de Proteínas RCSB | Research Collaboratory for Structural Bioinformatics | ID PDB: 3LN1 | Recuperação da estrutura cristalina de PTGS2/COX2 |
| Proteína recombinante humana TGF-β1 | PeproTech, uma marca Thermo Fisher Scientific | 100-21-10UG | TGF-β1 recombinante humano derivado de HEK293; estímulo profibrótico a 10 ng/mL. |
| Sistema de eletroforese SDS-PAGE | Bio-Rad Laboratories | Mini-PROTEAN Tetra | Separacão proteica por SDS-PAGE |
| Banco de dados STRING | ELIXIR/Consortium STRING | Versão 12.0 | Construção de rede de interação proteína-proteína |
| Banco de dados TCMSP | Traditional Chinese Medicine Systems Pharmacology Database | NA | Triagem de compostos candidatos de Cordyceps sinensis |
| Banco de dados de alvos terapêuticos | Innovative Drug Research and Bioinformatics Group | NA | Recuperação de alvos terapêuticos |
| Anticorpo primário contra α-SMA | Proteintech Group | 14395-1-AP | Detecção da expressão proteica de α-SMA |
| β-Sitosterol (pureza >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5; composto definido utilizado para tratamento celular; estoque de 10 mM em etanol absoluto. |
Referências
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).