Utilizando análises transcritômicas em larga escala, de célula única e espaciais, juntamente com modelagem de sobrevida baseada em aprendizado de máquina e validação experimental, este estudo indica o PPARG como um gene prognóstico candidato relacionado à senescência no osteossarcoma e associa sua expressão reduzida a um desfecho desfavorável na coorte TARGET-OS, bem como a características vasculares e do microambiente.
Artigo de investigação
Análises Transcriptômicas Integrativas de Bulk, Célula Única e Espaciais Nomeiam o PPARG como um Gene Prognóstico Candidato Relacionado à Senescência no Osteossarcoma
* These authors contributed equally
Neste artigo
Resumo
Resumo
O osteossarcoma continua sendo um desafio nas formas metastáticas, recorrentes ou resistentes à terapia. Este estudo teve como objetivo identificar genes prognósticos relacionados à senescência e caracterizar seus contextos espaciais. Foi realizada uma análise diferencial de expressão emparelhada no conjunto de dados GSE99671 utilizando o DESeq2, seguida da intersecção com o conjunto de genes de senescência CellAge. Os dados transcriptômicos do cohort TARGET-OS foram obtidos do UCSC Xena. Os genes candidatos foram avaliados por meio de regressão de Cox univariada, análise de Kaplan-Meier, análise de característica operacional do receptor dependente do tempo, regressão de Cox com seleção por LASSO, análises repetidas de LASSO e modelagem por floresta de sobrevivência aleatória, com inclusão de covariáveis clínicas nos modelos de Cox ajustados. Realizaram-se enriquecimento funcional, análise do microambiente imunológico, transcriptômica de célula única, transcriptômica espacial SP_BS3, validação da expressão em GSE36001 e validação por qRT-PCR e Western blot em células de osteossarcoma 143B e células de osteoblastos para caracterizar o gene. No GSE99671, 2.248 genes apresentaram expressão diferencial com P ajustado < 0,05, e a intersecção destes com os 866 genes do CellAge resultou em 105 genes diferencialmente expressos relacionados à senescência. No TARGET-OS, a menor expressão de PPARG esteve associada a maior risco de mortalidade (HR univariada = 0,603, IC 95% = 0,454–0,802, P = 0,000494; HR ajustada = 0,224, IC 95% = 0,085–0,589, P = 0,00241). A inclusão de PPARG no modelo clínico aumentou o índice C de 0,707 para 0,829. PPARG foi subregulado tanto no GSE99671 quanto no GSE36001, e os ensaios de qRT-PCR e Western blot confirmaram menores níveis de expressão de mRNA e proteína de PPARG nas células de osteossarcoma 143B em comparação com as células de osteoblastos. A análise de célula única localizou PPARG em células endoteliais, pericitos, macrófagos/monócitos e células estromais associadas ao tumor. A análise transcriptômica espacial revelou correlações positivas fracas, mas significativas, entre a expressão de PPARG e os escores de senescência CellAge, bem como escores relacionados a células endoteliais e pericitos. Esses achados indicam PPARG como um biomarcador prognóstico candidato derivado do CellAge, associado à pior sobrevida e características do microambiente vascular no osteossarcoma, apoiando a investigação de sua possível relevância para a estratificação de risco e para o microambiente tumoral relacionado à senescência. O conjunto de dados GSE36001 forneceu apenas validação externa de expressão; não foi realizada validação independente de sobrevida.
Introdução
O osteossarcoma é o tumor ósseo primário maligno mais comum em crianças, adolescentes e adultos jovens1. Embora a quimioterapia com múltiplos agentes combinada à cirurgia tenha melhorado os resultados para doenças localizadas2,3, pacientes com osteossarcoma metastático, recorrente ou resistente à terapia continuam a apresentar baixa sobrevida a longo prazo3,4. Evidências recentes indicam que a remodelação epigenética induzida pelo estresse oxidativo pode facilitar a adaptação metastática e a progressão tumoral, destacando a complexa plasticidade molecular subjacente aos fenótipos agressivos do câncer5. Biomarcadores robustos que sejam clinicamente interpretáveis e biologicamente informativos ainda são limitados. Portanto, identificar características moleculares que capturem a heterogeneidade do osteossarcoma e o risco prognóstico em múltiplas camadas de dados permanece importante.
A senescência celular é um programa estável de parada do ciclo celular induzido por disfunção dos telômeros, danos no DNA, estresse oxidativo, ativação de oncogenes e pressão terapêutica6. A senescência pode restringir a proliferação anormal; no entanto, células senescentes também podem remodelar o microambiente tumoral por meio de programas inflamatórios, de quimiocinas, de fatores de crescimento e de reestruturação da matriz extracelular7,8. No osteossarcoma, genes relacionados à senescência podem refletir tanto estados de estresse intrínsecos às células tumorais quanto compartimentos microambientais não malignos, ainda que sua relevância prognóstica e organização espacial não tenham sido sistematicamente avaliadas.
O gene PPARG codifica o receptor gama ativado por proliferadores de peroxissomos, um receptor nuclear ativado por ligante envolvido no metabolismo lipídico, regulação inflamatória, diferenciação celular e modulação imune9. O papel do PPARG no câncer é dependente do contexto10. Em alguns contextos, o PPARG está associado a estados de diferenciação e anti-inflamatórios, enquanto em outros pode apoiar programas tumorais ou estromais adaptativos. No entanto, seu padrão de expressão, valor prognóstico e localização celular e espacial no osteossarcoma ainda não são completamente caracterizados.
No presente estudo, genes diferencialmente expressos em GSE99671 foram identificados e intersectados com o conjunto de genes de senescência CellAge, resultando em 105 genes diferencialmente expressos relacionados à senescência. Em seguida, foram utilizados dados de sobrevida do TARGET-OS, múltiplas abordagens de aprendizado de máquina e modelagem de sobrevida, bem como ajuste clínico, para indicar PPARG como o gene central. PPARG foi posteriormente caracterizado por meio de análises funcionais e do microambiente imune em massa, transcriptômica de célula única, transcriptômica espacial, validação externa de expressão a partir de GSE36001 e validação por qRT-PCR e Western blot na linhagem celular de osteossarcoma 143B e em osteoblastos humanos.
Protocolo
Este estudo utilizou conjuntos de dados públicos e linhagens celulares para análise e validação, e não envolveu participantes humanos ou amostras de tecidos clínicos; portanto, não foi necessária aprovação ética.
Análise de expressão diferencial na interseção de GSE99671 e CellAge
Os dados de contagem bruta e as informações de agrupamento de amostras para GSE99671 foram obtidos do GEO11,12. Dezoito pares de amostras de osteossarcoma e tecido normal correspondente foram analisados. A análise de expressão diferencial pareada foi realizada usando o DESeq2 com a fórmula de design ~ pair_id + condition, em que pair_id considerou os efeitos individuais pareados e condition comparou tecido tumoral com tecido normal13. Foram mantidos genes com contagens de leitura de pelo menos 10 em pelo menos três amostras. A expressão diferencial foi definida como P ajustado < 0,05, e um limiar mais rigoroso de P ajustado < 0,05 e |log2FC| ≥ 1 foi aplicado para fins de visualização. Os genes diferencialmente expressos foram intersectados com os 866 genes de senescência CellAge após a conversão dos símbolos gênicos para letras maiúsculas14. A análise de expressão diferencial foi realizada em R (versão 4.3.2) utilizando o pacote DESeq2 (versão 1.40.2), e os valores de P ajustados foram calculados pelo método de Benjamini-Hochberg.
Cohorte TARGET-OS e modelagem prognóstica
Os dados transcriptômicos e clínicos da coorte TARGET-OS foram obtidos do UCSC Xena15. Foram extraídos os valores de expressão dos 105 genes diferencialmente expressos relacionados ao envelhecimento celular. Oitenta e cinco pacientes com dados completos de tempo de sobrevida, status de sobrevida e expressão dos genes candidatos foram incluídos, com 27 eventos de morte. Os valores padronizados de expressão gênica foram analisados utilizando regressão de Cox univariada16, análise de sobrevida de Kaplan-Meier e análise de característica operacional do receptor dependente do tempo (ROC)17. A regressão de Cox com penalização LASSO18, análise de estabilidade LASSO repetida e modelagem por floresta aleatória de sobrevida foram utilizadas para avaliar a estabilidade da seleção e a importância das variáveis19. A pontuação integrada do gene central (hub score) e a classificação integrada clínica foram calculadas utilizando os critérios binários explícitos detalhados abaixo. As análises de sobrevida foram realizadas em R utilizando os pacotes survival (versão 3.5-7), timeROC (versão 0.4), glmnet (versão 4.1-8) e randomForestSRC (versão 3.2.2). Para a triagem univariada de Cox dos 105 genes candidatos, foi aplicada a correção da taxa de falsa descoberta (FDR) de Benjamini-Hochberg, e os genes com FDR < 0,05 foram considerados estatisticamente significativos.
Pré-processamento do modelo, agrupamento do PPARG e análise ROC dependente do tempo
Entre 85 pacientes com 27 óbitos, genes com variância zero foram excluídos, valores ausentes de expressão dos genes candidatos foram imputados pela mediana e cada gene candidato foi padronizado pelo escore z. Para a análise de Kaplan-Meier, a expressão foi dicotomizada na mediana da coorte: valores estritamente acima da mediana foram atribuídos ao grupo de alta expressão e valores na mediana ou abaixo ao grupo de baixa expressão (PPARG: n = 42 alto e n = 43 baixo). Os testes log-rank foram bicaudais. As análises ROC dependentes do tempo utilizaram o pacote timeROC com causa do evento = 1, ponderação marginal inversa da probabilidade de censura, tempos de avaliação de 365, 1.095 e 1.825 dias e iid = FALSE. Para garantir que valores maiores do marcador indiquem consistentemente maior risco, foram utilizados valores padronizados de expressão para genes com coeficientes de Cox positivos e multiplicados por -1 para genes protetores com coeficientes negativos.
LASSO e LASSO repetido
O LASSO de Cox foi ajustado com glmnet usando family = "cox", alpha = 1, padronização prévia dos escores z (portanto, standardize = FALSE), validação cruzada de cinco dobras, type.measure = "deviance" e semente aleatória 123. A solução principal de coeficientes utilizou lambda.min. A análise de estabilidade repetiu a mesma validação cruzada de cinco dobras 300 vezes; a repetição b utilizou a semente 1000 + b (b = 1,...,300). Para cada gene, a frequência de seleção foi a proporção de repetições com coeficiente não nulo em lambda.min; também foi registrado o valor de seleção não nulo em lambda.1se.
Floresta de sobrevivência aleatória
Uma floresta de sobrevivência foi ajustada a todos os 105 genes candidatos padronizados com o pacote randomForestSRC (versão 3.2.2), utilizando a semente 123, ntree = 1.000, importance = TRUE e na.action = "na.impute". Os padrões do pacote para dados de sobrevivência foram mantidos: divisão por log-rank, mtry = 11 (teto da raiz quadrada de 105 preditores), tamanho mínimo do nó terminal = 15, nsplit = 10 pontos de divisão aleatórios, amostragem sem reposição com fração de amostragem de 0,632 e importância de variáveis com anti-split.
Pontuação integrada do hub
Cada um dos 105 genes candidatos diferencialmente expressos relacionados ao CellAge recebeu um ponto para cada um dos seis critérios binários: (1) pertencimento à interseção entre expressão diferencial e CellAge (todos os candidatos receberam este ponto, pois exigia-se P ajustado < 0,05 antes da pontuação); (2) P nominal univariado de Cox < 0,05; (3) P log-rank de Kaplan-Meier < 0,05; (4) média da AUC dependente do tempo de 3 e 5 anos ≥ 0,65; (5) frequência de seleção lambda.min no LASSO repetido igual ou acima do percentil 70 entre os candidatos e > 0; e (6) importância na floresta aleatória de sobrevida igual ou acima do percentil 70 entre os candidatos e > 0. Todos os critérios tinham peso unitário igual, resultando em uma pontuação do hub variando de 0 a 6; os genes com pontuação ≥ 4 avançaram para o ajuste clínico (18 genes). Os valores de FDR univariados de Cox também foram relatados, e FDR < 0,05 foi utilizado para indicar significância após correção para múltiplos testes, mas o indicador de pontuação pré-especificado utilizou P nominal < 0,05.
Classificação integrada clínica
Após a fusão dos dados de expressão e registros clínicos, as análises ajustadas incluíram 40 pacientes com registros completos de covariáveis e 13 óbitos. A pontuação final foi calculada somando a pontuação inicial de hub a um ponto para cada um dos sete critérios: valor de P ajustado de Cox < 0,05, valor de P ajustado de Cox < 0,10, valor de P de Cox de sensibilidade < 0,05 após remoção da cirurgia definitiva, valor de P de Cox de sensibilidade < 0,10, média da AUC de 3 e 5 anos ≥ 0,65, valor de P do teste da razão de verossimilhança < 0,10 para o modelo clínico-mais-gênico em comparação com o modelo somente clínico e delta AIC < 0. Como os limiares de 0,05 e 0,10 eram aninhados, um valor de P < 0,05 contribuía com dois pontos, conferindo, assim, maior peso às evidências ajustadas e de sensibilidade de Cox claramente significativas. A pontuação total variava de 0 a 13; empates foram resolvidos pelo menor valor de P ajustado de Cox, seguido pela maior média da AUC de 3/5 anos. O PPARG obteve todos os seis pontos iniciais e todos os sete pontos de integração clínica (13/13), ocupando o primeiro lugar. A melhoria no índice C foi relatada de forma descritiva e não recebeu pontuação.
Ajuste clínico
Os genes centrais candidatos foram integrados às variáveis clínicas do TARGET-OS, incluindo sexo, idade, estado da doença no diagnóstico, local primário do tumor, região tumoral específica e cirurgia definitiva. Quarenta pacientes com registros completos de expressão e dados clínicos, incluindo 13 óbitos, foram incluídos nas análises ajustadas clinicamente. Modelos de Cox contendo apenas variáveis clínicas foram comparados com modelos que incluíam variáveis clínicas mais a expressão gênica. Os valores de C-index, critério de informação de Akaike (AIC) e teste da razão de verossimilhança P foram utilizados para avaliar a melhoria do modelo. Uma análise de sensibilidade foi realizada após a remoção da variável cirurgia.
Enriquecimento funcional e análise do microambiente imune
As amostras do TARGET-OS foram estratificadas de acordo com a expressão de PPARG. A expressão diferencial entre os grupos PPARG-alto e PPARG-baixo foi utilizada para gerar listas ordenadas de genes para análise de enriquecimento de conjuntos de genes (GSEA)20. As vias exibidas foram: Resposta Inflamatória a LPS de Nemeth (cima), Adipogênese 5 de Burton, Adipogênese 6 de Burton, Alvos de KDM3A de Krieg não Hipóxia, Regulação Transcricional por TP53 do Reactome, Resposta Inflamatória a Lectina vs LPS de Fulcher (baixo), Apoptose via CD40 de Hollmann (baixo), Resposta Inflamatória a Vírus Vivo de Zhou (baixo), Transporte de Ácidos Graxos e Lipoproteínas em Hepatócitos do WP, Câncer de Pulmão KRAS (cima), Via de Sinalização HIV Tat para TLR2/4 NF-kB do KEGG Medicus e Ácidos Graxos do Reactome. Um escore de senescência bulk CellAge foi calculado, e a análise de correlação de Spearman foi utilizada para avaliar associações entre PPARG e genes de senescência ou assinaturas do microambiente imune21. As diferenças nos escores do microambiente entre os grupos PPARG-alto e PPARG-baixo foram avaliadas utilizando testes não paramétricos com correção para múltiplos testes.
Análise transcriptômica de célula única
Um conjunto de dados transcriptômicos de célula única de osteossarcoma humano publicado foi analisado utilizando um objeto pré-processado, para o qual controle de qualidade, redução de dimensionalidade, agrupamento e anotação manual já haviam sido concluídos22,23,24. Um total de 68.336 células e 32.297 genes foi incluído. Para interpretação no texto principal, as anotações foram simplificadas em 13 tipos principais de células: linfócitos B, CAFs, células em ciclo, células endoteliais, células eritróides, macrófagos/monócitos, células malignas de osteossarcoma, células miogênicas, neutrófilos, células semelhantes a osteoclastos, pericitos, linfócitos T/CN e células estromais associadas ao tumor. Redução de dimensionalidade, mapas de expressão de características, gráficos de pontos e gráficos de violino foram utilizados para visualizar a localização de PPARG. Células positivas para PPARG foram definidas como aquelas com expressão maior que zero. As diferenças entre os tipos celulares foram avaliadas utilizando os testes de Kruskal-Wallis e Wilcoxon com correção de Benjamini-Hochberg. As análises de célula única foram realizadas em R utilizando o pacote Seurat (versão 5.0.1).
Análise de transcriptômica espacial
A amostra de transcriptômica espacial SP_BS3 foi utilizada para construir um objeto de expressão espacial25,26. Os limiares de controle de qualidade foram nFeature_Spatial ≥ 200 e percent.mt ≤ 30, restando 4.572 pontos para análise. Os dados foram normalizados, 3.000 genes altamente variáveis foram selecionados, e foram realizadas a padronização dos dados, análise de componentes principais, construção do grafo de vizinhança, agrupamento espacial de pontos, e redução da dimensionalidade. Um escore espacial de senescência CellAge foi calculado após a remoção de PPARG do conjunto de genes para evitar correlação circular. Foram construídos e pontuados perfis de endoteliais, pericitos, macrófagos/monócitos, estromais associados ao tumor, osteossarcoma maligno e semelhantes a osteoclastos. A análise de correlação de Spearman foi utilizada para avaliar as associações entre a expressão de PPARG e os escores espaciais. A transferência de rótulos foi realizada utilizando o conjunto de dados de célula única como referência e o conjunto de dados espaciais como consulta, para inferir escores preditos de tipos celulares para cada ponto23,24. As análises de transcriptômica espacial foram realizadas em R utilizando o Seurat (versão 5.0.1), e a correção FDR de Benjamini-Hochberg foi aplicada a todos os valores de P de correlação espacial.
Validação externa de expressão em GSE36001
O conjunto de dados GEO GSE36001 foi utilizado exclusivamente como uma coorte independente para validação de expressão; como os desfechos de sobrevida não estavam disponíveis, ele não foi usado para validação prognóstica11,27. O conjunto de dados incluía 19 amostras de osteossarcoma e seis amostras normais de controle. A anotação da plataforma GPL6102 foi utilizada para converter identificadores de sondas em símbolos gênicos. Quando múltiplas sondas correspondiam ao mesmo gene, a sonda com a maior expressão média foi mantida. A expressão diferencial entre os grupos tumorais e normais foi avaliada usando o pacote limma28. As análises foram realizadas em R utilizando o limma (versão 3.56.2), e os valores de P ajustados foram calculados pelo método de Benjamini-Hochberg.
Validação por qRT-PCR e Western blot
A validação experimental foi realizada utilizando a linhagem celular de osteossarcoma humano 143B e células de osteoblastos humanos. As células de osteossarcoma foram cultivadas em meio de Eagle modificado por Dulbecco suplementado com 10% de soro bovino fetal e 1% de penicilina-estreptomicina a 37 °C em atmosfera umidificada contendo 5% de CO₂, e subcultivadas com tripsina-EDTA 0,25% na confluência de 80%–90%. As células de osteoblastos humanos foram mantidas nas condições de cultivo recomendadas. Todas as linhagens celulares foram confirmadas como livres de contaminação por micoplasma. Para qRT-PCR, o RNA total foi extraído utilizando um reagente de extração de RNA baseado em fenol-guanidínio, e a concentração e pureza do RNA foram avaliadas espectrofotometricamente. Um micrograma de RNA total foi transcrito reversamente utilizando um reagente de transcrição reversa de acordo com o protocolo recomendado. A qRT-PCR foi realizada utilizando química baseada em corante fluorescente intercalante de DNA sob as seguintes condições de ciclagem: desnaturação inicial a 95 °C por 30 s, seguida por 40 ciclos a 95 °C por 5 s e 60 °C por 30 s, com análise de curva de dissociação para confirmar a especificidade da amplificação. Cada reação foi realizada em triplicata técnica, e três experimentos biológicos independentes foram conduzidos. O GAPDH foi utilizado como controle interno, e a expressão relativa de PPARG foi calculada pelo método 2-ΔΔCt29. O par de primers direto para PPARG foi 5'-CGAAGACATTCCATTCACAAGAACAG-3' e o inverso foi 5'-AGATGCAGGCTCCACTTTGATTG-3'.
A eletroforese em gel seguida de transferência para membrana (Western blotting) foi realizada para examinar a expressão da proteína PPARG. As células foram lisadas em tampão de radioimunoprecipitação suplementado com inibidores de protease, e as concentrações proteicas foram determinadas por meio de ensaio de ácido bicinconínico. Quantidades iguais de proteína (30 µg por poço) foram separadas por eletroforese em gel de poliacrilamida com dodecil sulfato de sódio a 10% e transferidas para membranas de difluoreto de polivinilideno. Após o bloqueio com leite desnatado a 5% durante 1 h à temperatura ambiente, as membranas foram incubadas durante a noite a 4 °C com anticorpos primários contra PPARG (1:1.000) e GAPDH (1:5.000), seguido pela incubação com um anticorpo secundário conjugado à peroxidase do rabo-de-cavalo (1:5.000) por 1 h à temperatura ambiente. As bandas proteicas foram visualizadas por detecção quimioluminescente, e três experimentos independentes foram realizados. As intensidades das bandas foram quantificadas utilizando software de análise de imagens30. As diferenças entre grupos foram analisadas utilizando o teste t de Student não pareado bicaudal t testes. Os dados foram apresentados como média ± desvio padrão (DP) de três experimentos independentes, e P < 0,05 foi considerado estatisticamente significativo. As análises estatísticas dos dados experimentais foram realizadas utilizando software de análise estatística (versão 9,0).
Análise estatística
Salvo indicação em contrário, todas as análises bioinformáticas foram realizadas em R (versão 4.3.2). Valores de P bicaudais < 0,05 foram considerados estatisticamente significativos. As correlações foram avaliadas utilizando o coeficiente de correlação de postos de Spearman (ρ). A correção para múltiplos testes foi realizada utilizando o método FDR de Benjamini-Hochberg, quando aplicável. Os dados experimentais foram apresentados como média ± DP e comparados utilizando testes t de Student não pareados bicaudais. As análises estatísticas experimentais foram realizadas utilizando software de análise estatística (versão 9,0).
Resultados
O GSE99671 identificou 105 genes diferencialmente expressos relacionados à senescência na base CellAge
O GSE99671 incluiu 36 amostras de 18 tecidos pareados. Após a filtragem de contagens baixas, 16.683 genes foram mantidos. Com um valor de P ajustado < 0,05, 2.248 genes foram diferencialmente expressos. Sob o limiar mais rigoroso de P ajustado < 0,05 e |log2FC| ≥ 1, 594 genes foram significativos, incluindo 102 genes superexpressos e 492 genes subexpressos em tumores (Figura 1A,B). A intersecção entre os 2.248 genes diferencialmente expressos e os 866 genes da base CellAge resultou em 105 genes diferencialmente expressos relacionados à senescência (Figura 1C). O gene PPARG foi subexpresso no GSE99671, com log2FC = -0,644, P = 0,00451 e valor de P ajustado = 0,0309. Em 13 dos 18 pares, a expressão de PPARG foi maior no tecido normal do que no tecido tumoral, com um valor de P de Wilcoxon pareado = 0,0294 (Figura 1D).
A triagem prognóstica multivariada indicou PPARG como o gene candidato principal
No TARGET-OS, foram incluídos 85 pacientes com 27 eventos de morte. A triagem integrada dos 105 genes diferencialmente expressos relacionados ao envelhecimento celular, utilizando regressão univariada de Cox, análise de Kaplan-Meier, análise ROC de sobrevida, LASSO, LASSO repetido e modelagem por floresta de sobrevida aleatória, identificou 18 genes centrais candidatos antes do ajuste clínico (Figura 2A). PPARG mostrou associação com a sobrevida global na análise univariada de Cox (HR = 0,603, IC 95% = 0,454–0,802, P = 0,000494, FDR = 0,0447), indicando que uma expressão mais alta de PPARG estava associada a um risco menor de mortalidade. A análise de Kaplan-Meier comparando os grupos de alta e baixa expressão resultou em P = 0,00784 (Figura 2B). As AUCs dependentes do tempo aos 1, 3 e 5 anos foram respectivamente 0,603, 0,760 e 0,776 (Figura 2C). PPARG apresentou uma frequência de seleção no LASSO repetido de 0,920 e uma importância na floresta de sobrevida aleatória de 0,0398 (Figura 2D–F). A pontuação inicial de PPARG como gene central foi 6/6, pois ele atendeu a todos os seis critérios pré-especificados de triagem.
Ajuste clínico reforçou a associação prognóstica de PPARG
Após a incorporação das covariáveis clínicas, PPARG manteve-se significativamente associado à sobrevida global (HR ajustado = 0,224, IC 95% = 0,085–0,589, P = 0,00241; Figura 2G). O modelo somente clínico apresentou um índice C de 0,707 e um AIC de 89,921 (Tabela Suplementar 1). A inclusão de PPARG aumentou o índice C para 0,829, reduziu o AIC para 78,466 e melhorou significativamente o ajuste do modelo segundo o teste da razão de verossimilhança (P = 0,000244; Tabela Suplementar 2, Figura 2H,I). A análise de sensibilidade após a exclusão dos casos submetidos à cirurgia definitiva manteve a associação protetora de PPARG (HR = 0,249, P = 0,00185; Tabela Suplementar 3, Figura 2J). PPARG obteve a maior pontuação integrada clínica de 13 (pontuação inicial do hub de 6 mais sete pontos de integração clínica) e apresentou AUCs finais de 3 e 5 anos de 0,770 e 0,813, respectivamente (Figura 2K).
Características funcionais e do microambiente imunológico associadas ao PPARG
A análise de enriquecimento gênico (GSEA) comparando os grupos com alto e baixo PPARG exibiu ativação de vias como Resposta Inflamatória LPS de Nemeth, Adipogênese 5 de Burton, Adipogênese 6 de Burton, Alvos KDM3A Não Hipóxia de Krieg, Regulação Transcricional Pelo TP53 do Reactome, Resposta Inflamatória Lectina Vs LPS Dn de Fulcher, Apoptose Via CD40 Dn de Hollmann, Resposta Inflamatória Viva Dn de Zhou, Transporte de Ácidos Graxos e Lipoproteínas em Hepatócitos do WP, Câncer de Pulmão KRAS Up de Sweet, Via de Sinalização HIV Tat Para TLR2/4 NF-kB do KEGG Medicus e Ácidos Graxos do Reactome (Figura 3A). Nos dados integrais do TARGET-OS, o PPARG não apresentou correlação significativa com o escore geral de senescência CellAge (Spearman ρ = 0,022, P = 0,837; Figura 3B), mas mostrou correlação com diversos genes individuais do CellAge (Figura 3C). A análise do microambiente imunológico revelou correlações positivas entre o PPARG e macrófagos (ρ = 0,485, FDR = 2,7 × 10⁻⁵), células T CD8 (ρ = 0,410, FDR = 5,88 × 10⁻⁴), assinatura semelhante a osteoclastos (ρ = 0,383, FDR = 0,00120), neutrófilos (ρ = 0,376, FDR = 0,00120), e células dendríticas (ρ = 0,370, FDR = 0,00123). Tumores com alto PPARG apresentaram assinaturas mais elevadas de células semelhantes a osteoclastos, macrófagos, células T CD8, células dendríticas, monócitos, neutrófilos, células NK e células endoteliais após correção pelo FDR (Tabela Suplementar 4, Figura 3D,E).
A transcriptômica de célula única localizou PPARG em compartimentos vasculares e microambientais
O conjunto de dados de célula única continha 68.336 células e 32.297 genes. A expressão de PPARG diferiu significativamente entre os tipos celulares (Figura 4A). A expressão média mais alta foi observada em células endoteliais (expressão média = 0,540; proporção positiva = 44,33%), pericitos (expressão média = 0,439; proporção positiva = 41,61%), macrófagos/monócitos (expressão média = 0,363; proporção positiva = 31,62%) e células estromais associadas ao tumor (expressão média = 0,361; proporção positiva = 44,10%; Figura 4B–E). Um subconjunto de células malignas de osteossarcoma expressou PPARG (expressão média = 0,163; proporção positiva = 16,70%), mas a expressão em células malignas de osteossarcoma não foi significativamente maior do que em outras células (FDR = 0,151). Esses achados sugeriram que a expressão de PPARG no osteossarcoma refletia predominantemente estados microambientais vasculares, mieloides e estromais, em vez de estar restrita a células malignas (Figura 4F).
A transcriptômica espacial associou PPARG a estados espaciais relacionados à senescência e nichos vasculares
Após o controle de qualidade, foram mantidos 4.572 pontos espaciais SP_BS3 e agrupados em sete clusters espaciais (Figura 5A). Figura 5B mostra a distribuição espacial de nFeature_Spatial (genes detectados por ponto). Separadamente, dos 866 genes do CellAge, 845 foram identificados na matriz de expressão espacial (97,58%). PPARG apresentou expressão espacial focal (Figura 5C). A pontuação espacial de senescência do CellAge, calculada após a remoção de PPARG, mostrou uma correlação positiva fraca, mas estatisticamente significativa, com a expressão de PPARG (ρ = 0,0692, P = 3,0 × 10⁻⁶, FDR = 1,9 × 10⁻⁵; Figura 5D). A pontuação de nicho espacial mostrou correlações positivas entre PPARG e a pontuação endotelial (ρ = 0,0433, FDR = 0,00592) e a pontuação de pericitos (ρ = 0,0367, FDR = 0,0181), enquanto PPARG foi negativamente correlacionado com a pontuação de osteossarcoma maligno (ρ = -0,0592, FDR = 0,000219) e a pontuação estromal tumoral (ρ = -0,0531, FDR = 0,000774; Tabela Suplementar 5, Figura 5E). A análise de transferência de rótulos mostrou, de forma semelhante, correlações positivas com a pontuação de predição endotelial (ρ = 0,0507, FDR = 0,00120) e a pontuação de predição de pericitos (ρ = 0,0394, FDR = 0,0123), juntamente com uma correlação negativa com a pontuação de predição de células de osteossarcoma maligno (ρ = -0,0699, FDR = 1,1 × 10⁻⁵; Figura 5F–H).
A expressão externa e a validação experimental apoiaram a subexpressão de PPARG
O conjunto de dados GSE36001 incluiu 19 amostras de osteossarcoma e seis controles normais. PPARG foi significativamente subexpresso no osteossarcoma (logFC = -1,429, P = 0,00730, valor P ajustado = 0,0435; Figura 6A). Na validação baseada em células, a expressão de mRNA de PPARG foi significativamente menor nas células de osteossarcoma 143B do que nas células de osteoblastos humanos, conforme análise por qRT-PCR (P < 0,001; Figura 6B). A expressão proteica de PPARG também foi significativamente reduzida nas células 143B por meio de Western blot (P < 0,01; Figura 6C,D). Esses achados provenientes de coorte externa, bem como em nível de mRNA e proteína, apoiaram consistentemente a redução da expressão de PPARG no osteossarcoma. O conjunto de dados GSE36001 não incluiu desfechos de sobrevida e, portanto, forneceu apenas validação externa de expressão, não uma validação prognóstica independente.
DISPONIBILIDADE DE DADOS:
Todos os conjuntos de dados utilizados neste estudo estão publicamente disponíveis. Os conjuntos GSE99671 e GSE36001 foram obtidos do banco de dados Gene Expression Omnibus (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001). Os dados transcriptômicos e clínicos do TARGET-OS foram baixados do UCSC Xena (https://xena.ucsc.edu/). Os genes relacionados à senescência foram obtidos do CellAge: The Database of Cell Senescence Genes, parte dos Recursos Genômicos do Envelhecimento Humano (https://genomics.senescence.info/cells/). Os conjuntos de dados transcriptômicos de única célula e espaciais do osteossarcoma humano foram obtidos do atlas publicado e do repositório associado no GitHub (https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas). Os conjuntos de genes para análise de enriquecimento foram obtidos do MSigDB (https://www.gsea-msigdb.org/gsea/msigdb/). Os dados processados gerados neste estudo e os scripts de análise utilizados para reproduzir os resultados relatados foram compilados e submetidos como Arquivo Suplementar 1.
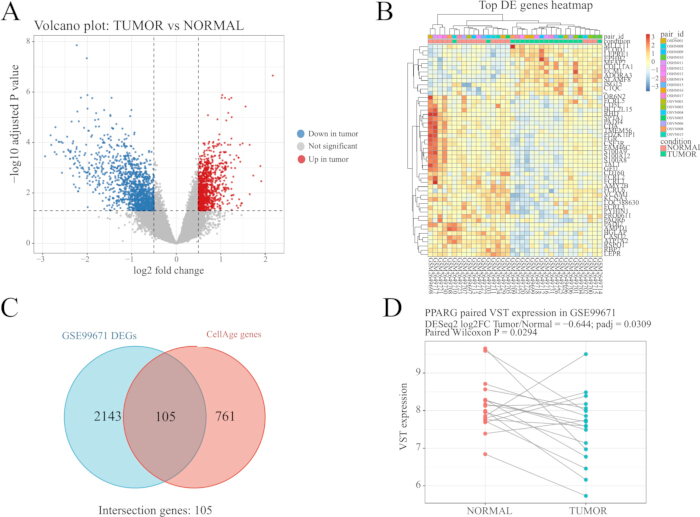
Figura 1: Identificação de genes diferencialmente expressos e genes candidatos relacionados à senescência derivados do CellAge no osteossarcoma. (A) Gráfico de vulcão mostrando os genes diferencialmente expressos entre tecidos de osteossarcoma e tecidos-controle não tumorais pareados no conjunto de dados GSE99671. Os genes significativamente superexpressos e subexpressos são destacados de acordo com os critérios pré-definidos de corte. (B) Mapa de calor mostrando os padrões de expressão de genes diferencialmente expressos representativos nos tecidos de osteossarcoma e amostras-controle pareadas no GSE99671. (C) Diagrama de Venn mostrando a intersecção entre os genes diferencialmente expressos do GSE99671 e os genes relacionados à senescência do CellAge. (D) Comparação emparelhada da expressão de PPARG entre tecidos de osteossarcoma e tecidos-controle não tumorais correspondentes no GSE99671. Clique aqui para visualizar uma versão maior desta figura.
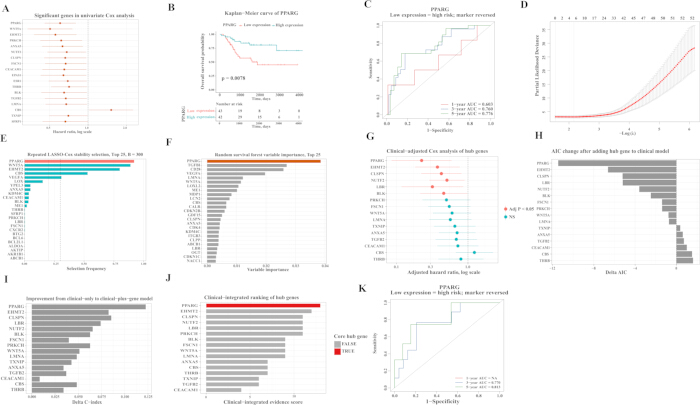
Figura 2: Análises de sobrevida com ajuste clínico e baseadas em aprendizado de máquina identificam PPARG como um gene central prognóstico relacionado à senescência no osteossarcoma. (A) Gráfico em floresta mostrando os resultados da regressão de Cox univariada para genes candidatos relacionados à senescência na coorte TARGET-OS. (B) Curva de sobrevida de Kaplan-Meier comparando a sobrevida global entre pacientes com expressão elevada e baixa de PPARG. (C) Curvas ROC dependentes do tempo avaliando o desempenho preditivo de PPARG para sobrevida global. (D) Curva de validação cruzada da regressão de Cox com LASSO para seleção de genes candidatos prognósticos. (E) Análise de estabilidade de LASSO repetida mostrando as frequências de seleção de lambda.min em 300 repetições com cinco dobras. (F) Análise de floresta aleatória de sobrevida mostrando os escores de importância das variáveis obtidos a partir de 1.000 árvores. (G) Gráfico em floresta mostrando os resultados da regressão de Cox ajustada clinicamente para os genes centrais candidatos. (H) Alterações no AIC após a inclusão de genes centrais individuais ao modelo clínico. (I) Melhoria no índice C após a inclusão de genes centrais individuais ao modelo clínico. (J) Classificação final do escore integrado clínico (intervalo 0–13) para o gene central candidato. (K) Curvas ROC dependentes do tempo de PPARG no subconjunto clínico de 40 pacientes, mostrando as AUCs de 3 e 5 anos; a AUC de 1 ano não foi estimável. Clique aqui para visualizar uma versão maior desta figura.
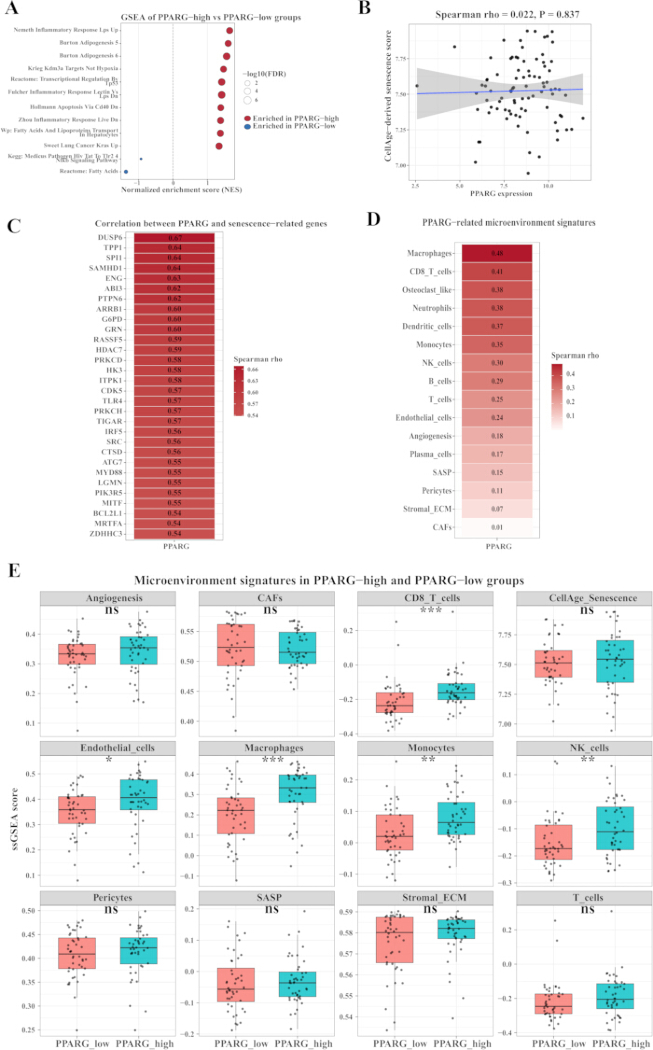
Figura 3: Enriquecimento funcional associado ao PPARG e análise do microambiente imune. (A) Gráfico de bolhas de análise de enriquecimento de conjuntos de genes (GSEA) comparando os grupos com alta e baixa expressão de PPARG, mostrando Nemeth Resposta Inflamatória LPS Ativação, Burton Adipogênese 5, Burton Adipogênese 6, Krieg Alvos KDM3A Não Hipóxia, Reactome: Regulação Transcricional Pelo TP53, Fulcher Resposta Inflamatória Lectina Vs LPS Repressão, Hollmann Apoptose Via CD40 Repressão, Zhou Resposta Inflamatória Vida Repressão, WP: Transporte de Ácidos Graxos e Lipoproteínas em Hepatócitos, Sweet Câncer de Pulmão KRAS Ativação, KEGG Caminho de Sinalização HIV Tat Para TLR2/4 NF-κB, e Reactome: Ácidos Graxos. (B) Correlação entre PPARG e o escore global de senescência CellAge nos dados bulk do TARGET-OS. (C) Correlações entre PPARG e genes individuais do CellAge. (D) Correlações entre PPARG e assinaturas do microambiente imune. (E) Diferenças nos escores do microambiente entre os grupos com alta e baixa expressão de PPARG. As correlações foram avaliadas usando o coeficiente de correlação de postos de Spearman (ρ), e os valores P ajustados foram calculados pelo método Benjamini-Hochberg. Abreviaturas: GSEA = análise de enriquecimento de conjuntos de genes; NF-κB = fator nuclear kappa-B; JAK-STAT = Janus quinase-transdutor de sinal e ativador de transcrição; IL-12 = interleucina-12; FDR = taxa de falsas descobertas. Clique aqui para visualizar uma versão maior desta figura.
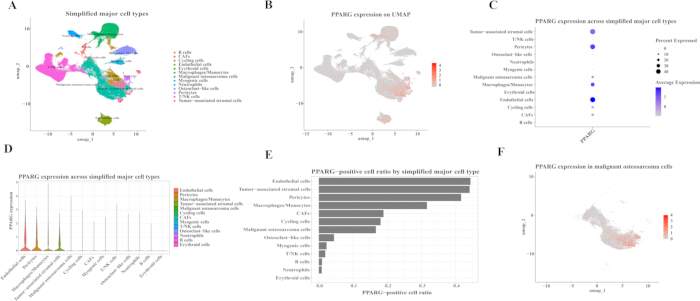
Figura 4: Localização de PPARG em diferentes compartimentos celulares nos dados transcriptômicos de célula única de osteossarcoma. (A) Visualização UMAP dos principais tipos celulares no conjunto de dados transcriptômicos de célula única de osteossarcoma humano após anotação manual simplificada. (B) FeaturePlot mostrando a distribuição global da expressão de PPARG em células individuais. (C) DotPlot mostrando a expressão de PPARG nos principais tipos celulares. (D) Gráfico de violino mostrando os níveis de expressão de PPARG em diferentes tipos celulares. (E) Gráfico de barras mostrando a proporção de células positivas para PPARG em cada tipo celular principal. (F) Visualização UMAP mostrando a expressão de PPARG em células malignas de osteossarcoma. Abreviação: UMAP = uniform manifold approximation and projection. Clique aqui para visualizar uma versão maior desta figura.
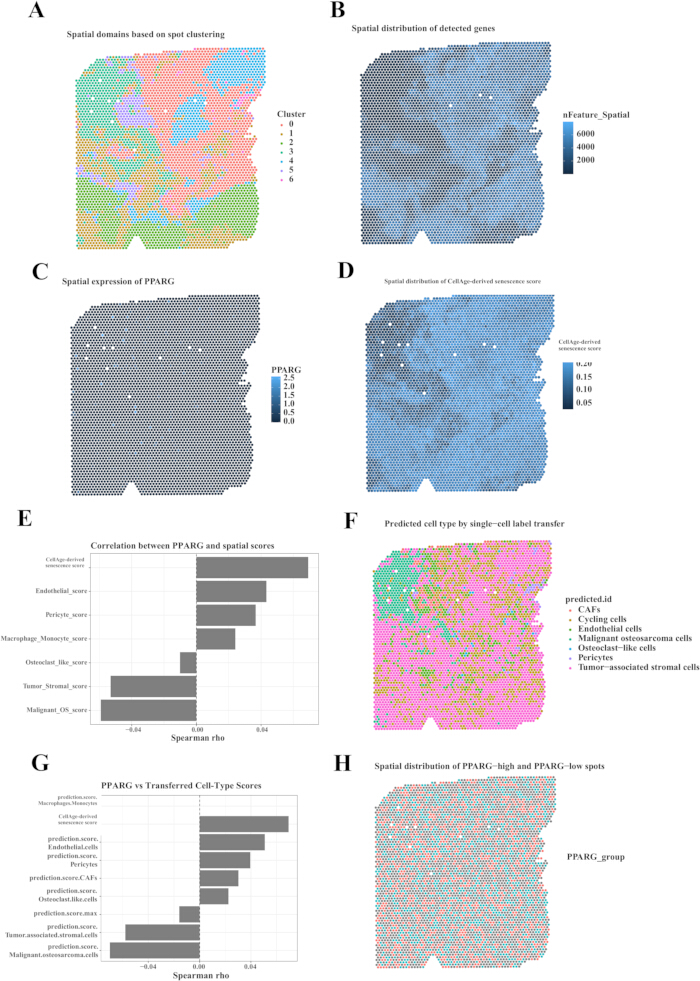
Figura 5: Localização transcriptômica espacial de PPARG e características espaciais relacionadas à senescência no osteossarcoma. (A) Distribuição espacial dos agrupamentos definidos pelo transcriptoma na seção transcriptômica espacial de osteossarcoma SP_BS3. (B) Distribuição espacial do número de genes detectados por ponto, mostrada por nFeature_Spatial. (C) Padrão de expressão espacial de PPARG nos pontos SP_BS3. (D) Distribuição espacial da pontuação de senescência derivada do CellAge. (E) Análise de correlação entre a expressão de PPARG e a pontuação espacial de senescência derivada do CellAge ou as pontuações de nicho ecológico celular. (F) Mapa de predição por transferência de rótulo mostrando o tipo celular predominante derivado de célula única para cada ponto espacial. (G) Análise de correlação entre expressão de PPARG, pontuação de senescência derivada do CellAge e pontuações de predição de tipo celular derivadas da transferência de rótulo. (H) Distribuição espacial dos pontos com alta e baixa expressão de PPARG. Clique aqui para visualizar uma versão maior desta figura.
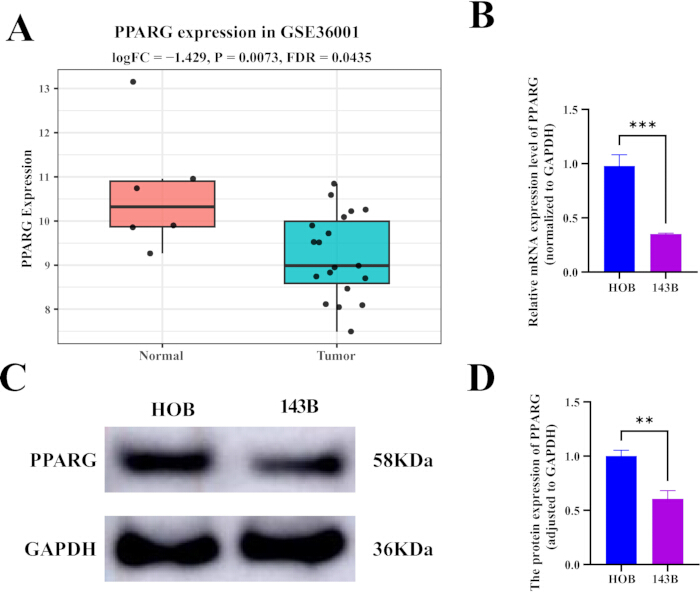
Figura 6: Expressão externa e validação experimental da subexpressão de PPARG no osteossarcoma. (A) Gráfico de caixa mostrando os níveis de expressão de PPARG em amostras de osteossarcoma (n = 19) e amostras normais de controle (n = 6) no conjunto de dados GSE36001. (B) Análise por qRT-PCR da expressão de mRNA de PPARG em células humanas de osteossarcoma 143B e células-controle de osteoblastos humanos. (C) Western blot representativo mostrando a expressão proteica de PPARG e GAPDH em células osteoblásticas humanas controle e células de osteossarcoma 143B. GAPDH foi utilizado como controle de carregamento.D) Quantificação densitométrica das bandas de Western blot mostrando os níveis relativos de proteína PPARG normalizados para GAPDH. Em (B) e (D), os dados são apresentados como média ± DP de três experimentos independentes. P < 0,01 e P < 0,001 versus o grupo controle de osteoblastos humanos, conforme determinado por um teste t de Student não pareado bicaudal t-teste. Abreviações: qRT-PCR = reação em cadeia da polimerase com transcrição reversa quantitativa; GAPDH = desidrogenase gliceraldeído-3-fosfato; DP = desvio padrão. Clique aqui para visualizar uma versão maior desta figura.
Tabela Suplementar 1: Desempenho do modelo de Cox somente clínico na coorte TARGET-OS. Índice C, AIC e resumo do modelo do modelo de Cox construído utilizando apenas variáveis clínicas, incluindo sexo, idade, estado da doença no diagnóstico, local primário do tumor, região tumoral específica e status de cirurgia definitiva. Abreviação: AIC = Critério de Informação de Akaike. Clique aqui para baixar este arquivo.
Tabela Suplementar 2: Comparação entre modelos clínicos apenas e modelos clínicos mais gênicos de Cox. Resultados da comparação dos modelos após a adição de genes centrais candidatos individuais ao modelo clínico, incluindo índice C, AIC, estatísticas do teste da razão de verossimilhança e métricas de melhoria do modelo. Abreviação: AIC = Critério de Informação de Akaike. Clique aqui para baixar este arquivo.
Tabela Suplementar 3: Análise de sensibilidade após a remoção da variável cirurgia definitiva. Resultados da regressão de Cox de sensibilidade avaliando se as associações prognósticas dos genes centrais candidatos, particularmente PPARG, permaneceram estáveis após a exclusão da variável cirurgia definitiva do modelo clínico ajustado. Clique aqui para baixar este arquivo.
Tabela Suplementar 4: Assinaturas associadas ao microambiente imune e estromal relacionadas ao PPARG no TARGET-OS. Resultados de correlação e comparação entre grupos da expressão de PPARG com assinaturas de ssGSEA relacionadas ao sistema imunológico, estroma, vasculatura, inflamação e fenótipo secretor associado à senescência (SASP), incluindo coeficientes de correlação de Spearman, valores de P, valores de P ajustados e comparações entre grupos com alta e baixa expressão de PPARG. Abreviações: SASP = fenótipo secretor associado à senescência; ssGSEA = análise de enriquecimento de conjunto de genes em amostra única. Clique aqui para baixar este arquivo.
Tabela Suplementar 5: Análise de correlação transcriptômica espacial de PPARG na SP_BS3. Resultados da correlação entre a expressão de PPARG e a pontuação de senescência derivada do CellAge espacial, as pontuações de nicho ecológico celular e as pontuações de predição de tipo celular derivadas da transferência de rótulo na seção transcriptômica espacial do osteossarcoma SP_BS3. Clique aqui para baixar este arquivo.
Discussão
Este estudo indicou PPARG como um gene candidato relacionado à senescência com valor prognóstico no osteossarcoma, integrando análise de expressão diferencial, interseção com genes do CellAge, modelagem de sobrevida no TARGET-OS, ajuste clínico, localização multi-ômica e validação experimental. Esse enfoque analítico foi coerente com a ênfase atual na pesquisa molecularmente orientada do osteossarcoma e nos recursos curados de genes relacionados à senescência para interpretação da biologia associada à senescência14,31. PPARG apresentou subexpressão no osteossarcoma em comparação com tecido normal, e níveis mais baixos de expressão de PPARG estiveram associados a pior sobrevida global no TARGET-OS. Esses achados sugerem que PPARG não apenas sofre alterações transcricionais no osteossarcoma, mas também pode conter informações prognósticas clinicamente relevantes. Contudo, como a seleção dos candidatos e a avaliação do modelo foram realizadas na mesma coorte do TARGET-OS (85 pacientes, 27 eventos de morte), a melhoria observada no desempenho do modelo pode estar sujeita a otimismo e superajuste; portanto, o valor prognóstico de PPARG deve ser considerado gerador de hipóteses até ser validado em uma coorte independente de sobrevida em osteossarcoma. Apesar disso, a biologia de PPARG deve ser interpretada de maneira dependente do contexto, pois estudos experimentais em osteossarcoma relataram tanto efeitos antitumorais da modulação do PPAR-gama/receptor nuclear quanto programas de PPARG associados a osteoclastos que podem favorecer a progressão da doença32,33,34.
Uma nuance importante foi que o PPARG não deveria ser interpretado como um simples substituto para a pontuação global de CellAge. Em dados bulk do TARGET-OS, o PPARG não apresentou correlação significativa com a pontuação global de senescência CellAge, enquanto na transcriptômica espacial, o PPARG mostrou uma correlação fraca, mas significativa, com uma pontuação de CellAge calculada após a exclusão do próprio PPARG. Essa diferença pode refletir efeitos da composição celular nos dados bulk, a natureza multifuncional dos conjuntos gênicos de senescência e o enriquecimento local de nichos microambientais nos pontos espaciais. Estudos de consenso e transcriptômicos têm enfatizado que a senescência celular é heterogênea, dinâmica e dependente do tipo celular, do estressor e do contexto tecidual, enquanto os programas SASP podem exercer efeitos opostos durante a progressão do câncer25,35,36,37. Assim, o PPARG foi definido de forma conservadora como um gene prognóstico relacionado à senescência derivado do CellAge, e não como um indutor comprovado de senescência. Consequentemente, a designação de PPARG como relacionado à senescência reflete a pertença ao conjunto de genes do CellAge, e não o envolvimento mecanicista demonstrado na senescência, e o PPARG não deve ser usado como um substituto quantitativo para a atividade global de senescência.
De forma mais geral, esses resultados espaciais ilustraram a distinção entre significância estatística e relevância biológica. Com 4.572 pontos espaciais, até mesmo correlações muito fracas poderiam ultrapassar os limiares convencionais de significância; por exemplo, a correlação entre PPARG e o escore espacial de senescência CellAge (ρ = 0,0692) explicava apenas aproximadamente 0,48% da variância, ainda assim atingiu um valor de P de 3,0 × 10⁻⁶ porque o grande número de pontos forneceu poder estatístico substancial. Assim, essas associações em nível de ponto devem ser consideradas como sinais estatisticamente detectáveis, mas biologicamente modestos e geradores de hipóteses, e seus tamanhos de efeito, e não apenas seus valores de P, devem orientar a interpretação biológica. A significância estatística em grandes conjuntos de dados em nível de ponto não deve ser equiparada a efeitos biológicos fortes.
Análises de célula única e espaciais forneceram um contexto biológico para o PPARG. O PPARG foi enriquecido em células endoteliais, pericitos, macrófagos/monócitos e células estromais associadas ao tumor, e estava espacialmente associado aos escores de células endoteliais e pericitos. Esses resultados sugerem que a informação prognóstica carregada pelo PPARG pode estar ligada aos compartimentos vasculares e microambientais no osteossarcoma. Essa interpretação foi compatível com atlas recentes de osteossarcoma em nível de célula única e espacial, bem como com evidências mais amplas de que nichos imunes, vasculares e estromais moldam a heterogeneidade tumoral, a resposta ao tratamento e a progressão25,38,39. Como as células malignas de osteossarcoma expressaram o PPARG apenas em um subconjunto de células e não apresentaram expressão significativamente mais alta do que outras células, uma interpretação baseada apenas nas células tumorais teria sido incompleta. Por outro lado, a subregulação em nível global do PPARG observada nos conjuntos de dados GSE99671 e GSE36001 pode ter refletido parcialmente diferenças na composição de células estromais, vasculares, da medula óssea, adipogênicas ou imunes entre tecidos tumorais e normais, em vez de uma subregulação genuína nas células malignas de osteossarcoma. Como a pureza tumoral e a abundância de tipos celulares não foram explicitamente ajustadas nas análises globais, essa possibilidade não pôde ser descartada e justifica investigação direcionada.
As análises funcionais e do microambiente imunológico foram consistentes com essa interpretação. O PPARG correlacionou-se com assinaturas de macrófagos, células T CD8, células dendríticas, neutrófilos, células NK e endoteliais, e a GSEA destacou vias relacionadas à inflamação, NF-κB, sinalização JAK-STAT/IL-12, regulação de TP53 e pontos de verificação de danos no DNA. Juntos, esses resultados sugeriram que o PPARG pode marcar um estado microambiental composto envolvendo estresse associado à senescência, infiltração imune e compartimentos vasculares e estromais. Essa interpretação era biologicamente plausível porque o PPAR-gama possui funções estabelecidas na supressão da ativação inflamatória de macrófagos/monócitos, incluindo efeitos sobre programas transcripcionais relacionados a AP-1, STAT e NF-κB, e porque o microambiente imunológico do osteossarcoma contém elementos mieloides, linfoides e vasculares com funções tanto promotoras quanto supressoras de tumores38,40,41. Essas observações em nível de única célula e espaciais foram descritivas e geradoras de hipóteses; por si só, não estabeleceram mecanismos de nicho vascular, programas de senescência ou vias prognósticas.
Várias limitações devem ser reconhecidas. Primeiramente, a principal análise prognóstica baseou-se na coorte pública retrospectiva TARGET-OS, com tamanho amostral e número de eventos limitados; portanto, o valor prognóstico do PPARG deve ser validado em coortes independentes, conforme os princípios aceitos de relato e validação de marcadores tumorais42. Em particular, a triagem de candidatos foi realizada em 85 pacientes do TARGET-OS com 27 óbitos, enquanto a avaliação do modelo ajustado clinicamente utilizou o subconjunto sobreposto de 40 pacientes com 13 óbitos. Como ambas as análises foram derivadas da mesma coorte fonte, a melhoria relatada no índice C (0,707 para 0,829) e a redução do AIC provavelmente são superestimadas. Nenhuma coorte de sobrevida independente estava disponível para validar externamente o valor prognóstico do PPARG; o GSE36001 foi usado apenas para validação da expressão tumor versus normal. Além disso, o escore integrado do hub foi uma heurística interna exploratória de classificação, e não um instrumento prognóstico validado. Segundo, a análise de transcriptômica espacial baseou-se em uma única amostra SP_BS3; embora as correlações tenham sido estatisticamente significativas, os tamanhos dos efeitos foram pequenos e exigem validação em amostras espaciais adicionais. Em particular, aumentar o número de amostras de transcriptômica espacial provenientes de pacientes independentes será essencial para obter estimativas mais robustas dessas associações fracas, sendo justificáveis estudos baseados em coortes espaciais maiores. A transcriptômica espacial fornece um contexto molecular valioso in situ, mas sua interpretação ainda é influenciada pela resolução da plataforma, estratégia de amostragem, qualidade do tecido e escolhas computacionais de integração43. Além disso, a análise espacial dependeu de um objeto público pré-processado de célula única com anotações simplificadas, bem como de pontuação computacional e transferência de rótulos; dada a magnitude mínima dos efeitos, esses dados sustentam declarações descritivas de localização, e não afirmações mecanicistas sobre nichos vasculares ou programas de senescência. Terceiro, a validação experimental baseou-se na linhagem celular de osteossarcoma 143B e em osteoblastos humanos; são necessárias linhagens celulares adicionais de osteossarcoma e amostras clínicas, e a validação em uma única linhagem celular não pode estabelecer especificidade de tipo celular, relevância prognóstica clínica ou biologia da senescência. Quarto, este estudo demonstrou associação, e não causalidade. Perturbações funcionais do PPARG em células de osteossarcoma e modelos do microambiente serão necessárias para determinar se o PPARG regula diretamente programas relacionados à senescência, nichos vasculares ou progressão tumoral. Quinto, a relação com senescência foi definida pelo sobreposição com o conjunto de genes CellAge, e o PPARG não apresentou correlação com o escore de senescência CellAge em massa no TARGET-OS. Além disso, as comparações em massa entre tumor e tecido normal não foram ajustadas pela pureza tumoral ou composição de tipos celulares, de modo que a subexpressão observada pode refletir parcialmente diferenças na composição do microambiente, e não alterações intrínsecas às células malignas.
PPARG é um gene derivado do CellAge cuja expressão reduzida está associada a uma sobrevida geral desfavorável na coorte TARGET-OS. Sua subexpressão em comparações de osteossarcoma em massa, juntamente com seu enriquecimento nos compartimentos vascular, mieloide e estromal, sugere que os níveis de PPARG em massa podem refletir parcialmente a composição celular do microambiente, e não a expressão intrínseca nas células malignas. As descobertas em nível de única célula e espaciais são descritivas, e a associação prognóstica não foi validada independentemente quanto à sobrevida, exigindo validação em uma coorte externa com desfechos de sobrevida. Esses achados indicam PPARG como um biomarcador candidato para avaliação prognóstica em osteossarcoma e para pesquisas sobre microambientes relacionados à senescência, pendentes validação externa e estudos funcionais. Na transcriptômica espacial, as correlações entre PPARG e os escores de nicho relacionado à senescência ou vascular foram fracas em magnitude de efeito, embora estatisticamente significativas devido ao grande número de pontos espaciais, devendo, portanto, ser interpretadas com cautela.
Divulgações
Os autores declaram não haver interesses conflitantes.
CONTRIBUIÇÃO DOS AUTORES:
Yongwen Li e Wentao Qin conceberam e planejaram o estudo. Yongwen Li realizou as análises bioinformáticas e computacionais. Tuo Liang realizou a validação experimental. Rubiao Qiu e Zide Zhang contribuíram na preparação das figuras. Rubiao Qiu e Zide Zhang supervisionaram o estudo e revisaram criticamente o manuscrito. Todos os autores revisaram e aprovaram o manuscrito final
Agradecimentos
Os autores agradecem com gratidão aos pesquisadores e colaboradores dos projetos GEO, TARGET-OS, UCSC Xena, CellAge, MSigDB e atlas transcriptômico de célula única e espacial do osteossarcoma humano pela disponibilização de conjuntos de dados e recursos publicamente acessíveis que permitiram este estudo. Este trabalho foi apoiado pela Fundação de Ciências Naturais de Guangxi (nº 2023GXNSFAA026111).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Anticorpo primário anti-GAPDH | Proteintech Group, Wuhan, China | 10494-1-AP | Anticorpo primário utilizado para detectar GAPDH como controle de carga em blotagem ocidental; diluição 1:5.000. |
| Anticorpo primário anti-PPARG | Proteintech Group, Wuhan, China | 16643-1-AP | Anticorpo primário utilizado para detecção da proteína PPARG por meio de blotagem ocidental; diluição 1:1.000. |
| Kit de ensaio de proteína BCA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PC0020 | Ensaio colorimétrico utilizado para determinar a concentração total de proteína antes da eletroforese. |
| DESeq2 | Bioconductor | Version 1.40.2 | Pacote R utilizado para análise diferencial de expressão gênica de dados transcriptômicos baseados em contagem. |
| Meio de Eagle modificado de Dulbecco (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | 11995 | Meio de cultura basal utilizado para manutenção de células de osteossarcoma 143B. |
| Reagente de detecção ECL | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PE0010 | Substrato quimioluminescente utilizado para detecção de anticorpos conjugados à HRP em blotagem ocidental. |
| Soro bovino fetal (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), Huzhou, Zhejiang, China | 11011-8611 | Suplemento sérico adicionado ao meio de cultura para suportar o crescimento e a viabilidade celular. |
| glmnet | CRAN | Version 4.1-8 | Pacote R utilizado para análises de regressão penalizada, incluindo modelagem LASSO e rede elástica. |
| GraphPad Prism | GraphPad Software, San Diego, CA, USA | Version 9.0 | Software utilizado para análise estatística, geração de gráficos e visualização de dados experimentais. |
| Anticorpo secundário conjugado à HRP | Proteintech Group, Wuhan, China | SA00001-2 | Anticorpo secundário conjugado à peroxidase de rábano-picante utilizado para detecção em blotagem ocidental; diluição 1:5.000. |
| Células de osteoblastos humanos | Cell Applications, Inc., San Diego, CA, USA | 406-05A | Células primárias de osteoblastos humanos utilizadas como tipo celular de comparação/controle não maligno. |
| Linhagem celular de osteossarcoma humano 143B | American Type Culture Collection (ATCC), Manassas, VA, USA | CRL-8303 | Linhagem celular de osteossarcoma humano utilizada para experimentos de validação in vitro e ensaios moleculares. |
| ImageJ | National Institutes of Health (NIH), USA | Version 1.53 | Software de análise de imagens utilizado para análise quantitativa de imagens experimentais. |
| limma | Bioconductor | Version 3.56.2 | Pacote R utilizado para análise de expressão diferencial e testes estatísticos baseados em modelos lineares. |
| Penicilina-estreptomicina | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | P1400 | Suplemento antibiótico utilizado no meio de cultura celular para reduzir contaminação bacteriana. |
| Primeres PPARG e GAPDH | Sangon Biotech (Shanghai) Co., Ltd., Shanghai, China | Síntese personalizada; sequências fornecidas nos Métodos | Primeres oligonucleotídicos personalizados utilizados para análise de qPCR da expressão de PPARG e GAPDH. |
| Membranas de PVDF, 0,45 µm | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | YA1701 | Membranas utilizadas para transferência de proteínas durante a blotagem ocidental. |
| Software estatístico R | R Foundation for Statistical Computing, Vienna, Austria | Version 4.3.2 | Ambiente de computação estatística utilizado para análises bioinformáticas, construção de modelos e visualização. |
| randomForestSRC | CRAN | Version 3.2.2 | Pacote R utilizado para modelagem de floresta de sobrevivência aleatória e análise de importância de características. |
| Kit de transcrição reversa | Beyotime Biotech Inc., Shanghai, China | D7168M | Utilizado para síntese de DNA complementar (cDNA) a partir de RNA isolado antes da PCR quantitativa. |
| Tampão de lise RIPA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | R0010 | Tampão de extração de proteínas utilizado para lisar células para análise por blotagem ocidental. |
| Seurat | Satija Laboratory | Version 5.0.1 | Pacote R utilizado para processamento, integração, agrupamento e visualização de dados de sequenciamento de RNA de célula única. |
| survival | CRAN | Version 3.5-7 | Pacote R utilizado para análise de sobrevivência, incluindo modelagem de riscos proporcionais de Cox. |
| Mistura mestra SYBR Green qPCR | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | SR1110 | Mistura mestra fluorescente utilizada para amplificação por PCR em tempo real quantitativa. |
| timeROC | CRAN | Version 0.4 | Pacote R utilizado para gerar curvas de característica operacional do receptor dependentes do tempo e calcular o desempenho preditivo ao longo do tempo. |
| Reagente TRIzol | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | Reagente utilizado para extração de RNA total de células cultivadas. |
| Tripsina-EDTA, 0,25% | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | T1300 | Reagente de dissociação celular utilizado para repicagem e coleta de células aderentes. |
Referências
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.