Este estudo demonstra que o miR-1298 está fortemente associado à invasão e à migração no CCR e pode atuar como um supressor tumoral ao inibir a progressão do CCR, destacando seu potencial como um novo alvo terapêutico para o tratamento do CCR.
Artigo de investigação
Papel do Eixo miR-1298/Proteína Morfogenética Óssea 7 no Câncer Colorretal
* These authors contributed equally
Neste artigo
Resumo
Resumo
A incidência do câncer colorretal (CRC) tem aumentado nos últimos anos. Exploramos a significância clínica e os mecanismos moleculares do miR-1298 no CRC. Um total de 85 pacientes com CRC foram incluídos no estudo. Todos os níveis gênicos foram avaliados por RT-qPCR. Em células de CRC, os níveis de miR-1298 e da proteína morfogenética óssea 7 (BMP7) foram regulados por meio de transfeção celular. O alvo do miR-1298 foi previsto por análise bioinformática e identificado pelo sistema de repórter de dupla luciferase. A função das células de CRC foi avaliada utilizando o ensaio CCK-8, o ensaio Transwell e a citometria de fluxo. A correlação entre miR-1298 e BMP7 em tecidos de CRC foi analisada utilizando a correlação de Pearson. O miR-1298 estava significativamente subexpresso no CRC e associado a características clinicopatológicas malignas. Em células de CRC, o miR-1298 suprimiu a proliferação, migração e invasão, e aumentou a apoptose. A BMP7 foi um alvo a jusante do miR-1298 e apresentou correlação negativa com o miR-1298. A superexpressão de BMP7 reverteu parcialmente o efeito supressor do miR-1298 sobre a proliferação, migração e invasão em células de CRC, bem como seu efeito promotor da apoptose. O miR-1298 está relacionado à invasão e migração e pode suprimir a progressão do CRC. A BMP7 pode ser um mediador funcional potencial do miR-1298 no CRC.
Introdução
O CCR impõe um impacto significativo à saúde em nível mundial, figurando como uma das principais causas de morte relacionadas ao câncer globalmente1. O CCR origina-se a partir das células epiteliais do cólon-reto, geralmente se desenvolvendo de forma gradual por meio de um processo multietapas conhecido como progressão de adenoma para câncer, um processo que leva vários anos2. As consequências do CCR são amplas e multifacetadas. Além do risco de morte, o CCR também pode ter um impacto significativo no dia a dia dos pacientes. O tratamento normalmente exige cirurgia de grande porte, que pode resultar em complicações como colostomia permanente, disfunção intestinal ou disfunções sexual e urinária3. Além disso, o ônus financeiro da quimioterapia, terapia direcionada e monitoramento de longo prazo representa um esforço significativo tanto para os pacientes quanto para o sistema de saúde. Portanto, investigar os mecanismos moleculares subjacentes ao CCR continua sendo uma prioridade fundamental no campo da saúde pública.
No CCR, a desregulação de microRNAs específicos (miRNAs) é uma característica proeminente da tumorigênese e influencia processos-chave4. A identificação desses miRNAs diferencialmente expressos não apenas aprimora nossa compreensão da patogênese do CCR, mas também oferece possíveis vias para novos biomarcadores diagnósticos e alvos terapêuticos. Entre os muitos miRNAs associados ao câncer, o miR-1298 emergiu como um alvo-chave de pesquisa. Evidências atuais sugerem que o miR-1298 frequentemente atua como supressor tumoral em diversos tipos de câncer. Por exemplo, no câncer de pulmão de células não pequenas (CPCNP), ele inibe o crescimento e a invasão celular ao atuar sobre vias oncogênicas centrais5. De forma semelhante, em tumores cerebrais, sua subexpressão está associada ao desenvolvimento tumoral, enquanto sua restauração inibe a progressão do tumor6. Dado seu papel bem estabelecido como supressor tumoral em outros cânceres, o papel específico do miR-1298 na carcinogênese colorretal—especialmente seus alvos downstream e consequências funcionais no CCR—permanece amplamente inexplorado. Essa lacuna de conhecimento é significativa, considerando o cenário molecular distinto do CCR em comparação com outras neoplasias.
A BMP7 é uma citocina secretada e funcionalmente versátil que pertence à superfamília do fator de crescimento transformador β (TGF-β)7. No CCR, a BMP7 desempenha principalmente um papel promotor de tumor. A BMP7 é comumente regulada para cima em tecidos e células de CCR8. A BMP7 aumenta a invasão, migração e propriedades semelhantes às de células-tronco das células cancerígenas, provavelmente ao ativar cascatas de sinalização pró-invasivas e modular o microambiente tumoral para promover a migração9. Em vários tipos de câncer, identificaram-se miRNAs específicos como repressores pós-transcricionais diretos da BMP7. Por exemplo, o miR-137 tem como alvo a BMP7 no CCRP para inibir o crescimento celular10. À luz dessas descobertas, formulamos a hipótese de que a BMP7 possa estar envolvida no CCR. No entanto, ainda não foi validado experimentalmente se o miR-1298 tem como alvo direto a BMP7 no CCR. Além disso, nenhum estudo caracterizou de forma abrangente o eixo miR-1298/BMP7 no CCR por meio da integração de validação mecanicista, fenotipagem funcional e correlação clínica.
Portanto, nosso objetivo foi: (1) investigar o padrão regulatório do miR-1298 no CCR e sua associação com características clinicopatológicas; (2) caracterizar funcionalmente os efeitos do miR-1298 sobre proliferação, apoptose, invasão e migração no CCR; (3) validar experimentalmente o BMP7 como alvo do miR-1298 no CCR; e (4) avaliar o valor diagnóstico e prognóstico do miR-1298 em pacientes com CCR. Ao integrar essas abordagens complementares, buscamos proporcionar uma compreensão abrangente do eixo miR-1298/BMP7 no CCR e descobrir biomarcadores emergentes e alvos terapêuticos para esta doença.
Protocolo
Este estudo foi aprovado pelo Comitê de Ética do Hospital Cerebral de Wuhan (número de aprovação: 20220826). Todos os participantes forneceram consentimento informado por escrito antes da inscrição. Este estudo foi conduzido de acordo com a Declaração de Helsinque. O consentimento para publicação foi obtido de todos os participantes cujos dados foram incluídos. Os detalhes dos reagentes, kits, anticorpos, linhagens celulares, plasmídeos e equipamentos utilizados neste estudo, incluindo seus fabricantes e informações de catálogo, estão fornecidos na Tabela de Materiais.
Pacientes e espécimes
De maio de 2022 a agosto de 2024, coletamos amostras pareadas de tecidos tumorais e não tumorais adjacentes de 85 pacientes com CCR. Nenhum dos participantes tinha histórico de câncer, quimioterapia ou radioterapia. Além disso, 71 indivíduos saudáveis que realizavam exame físico foram incluídos neste estudo.
Prognóstico
Os valores críticos para os grupos de expressão alta/baixa de miR-1298 foram determinados com base no nível mediano de expressão em amostras de tecido de CCR. O período de acompanhamento foi de 12 meses, com acompanhamento realizado por telefone ou reavaliação. O evento final foi o óbito. Dentre os 85 pacientes, 14 óbitos foram registrados durante o período de acompanhamento, e não houve pacientes censurados.
Cultura celular e transfeção de células
Foram obtidas a linhagem celular normal de cólon humano FHC, bem como as linhagens celulares de CCR humano SW480 e HCT-116. As células foram cultivadas em meio Dulbecco modificado de Eagle (DMEM) suplementado com 10% de soro bovino fetal (SBF). O miR-1298 mimético ou inibidor foi transfetado nas células SW480 e HCT-116 utilizando Lipofectamine 3000. Em seguida, o miR-1298 mimético e o pcDNA3.1-BMP7 (OE-BMP7) ou o vetor pcDNA3.1 (OE-NC) foram cotransfetados nas células SW480 e HCT-116. Os passos específicos foram os seguintes: as células foram cultivadas a 37 °C com 5% de CO₂ até atingirem 70%–80% de confluência. As células foram semeadas a 5 x 10⁴ células por poço em uma placa de 24 poços e incubadas durante a noite. Uma mistura de transfeção contendo 250 µL de Opti-MEM, 1,25 µL de Lipofectamine 3000, 1,5 µL de P3000, 50 nM de miRNA e 1 µg de plasmídeo foi preparada e incubada por 15 minutos antes de ser adicionada às células. O meio foi substituído por DMEM completo após 6 h, e as amostras foram coletadas após 48 h.
Análise de bioinformática
O alvo do miR-1298 foi previsto utilizando o banco de dados TargetScan 8.0 (https://www.targetscan.org/vert_80/). Em seguida, foi identificado o sítio de ligação previsto entre o miR-1298 e o BMP7.
Ensaio repórter de dupla luciferase
O tipo selvagem e o mutante 3′-As sequências UTR do BMP7 contendo o sítio de ligação previsto para o miR-1298 foram clonadas no vetor repórter dual-luciferase pmirGLO para gerar os plasmídeos repórter BMP7 Wt e BMP7 Mut, respectivamente. Para o ensaio de luciferase, as células SW480 e HCT-116 foram co-transfectadas com o plasmídeo BMP7 Wt ou BMP7 Mut juntamente com o miR-1298 mimic, inibidor ou seus respectivos controles negativos. Os passos específicos foram os seguintes: as células foram semeadas em placas de 24 poços a 4 x 10⁴ células por poço. Cada poço foi co-transfectado com 0.8 µg de plasmídeo repórter, 50 nM de mimetizador, inibidor ou controle negativo correspondente de miR-1298 e Lipofectamine 3000. Após 8 h, o meio de cultura foi aspirado e as células foram lisadas pela adição de 100 µL de tampão de lise passiva (PLB) por 15 min. 20 µL uma alíquota do lisado foi transferida para uma placa de ensaio branca, 50 µL de LAR II foi adicionado, e a atividade da luciferase de vagalume foi medida. Um adicional 50 µL Parar&O reagente #38;Glo foi adicionado para medir Renilla. Finalmente, a normalização dos dados foi concluída.
RT-qPCR
O RNA foi extraído de células cultivadas, soro e tecidos congelados de CCR utilizando o reagente TRIzol. Resumidamente, as células foram lisadas diretamente em 1 mL de TRIzol por placa de 10 cm; fragmentos de tecido foram homogeneizados em TRIzol sob gelo. Após a separação da fase com clorofórmio e precipitação com isopropanol, os pellets de RNA foram lavados com etanol a 75%, secos ao ar e dissolvidos em água livre de RNase. A pureza e a concentração do RNA foram determinadas utilizando um espectrofotômetro de microvolume (A260/A280 = 1,8–2,1, A260/A230 > 2,0). Para análise de mRNA, o DNA genômico residual foi removido com o gDNA Eraser, e 500 ng de RNA foram submetidos à transcrição reversa utilizando o Kit de Reagentes PrimeScript RT com oligo(dT) e hexâmeros aleatórios (37 °C por 15 min e 85 °C por 5 s). Para análise de miRNA, 100 ng de RNA foram submetidos à transcrição reversa com um iniciador em alça específica para miR-1298-5p ou U6 utilizando o Kit de Síntese da Primeira Fita Mir-X miRNA (16 °C por 30 min, 42 °C por 30 min e 85 °C por 5 s). Controles sem RT e sem molde foram incluídos em cada ensaio. O cDNA foi diluído adequadamente e armazenado a −80 °C até a realização da qPCR. Os níveis de miR-1298 e BMP7 foram quantificados utilizando a química SYBR Green. U6 e GAPDH foram utilizados como controles endógenos para normalização de miRNA e mRNA, respectivamente. A expressão relativa foi calculada utilizando o método comparativo 2−ΔΔCt. As sequências dos iniciadores (5′–3′) foram as seguintes: miR-1298-sentido: TCGGCAGGTTCATTCGGCTGTC, antissentido: CTCAACTGGTGTCGTGGA; U6-sentido: CTCGCTTCGGCAGCACA, antissentido: AACGCTTCACGAATTTGCGT; BMP7-sentido: CAAGAACCAGGAAGCCCTGC, antissentido: TTCTTACAGGCCTGCCTCTGG; e GAPDH-sentido: GACATGCCGCCTGGAGAAAC, antissentido: AGCCCAGGATGCCCTTTAGT. As condições da reação de qPCR foram as seguintes: 95 °C por 2 min, 35 ciclos de 95 °C por 30 s, 60 °C por 30 s e 72 °C por 60 s. Os templates de cDNA foram diluídos em série (5 vezes) para gerar curvas-padrão. A eficiência de amplificação E foi calculada utilizando a fórmula E = (10-1/inclinação-1) x 100%. A eficiência de amplificação dos iniciadores foi calculada da seguinte forma: EmiR-1298 = 102,1%, EBMP7 = 96,3%, EGAPDH = 100,3%, EU6 = 99,8%. Todos os iniciadores atenderam à faixa aceitável de eficiência de 90–110%. Todos os experimentos de RT-qPCR incluíram três réplicas biológicas independentes, cada uma com 3 réplicas técnicas. A estabilidade de U6 e GAPDH foi avaliada utilizando o algoritmo geNorm. Os valores M de ambos os genes estavam abaixo do limite recomendado de 1,5, confirmando sua adequação.
Ensaio com o kit de contagem de células-8 (CCK-8)
Células SW480 e HCT-116 foram semeadas em placas de 96 poços a 2 x 10³ células/poço em 100 µL de DMEM completo e incubadas por 24 h. Após 48 h da transfeção, as placas foram incubadas por 1 h a 37 °C. A absorbância em 450 nm foi medida utilizando um leitor de microplacas. Seis poços replicados foram utilizados por grupo, e um branco contendo meio mais CCK-8 sem células foi subtraído.
Citometria de fluxo
A apoptose foi avaliada por citometria de fluxo utilizando um Kit de Detecção de Apoptose Annexina V-FITC/PI. Após 48 h da transfeção, as células SW480 e HCT-116 foram coletadas por tripsinização, lavadas duas vezes com PBS frio e ressuspendidas em tampão de ligação 1x na concentração de 1 x 10⁶ células/mL. Alíquotas de 1 x 10⁵ células foram transferidas para tubos FACS, coradas com 5 µL de Annexina V-FITC e 5 µL de PI durante 15 min à temperatura ambiente no escuro, e diluídas com 400 µL de tampão de ligação antes da aquisição. Foram incluídos controles negativos sem coloração, monocorados e tratados com estauroporina como controle positivo, para compensação e definição de portas. Os dados foram analisados utilizando o software FlowJo (FlowJo 10.2).
Migração e invasão celular
A migração e invasão celulares foram avaliadas utilizando câmaras Transwell de 24 poços com membranas PET de 8 µm de diâmetro dos poros. Para os ensaios de invasão, a membrana superior foi previamente recoberta com 50 µL de Matrigel a 37 °C por 2 h e reidratada com DMEM sem soro por 30 min antes da semeadura; os ensaios de migração omitiram esta etapa de revestimento. Células SW480 e HCT-116 transfectadas foram mantidas em jejum em DMEM sem soro por 12 h, após o que 2 x 10⁴ células em 100 µL de DMEM sem soro contendo 0,1% de BSA foram semeadas na câmara superior. A câmara inferior foi preenchida com 600 µL de DMEM contendo 10% de FBS como quimioatraente. Após 24 h (migração) ou 48 h (invasão) a 37 °C, as células não migradas na superfície superior foram removidas com um cotonete. As células na superfície inferior foram fixadas com paraformaldeído a 4% por 15 min, coradas com violeta cristal a 0,1% por 20 min, enxaguadas e secas ao ar. Cinco campos aleatórios por membrana foram registrados em aumento de 200x utilizando um microscópio invertido e contados manualmente por dois observadores independentes.
Western blot
Proteínas celulares totais foram extraídas homogeneizando as células em tampão de lise RIPA suplementado com um coquetel de inibidores de protease. As concentrações de proteína foram determinadas utilizando um Kit de Ensaios de Proteína BCA. Quantidades equivalentes de lisados proteicos (50 µg) foram separadas por eletroforese em gel de SDS-PAGE a 10% e posteriormente transferidas para membranas de PVDF. Após o bloqueio dos sítios de ligação não específicos com BSA a 2%, as membranas foram incubadas com anticorpos primários contra BMP7 (1:1.000) e GAPDH (1:2.000) por 90 min a 37 °C. Após três lavagens com PBST, as membranas foram incubadas com um anticorpo secundário conjugado à peroxidase do rabo-de-cavalo (HRP). As bandas proteicas foram visualizadas utilizando um reagente quimioluminescente ECL.
Análise estatística
Os dados foram analisados utilizando o SPSS 27.0. Todos os valores foram expressos como média ± desvio padrão (DP), exceto quando indicado. O teste de Shapiro-Wilk foi aplicado para verificar a distribuição normal. As diferenças entre grupos foram determinadas utilizando o teste t de Student não pareado bicaudal. A comparação da expressão de miR-1298 entre tecidos tumorais de CCR e tecidos não cancerosos adjacentes foi realizada utilizando o teste t de Student pareado. Antes da realização do teste paramétrico, o teste de Levene foi utilizado para avaliar a homogeneidade das variâncias. Para comparações entre múltiplos grupos, os dados paramétricos foram analisados por meio de ANOVA unifatorial, com o teste de Tukey HSD utilizado para comparações pareadas pós-hoc. A correlação entre miR-1298 e BMP7 em tecidos de CCR foi avaliada utilizando a análise de correlação de Pearson. Valores de p < 0,05 foram considerados estatisticamente significativos.
Resultados
miR-1298 foi substancialmente reduzido no CCR
Em tecidos de CCR, os níveis de miR-1298 foram mais baixos do que em tecidos não cancerosos adjacentes (Figura 1A). A análise da metástase em linfonodo revelou que os níveis de miR-1298 foram menores em pacientes com metástase linfonodal do que naqueles sem metástase linfonodal (Figura 1B). Em pacientes com CCR cujo tamanho do tumor era > 5 cm, miR-1298 foi significativamente menor do que em pacientes cujo tamanho do tumor era ≤ 5 cm (p = 0,017; Figura 1C). miR-1298 diminuiu com o avanço do estágio tumoral, com diferenças significativas entre o estágio 1 e o estágio 3 (p = 0,047) e entre o estágio 1 e o estágio 4 (p = 0,009; Figura 1D). No soro de pacientes com CCR, miR-1298 foi substancialmente reduzido (Figura 1E), e a análise da curva ROC mostrou uma AUC de 0,889, com sensibilidade de 78,82% e especificidade de 83,10% (Figura 1F).
Com base no nível mediano de expressão de miR-1298, os pacientes com CCR foram divididos em grupos de baixa e alta expressão. Em pacientes com CCR, miR-1298 apresentou forte associação com o estágio TNM (p < 0,001), tamanho do tumor (p = 0,003), metástases linfonodais (p = 0,003) e diferenciação tumoral (p = 0,035). No entanto, miR-1298 não foi associado à idade (p = 0,832) nem ao sexo (p = 0,165) (Tabela 1). A análise de Kaplan-Meier mostrou que pacientes com CCR e baixa expressão de miR-1298 tiveram menor sobrevida global do que aqueles com alta expressão de miR-1298 (log-rank p = 0,039; Figura 1G). A análise de regressão de Cox indicou que a redução da expressão de miR-1298 pode ser um indicador prognóstico potencial em pacientes com CCR (p = 0,035, Tabela 2).
miR-1298 suprimiu a proliferação e promoveu a apoptose em células de CCR
Em células SW480, a transfeção com o análogo ou inibidor de miR-1298 alterou efetivamente a expressão de miR-1298, com diferença significativa entre os grupos inibidor NC e inibidor de miR-1298 (p = 0,005; Figura 2A). A superexpressão de miR-1298 reduziu a viabilidade celular e promoveu a apoptose, enquanto a supressão de miR-1298 aumentou a viabilidade celular e diminuiu a apoptose; a apoptose diferiu significativamente entre os grupos inibidor NC e inibidor de miR-1298 (p = 0,008; Figura 2B,C). Em células HCT-116, a transfeção também alterou a expressão de miR-1298 (p = 0,002; Figura 2D), e diferenças significativas entre os grupos inibidor NC e inibidor de miR-1298 foram observadas quanto à viabilidade celular (p = 0,007; Figura 2E) e apoptose (p = 0,005; Figura 2F).
miR-1298 suprimiu a migração e invasão de células de CCR
A superexpressão de miR-1298 reduziu o número de células SW480 e HCT-116 migradas e invasivas, enquanto a inibição de miR-1298 aumentou a migração e invasão celular (Figura 3A–D). Nas células SW480, o número de células invasivas foi substancialmente menor no grupo com mimetizador de miR-1298 do que no grupo com controle negativo (NC) (p = 0,004; Figura 3B).
O BMP7 foi um alvo do miR-1298 no CCR
O TargetScan indicou que o BMP7 poderia ser um alvo do miR-1298 (Figura 4A). Ensaios de repórter de dupla luciferase em células SW480 e HCT-116 mostraram que a superexpressão ou inibição do miR-1298 alterou a atividade da luciferase do repórter BMP7 Wt, mas não do repórter BMP7 Mut (Figura 4B,C). Em células HCT-116, a atividade da luciferase do repórter BMP7 Wt foi significativamente menor no grupo com mimetizador de miR-1298 do que no grupo com NC mimetizador (p = 0,002; Figura 4C). Em tecidos de CCR, o BMP7 estava substancialmente elevado (Figura 4D). Além disso, BMP7 e miR-1298 exibiram uma correlação negativa (Figura 4E). Em células SW480 e HCT-116, a superexpressão do miR-1298 inibiu o BMP7 tanto nos níveis de RNA quanto de proteína, enquanto a inibição do miR-1298 aumentou a expressão do BMP7 (Figura 4F,G).
miR-1298 pode exercer um efeito supressor de tumor no CCR por meio da regulação de BMP7
Em células SW480, a modulação bem-sucedida da expressão de BMP7 foi confirmada (Figura 5A). A superexpressão de BMP7 reverteu parcialmente a diminuição da viabilidade celular e o aumento da apoptose induzidos pela superexpressão de miR-1298, enquanto o silenciamento de BMP7 reduziu ainda mais a viabilidade celular e aumentou a apoptose (Figura 5B,C). Em células HCT-116, a modulação bem-sucedida da expressão de BMP7 também foi confirmada (Figura 5D), com efeitos correspondentes sobre viabilidade celular e apoptose (Figura 5E,F). Em células SW480, a expressão de BMP7 e a viabilidade celular foram significativamente menores no grupo miR-1298 mimético + si-BMP7 do que no grupo miR-1298 mimético + si-NC (p = 0,002 e p = 0,005, respectivamente; Figura 5A,B). A apoptose foi significativamente diferente entre os grupos miR-1298 mimético + OE-BMP7 e miR-1298 mimético + OE-NC (p = 0,001; Figura 5C). Em células HCT-116, a viabilidade celular foi significativamente menor no grupo miR-1298 mimético + si-BMP7 do que no grupo miR-1298 mimético + si-NC (p = 0,002; Figura 5E). A superexpressão de BMP7 reverteu parcialmente os efeitos supressores de miR-1298 sobre migração e invasão de células de CCR, enquanto o silenciamento de BMP7 potencializou esses efeitos inibitórios (Figura 6A–D). Em células SW480, o silenciamento de BMP7 diminuiu significativamente o número de células migradas e invasivas em comparação com o grupo si-NC (p = 0,003 e p = 0,020, respectivamente; Figura 6A,B). Em células HCT-116, a superexpressão de BMP7 alterou significativamente o número de células migradas em comparação com o grupo OE-NC (p = 0,030; Figura 6C), enquanto o silenciamento de BMP7 diminuiu significativamente o número de células invasivas em comparação com o grupo si-NC (p = 0,007; Figura 6D).
DISPONIBILIDADE DE DADOS:
Os dados que apoiam as descobertas deste estudo são fornecidos como um Arquivo Suplementar.
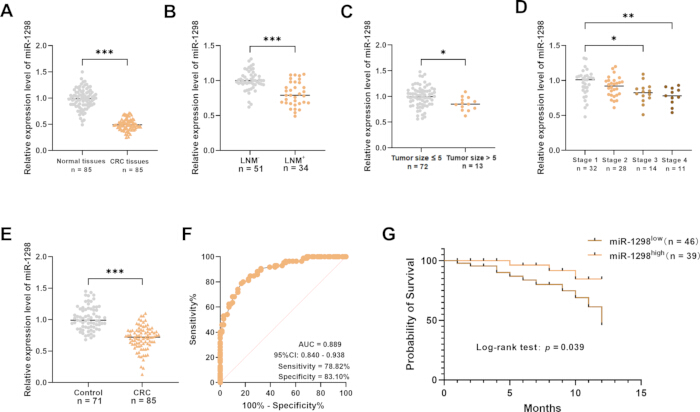
Figura 1: Expressão de miR-1298 em tecidos de CRC. (A) Expressão relativa de miR-1298 em tecidos de CRC e tecidos não cancerosos adjacentes. (B) Expressão relativa de miR-1298 em tecidos de CRC de pacientes com (LNM+) e sem (LNM−) metástase em linfonodos. (C) Expressão relativa de miR-1298 em tecidos de CRC de acordo com o tamanho do tumor. (D) Expressão relativa de miR-1298 em tecidos de CRC de acordo com o estágio tumoral. (E) Expressão relativa de miR-1298 sérica em pacientes com CRC e controles saudáveis. (F) Curva característica de operação do receptor (ROC) para miR-1298 sérica na distinção entre pacientes com CRC e controles saudáveis. (G) Curvas de sobrevida global de Kaplan–Meier para pacientes com CRC de acordo com baixa e alta expressão de miR-1298. *p < 0,05; **p < 0,01; ***p < 0,001. Clique aqui para visualizar uma versão ampliada desta figura.
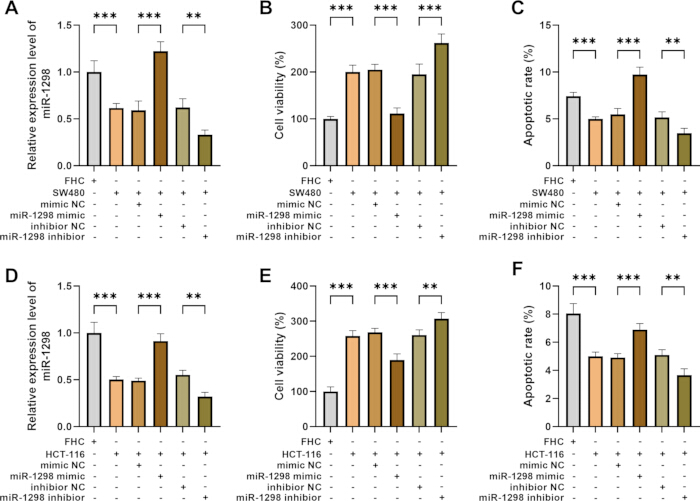
Figura 2: Efeitos do miR-1298 na proliferação e apoptose de células de CCR. (A) Expressão relativa do miR-1298 em células FHC e SW480 após transfeção com o análogo do miR-1298, análogo NC, inibidor do miR-1298 ou inibidor NC. (B) Viabilidade celular de células SW480 após superexpressão ou inibição do miR-1298. (C) Apoptose de células SW480 após superexpressão ou inibição do miR-1298. (D) Expressão relativa do miR-1298 em células FHC e HCT-116 após transfeção com o análogo do miR-1298, análogo NC, inibidor do miR-1298 ou inibidor NC. (E) Viabilidade celular de células HCT-116 após superexpressão ou inibição do miR-1298. (F) Apoptose de células HCT-116 após superexpressão ou inibição do miR-1298. Os dados são apresentados como média ± DP. As barras de erro representam o DP. **p < 0,01; ***p < 0,001. Clique aqui para visualizar uma versão ampliada desta figura.
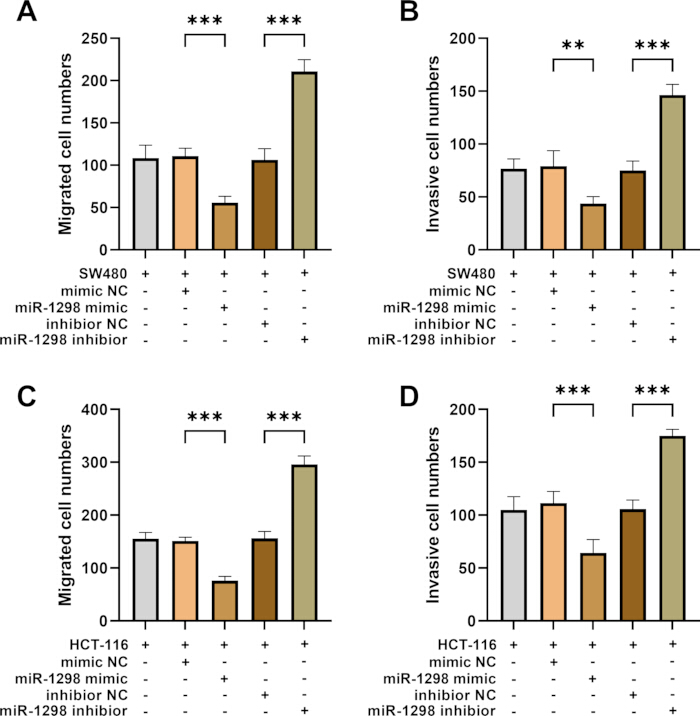
Figura 3: Efeitos do miR-1298 na migração e invasão de células de CRC. (A) Números de células migradas em células SW480 após transfeção com o análogo do miR-1298, análogo NC, inibidor do miR-1298 ou inibidor NC. (B) Números de células invasivas em células SW480 após transfeção com o análogo do miR-1298, análogo NC, inibidor do miR-1298 ou inibidor NC. (C) Números de células migradas em células HCT-116 após transfeção com o análogo do miR-1298, análogo NC, inibidor do miR-1298 ou inibidor NC. (D) Números de células invasivas em células HCT-116 após transfeção com o análogo do miR-1298, análogo NC, inibidor do miR-1298 ou inibidor NC. Os dados são apresentados como média ± DP. As barras de erro representam o DP. **p < 0,01; ***p < 0,001. Clique aqui para visualizar uma versão maior desta figura.
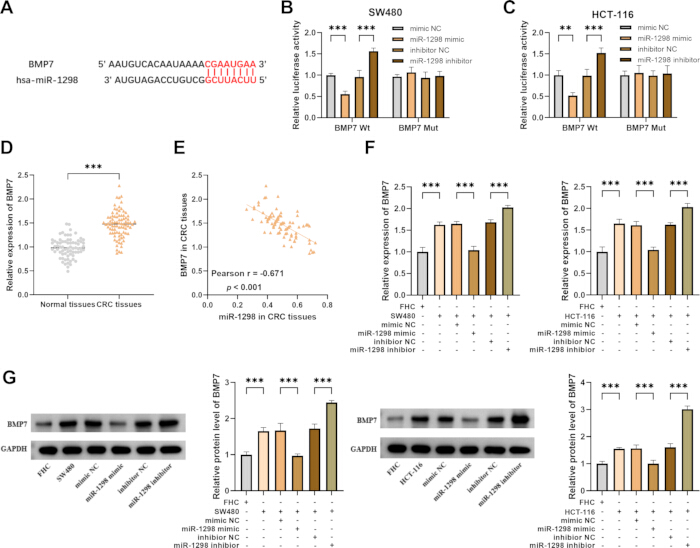
Figura 4: Relação de direcionamento entre miR-1298 e BMP7. (A) Local de ligação previsto entre miR-1298 e a região 3′ UTR de BMP7. (B) Atividade relativa de luciferase dos repórteres BMP7 Wt e BMP7 Mut após superexpressão ou inibição de miR-1298 em células SW480. (C) Atividade relativa de luciferase dos repórteres BMP7 Wt e BMP7 Mut após superexpressão ou inibição de miR-1298 em células HCT-116. (D) Expressão relativa de BMP7 em tecidos de CCR e tecidos não cancerosos adjacentes. (E) Correlação entre a expressão de miR-1298 e BMP7 em tecidos de CCR. (F) Expressão relativa de BMP7 em células SW480 e HCT-116 após transfeção com miR-1298 mimic, mimic NC, inibidor de miR-1298 ou inibidor NC. (G) Níveis proteicos relativos de BMP7 em células SW480 e HCT-116 após transfeção com miR-1298 mimic, mimic NC, inibidor de miR-1298 ou inibidor NC. **p < 0,01; ***p < 0,001. Clique aqui para visualizar uma versão ampliada desta figura.
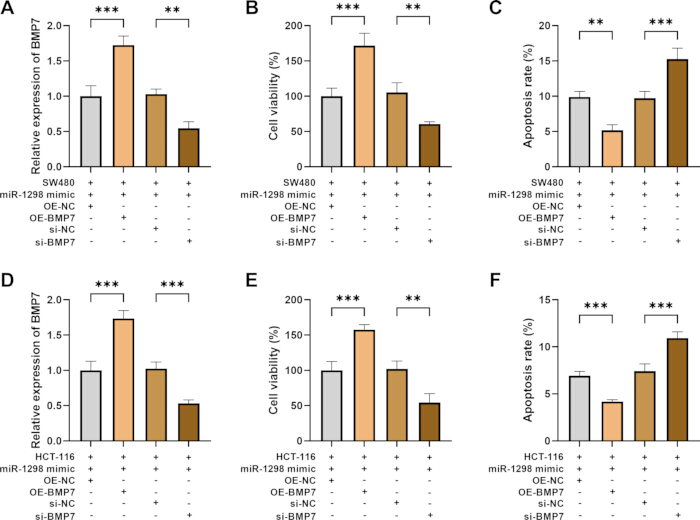
Figura 5: Co-regulação de miR-1298 e BMP7 na proliferação e apoptose em células de CCR. Células SW480 e HCT-116 foram co-transfectadas com o mimetizador de miR-1298 e OE-NC, OE-BMP7, si-NC ou si-BMP7. (A) Expressão relativa de BMP7 em células SW480. (B) Viabilidade celular em células SW480. (C) Apoptose em células SW480. (D) Expressão relativa de BMP7 em células HCT-116. (E) Viabilidade celular em células HCT-116. (F) Apoptose em células HCT-116. Os dados são apresentados como média ± DP. As barras de erro representam o DP. **p < 0,01; ***p < 0,001. Abreviaturas: OE-NC = controle negativo de superexpressão; OE-BMP7 = superexpressão de BMP7; si-NC = controle negativo de RNA interferente pequeno; si-BMP7 = RNA interferente pequeno direcionado ao BMP7. Clique aqui para visualizar uma versão maior desta figura.
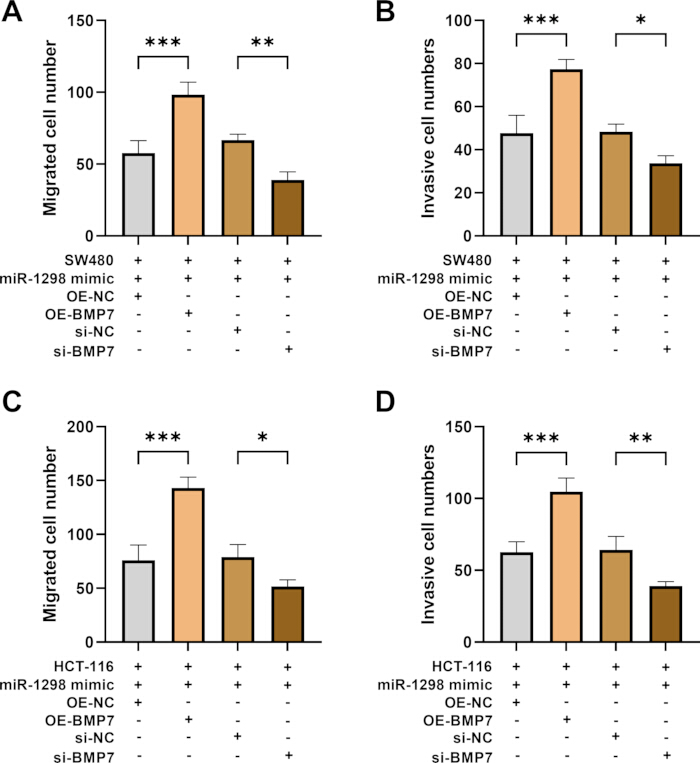
Figura 6: Co-regulação de miR-1298 e BMP7 na migração e invasão de células de CRC. Células SW480 e HCT-116 foram co-transfectadas com o análogo de miR-1298 e OE-NC, OE-BMP7, si-NC ou si-BMP7. (A) Número de células migradas nas células SW480. (B) Número de células invasoras nas células SW480. (C) Número de células migradas nas células HCT-116. (D) Número de células invasoras nas células HCT-116. Os dados são apresentados como média ± DP. As barras de erro representam o DP. *p < 0,05; **p < 0,01; ***p < 0,001. Abreviaturas: OE-NC = controle negativo de superexpressão; OE-BMP7 = superexpressão de BMP7; si-NC = controle negativo de RNA interferente pequeno; si-BMP7 = RNA interferente pequeno direcionado ao BMP7. Clique aqui para visualizar uma versão maior desta figura.
| Variável | Total | miR-1298 | p valor | |
| (n = 85) | Baixo (n = 46) | Alto (n = 39) | ||
| Idade (anos) | ||||
| ≤50 | 49 | 27 | 22 | 0,832 |
| >50 | 36 | 19 | 17 | |
| Sexo (masculino/feminino) | ||||
| Masculino | 44 | 27 | 17 | 0,165 |
| Feminino | 41 | 19 | 22 | |
| Estádio TNM | ||||
| 1–2 | 60 | 41 | 19 | <0,001*** |
| 3–4 | 25 | 5 | 20 | |
| Tamanho do tumor (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0,003** |
| >5 | 13 | 12 | 1 | |
| Metástase linfonodal | ||||
| Sim | 34 | 25 | 9 | 0,003** |
| Não | 51 | 21 | 30 | |
| Diferenciação tumoral | ||||
| Baixo grau | 53 | 24 | 29 | 0,035* |
| Alto grau | 32 | 22 | 10 | |
Tabela 1: Associação entre características clinicopatológicas e níveis de expressão de miR-1298 em pacientes com CCR. Os pacientes foram classificados em grupos de baixa (n = 46) e alta (n = 39) expressão de miR-1298, e as associações entre a expressão de miR-1298 e as características clinicopatológicas foram avaliadas. *p < 0,05; **p < 0,01; ***p < 0,001. Abreviações: CCR = câncer colorretal; TNM = tumor, linfonodo, metástase.
| Variável | Razão de risco | IC 95% | Valor p | |
| Inferior | Superior | |||
| Idade | 0.776 | 0.186 | 3.242 | 0.728 |
| Sexo | 0.614 | 0.152 | 2.474 | 0.492 |
| Estágio TNM | 4.62 | 1.181 | 18.078 | 0.028* |
| Tamanho do tumor | 8.078 | 1.833 | 35.587 | 0.006** |
| Metástase em linfonodo | 6.584 | 1.134 | 38.245 | 0.036* |
| Diferenciação do tumor | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Tabela 2: Análise de regressão de Cox dos fatores prognósticos em pacientes com CCR. A análise de regressão de Cox foi realizada para avaliar a associação entre características clínico-patológicas e a expressão de miR-1298 com o prognóstico em pacientes com CCR. *p < 0,05; **p< 0,01. Abreviações: CI = intervalo de confiança; CCR = câncer colorretal; TNM = tumor, linfonodo, metástase.
Arquivo suplementar. Clique aqui para baixar este arquivo.
Discussão
O CCR impõe um ônus significativo para os indivíduos e para a sociedade devido à sua alta incidência e altas taxas de mortalidade. Apesar de programas de triagem, como a colonoscopia, um grande número de pacientes com CCR ainda é diagnosticado em estágio avançado, destacando a necessidade urgente de biomarcadores mais eficazes e não invasivos para detecção precoce11. Além disso, o prognóstico do CCR metastático permanece ruim, com resistência a medicamentos e recorrência da doença sendo relativamente comuns12. Portanto, é essencial compreender profundamente os mecanismos moleculares subjacentes ao início, progressão e metástase do CCR para o desenvolvimento de novas terapias direcionadas e superar a resistência ao tratamento. O CCR é altamente heterogêneo, o que significa que tumores que parecem semelhantes podem apresentar diferenças significativas em seu comportamento13. Assim sendo, a pesquisa contínua é importante para melhorar a detecção precoce, avançar o tratamento personalizado e, em última instância, melhorar a sobrevida em pacientes com CCR.
Anormalidades em miARN estão implicadas no desenvolvimento, estadiamento e prognóstico do CCR14. Devido à sua estabilidade em fluidos corporais, os miARNs também possuem grande potencial como biomarcadores diagnósticos e prognósticos não invasivos15. Neste estudo, o miR-1298 foi subregulado em tecidos de CCR, e sua expressão esteve associada ao estadiamento TNM e à metástase em linfonodo, sugerindo um papel potencial na progressão do CCR. Notavelmente, o nosso estudo é o primeiro a caracterizar de forma abrangente a expressão do miR-1298 em uma coorte clínica de CCR e a demonstrar sua associação com parâmetros clinicopatológicos importantes, incluindo estadiamento TNM, metástase em linfonodo e diferenciação tumoral.
A desregulação de processos celulares fundamentais — incluindo proliferação, apoptose, migração e invasão — é um fator determinante no desenvolvimento e mortalidade do câncer16. A proliferação descontrolada permite que as células tumorais realizem uma expansão clonal inicial. Ao mesmo tempo, a evasão da apoptose permite que essas células sobrevivam e se acumulem diante de danos internos ou estressores externos. Essa combinação leva ao crescimento do tumor primário17,18. Portanto, terapias direcionadas que ataquem os fatores moleculares responsáveis por essas características são fundamentais para o desenvolvimento de tratamentos eficazes para o CCR. Os miRNAs contribuem para o desenvolvimento tumoral ao regular o fenótipo maligno das células cancerosas19. O miR-1298 é um desses miRNAs. Por exemplo, a subexpressão do miR-1298-5p promove a progressão do câncer gástrico20. O miR-1298 superexpresso suprime a proliferação de células de câncer de mama, induz apoptose e provoca a parada do ciclo celular21. Além disso, o miR-1298-5p também atua como supressor tumoral no câncer de bexiga22. Os resultados deste estudo indicaram que a superexpressão do miR-1298 suprimiu a proliferação, migração e invasão e aumentou a apoptose, sugerindo que ele pode inibir o fenótipo maligno do CCR. De forma importante, nosso estudo ampliou as descobertas anteriores ao avaliar sistematicamente os principais fenótipos malignos em células de CCR, fornecendo uma caracterização funcional mais completa do miR-1298 nesse tipo específico de câncer.
Em termos de seus efeitos promotores de tumor, a BMP7 pode promover a proliferação de células cancerígenas ao regular vias de sinalização como a PI3K/AKT23. Ao modular o nível de fatores antiapoptóticos como a Bcl-2, a BMP7 confere resistência à apoptose em células cancerígenas24. Além disso, a BMP7 aumenta principalmente a migração e invasão de células cancerígenas ao induzir a transição epitélio-mesenquimal (EMT)25. O envolvimento da BMP7 na promoção do câncer é consistente com nossa descoberta de que a BMP7 estava elevada no tecido de CCR. A análise bioinformática sugeriu que a BMP7 pode ser um alvo do miR-1298 e identificou um sítio de ligação previsto entre o miR-1298 e a BMP7. Além disso, experimentos de resgate indicaram que a BMP7 provavelmente atuou como mediadora funcional do miR-1298 no CCR. Considerando as vias de sinalização associadas à BMP7 no câncer, formulamos a hipótese adicional de que o eixo miR-1298/BMP7 regula as vias de sinalização downstream (SMAD, PI3K/AKT, EMT) que controlam o comportamento das células de CCR. Crucialmente, validamos experimentalmente essa previsão por meio de ensaios de repórter luciferase, confirmando a ligação direta do miR-1298 à região 3′ UTR da BMP7. Além disso, experimentos de resgate demonstraram que a restauração da BMP7 reverteu parcialmente os efeitos supressores de tumor da superexpressão do miR-1298, fornecendo evidência funcional de que a BMP7 foi uma mediadora downstream do miR-1298 no CCR. Tanto quanto sabemos, este é o primeiro estudo a estabelecer o eixo regulatório miR-1298/BMP7 no câncer colorretal.
Além de insights mecanicistas, nosso estudo forneceu evidências translacionais que apoiam a utilidade clínica do miR-1298. A análise da curva ROC demonstrou que o miR-1298 pode ter valor diagnóstico no CCR. A análise de sobrevida revelou ainda que a baixa expressão do miR-1298 estava associada a pior prognóstico, e a análise de regressão de Cox indicou que a redução do miR-1298 pode ser um fator prognóstico para o CCR, o que reforça o valor latente do miR-1298 como biomarcador diagnóstico e prognóstico para o CCR.
Este estudo apresenta algumas limitações. Em relação às amostras clínicas, como este estudo utilizou principalmente dados de um único centro, são necessários estudos de validação multicêntricos futuros para confirmar de forma mais robusta o papel supressor de tumor do miR-1298 no CCR. Este estudo concentrou-se em experimentos celulares in vitro, os quais não capturaram completamente a complexidade do microambiente tumoral in vivo. A ausência de modelos de tumor xêngrafo foi uma das limitações deste estudo. Pesquisas futuras devem incluir validação in vivo para elucidar ainda mais o papel do eixo miR-1298/BMP7 no microambiente tumoral. Além disso, experimentos futuros poderiam validar ainda mais as vias a montante e a jusante do eixo miR-1298/BMP7 por meio de previsões de bioinformática e experimentos in vitro e in vivo. O período de acompanhamento foi relativamente curto, o que limitou a maturidade da estimativa de sobrevida de longo prazo. Embora análises de Kaplan–Meier e regressão de Cox tenham sido realizadas, os resultados podem ter sido afetados pelo período de acompanhamento relativamente curto. Um acompanhamento prolongado está atualmente em andamento para verificar o valor prognóstico do miR-1298 no CCR. Além disso, as vias de sinalização a jusante (SMAD, PI3K/AKT, EMT) reguladas pelo eixo miR-1298/BMP7 no controle do comportamento das células de CCR não foram verificadas experimentalmente neste estudo e exigem maior exploração. Este estudo não realizou experimentos de resgate reverso (inibidor de miR-1298 + siRNA de BMP7). Tais experimentos forneceriam evidências complementares sobre se o silenciamento de BMP7 poderia reverter os efeitos promotores de tumor da inibição do miR-1298. A ausência desse tipo de experimento de resgate enfraquece nossas conclusões mecanicistas. São necessários estudos futuros que incorporem esse delineamento experimental de resgate reverso e validação in vivo para estabelecer plenamente a função do eixo miR-1298/BMP7 no CCR.
Em resumo, o miR-1298 pode estar associado à progressão do CCR. Funcionalmente, o miR-1298 pode inibir a proliferação, invasão e migração de células de CCR. A BMP7 pode ser um mediador funcional potencial do miR-1298 no CCR.
Divulgações
Os autores não têm interesses financeiros ou não financeiros relevantes a declarar.
Agradecimentos
Os autores declaram que nenhuma verba, bolsa ou outro apoio foi recebido durante a elaboração deste manuscrito.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Solução de violeta cristal a 0,1% | Sigma-Aldrich | C0775 | |
| Kit de SDS-PAGE a 10% | Epizyme | PG112 | |
| Paraformaldeído a 4% | Sigma-Aldrich | P6148 | |
| Placa de cultura celular de 6 poços | Corning | 3516 | |
| Placa de cultura celular de 96 poços | Corning | 3599 | |
| Kit de detecção de apoptose por Annexina V-FITC/PI | Vários (por exemplo, Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) ou 556547 (BD) | |
| Anti-BMP7 | Abcam | ab176707 | |
| Anti-GAPDH | Abcam | ab181602 | |
| Kit BCA | Sangon | C503021 | |
| Plasmídeo repórter do mutante BMP7 3‘-UTR | Construído sob encomenda (clonado no pmirGLO) | Personalizado | |
| Primeres BMP7 | Sangon Biotech (Xangai, China) | Síntese personalizada | |
| Plasmídeo repórter do BMP7 selvagem 3‘-UTR | Construído sob encomenda (clonado no pmirGLO) | Personalizado | |
| Kit de contagem celular-8 (CCK-8) | Dojindo (Japão) | CK04 | |
| Frasco de cultura celular (T-25) | Corning | 430639 | |
| DMEM (Meio Essencial Modificado de Eagle de Dulbecco‘s) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| Soro bovino fetal (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| Linhagem celular FHC (epitélio normal do cólon humano) | ATCC | CRL-1831 | |
| Citômetro de fluxo | BD Biosciences | FACSCanto™ II | |
| Software FlowJo V10 | FlowJo, LLC | — | |
| Primeres GAPDH (controle endógeno para mRNA) | Sangon Biotech (Xangai, China) | Síntese personalizada | |
| Linhagem celular HCT-116 (carcinoma colorretal humano) | ATCC | CCL-247 | |
| Anticorpo secundário conjugado com HRP | Beyotime | A0208 | |
| Microscópio invertido | Nikon (ou equivalente) | Eclipse Ts2 | |
| Reagente de transfeção Lipofectamin 3000 | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| Sistema de ensaio de luciferase | Promega | E1500 | |
| Matriz de membrana basal Matrigel | Corning | 354230 | |
| Leitor de microplacas | BioTek (Agilent) | Synergy H1 | |
| Inibidor de miR-1298 | GenePharma (Xangai, China) | Personalizado (sintetizado sob encomenda) | |
| Mimético de miR-1298 | GenePharma (Xangai, China) | Personalizado (sintetizado sob encomenda) | |
| Primeres de miR-1298 | Sangon Biotech (Xangai, China) | Síntese personalizada | |
| Kit Mir-X miRNA First-Strand Synthesis | Takara Bio | 638313 | |
| OE-NC | GenePharma (Xangai, China) | Personalizado (sintetizado sob encomenda) | |
| Opti-MEM | Gibco | 31985070 | |
| Tampão de lise passiva | Promega | E194A | |
| Vetor pcDNA3.1 (controle de vetor vazio) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (plasmídeo de superexpressão OE-BMP7) | GenePharma (Xangai, China) | Personalizado (sintetizado sob encomenda) | |
| Vetor de expressão dual-luciferase pmirGLO para alvo de miRNA | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| Kit PrimeScript RT Reagent (Perfect Real Time) | Takara (Japão) | RR037A | |
| Kit PrimeScript RT Reagent com Eraser de gDNA | Takara Bio | RR047A | |
| Cocktail de inibidores de protease | Thermo | 78429 | |
| PVDF | Absin | abs935 | |
| RIPA | Abcam | ab156034 | |
| Tubos microcetrífugos livres de RNase (1,5 mL) | Axygen (Corning) | MCT-150-C | |
| Pipetas livres de RNase | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (Xangai, China) | Personalizado (sintetizado sob encomenda) | |
| si-NC | GenePharma (Xangai, China) | Personalizado (sintetizado sob encomenda) | |
| Estáurosporina (controle positivo de apoptose) | Sigma-Aldrich | S5921 | |
| Linhagem celular SW480 (adenocarcinoma colorretal humano) | ATCC | CCL-228 | |
| SYBR Green qPCR Master Mix | Takara (Japão) | RR036A | |
| Câmara Transwell (24 poços, tamanho de poro 8,0 µm) | Corning (Costar) | 3422 | |
| Reagente TRIzol | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| Primeres U6 (controle endógeno para miRNA) | Sangon Biotech (Xangai, China) | Síntese personalizada |
Referências
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.