Este estudo analisou os níveis de expressão sérica do miR-3619-5p em pacientes com diabetes tipo 2 e investigou o papel regulador dessa molécula na função das células β pancreáticas. O miR-3619-5p está subexpresso no DM2T e pode estar envolvido na regulação da função das células β pancreáticas por meio do alvo MTA3.
Artigo de investigação
Significância Clínica da Expressão de miR-3619-5p em Pacientes com Diabetes Mellitus Tipo 2 e Sua Regulação da Proliferação de Células β Pancreáticas
Neste artigo
Resumo
Resumo
A característica patológica central do diabetes melito tipo 2 (DM2) é a falha das células β pancreáticas; portanto, a identificação de biomarcadores circulantes eficazes e de alvos moleculares que regulam a homeostase das células β pancreáticas possui grande importância prática. Como moléculas reguladoras-chave da expressão gênica, os miRNAs desempenham um papel importante na proliferação, apoptose e secreção de insulina das células β pancreáticas. O objetivo deste estudo é investigar os padrões de expressão e o valor clínico do miR-3619-5p no soro de pacientes com DM2 e esclarecer seu papel regulador na proliferação das células β pancreáticas. A RT-qPCR foi utilizada para detectar a expressão do miR-3619-5p e da MTA3. Curvas ROC foram utilizadas para avaliar o desempenho diagnóstico. Bioinformática e ensaios de duplo luciferase foram utilizados para validar a relação entre alvo e ligante. A proliferação celular foi medida pelo ensaio CCK-8, enquanto a apoptose foi analisada por citometria de fluxo. Os níveis de secreção de insulina foram medidos utilizando ELISA. Os resultados mostraram que o miR-3619-5p e a MTA3 estavam subexpressos em pacientes com DM2 e em células β pancreáticas. O miR-3619-5p pode ser um biomarcador para o diagnóstico do DM2; sua superexpressão promove a proliferação celular, inibe a apoptose e aumenta a secreção de insulina. O miR-3619-5p tem como alvo e regula a MTA3, e os dois apresentam correlação positiva significativa. O mimetizador do miR-3619-5p pode reverter os danos causados pelo si-MTA3 à função das células β pancreáticas. Em resumo, o miR-3619-5p está subexpresso no DM2 e possui valor diagnóstico. O miR-3619-5p pode participar da regulação da função das células β pancreáticas por meio do alvo MTA3.
Introdução
A desordem metabólica crônica diabetes melito tipo 2 (DM2) manifesta-se principalmente como resistência à insulina acompanhada por uma perda progressiva da função secretora de insulina, e representa mais de 80% de todos os casos de diabetes1. Sua patogênese é complexa, envolvendo uma combinação de fatores genéticos e ambientais, bem como anormalidades na regulação celular e molecular2,3. Dado que as células β pancreáticas são as principais responsáveis pela secreção de insulina, uma diminuição anormal em sua capacidade proliferativa é uma causa fundamental da secreção insuficiente de insulina no DM24. Atualmente, o diagnóstico clínico do DM2 baseia-se principalmente em indicadores tradicionais, como glicemia e hemoglobina glicada (HbA1c); no entanto, sua sensibilidade para triagem precoce e predição da progressão da doença é limitada5. Há uma necessidade urgente de identificar biomarcadores sensíveis e específicos, bem como alvos reguladores-chave, para fornecer novas estratégias para o diagnóstico e tratamento preciso do DM2.
Sob a influência da glucotoxicidade induzida pela hiperglicemia prolongada, a proliferação das células β pancreáticas é restringida e a apoptose aumenta, levando à perda gradual da secreção de insulina dependente de glicose; esse processo é um fator chave que impulsiona a progressão contínua da doença6,7. Os microRNAs (miRNAs) estão implicados em diversos processos fisiológicos nas células8 e exercem um efeito regulador crucial sobre processos fisiológicos, incluindo a proliferação, apoptose e secreção de insulina das células das ilhotas pancreáticas9,10. Múltiplos estudos demonstraram que diversos miRNAs são expressos de forma anormal no DM2 e estão estreitamente implicados na patogênese da doença11,12,13. O miR-3619-5p participa em processos biológicos, incluindo a proliferação celular e a apoptose, e as pesquisas atuais sobre ele têm se concentrado principalmente no campo da oncologia14,15. A expressão anormal do miR-3619-5p tem sido observada em tumores malignos, incluindo carcinoma de células escamosas da pele, câncer de pulmão, câncer colorretal e câncer gástrico, onde regula genes-alvo para influenciar a proliferação, metástase e apoptose das células tumorais16,17,18,19. No entanto, ainda existe uma lacuna evidente na pesquisa quanto às características de expressão clínica, relevância clínica e mecanismos de regulação da função pancreática do miR-3619-5p no DM2.
Como membro importante da família MTA, a MTA3 media interações proteína-proteína e a regulação transcricional de genes, e está amplamente envolvida em processos fisiológicos-chave, incluindo proliferação celular, apoptose e metabolismo20. A pesquisa atual sobre a MTA3 tem se concentrado principalmente na oncologia21,22,23, com poucos estudos investigando seu papel em doenças metabólicas, particularmente no DM2. Alguns estudos descobriram que a MTA3, como um gene associado ao diabetes, participa da regulação da fibrose hepática induzida por hiperglicemia24. Isso sugere que a MTA3 pode estar envolvida na progressão do DM2; no entanto, se ela é regulada pelo miR-3619-5p no contexto do DM2 ainda precisa ser confirmado.
Em resumo, a pesquisa existente sobre o miR-3619-5p tem sido amplamente restrita a modelos tumorais e inflamatórios; seu perfil de expressão clínica no DM2 e seu papel na homeostase das células β pancreáticas e nos distúrbios do metabolismo da glicose permanecem por ser explorados. Portanto, este estudo tem como objetivo verificar a relação alvo entre o miR-3619-5p e o MTA3 mediante a avaliação da expressão e do significado clínico do miR-3619-5p no soro de pacientes com DM2, além de investigar seu papel regulador na proliferação das células β pancreáticas, fornecendo assim uma nova base teórica para a pesquisa sobre a patogênese do DM2 e para o diagnóstico e tratamento clínicos.
Protocolo
Este estudo foi aprovado pelo Comitê de Ética Médica do Hospital Popular de TongzhouBay (Número de Aprovação: 2024122001). Os procedimentos utilizados neste estudo aderem aos princípios da Declaração de Helsinque. O consentimento informado foi obtido de todos os participantes individuais incluídos no estudo. O consentimento para publicação foi obtido para os dados de cada pessoa incluída no estudo.
Participantes do estudo
Este estudo selecionou retrospectivamente 102 pacientes com DM2 diagnosticados em nosso hospital entre janeiro de 2022 e junho de 2023. Os participantes elegíveis atendiam aos critérios diagnósticos para DM2, incluindo glicemia de jejum ≥7,0 mmol/L e glicemia pós-prandial de 2 h ≥11,1 mmol/L, não tinham recebido tratamento com insulina ou medicamentos antidiabéticos de nova geração nos últimos 3 meses, não apresentavam complicações graves envolvendo coração, fígado, rins ou outros órgãos e não tinham histórico de tumores malignos, doenças autoimunes ou doenças infecciosas, além de possuírem prontuários clínicos completos. Foram excluídos pacientes com diabetes tipo 1 ou outros tipos específicos de diabetes, indivíduos em estado de estresse devido a infecção grave, trauma, cirurgia ou outras causas, aqueles que haviam usado glicocorticoides, imunossupressores ou medicamentos semelhantes nos últimos 3 meses e mulheres grávidas ou em período de amamentação. Um grupo controle composto por 80 indivíduos submetidos a exames de rotina em nosso hospital no mesmo período também foi incluído.
Coleta de amostras
Todos os participantes do estudo permaneceram em jejum por pelo menos 8–12 h; 5 mL de sangue venoso foram coletados pela manhã cedo e dispensados em tubos EP livres de RNase, centrifugados (3000 × g, 10 min) para separar o soro e armazenados a -80 °C para uso futuro.
Cultura celular e tratamento
A linhagem de células β de ilhotas pancreáticas de rato INS-1 foi cultivada em meio RPMI 1640 contendo 10% de soro bovino fetal (FBS) e 1% de penicilina-estreptomicina. As células INS-1 foram cultivadas em meio contendo 25 mM de glicose para estabelecer um modelo de dano celular induzido por alta glicose (HG)25. No grupo não tratado, as células INS-1 foram cultivadas em meio RPMI 1640 (contendo 11,1 mM de glicose).
A transfeção foi realizada utilizando o kit de transfeção com miMicos de miR-3619-5p, controle branco de miRNA (miR-NC), si-MTA3 e um controle branco (si-NC). Os miMicos de miR-3619-5p, o inibidor de miR-3619-5p, o siRNA e os controles negativos correspondentes foram todos adquiridos da RiboBio. Concentração do miMico de miRNA: 50 nM; concentração do inibidor de miRNA: 100 nM; concentração do siRNA: 50 nM. Os experimentos subsequentes foram realizados 48 h após a transfeção. As sequências relevantes estão apresentadas na Tabela Suplementar 1.
Reação em cadeia da polimerase com transcriptase reversa quantitativa (RT-qPCR)
O reagente TRIzol foi utilizado para extrair RNA total do soro, enquanto o Kit miRNeasy Mini foi usado para extrair RNA total das células. Para a detecção de miR-3619-5p, a transcrição reversa foi realizada utilizando um kit de transcrição reversa; após a síntese de cDNA, um kit de quantificação de miRNA foi empregado, utilizando U6 como controle interno. Para a detecção de MTA3, a transcrição reversa para cDNA foi realizada utilizando um kit de transcrição reversa de mRNA, e a RT-qPCR foi realizada utilizando um kit de quantificação de mRNA, com GAPDH como controle interno. As alterações na expressão de miR-3619-5p e MTA3 foram analisadas utilizando o método 2-ΔΔCt. As sequências dos primers estão apresentadas na Tabela Suplementar 1.
Ensaio de repórter de luciferase dupla (DLR)
As regiões 3'-UTR selvagem (WT) e mutante (MUT) de MTA3, contendo o sítio de ligação para miR-3619-5p, foram clonadas no vetor pmirGLO. O vetor foi cotransfectado com o análogo de miR-3619-5p e com o inibidor de miR-3619-5p em células 293T utilizando reagentes de transfeção. Os grupos controle de transfeção incluíram: o grupo com plasmídeo repórter vazio (Controle) e o grupo com transfeção de controle negativo de miRNA (miR-NC). Após 48 h, a atividade relativa de luciferase foi medida utilizando um sistema de repórter de luciferase dupla, com a atividade de luciferase Renilla servindo como controle interno. Cada grupo compreende três réplicas biológicas independentes, sendo cada réplica biológica composta por três réplicas técnicas.
Ensaio de proliferação celular
Semeie as células transfectadas em uma placa de 96 poços. Após o cultivo por 0 h, 24 h, 48 h e 72 h, respectivamente, adicione 10 μL do reagente CCK-8 a cada poço, incube a 37 °C por 2 h e meça a absorbância em 450 nm utilizando um leitor de microplacas.
Ensaio de apoptose
Lave as células três vezes com PBS, depois re-suspenda-as em 200 μL de tampão de ligação contendo 10 μL de Annexina V-FITC e 5 μL de PI. Incube por 15 min a temperatura ambiente, no escuro. Adicione 300 μL de tampão de ligação e, em seguida, analise imediatamente as células em um citômetro de fluxo para calcular a taxa de apoptose.
Ensaio imunoenzimático (ELISA)
As células transfectadas foram semeadas em uma placa de 96 poços e mantidas em jejum durante a noite a 37 °C. O meio de cultura foi substituído por uma solução contendo 25 mM de glicose e as células foram cultivadas por 1 h; em seguida, o meio de cultura das células INS-1 tratadas foi coletado para medir a secreção de insulina. As células INS-1 foram ressuspendidas em metanol ácido, sonicadas e o sobrenadante foi coletado para determinar o conteúdo total de insulina. Utilizou-se o Kit ELISA de Insulina de Rato, e o ensaio foi realizado de acordo com as instruções do fabricante. O ensaio utiliza os padrões de referência fornecidos com o kit para construir uma curva de calibração; a concentração absoluta de insulina é calculada com base nos valores de absorbância das amostras, sendo a unidade da concentração absoluta μIU/mL. Por fim, a capacidade de secreção de insulina foi avaliada normalizando os níveis de insulina medidos no meio de cultura em relação ao conteúdo intracelular total de insulina. Os dados nos gráficos estatísticos são apresentados como variações em dobro, calculadas em relação ao grupo controle.
Western blot
As células transfectadas de cada grupo foram coletadas e adicionado tampão de lise RIPA. A concentração total de proteína foi determinada pelo método BCA. 50 μg de proteína total foram misturados com tampão de carga 5× e fervidos por 10 min. Após eletroforese em gel de poliacrilamida SDS a 10%, transferir as proteínas para uma membrana de fluoreto de polivinilideno. Bloquear com leite desnatado a 5% por 1 h; adicionar os anticorpos primários MTA3 (1:1000) e GAPDH (1:1000) e incubar durante a noite a 4 °C; lavar a membrana com TBST, em seguida adicionar o anticorpo secundário de cabra anti-coelho IgG conjugado à HRP (1:1000) e incubar à temperatura ambiente por 1 h; visualizar pelo método de quimiluminescência ECL.
Análise estatística
Dados quantitativos são expressos como média ± desvio padrão. Antes de realizar a análise estatística, o teste de Shapiro–Wilk foi utilizado para verificar a normalidade dos dados, e o teste de Levene foi empregado para avaliar a homogeneidade das variâncias, a fim de determinar a adequação dos testes paramétricos. Os resultados desses testes indicaram que todos os dados quantitativos deste estudo seguiram uma distribuição normal e satisfizeram o pressuposto de homogeneidade das variâncias; portanto, foram utilizados testes paramétricos para a análise estatística. Um teste t para amostras independentes foi usado para analisar os dados de dois grupos, enquanto a análise de variância de um fator (ANOVA) com teste post-hoc de Tukey foi empregada para comparações entre múltiplos grupos. Diagramas de dispersão foram utilizados para avaliar as relações lineares entre as variáveis. A análise de correlação de Pearson foi aplicada quando as premissas de normalidade e linearidade foram atendidas. A análise de correlação de Pearson incluiu todos os 102 participantes; nenhum valor outlier foi excluído. O agrupamento de pontos observado no diagrama de dispersão deve-se à sobreposição das observações da amostra. Todos os experimentos incluíram três amostras replicadas, e cada experimento foi repetido três vezes. O valor de p de <0,05 foi considerado estatisticamente significativo.
Resultados
Comparação das características demográficas e parâmetros metabólicos clínicos entre os participantes do estudo
Os resultados da comparação mostraram que os níveis de glicemia em jejum e de HbA1c foram significativamente elevados em pacientes com DM2 (P < 0,001), enquanto não houve diferenças significativas em outros parâmetros (P > 0,05) (Tabela 1).
Expressão e significância clínica do miR-3619-5p
A análise por RT-qPCR revelou que a expressão de miR-3619-5p no soro de pacientes com DM2 foi significativamente reduzida (P < 0,001; Figura 1A). A análise da curva ROC mostrou que a AUC para miR-3619-5p no diagnóstico de DM2 foi de 0,871 (IC 95%: 0,820–0,922) (Figura 1B). Além disso, os resultados da análise de correlação de Pearson realizada em 102 pacientes com DM2 mostraram que a expressão de miR-3619-5p foi acentuadamente e inversamente relacionada à glicemia em jejum (Figura 1C) e ao HbA1c (Figura 1D).
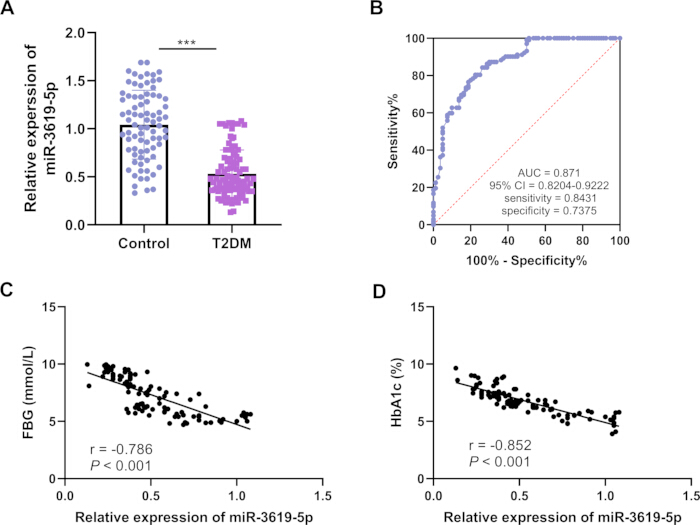
Figura 1: Expressão e significado clínico do miR-3619-5p. (A) Análise por RT-qPCR da expressão do miR-3619-5p no soro de pacientes com DM2. (B) Curva ROC para o diagnóstico do DM2 utilizando o miR-3619-5p. (C) Análise de correlação de Pearson entre a expressão relativa do miR-3619-5p e a glicemia de jejum (FBG). (D) Análise de correlação de Pearson entre a expressão relativa do miR-3619-5p e o HbA1c. As barras de erro representam o desvio padrão (SD); Controle, n = 80; DM2, n = 102. ***P < 0,001 Clique aqui para visualizar uma versão maior desta figura.
O efeito do miR-3619-5p na função das células β pancreáticas
Realizamos ensaios funcionais celulares em células β pancreáticas INS-1 tratadas com glicose alta (HG) para imitar a progressão do DM2. Os resultados revelaram que a expressão de miR-3619-5p foi significativamente reduzida após o tratamento com HG (P < 0,001), enquanto a transfeção com um análogo de miR-3619-5p aumentou acentuadamente sua expressão (P < 0,01; Figura 2A). Em relação à proliferação e apoptose celular, o tratamento com HG inibiu acentuadamente a proliferação celular e promoveu a apoptose (P < 0,001), enquanto o análogo de miR-3619-5p promoveu a proliferação e inibiu a apoptose após o tratamento com HG (P < 0,01; Figura 2B,C). Os resultados do ELISA mostraram que a secreção de insulina foi significativamente reduzida após o tratamento com HG (P < 0,001), enquanto o análogo de miR-3619-5p aumentou a secreção de insulina após o tratamento com HG (P < 0,01; Figura 2D).
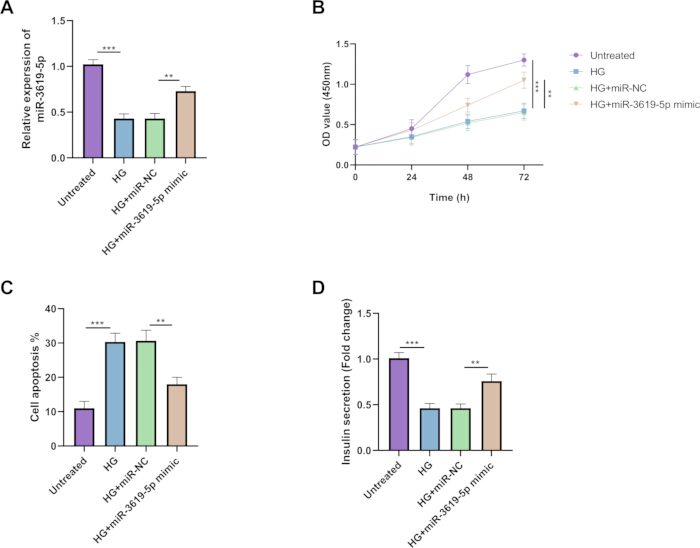
Figura 2: Efeito do miR-3619-5p na função das células β pancreáticas. Células β pancreáticas INS-1 foram tratadas com HG para simular a progressão do DM2. (A) A RT-qPCR foi utilizada para detectar a expressão do miR-3619-5p nas células. (B) A proliferação celular foi avaliada utilizando o ensaio CCK-8. (C) A citometria de fluxo foi utilizada para avaliar a apoptose celular. (D) O ELISA foi utilizado para medir os níveis de secreção de insulina (normalizados pelo conteúdo intracelular total de insulina). As barras de erro representam o desvio padrão (SD), n = 3. ***P < 0,001; **P < 0,01 Clique aqui para visualizar uma versão maior desta figura.
Validação dos alvos do miR-3619-5p
As previsões de bioinformática revelaram um total de 174 genes-alvo em quatro bancos de dados (Figura 3A), e o sítio de ligação do MTA3 exibe um alto grau de conservação (pontuação Context++: -0,31; percentil da pontuação Context++: 98). Um sítio de ligação complementar entre o miR-3619-5p e a região 3'-UTR do MTA3 (Figura 3B) foi identificado. Os resultados do ensaio DLR mostraram que a atividade relativa de luciferase do MTA3 WT foi significativamente aumentada no grupo com o análogo do miR-3619-5p, indicando que o miR-3619-5p pode se ligar ao MTA3 (Figura 3C).
A expressão de MTA3 foi acentuadamente reduzida no soro de pacientes com DM2 (Figura 3D); sua expressão também foi significativamente reduzida em células INS-1 tratadas com HG, enquanto o mimetizador do miR-3619-5p aumentou a expressão de MTA3 (Figura 3E). Os resultados de western blot mostraram que o mimetizador do miR-3619-5p aumentou os níveis proteicos de MTA3, enquanto o inibidor do miR-3619-5p reduziu significativamente sua expressão (Figura Suplementar 1). A análise de correlação de Pearson revelou uma correlação positiva significativa entre os níveis de miR-3619-5p e MTA3 no soro de 102 pacientes com DM2 (Figura 3F). Esses resultados validam ainda mais o papel regulador positivo do miR-3619-5p sobre MTA3.
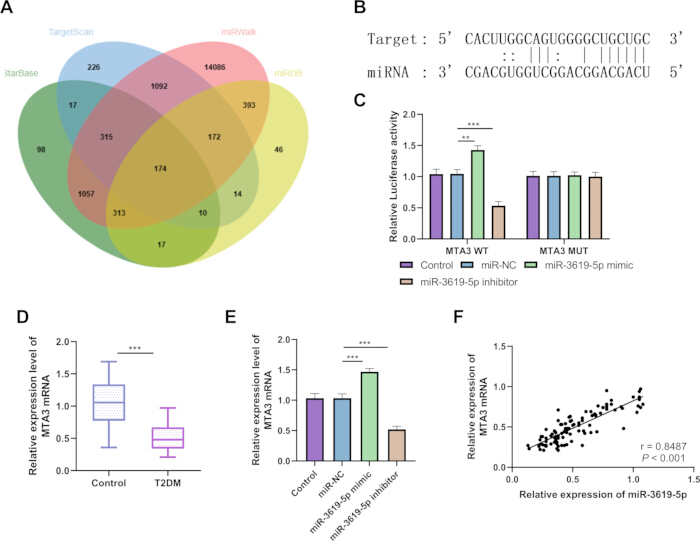
Figura 3: Validação dos alvos do miR-3619-5p. (A) Genes-alvo comuns do miR-3619-5p identificados nos quatro bancos de dados: TargetScan, miRWalk, StarBase e miRDB. (B) Local de ligação do miR-3619-5p à região 3’-UTR de MTA3. (C) Ensaio DLR (n = 3). (D) Análise por RT-qPCR da expressão de MTA3 no soro de pacientes com DM2 (Controle, n = 80; DM2, n = 102). (E) Análise por RT-qPCR da expressão de MTA3 em células (n = 3). (F) Análise de correlação de Pearson entre a expressão de miR-3619-5p e MTA3 no soro de pacientes com DM2 (Controle, n = 80; DM2, n = 102). As barras de erro representam o desvio padrão (DP). ***P < 0,001; **P < 0,01 Clique aqui para visualizar uma versão maior desta figura.
Os efeitos do MTA3 na função das células β pancreáticas
Os resultados mostraram que o si-MTA3 reduziu ainda mais a expressão de MTA3 após o tratamento com HG, enquanto a co-transfecção com o mimetizador de miR-3619-5p reverteu esse efeito (Figura 4A). O si-MTA3 inibiu ainda mais a proliferação de células tratadas com HG, promoveu a apoptose e agravou a disfunção na secreção de insulina; já a co-transfecção com o mimetizador de miR-3619-5p reverteu os fenótipos celulares mencionados anteriormente mediados pelo si-MTA3, restaurando a proliferação celular, reduzindo a apoptose e aliviando a inibição da secreção de insulina (Figura 4B–D).
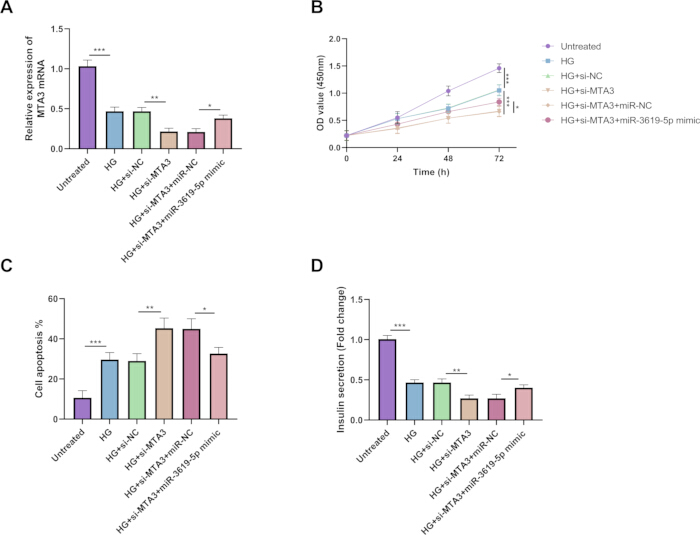
Figura 4: Efeito da MTA3 na função das células β pancreáticas. O si-MTA3 e o miR-3619-5p mimic foram transfectados em células para investigar mais a fundo o efeito da MTA3 na função das células β pancreáticas. (A) Análise por RT-qPCR da expressão de MTA3 em células. (B) A proliferação celular foi avaliada utilizando o ensaio CCK-8. (C) A taxa de apoptose foi determinada por citometria de fluxo. (D) A dosagem de insulina foi realizada por ELISA (normalizada pelo conteúdo intracelular total de insulina). As barras de erro representam o desvio padrão (SD), n = 3. ***P < 0,001; **P < 0,01; *P < 0,05 Clique aqui para visualizar uma versão maior desta figura.
Em resumo, os resultados obtidos com amostras clínicas mostram que a expressão sérica de miR-3619-5p está significativamente reduzida em pacientes com DM2, e que o miR-3619-5p apresenta correlação significativa com GJ e HbA1c; experimentos com células cultivadas confirmaram que o miR-3619-5p pode regular especificamente o MTA3, influenciando assim a viabilidade e a função secretora de insulina das células β pancreáticas de rato da linhagem INS-1. Em conjunto, esses resultados sugerem que o miR-3619-5p está envolvido na regulação da função das células β pancreáticas, cumprindo assim, de forma preliminar, o objetivo da presente pesquisa de investigar o papel do miR-3619-5p no diabetes tipo 2 e seus possíveis mecanismos regulatórios.
DISPONIBILIDADE DE DADOS:
Todos os conjuntos de dados brutos e processados que apoiam as conclusões deste estudo foram enviados como Arquivo Suplementar 1.
| Indicadores | Grupo controle (n = 80) | Grupo DMT2 (n = 102) | Valor de P |
| Idade (anos) | 51,41 ± 9,70 | 52,29 ± 7,03 | 0,478 |
| Sexo (masculino/feminino) | 43/37 | 54/48 | 0,914 |
| IMC (kg/m2) | 24,04 ± 3,10 | 24,81 ± 3,04 | 0,093 |
| CT (mmol/L) | 4,60 ± 0,64 | 4,78 ± 0,65 | 0,068 |
| TG (mmol/L) | 1,61 ± 0,18 | 1,67 ± 0,26 | 0,093 |
| HDL-C (mmol/L) | 1,43 ± 0,13 | 1,38 ± 0,18 | 0,085 |
| LDL-C (mmol/L) | 2,55 ± 0,29 | 2,63 ± 0,31 | 0,067 |
| Glicemia em jejum (mmol/L) | 4,96 ± 0,97 | 7,16 ± 1,64 | <0,001 |
| HbA1c (%) | 4,42 ± 0,49 | 6,77 ± 1,16 | <0,001 |
Tabela 1: Comparação dos parâmetros clínicos entre os indivíduos. DM2, diabetes melito tipo 2; IMC, índice de massa corporal; CT, colesterol total; TG, triglicérides; HDL, lipoproteínas de alta densidade; LDL, lipoproteínas de baixa densidade; GJ, glicemia de jejum; HbA1c, hemoglobina glicada.
Tabela Suplementar 1: Sequências de primers e reagentes utilizadas neste estudo.Clique aqui para baixar este arquivo.
Figura Suplementar 1: Expressão proteica de MTA3. Análise por Western blot dos níveis proteicos de MTA3. (A) Níveis proteicos de MTA3. (B) Imagens brutas do Western blot de MTA3. (C) Imagens brutas do Western blot de GAPDH. As barras de erro representam o desvio padrão (DP), n = 3. ***P < 0,001; **P < 0,01Clique aqui para baixar este arquivo.
Arquivo Suplementar 1: Dados brutos.Clique aqui para baixar este arquivo.
Discussão
As características patológicas centrais do DM2 são a resistência à insulina e a disfunção das células β pancreáticas, com capacidade proliferativa reduzida e diminuição do número de células β pancreáticas como principais fatores responsáveis pela secreção anormal de insulina e pelos principais responsáveis pela progressão da doença26. Identificar moléculas-chave que possam regular a proliferação das células β pancreáticas e melhorar sua função é de grande importância para o diagnóstico e tratamento preciso do DM2.
Como moléculas reguladoras-chave da expressão gênica, os miRNAs exercem uma função crítica na proliferação, apoptose e secreção de insulina das células β pancreáticas. Diversos miRNAs estão estreitamente associados à patogênese do DM227,28,29. Song et al. descobriram que o silenciamento do miR-3619-5p inibe a migração celular no câncer colorretal30. Outros estudos revelaram que o miR-3619-5p está subregulado em pacientes com diabetes submetidos à diálise peritoneal31. No entanto, o papel e os mecanismos do miR-3619-5p no DM2 ainda não foram descritos. Este estudo constatou que a expressão sérica do miR-3619-5p em pacientes com DM2 era significativamente menor do que no grupo controle saudável, o que está de acordo com os achados de Costa et al.31, indicando que a expressão reduzida do miR‑3619‑5p pode estar estreitamente ligada à iniciação e ao desenvolvimento do DM2. A análise de correlação indicou que a expressão do miR-3619-5p apresentou correlação negativa com a glicemia de jejum (FBG) e HbA1c, sugerindo que níveis mais baixos de expressão do miR-3619-5p estão associados a um controle glicêmico mais precário nos pacientes. Isso confirma ainda mais que o miR-3619-5p pode estar implicado no processo de desregulação metabólica do DM2, e seu nível de expressão pode refletir a gravidade da doença; isso está de acordo com os achados de Chen et al., que relataram que RNAs diferencialmente expressos podem estar envolvidos no metabolismo lipídico, na secreção de insulina e na regulação da glicose32. Os resultados da análise da curva ROC sugerem que ele pode ser um biomarcador para o diagnóstico do DM2, compensando a falta de sensibilidade no diagnóstico precoce associada aos indicadores tradicionais de glicemia sanguínea.
A diminuição anormal da capacidade proliferativa das células β pancreáticas é um componente central da falha das ilhotas pancreáticas no DM2; promover a proliferação das células β pancreáticas e aumentar o número dessas células é fundamental para melhorar a função de secreção de insulina33,34. Este estudo demonstrou, por meio de experimentos celulares, que o miR-3619-5p promove significativamente a proliferação das células INS-1 e inibe a apoptose, aumentando assim a secreção de insulina. Isso sugere que o miR-3619-5p pode melhorar a função de secreção de insulina ao promover a proliferação das células β pancreáticas e inibir a apoptose, participando, portanto, da patogênese do DM2. Isso está de acordo com os mecanismos reguladores descritos em estudos anteriores sobre miRNAs na proliferação das células β pancreáticas, como o miR-26a-5p e o miR-765, que promovem a proliferação e diferenciação das células β pancreáticas por meio da regulação da expressão de genes-alvo35,36.
Este estudo utilizou previsões de bioinformática e ensaios DLR para confirmar que MTA3 é um gene-alvo do miR-3619-5p. Como uma proteína associada à metástase, MTA3 está amplamente envolvida em processos fisiológicos essenciais, como proliferação celular, apoptose e metabolismo20. Pesquisas demonstraram que MTA3 participa na regulação da fibrose hepática induzida por glicose elevada24. A supressão de MTA3 mediada pelo DM2 está associada ao aumento do estresse oxidativo nos testículos37. Neste estudo, MTA3 foi regulado negativamente em células tratadas com HG. Juntamente com os resultados dos ensaios de proliferação celular, hipotetiza-se que o si-MTA3 possa contribuir para a patogênese do DM2 ao inibir a proliferação das células β pancreáticas, enquanto o miR-3619-5p pode atenuar essa inibição por meio da regulação da expressão de MTA3, melhorando assim a função das células β pancreáticas. A elucidação desse mecanismo aprimora ainda mais a rede molecular da regulação por miRNA da proliferação das células β pancreáticas e fornece uma nova perspectiva para pesquisas sobre a patogênese do DM2.
Os achados deste estudo têm potencial valor clínico e translacional. O miR-3619-5p sérico pode ser detectado no sangue venoso periférico; se validado em estudos subsequentes com coortes de grande escala, apresenta potencial como marcador biológico auxiliar para auxiliar os clínicos na identificação de indivíduos em risco de disfunção das células β pancreáticas, permitindo assim uma estratificação precoce de risco. O miR-3619-5p pode atenuar os danos induzidos pela hiperglicemia às células β pancreáticas por meio do direcionamento e regulação da via MTA3, mantendo a sobrevivência das células β e a secreção de insulina. Isso sugere que o eixo miR-3619-5p/MTA3 tem potencial para atuar como um novo alvo para a proteção das ilhotas pancreáticas no diabetes, fornecendo subsídios experimentais fundamentais para o desenvolvimento posterior de fármacos baseados em ácidos nucleicos ou inibidores de pequenas moléculas destinados à proteção da função das ilhotas.
Várias limitações devem ser observadas no presente estudo: em primeiro lugar, nossa pesquisa foi conduzida em um único centro; pode haver viés de seleção, e a variabilidade interindividual entre os participantes é relativamente limitada. Estudos futuros deverão ampliar o tamanho da amostra e realizar estudos multicêntricos para verificar o perfil de expressão e o valor clínico do miR-3619-5p. Em segundo lugar, este estudo validou a função reguladora do miR-3619-5p na proliferação de células β pancreáticas apenas no nível celular, sem realizar validação adicional por meio de experimentos em animais. Estudos futuros deverão estabelecer um modelo animal de DM2 para explorar ainda mais seus mecanismos de ação in vivo. Em terceiro lugar, as miRNAs geralmente apresentam características multifuncionais, e o miR-3619-5p pode também regular uma variedade de genes relacionados. Ao mesmo tempo, os sistemas de transfeção in vitro que utilizam miméticos ou inibidores de miRNA estão sujeitos a possíveis efeitos fora do alvo; intervenções artificiais em altas doses podem ativar ou inibir de forma não específica múltiplas vias de sinalização, dificultando a reprodução completa do modo de ação observado em condições fisiológicas. Pesquisas futuras exigirão triagem alvo mais abrangente de todo o transcriptoma para distinguir entre regulação alvo específica e os efeitos biológicos não específicos decorrentes de efeitos fora do alvo. Em quarto lugar, embora este estudo tenha utilizado uma intervenção com glicose 25 mM em seu modelo in vitro de alta glicose, nenhum grupo controle osmótico com manitol foi estabelecido; consequentemente, não foi possível distinguir plenamente entre os efeitos metabólicos específicos da glicose e aqueles resultantes do estresse osmótico. Experimentos futuros deverão incluir controle osmótico para elucidar ainda mais o mecanismo pelo qual níveis elevados de glicose afetam as células INS-1. Por fim, existe uma discrepância entre espécies nas amostras clínicas e nos modelos celulares in vitro; embora as células INS-1 sejam um modelo in vitro clássico para estudar a maturação funcional das células β pancreáticas, os mecanismos regulatórios observados em células de rato não podem ser diretamente equiparados aos processos biológicos reais em humanos. Portanto, deve-se ter cautela ao interpretar a relação regulatória miR-3619-5p/MTA3 identificada no nível celular in vitro neste estudo para aplicações clínicas. Estudos futuros precisarão utilizar modelos de células β pancreáticas humanas ou ilhotas primárias humanas para validar ainda mais a conservação da via entre espécies.
O miR-3619-5p está regulado negativamente no soro e nas células β pancreáticas de pacientes com DM2; ao direcionar o MTA3, o miR-3619-5p pode aliviar a disfunção das células β pancreáticas induzida pela hiperglicemia, promover a proliferação das células β pancreáticas, inibir a apoptose e melhorar a secreção de insulina. Este estudo sugere que o miR-3619-5p pode ser útil no auxílio à estratificação do risco de diabetes e que o eixo miR-3619-5p/MTA3 é um alvo potencial para a proteção das ilhotas. No futuro, realizaremos um estudo de coorte em maior escala para validar seu valor clínico e conduziremos validação funcional in vivo utilizando modelos animais de diabetes; ao mesmo tempo, realizaremos uma análise aprofundada das vias de sinalização a jusante do MTA3 que medeiam alterações na função das ilhotas e avaliaremos mais detalhadamente o potencial translacional desse alvo para a terapia de proteção das ilhotas.
Divulgações
Os autores não têm interesses financeiros ou não financeiros relevantes a divulgar.
Agradecimentos
Este estudo foi apoiado por Estratégias de Prevenção para Pacientes com Diabetes e Infecções do Trato Urinário (nº MSZ2025119).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Kit de Detecção de Apoptose por Annexina V-FITC/PI | Roche, Switzerland | 11684795910 | Coloração com Annexina V-FITC (10 µL) e PI (5 µL); incubação de 15 min no escuro |
| Kit de Contagem Celular-8 (CCK-8) | Dojindo, Japan | CK04 | Ensaio colorimétrico para viabilidade celular; 10 µL por poço, incubação de 2 h, medição da OD450 |
| D-Glicose | Sigma-Aldrich | G7021 | Adicionada ao meio de cultura na concentração de 25 mM para estabelecer o modelo de dano celular induzido por alta glicose (HG) |
| Sistema de Ensaio Dual-Luciferase Reporter | Promega, USA | E1910 | Medição sequencial das atividades de luciferase de firefly e Renilla |
| Soro bovino fetal (FBS) | Gibco, USA | 10437028 | Suplementação com concentração final de 10% |
| Citômetro de fluxo | Beckman Coulter, USA | CytoFLEX | Análise por citometria de fluxo para cálculo da taxa de apoptose |
| Anticorpo contra GAPDH | Abcam, UK | ab181602 | Western blot |
| Primeres para GAPDH | Sangon Biotech, China | Custom synthesis | Gene de referência para normalização de mRNA |
| Anticorpo Secundário Anti-Coelho IgG H&L (HRP) de Cabra | Abcam, UK | ab6721 | Western blot |
| Linhagem celular HEK293T | ATCC, USA | CRL-3216 | Células renais embrionárias humanas; alta eficiência de transfeção para ensaios de luciferase |
| Linhagem celular INS-1 | Sunncell, China | SNL-332 | Linhagem celular de insulinoma de rato; cultivada em RPMI 1640 com 10% FBS e 1% penicilina-estreptomicina |
| Sistema de PCR em Tempo Real LightCycler 480 II | Roche, Switzerland | 5015278001 | Amplificação por PCR em tempo real; formato de placa de 96 ou 384 poços |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | Reagente de transfeção baseado em lipídios |
| Leitor de microplacas | BioTek, Agilent | Synergy H1 | Medição de absorbância; concentrações das amostras interpoladas a partir de curvas-padrão |
| Inibidores de miR-3619-5p | RiboBio, China | miR20017999-1-5 | RNA de fita simples sintetizado quimicamente para inibir a função de miR-3619-5p |
| Mímicos de miR-3619-5p | RiboBio, China | miR10017999-1-5 | RNA de dupla fita sintetizado quimicamente para superexpressão de miR-3619-5p |
| Primeres para miR-3619-5p | Sangon Biotech, China | Custom synthesis | Primeres específicos para detecção de miR-3619-5p |
| miR-NC (controle branco de miRNA) | RiboBio, China | miR2N0000001-1-5 | Controle negativo sem alvo para experimentos com mimetizadores/inibidores de miRNA |
| Kit miRNeasy Mini | Qiagen, Germany | 217004 | Extração de RNA total de amostras celulares |
| Kit miScript II RT | Qiagen, Germany | 218160 | Transcrição reversa para miRNA; utiliza cauda de poli(A) e cebamento com oligo-dT |
| Kit PCR SYBR Green miScript | Qiagen, Germany | 218073 | qPCR baseado em SYBR Green para detecção de miRNA |
| Anticorpo contra MTA3 | Invitrogen, USA | PA5-100022 | Western blot |
| Primeres para MTA3 | Sangon Biotech, China | Custom synthesis | Primeres específicos para detecção de mRNA de MTA3 |
| Espectrofotômetro NanoDrop 2000 | Thermo Fisher Scientific, USA | ND-2000 | Avaliação da concentração e pureza do RNA |
| Penicilina-Estreptomicina | Gibco, USA | 15140122 | Solução antibiótica a 1% para prevenir contaminação bacteriana |
| Vetor de Expressão para Alvo de miRNA Dual-Luciferase pmirGLO | Promega, USA | E1330 | Vetor de reporter dual-luciferase para validação de alvos de miRNA; contém os genes de luciferase de firefly e Renilla |
| Kit Reagente PrimeScript RT com Eraser de gDNA | TaKaRa, Japan | RR047A | Transcrição reversa com etapa de eliminação de DNA genômico |
| Kit ELISA para Insulina de Rato | Invitrogen, USA | ERINS | Detecção quantitativa da insulina secretada pelas células INS-1 no meio de cultura |
| Meio RPMI 1640 | Gibco, USA | 11875093 | Meio de cultura basal; suplementado com 10% FBS e 1% penicilina-estreptomicina |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | RNA interferente pequeno direcionado ao MTA3 para silenciamento gênico |
| si-NC (controle branco para siRNA) | RiboBio, China | siB06525141922-1-5 | Controle de siRNA sem alvo |
| Mistura Mestra PCR SYBR Green | TaKaRa, Japan | RR820A | Amplificação por qPCR baseada em SYBR Green |
| Reagente TRIzol | Invitrogen, USA | 15596026 | Extração de RNA total de amostras de soro |
| Primeres para U6 | Sangon Biotech, China | Custom synthesis | Referência endógena para normalização de miRNA |
Referências
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.