Este protocolo apresenta um método para gerar organoides vasculares utilizando células-tronco pluripotentes induzidas humanas.
Artigo de método
Um Protocolo Otimizado para a Geração de Organoides Vasculares a partir de Células-Tronco Pluripotentes Induzidas Humanas
Neste artigo
Resumo
Resumo
Organoides vasculares derivados de células-tronco pluripotentes humanas (hPSCs) surgiram como modelos tridimensionais poderosos para o estudo do desenvolvimento vascular, mecanismos de doenças e respostas a medicamentos. Os protocolos atuais de organoides vasculares permitem a geração de redes endoteliais e de pericitos autorreguláveis; no entanto, a variabilidade entre lotes, a formação inconsistente de organoides e a cobertura inadequada por pericitos podem comprometer a reprodutibilidade e a escalabilidade. Este estudo apresenta um protocolo otimizado para a geração de organoides vasculares a partir de células-tronco pluripotentes induzidas humanas (hiPSCs) com melhor reprodutibilidade e consistência estrutural. As principais modificações incluem condições refinadas para a formação de corpos embrioides, concentrações e cronometragem otimizadas de fatores de crescimento durante a indução de mesoderma e a especificação vascular, e condições de cultura tridimensional aprimoradas que promovem o recrutamento robusto de pericitos e as interações entre endotélio e pericitos. Os organoides otimizados exibem redes endoteliais altamente ramificadas positivas para CD31 consistentemente envoltas por pericitos positivos para PDGFR-β, com variabilidade significativamente reduzida entre lotes em comparação com o protocolo original. São fornecidos procedimentos detalhados, passo a passo, para a geração de organoides, caracterização por imunofluorescência em montagem inteira e avaliação de controle de qualidade. Este método otimizado permite a produção escalável de organoides vasculares de alta qualidade adequados para o estudo das interações entre células vasculares, modelagem de doenças e triagem de compostos, reduzindo assim a barreira técnica para laboratórios que desejam adotar este sistema de modelo.
Introdução
Organoides tridimensionais (3D) surgiram como ferramentas poderosas para modelar o desenvolvimento e as doenças humanas in vitro, oferecendo biomimetismo estrutural e relevância fisiopatológica superiores em comparação com modelos convencionais de cultivo celular bidimensional1,2. Nos últimos anos, organoides derivados de células-tronco pluripotentes humanas (hPSC) foram estabelecidos com sucesso para múltiplos tipos de tecidos, incluindo intestino3, cérebro4,5, rim6, fígado7,8 e retina9. No entanto, um grande desafio nos estudos baseados em organoides é a vascularização insuficiente durante o cultivo de longo prazo, o que pode levar à hipóxia e necrose, impedindo assim a expansão e diferenciação dos organoides10,11. Para superar essa limitação, diversas estratégias de co-cultivo foram introduzidas, incluindo a incorporação de células endoteliais ou células-tronco mesenquimais para promover a formação de redes vasculares12,13. No entanto, os cultivos convencionais bidimensionais e os modelos animais não recapitulam plenamente a biologia vascular humana, enquanto abordagens de co-cultivo introduzem complexidade experimental adicional14. Organoides vasculares capazes de vascularização autônoma, portanto, oferecem uma promissora alternativa relevante ao ser humano15.
A formação da rede vascular envolve tanto a vasculogênese quanto a angiogênese, que são coordenadas por meio de interações entre células endoteliais e células murais, como pericitos e células musculares lisas vasculares, e são rigorosamente reguladas por múltiplas moléculas sinalizadoras, incluindo VEGF (fator de crescimento endotelial vascular), TGF-β (fator de crescimento transformador-β), PDGF (fator de crescimento derivado de plaquetas) e angiopoietinas16. Em 2019, Wimmer e colegas estabeleceram um método para gerar organoides vasculares tridimensionais autoagregáveis diretamente a partir de hPSCs17,18. Esse sistema gera simultaneamente células endoteliais e pericitos, resultando em redes microvasculares com formação de lúmen e cobertura pela membrana basal. Com base nessa plataforma, organoides vasculares têm sido utilizados para modelar vasculopatia diabética sob estimulação com glicose elevada e citocinas pró-inflamatórias (TNF-α e IL-6); esses organoides reproduzem o espessamento da membrana basal, uma característica marcante da patologia microvascular diabética17. Além disso, esse modelo tem sido usado para estudar doenças vasculares hereditárias e servir como plataforma para triagem de toxicidade vascular19. Mais recentemente, diversos estudos voltados para métodos têm buscado otimizar a geração de organoides vasculares. Por exemplo, avanços no sequenciamento de RNA de célula única identificaram fatores reguladores-chave, como MECOM e LEF1, fornecendo assim uma base molecular para caracterizar e otimizar a formação de organoides vasculares humanos. Além disso, Xu et al. introduziram micropoços para facilitar a formação homogênea de corpos embrionários e incorporaram o coquetel CEPT para melhorar a viabilidade celular, reduzindo efetivamente a variabilidade entre lotes20.
Para melhorar a homogeneidade, reprodutibilidade e produtividade na geração de organoides vasculares, o protocolo original descrito por Wimmer et al.17,18 foi sistematicamente otimizado para superar várias limitações principais. Primeiro, o protocolo original utiliza agregação natural em placas com baixa adesão para a formação de corpos embrioides, o que pode resultar em variabilidade substancial entre lotes quanto ao tamanho dos agregados e, consequentemente, em eficiência heterogênea de diferenciação. No protocolo otimizado, o álcool polivinílico (PVA) é combinado com agitação orbital durante a formação dos agregados para promover agregação celular uniforme e melhorar a consistência no tamanho dos corpos embrioides. Segundo, o protocolo original utiliza substituição completa do meio durante a fase de formação da rede vascular, o que pode causar flutuações substanciais nas concentrações de fatores de crescimento e comprometer a brotação vascular sustentada e o recrutamento de pericitos. Em contraste, o protocolo otimizado mantém um terço do meio condicionado durante cada troca de meio, preservando fatores pró-angiogênicos endógenos e estabilizando o ambiente de cultura. Terceiro, o protocolo original exige múltiplas transferências de placas durante o isolamento e maturação dos organoides, aumentando os requisitos de manipulação e o risco de perda dos organoides. O protocolo otimizado elimina essas etapas transferindo individualmente os organoides isolados para poços de placas de 96 poços com baixa adesão, simplificando assim o procedimento e aumentando a produtividade. Em conjunto, este protocolo otimizado fornece procedimentos detalhados passo a passo e pontos críticos de controle de qualidade para reduzir a barreira técnica à adoção desse sistema modelo e facilitar a aplicação mais ampla de organoides vasculares em estudos de desenvolvimento vascular, mecanismos de doenças e triagem de fármacos em alta produtividade.
Protocolo
O uso de hPSCs neste estudo foi aprovado pelo Comitê de Ética Biomédica da Universidade de Anhui (BECAHU_2026-010).
1. Manutenção de células-tronco pluripotentes induzidas humanas
OBSERVAÇÃO: Mantenha células-tronco pluripotentes induzidas humanas (hiPSCs) em condições livres de camada de sustentação. Realize todos os procedimentos em uma cabine de segurança biológica Classe II utilizando técnica asséptica.
- Preparação de placas de cultura revestidas com matriz da membrana basal
- Retire um frasco de matriz da membrana basal do congelador a −20 °C e descongele-o a 4 °C durante a noite por aproximadamente 12–16 h. Evite ciclos repetidos de congelamento e descongelamento.
- Homogeneíze bem a matriz da membrana basal descongelada em condições estéreis e divida-a em alíquotas de uso único (por exemplo, 1 mL por tubo). Armazene as alíquotas a −20 °C por até 2 anos.
NOTA: Mantenha a matriz da membrana basal, pipetas, ponteiras e tubos frios durante o manuseio para evitar solidificação prematura. Evite introduzir bolhas de ar. - Descongele a alíquota necessária de matriz da membrana basal em gelo. Dilua a matriz da membrana basal na proporção de 1:200 em DMEM pré-resfriado (5 µL de matriz da membrana basal por 1 mL de DMEM; concentração final, aproximadamente 5 µg/mL).
- Agite suavemente a solução com a pipeta até que não restem partículas visíveis.
- Adicione 0,5 mL da matriz da membrana basal diluída a cada poço de uma placa de 12 poços. Incline e gire suavemente a placa para revestir toda a superfície do fundo.
- Incube a placa revestida a 37 °C em uma incubadora com 5% de CO₂ por pelo menos 2 h ou a 4 °C durante a noite.
NOTA: Armazene as placas revestidas e vedadas a 4 °C por 1–2 semanas. Equilibre a placa à temperatura ambiente e aspire a solução de revestimento imediatamente antes do uso.
- Descongelamento de hiPSCs
- Retire um criofrasco de hiPSCs congeladas do nitrogênio líquido e coloque-o imediatamente em banho-maria a 37 °C. Agite suavemente o frasco e remova-o em até 1 min, quando restarem apenas alguns pequenos cristais de gelo.
NOTA: Evite exposição prolongada à dimetilsulfóxido (DMSO) a 37 °C e descongelamento incompleto, pois ambos podem reduzir a viabilidade celular. - Desinfete a parte externa do criofrasco com etanol 70% e abra-o dentro da cabine de segurança biológica.
- Transfira lentamente a suspensão celular gota a gota para um tubo cônico de 15 mL contendo 3 mL de meio de manutenção quimicamente definido para hPSC pré-aquecido, ou um meio de manutenção quimicamente definido equivalente. Misture suavemente durante a transferência para diluir gradualmente o DMSO e minimizar o estresse osmótico.
- Centrifugue as células a 300 × g por 3 min à temperatura ambiente (22–24 °C) utilizando rotor de cestos oscilantes.
- Aspire cuidadosamente o sobrenadante sem perturbar o pellet celular. Resuspenda suavemente o pellet em 1 mL de meio de manutenção quimicamente definido para hPSC pré-aquecido.
NOTA: Use uma pipeta P1000 e pipete suavemente 2–3 vezes para minimizar o cisalhamento mecânico e a formação de bolhas.
- Retire um criofrasco de hiPSCs congeladas do nitrogênio líquido e coloque-o imediatamente em banho-maria a 37 °C. Agite suavemente o frasco e remova-o em até 1 min, quando restarem apenas alguns pequenos cristais de gelo.
- Plaqueamento e cultura de hiPSCs
- Retire a placa de 12 poços pré-revestida da incubadora e aspire a solução de revestimento. Não lave os poços.
- Semente aproximadamente 1 × 10⁵–2 × 10⁵ células viáveis por poço para recuperação rotineira após o descongelamento. Ajuste a densidade conforme a linhagem de hiPSCs e os requisitos experimentais.
- Dispense lentamente a suspensão celular ao longo da parede de cada poço, sem tocar a superfície revestida com a ponteira da pipeta.
- Adicione Y-27632 até uma concentração final de 5 µM para promover a sobrevivência e adesão celular após o descongelamento.
NOTA: Use Y-27632 apenas no meio inicial de plaqueamento. Substitua-o no dia seguinte por meio de manutenção quimicamente definido para hPSC sem Y-27632. - Incube as células a 37 °C com 5% de CO₂ e umidade saturada.
- Avalie a adesão e a morfologia celular após aproximadamente 16–24 h. Aspire o meio e substitua-o por meio fresco e pré-aquecido de manutenção quimicamente definido para hPSC sem Y-27632.
- Substitua o meio diariamente ou em dias alternados até que as células atinjam uma confluência de aproximadamente 70%–80% para passagem ou diferenciação.
NOTA: Examine as culturas diariamente. Utilize colônias com bordas compactas e bem definidas, alta razão núcleo-citoplasma e mínima diferenciação espontânea.
2. Geração e diferenciação de agregados de hiPSC
OBSERVAÇÃO: Mantenha as hiPSCs em condições livres de células de apoio em meio de manutenção de hPSC quimicamente definido, em placas revestidas com matriz de membrana basal. Passe as células a cada 4–5 dias utilizando EDTA 0,02%. Utilize culturas com densidade de semeadura e tamanho de colônia apropriados e com diferenciação espontânea mínima para maximizar a eficiência de diferenciação vascular.
- Preparação de uma suspensão de células isoladas
- Aspire o meio de manutenção quimicamente definido para hPSC e lave as hiPSCs com 0,5 mL de DMEM por poço de uma placa de 6 poços.
- Aspire o DMEM e adicione 0,5 mL de EDTA 0,02% por poço. Incube à temperatura ambiente por 2–4 min e acompanhe as células até que comecem a se arredondar.
- Desprenda as células usando uma pipeta P1000. Pipete suavemente 2–3 vezes para dissociar os agregados em uma suspensão de células isoladas.
- Resuspenda as células em 5 mL de meio de manutenção quimicamente definido para hPSC e transfira a suspensão para um tubo cônico de 15 mL.
- Misture 10 µL da suspensão celular com 10 µL de solução de azul de tripano 0,1%. Carregue 10 µL da mistura em uma câmara de contagem e determine o número de células viáveis.
- Calcule o volume de suspensão celular necessário para obter 5 × 10⁵ células viáveis por poço.
- Centrifugue as células a 300 × g durante 5 min à temperatura ambiente (22–23 °C). Aspire o sobrenadante.
- Resuspenda as células em meio de manutenção quimicamente definido para hPSC fresco contendo 50 µM Y-27632, em um volume de 3 mL por poço.
- Formação de agregados
- Adicione 3 mL da suspensão celular a cada poço de uma placa de 6 poços com superfície de baixa adesão. Adicione PVA até uma concentração final de 0,25%.
- Coloque a placa em um agitador orbital a 50 rpm e incube a 37 °C por 1 dia.
- Confirme a formação de agregados com bordas lisas e diâmetro aproximado de 50–100 µm ou maior antes de prosseguir.
- NOTA: Otimize o período de agregação para cada linhagem individual de hiPSC. Prolongue a incubação para 2–3 dias quando necessário para obter agregados do tamanho desejado.
- Indução de mesoderma
- No Dia 0, transfira os agregados para um tubo cônico de 15 mL usando uma pipeta descartável estéril de 10 mL. Mantenha a placa original de baixa adesão para o replante.
- Deixe os agregados sedimentarem por gravidade por aproximadamente 15–20 min.
- NOTA: Manipule os agregados com cuidado e utilize sedimentação por gravidade em vez de centrifugação para minimizar danos mecânicos.
- Aspire cuidadosamente o sobrenadante após os agregados terem sedimentado.
- Resuspenda os agregados em 3 mL por poço de meio N2B27 suplementado com 12 µM CHIR99021 e 30 ng/mL de BMP-4.
- Transfira os agregados de volta para a placa de baixa adesão e incube a 37 °C.
- Pipete os agregados suavemente uma vez ao dia com uma pipeta P1000 para minimizar a fusão excessiva dos agregados. Continue a indução de mesoderma por 3 dias.
- Indução da linhagem vascular
- No Dia 3, transfira os agregados para um tubo cônico de 15 mL e deixe-os sedimentarem por gravidade. Mantenha a placa de 6 poços original.
- Aspire cuidadosamente o sobrenadante após os agregados terem sedimentado.
- Resuspenda os agregados em 3 mL por poço de meio N2B27 suplementado com 100 ng/mL de VEGF-A e 2 µM de forskolina.
- Transfira os agregados de volta para a placa de 6 poços com superfície de baixa adesão e incube por mais 2 dias.
3. Geração de redes vasculares e organoides
- Preparação da matriz de colágeno I–membrana basal
- Coletar os agregados gerados em uma placa de 6 poços para inclusão em uma placa de 12 poços. Utilizar aproximadamente 40–60 agregados por poço.
- Preparar uma quantidade suficiente da mistura de matriz de colágeno I–membrana basal para adicionar duas camadas de 0,5 mL a cada poço da placa de 12 poços.
- Preparar 12 mL de matriz para uma placa de 12 poços. Manter todos os componentes em gelo, preparar a mistura imediatamente antes do uso e evitar a introdução de bolhas de ar.
- Adicionar 0,5 mL de matriz a cada poço da placa de 12 poços. Agitar suavemente a placa para distribuir a matriz uniformemente.
- Incubar a placa a 37 °C por 2 h para permitir a solidificação da primeira camada da matriz.
- Inclusão dos agregados
- Transferir os agregados para um tubo cônico de 15 mL utilizando uma pipeta descartável estéril de 10 mL e deixá-los sedimentar por gravidade.
- Aspirar o sobrenadante e lavar os agregados duas vezes com 1 mL de meio N2B27. Remover o máximo possível do meio residual após a lavagem final.
- Preparar uma nova mistura de matriz de colágeno I–membrana basal e mantê-la em gelo.
- Res suspender suavemente os agregados lavados na matriz recém-preparada.
- Retirar a placa de 12 poços contendo a primeira camada solidificada do incubador.
- Adicionar 0,5 mL da matriz contendo os agregados a cada poço.
- Balançar suavemente a placa por não mais de 1 min para distribuir os agregados uniformemente.
- Incubar imediatamente a placa a 37 °C por 2 h para permitir a solidificação da segunda camada.
- Indução da brotação vascular
- Pré-aquecer o meio N2B27 suplementado com 15% de FBS, 100 ng/mL de VEGF-A e 100 ng/mL de FGF-2 até 37 °C.
- Adicionar o meio suplementado pré-aquecido a cada poço para induzir a diferenciação vascular.
- Monitorar as culturas quanto à brotação vascular nos próximos 1–3 dias.
- NOTA: Pré-aquecer o meio a 37 °C antes de adicioná-lo às culturas para minimizar a desestabilização da matriz em gel.
- Troca de meio e manutenção da cultura
- Realizar a primeira troca de meio 3 dias após a inclusão.
- Substituir o meio a cada dois dias a partir de então, utilizando meio N2B27 fresco contendo 15% de FBS, 100 ng/mL de VEGF-A e 100 ng/mL de FGF-2.
- Manter um terço do meio condicionado durante cada troca de meio e substituir os dois terços restantes por meio suplementado fresco.
- Prosseguir com o isolamento de organoides vasculares no Dia 10.
4. Estabelecimento de organoides vasculares e preparação para coloração
- Isolamento de redes vasculares individuais
- Insira a extremidade arredondada de uma espátula estéril ao longo da borda do poço e desprenda suavemente a matriz gelificada do fundo.
- Continue movendo a espátula da borda do poço em direção ao centro até que toda a matriz gelificada flutue livremente.
- Utilize duas agulhas estéreis para excisar redes vasculares individuais do gel. Remova o máximo de matriz excedente possível sem danificar a rede vascular.
- Cultivo de organoides isolados
- Transfira cada organoide isolado diretamente para um poço individual de uma placa de 96 poços com superfície não aderente, utilizando uma pipeta descartável estéril.
- Adicione 100 µL de meio N2B27 suplementado com 15% de FBS, 100 ng/mL de VEGF-A e 100 ng/mL de FGF-2 a cada poço.
- Incube os organoides por mais 5 dias e substitua o meio suplementado diariamente.
- Confirme que os organoides exibem morfologia arredondada e completamente encapsulada no Dia 5 da maturação.
- Fixação de organoides vasculares
- Transfira os organoides morfologicamente maduros para tubos microcêntrifugos de 2 mL. Processe não mais do que aproximadamente 60 organoides por tubo.
- Aspire cuidadosamente o meio e adicione paraformaldeído a 4% (PFA) em PBS.
- Fixe os organoides à temperatura ambiente por 1 h.
ATENÇÃO: O PFA é tóxico e suspeito de ser carcinogênico. Manipule o PFA em capela de exaustão química, utilizando equipamento de proteção individual apropriado. - Aspire o PFA e substitua por PBS.
PONTO DE PAUSA: Armazene os organoides vasculares fixados em PBS a 4 °C por até 1 mês.
5. Coloração e imagem confocal de organoides vasculares
- Bloqueio e permeabilização
- Adicione 2 mL de tampão de bloqueio a cada tubo contendo organoides vasculares fixados.
- Posicione os tubos verticalmente em um agitador orbital e incube com agitação à temperatura ambiente por 2 h para bloquear e permeabilizar os organoides.
- Incubação com anticorpo primário
- Aspire o tampão de bloqueio e adicione 50–100 µL de anticorpo primário diluído 1:100 em tampão de bloqueio.
- Posicione os tubos na posição vertical em um agitador e incube com agitação a 4 °C durante a noite.
- Lavagem e incubação com anticorpo secundário
- Lave as amostras três vezes com PBST por 10–15 min a cada lavagem. Agite os tubos posicionados verticalmente durante cada lavagem.
- Adicione anticorpo secundário fluorescente diluído 1:300 em tampão de bloqueio.
- Incube as amostras à temperatura ambiente por 2 h.
- Contracoloração nuclear e lavagem final
- Lave as amostras duas vezes com PBST por 10–15 min a cada lavagem.
- Adicione solução de Hoechst diluída 1:5.000 em PBS e incube à temperatura ambiente por 10–15 min.
- Lave as amostras com PBS por 10–15 min.
- Imagem confocal
- Transfira os organoides corados para placas de imagem confocal.
- Adquira imagens confocais utilizando parâmetros de imagem consistentes entre os grupos experimentais.
- Análise quantitativa de imagens de organoides vasculares
NOTA: Realize a análise quantitativa de imagens utilizando o Fiji/ImageJ e o AngioTool. Mantenha configurações idênticas de aquisição no microscópio para todos os grupos experimentais.- Medição do diâmetro de agregados
- Adquira imagens de campo claro de agregados de hiPSC no Dia 0 utilizando um microscópio invertido com escala calibrada. Capture imagens de agregados bem separados e inclua uma barra de escala.
- Importe cada imagem para o Fiji/ImageJ. Trace uma linha ao longo da barra de escala utilizando a ferramenta Linha Reta e selecione Analisar > Definir escala.
- Insira a distância e a unidade conhecidas (por exemplo, 100 µm) e selecione Global para aplicar a calibração a todas as imagens da sessão.
- Trace uma linha através do diâmetro mais largo de cada agregado utilizando a ferramenta Linha Reta. Selecione Analisar > Medir ou pressione Ctrl+M e registre o diâmetro em µm.
- Meça pelo menos 30 agregados por lote.
- Para agregados não esféricos, contorne cada agregado utilizando a ferramenta de Seleção Oval ou Poligonal. Selecione Analisar > Definir medições > Diâmetro de Feret e registre a medição.
- Exporte as medições da tabela de Resultados e compile os dados em uma planilha.
- Calcule a média, o desvio padrão (DP) e o coeficiente de variação (CV) como CV = DP/média × 100% para cada lote.
- Medição do diâmetro de organoides
- Adquira imagens de campo claro de organoides vasculares maduros no Dia 15 utilizando um microscópio invertido com escala calibrada. Inclua uma barra de escala em cada imagem.
- Importe cada imagem para o Fiji/ImageJ e calibre a escala conforme descrito no passo
- Trace uma linha através do diâmetro mais largo de cada organoide utilizando a ferramenta Linha Reta. Selecione Analisar > Medir ou pressione Ctrl+M e registre o diâmetro em µm.
- Meça pelo menos 30 organoides por lote.
- Para organoides com formato irregular, meça os diâmetros mais longo e mais curto e calcule a média, ou determine o diâmetro de Feret conforme descrito no passo 5.6.1.6.
- Exporte as medições e calcule a média, o DP e o CV para cada lote.
- Quantificação da área vascular positiva para CD31
- Adquira imagens em z-stack confocal de organoides completos no Dia 15 corados para CD31. Utilize potência do laser, ganho, offset e configurações de pinhole idênticas para todas as amostras.
- Gere projeções de intensidade máxima (MIPs) a partir dos z-stacks utilizando o software do microscópio ou o Fiji/ImageJ.
- Aplique um limiar de intensidade para segmentar a rede vascular positiva para CD31, excluindo o sinal de fundo.
- Selecione Processar > Ruído > Remover Outliers e utilize um raio de 2–5 pixels para remover pequenos artefatos. Selecione Processar > Binário > Preencher Buracos para preencher pequenas lacunas dentro da rede vascular.
- Selecione Analisar > Definir medições e habilite Área e Fração de área. Selecione Analisar > Medir para determinar a área vascular.
- Calcule a área vascular positiva para CD31 como porcentagem da área total do organoide.
- Analise pelo menos três organoides por lote provenientes de três lotes independentes. Exporte as medições para análise estatística.
- Quantificação da cobertura de pericitos positivos para PDGFR-β
- Adquira imagens em z-stack confocal de organoides completos no Dia 15 corados para CD31 e PDGFR-β. Gere MIPs a partir dos z-stacks.
- Importe as MIPs de CD31 e PDGFR-β para o Fiji/ImageJ e verifique o alinhamento das imagens.
- Defina o limiar no canal CD31 para gerar uma máscara binária que defina a rede vascular.
- Defina o limiar no canal PDGFR-β utilizando a mesma abordagem de segmentação para gerar uma máscara binária do sinal de pericitos.
- Selecione Processar > Calculadora de Imagens e aplique a operação E às máscaras de CD31 e PDGFR-β para identificar pixels sobrepostos.
- Meça a área do sinal sobreposto.
- Calcule a cobertura de pericitos como (área positiva para PDGFR-β dentro dos vasos positivos para CD31/área vascular total positiva para CD31) × 100%.
- Analise pelo menos três organoides por lote provenientes de três lotes independentes. Exporte as medições para análise estatística.
- Análise do índice de ramificação utilizando o AngioTool
- Adquira imagens em z-stack confocal de organoides completos no Dia 15 corados para CD31. Gere MIPs a partir dos z-stacks.
- Inicie o AngioTool e carregue a imagem MIP.
- Defina o diâmetro dos vasos de acordo com o diâmetro típico observado nas imagens.
- Ajuste o limiar de intensidade para segmentar a rede vascular, excluindo o sinal de fundo. Defina o tamanho mínimo do vaso para excluir pequenos artefatos.
- Execute a análise e registre a área vascular, densidade vascular, comprimento total dos vasos, número de junções e índice de ramificação.
- Verifique a imagem de saída confirmando que a vasculatura está delineada em amarelo, o esqueleto vascular é exibido em vermelho e os pontos de ramificação são marcados com pontos azuis.
- Exporte os resultados quantitativos do AngioTool.
- Analise pelo menos três campos de visão por lote provenientes de três lotes independentes e compile os dados para análise estatística.
- Medição do diâmetro de agregados
6. Análise de PCR quantitativa em tempo real de organoides vasculares
OBSERVAÇÃO: Realize todos os procedimentos de isolamento de RNA e procedimentos subsequentes em condições livres de RNase.
- Extração de RNA
- Coletar 5–10 organoides vasculares maduros do Dia 15 em um tubo microcentrífugo de 1,5 mL livre de RNase. Remover completamente o meio residual.
NOTA: Agrupar múltiplos organoides quando necessário para obter quantidade suficiente de RNA. - Adicionar 350 µL de tampão de lise suplementado com 1% de β-mercaptoetanol.
- Pipetar as amostras 10–15 vezes até que os organoides estejam completamente lisados.
- Transferir o lisado para uma coluna de centrifugação para eliminação de DNA genômico posicionada em um tubo de coleta. Centrifugar a 11.000 × g durante 30 s à temperatura ambiente.
- Descartar a coluna e manter o fluxo passante.
- Adicionar volume igual de etanol 70%, aproximadamente 350 µL, ao fluxo passante e misturar completamente por pipetagem.
- Transferir até 700 µL da mistura para uma coluna de RNA posicionada em um tubo de coleta. Centrifugar a 11.000 × g durante 30 s e descartar o fluxo passante.
- Adicionar 350 µL do tampão de lavagem 1 à coluna. Centrifugar a 11.000 × g durante 30 s e descartar o fluxo passante.
- Preparar a mistura de DNase I combinando 10 µL de DNase I com 70 µL de tampão de digestão de DNase por amostra.
- Adicionar 80 µL da mistura de DNase I diretamente à membrana da coluna e incubar à temperatura ambiente por 15 min.
- Adicionar 350 µL do tampão de lavagem 1 à coluna. Centrifugar a 11.000 × g durante 30 s e descartar o fluxo passante.
- Adicionar 500 µL do tampão de lavagem 2 à coluna. Centrifugar a 11.000 × g durante 30 s e descartar o fluxo passante.
- Repetir a lavagem com 500 µL do tampão de lavagem 2.
- Centrifugar a coluna vazia a 11.000 × g durante 2 min para secar a membrana.
- Transferir a coluna para um novo tubo microcentrífugo de 1,5 mL livre de RNase. Adicionar 30–50 µL de água livre de RNase diretamente à membrana e incubar à temperatura ambiente por 1 min.
- Centrifugar a 11.000 × g durante 1 min para eluir o RNA. Armazenar o RNA a −80 °C até o uso.
NOTA: Avaliar a concentração e pureza do RNA por espectrofotometria. Utilizar uma razão A260/A280 entre 1,8 e 2,1 como faixa aceitável.
- Coletar 5–10 organoides vasculares maduros do Dia 15 em um tubo microcentrífugo de 1,5 mL livre de RNase. Remover completamente o meio residual.
- Síntese de cDNA
- Preparar a mistura de reação de transcrição reversa em gelo.
- Combinar 600 ng de RNA total com 4 µL do mix mestre de RT contendo transcriptase reversa, tampão, dNTPs e primers aleatórios. Adicionar água livre de RNase até um volume final de 20 µL.
- Incubar a reação a 37 °C por 15 min, seguido de 85 °C por 5 s.
- Armazenar o cDNA resultante a −20 °C até o uso.
- PCR quantitativa em tempo real
- Preparar 9 µL do mix mestre de qPCR por reação combinando 5 µL do mix mestre 2× SYBR Green, 3 µL de água livre de RNase e 1 µL de primers direto e reverso pré-misturados a 10 µM cada.
- Distribuir 9 µL do mix mestre em cada poço de uma placa de qPCR de 96 poços.
- Adicionar 1 µL de cDNA a cada poço para obter um volume final de reação de 10 µL.
- Selar a placa com filme adesivo óptico e centrifugar a 1.000 × g por 1 min.
- Realizar a desnaturação inicial a 95 °C por 30 s.
- Realizar 40 ciclos de amplificação de 95 °C por 5 s seguidos de 60 °C por 30 s.
- Realizar análise de curva de dissociação para confirmar a especificidade do amplicon.
NOTA: Executar cada amostra em duplicata ou triplicata. - Calcular a expressão relativa do gene-alvo utilizando o método 2−ΔΔCt. Normalizar os valores de Ct ao gene de referência (por exemplo, GAPDH) e calibrar a expressão em relação às amostras de hiPSCs indiferenciadas.
7. Análise estatística
- Apresente dados quantitativos como média ± desvio padrão (DP) de pelo menos três réplicas biológicas independentes (n ≥ 3) por condição.
- Considere cada lote independente como uma réplica biológica para medições de diâmetro de agregados e organoides, e calcule a média dos 30 estruturas individuais medidos dentro de cada lote para obter uma média única por lote.
- Calcule a média das medições de área vascular, cobertura de pericitos e índice de ramificação de múltiplos organoides ou campos dentro de cada lote para obter um único valor por lote, e utilize esses valores por lote para comparações estatísticas.
- Compare o protocolo otimizado com o protocolo original de Wimmer utilizando um teste t de Student não pareado bicaudal.
- Defina significância estatística como p < 0,05. Indique os níveis de significância como p < 0,05, p < 0,01 e p < 0,001, conforme aplicável.
- Realize todas as análises estatísticas utilizando o software de análise estatística versão 10.
Resultados
O protocolo otimizado descrito aqui permite a geração de organoides vasculares maduros a partir de hiPSCs em aproximadamente 15 dias, utilizando uma estratégia de diferenciação em etapas (Figura 1A). Resumidamente, agregados de hiPSCs foram gerados em placas com superfície não aderente suplementadas com 0,25% de PVA em agitador orbital (Dia −1). A indução de mesoderma foi iniciada no Dia 0 com CHIR99021 (12 µM) e BMP-4 (30 ng/mL) por 3 dias, seguida pela especificação da linhagem vascular com VEGF-A (100 ng/mL) e forskolina (2 µM) por 2 dias (Dias 3–5). No Dia 5, os agregados foram embutidos em uma matriz de colágeno I–membrana basal e cultivados em meio N2B27 suplementado com VEGF-A (100 ng/mL), FGF-2 (100 ng/mL) e 15% de FBS para promover a brotação vascular. No Dia 10, redes vasculares individuais foram isoladas dos géis e transferidas para placas de 96 poços com superfície não aderente, com um organoide por poço, para maturação adicional. No Dia 15, foram obtidos organoides vasculares maduros com morfologia arredondada e totalmente encapsulada (Figura 1B).
Para confirmar a identidade vascular das células diferenciadas, foi realizada coloração por imunofluorescência em preparações inteiras para o marcador endotelial CD31, juntamente com contracoloração nuclear com Hoechst. A microscopia confocal revelou extensas redes endoteliais positivas para CD31 formando estruturas tubulares ramificadas. A reconstrução tridimensional de imagens em z-stack demonstrou ainda a complexidade das redes vasculares dentro dos organoides (Figura 1C). A eficiência da diferenciação também foi avaliada por meio de análise de PCR em tempo real quantitativo de genes específicos da linhagem vascular. A expressão dos marcadores endoteliais CD31 e CDH5 e do marcador de pericitos PDGFR-β foi significativamente aumentada nos organoides do dia 15 em comparação com hiPSCs indiferenciadas. Em contraste, a expressão dos marcadores de pluripotência OCT4, SOX2 e NANOG foi acentuadamente reduzida, confirmando a diferenciação bem-sucedida em direção à linhagem vascular (Figura 1D). A coloração dupla para CD31 e PDGFR-β mostrou que os pericitos positivos para PDGFR-β estavam intimamente associados e envolviam os tubos endoteliais positivos para CD31, indicando a formação de estruturas vasculares com cobertura de pericitos (Figura 1E). Em conjunto, esses resultados demonstram que o protocolo otimizado gera de forma confiável organoides vasculares compostos por células endoteliais e pericitos dentro de uma rede vascular tridimensional complexa.
Para avaliar sistematicamente os aprimoramentos alcançados pelo protocolo otimizado, foram realizadas análises morfométricas quantitativas para comparar organoides gerados com o protocolo original de Wimmer e aqueles gerados com o protocolo otimizado em múltiplos lotes independentes. A microscopia de campo claro revelou diferenças morfológicas acentuadas entre os dois protocolos ao longo da diferenciação. Enquanto o protocolo original produzia agregados e organoides de tamanhos heterogêneos e formas irregulares em múltiplas etapas, o protocolo otimizado gerava agregados consistentemente uniformes, com bordas suaves já no Dia 0, que posteriormente se desenvolviam em organoides vasculares maduros mais arredondados e de tamanho uniforme até o Dia 15 (Figura 2A).
A análise quantitativa do diâmetro dos agregados no Dia 0 confirmou que o protocolo otimizado gerou agregados significativamente mais uniformes (120,3 ± 5,4 µm, CV = 4,47%; 30 agregados medidos por lote; n = 3 lotes independentes) do que o protocolo original (112,2 ± 34,7 µm, CV = 30,93%; n = 3 lotes independentes; t = 6,159, df = 4, p = 0,004; Figura 2B). Essa melhoria na uniformidade foi mantida até o ponto final da diferenciação. Os organoides do Dia 15 gerados com o protocolo otimizado exibiram variabilidade de tamanho substancialmente reduzida (670,8 ± 63,5 µm, CV = 9,47%; 30 organoides medidos por lote; n = 3 lotes independentes) em comparação com os gerados com o protocolo original (615,4 ± 270,9 µm, CV = 44,0%; n = 3 lotes independentes; t = 8,430, df = 4, p = 0,001; Figura 2C).
A formação da rede vascular foi então avaliada por meio da quantificação da cobertura endotelial positiva para CD31 e da cobertura de pericitos positivos para PDGFR-β. Em três lotes independentes, o protocolo otimizado produziu uma cobertura endotelial significativamente maior do que o protocolo original (40,1 ± 2,9% vs. 28,0 ± 7,0%; t = 2,856, df = 4, p = 0,05; Figura 2D). A cobertura de pericitos também foi significativamente maior com o protocolo otimizado (36,2 ± 2,5% vs. 17,5 ± 5,2%; t = 6,636, df = 4, p = 0,003) (Figura 2E). A análise do índice de ramificação utilizando o AngioTool mostrou ainda que os organoides gerados com o protocolo otimizado formaram redes vasculares mais complexas (50,2 ± 3,8 vs. 24,1 ± 6,9 pontos/mm2; t = 6,163, df = 4, p = 0,004; Figura 2F). Por fim, a eficiência geral de formação de organoides foi avaliada como a porcentagem de agregados iniciais que se desenvolveram em organoides vasculares maduros até o dia 15. Em três lotes independentes, o protocolo otimizado alcançou uma eficiência de formação significativamente maior (64,3 ± 3,8%; n = 3) do que o protocolo original (41,3 ± 10,8%; n = 3; t = 3,433, df = 4, p = 0,03), correspondendo a um aumento de aproximadamente 1,6 vez no rendimento de organoides (60–67 vs. 29–50 organoides por 1 × 10⁶ células iniciais; Figura 2G). O protocolo otimizado também reduziu substancialmente a variabilidade entre lotes (desvio padrão, 3,8% vs. 10,8%), demonstrando ainda mais a melhoria na reprodutibilidade.
Os resultados quantitativos dos protocolos original e otimizado, incluindo diâmetro de agregados e organoides, rendimento e eficiência de formação de organoides, área vascular, cobertura por pericitos, índice de ramificação, taxa de falha e variabilidade entre lotes, são resumidos na Tabela 1. As composições dos meios e soluções de matriz utilizados para manutenção de hiPSCs e diferenciação de organoides vasculares são fornecidas na Tabela 2, e a formulação do tampão de bloqueio utilizada para coloração de imunofluorescência em montagem inteira é fornecida na Tabela 3. As sequências de iniciadores utilizadas para análise de PCR quantitativo em tempo real são listadas na Tabela 4. As concentrações de trabalho e condições de preparação dos reagentes principais utilizados durante a geração e caracterização de organoides vasculares são fornecidas no Suplemento da Tabela 1.
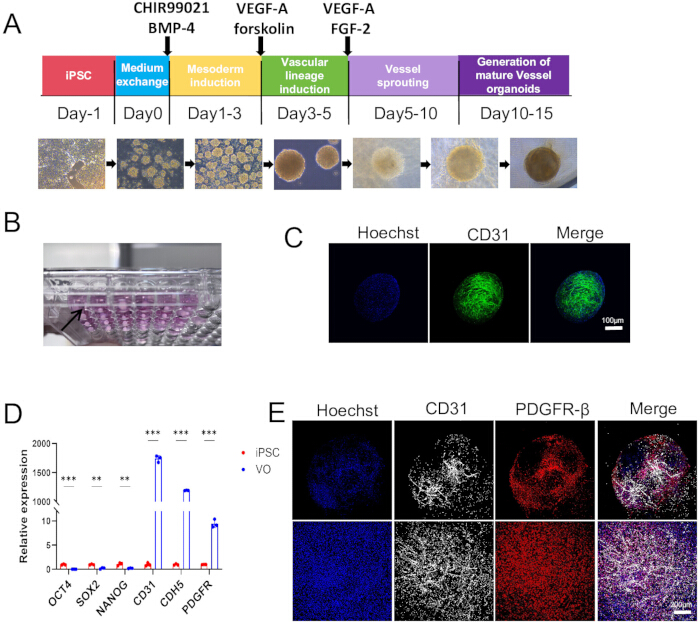
Figura 1Geração e caracterização de organoides vasculares derivados de células-tronco pluripotentes induzidas humanas. (ARepresentação esquemática do protocolo de diferenciação passo a passo de organoides vasculares. Agregados de hiPSCs passam por indução à mesoderme com CHIR99021 e BMP-4, seguida de indução à linhagem vascular com VEGF-A e forskolina, brotamento vascular na presença de VEGF-A e FGF-2, e subsequente maturação em organoides vasculares. Imagens representativas de campo claro ilustram as alterações morfológicas durante a diferenciação do Dia −1 ao Dia 15.B) Imagem macroscópica representativa de organoides vasculares maduros cultivados individualmente em uma placa de 96 poços. (CImagens confocais representativas de um organoide vascular do dia 15 corado para CD31 (verde) e contra-colorado com Hoechst (azul), mostrando a rede endotelial dentro do organoide. Barra de escala = 100 µm. (DAnálise por PCR quantitativa em tempo real dos marcadores de pluripotência OCT4, SOX2 e NANOG e dos marcadores de linhagem vascular CD31, CDH5 e PDGFR-β em organoides vasculares (OV) do dia 15 em comparação com hiPSCs indiferenciadas. Os dados são apresentados como média ± DP de três experimentos independentes. A significância estatística foi determinada utilizando um teste t de Student não pareado e bicaudal t-teste. (EImagens representativas de imunofluorescência em preparação inteira de um organoide vascular do dia 15, coradas para CD31 (branco), PDGFR-β (vermelho) e Hoechst (azul), demonstrando a associação de pericitos positivos para PDGFR-β com redes endoteliais positivas para CD31. Barra de escala = 200 µm. Clique aqui para visualizar uma versão maior desta figura.
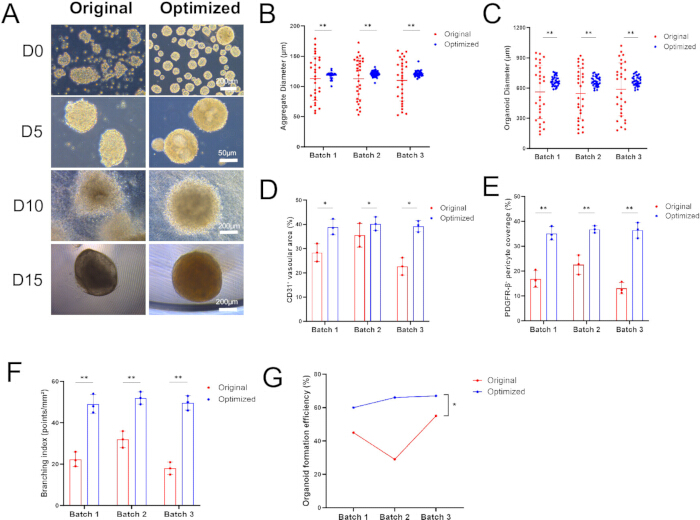
Figura 2: Comparação quantitativa de organoides vasculares gerados utilizando o protocolo original de Wimmer e o protocolo otimizado. (A) Imagens representativas de campo claro mostrando a morfologia de agregados e organoides vasculares gerados com os protocolos original e otimizado no Dia 0 (D0), Dia 5 (D5), Dia 10 (D10) e Dia 15 (D15). Barras de escala = 200 µm (D0), 50 µm (D5), 200 µm (D10) e 200 µm (D15). (B) Quantificação do diâmetro dos agregados no Dia 0 em três lotes independentes. Trinta agregados foram medidos por lote e por condição, e os resultados foram médias para obter uma média por lote. (C) Quantificação do diâmetro dos organoides no Dia 15 em três lotes independentes. Trinta organoides foram medidos por lote e por condição, e as medidas foram médias para obter uma média por lote. (D) Quantificação da área vascular positiva para CD31 em organoides gerados com os protocolos original e otimizado em três lotes independentes. (E) Quantificação da cobertura de pericitos positivos para PDGFR-β em três lotes independentes. (F) Quantificação do índice de ramificação vascular utilizando o AngioTool em três lotes independentes. (G) Eficiência de formação de organoides em três lotes independentes, calculada como a porcentagem de agregados iniciais que se desenvolveram em organoides vasculares maduros até o Dia 15. Os dados são apresentados como média ± DP de três médias independentes por lote (n = 3 lotes independentes por condição). A significância estatística foi determinada utilizando um teste t de Student não pareado bicaudal nas médias por lote. Clique aqui para visualizar uma versão maior desta figura.
Tabela 1: Comparação quantitativa da geração de organoides vasculares utilizando o protocolo original de Wimmer e o protocolo otimizado. Comparação do diâmetro dos agregados e da variabilidade de tamanho no Dia 0, diâmetro dos organoides e variabilidade de tamanho no Dia 15, rendimento de organoides, eficiência de formação de organoides, área vascular positiva para CD31, cobertura de pericitos positivos para PDGFR-β, índice de ramificação vascular, taxa de falha e variabilidade entre lotes. Os valores são apresentados como média ± DP, quando aplicável. As medidas de agregados e organoides foram obtidas a partir de 30 estruturas por lote em três lotes independentes por condição. As medidas de área vascular, cobertura de pericitos e ramificação foram obtidas a partir de pelo menos três organoides ou campos por lote em três lotes independentes. Abreviações: CV = coeficiente de variação; DP = desvio padrão. Clique aqui para baixar esta Tabela.
Tabela 2: Preparação dos meios e soluções matriciais para manutenção de hiPSCs e diferenciação em organoides vasculares. Composição e preparação do meio quimicamente definido para manutenção de hPSCs (PGM1), solução de revestimento com matriz da membrana basal, solução de lavagem para passagem com EDTA 0,02%, meio basal N2B27, meio completo de diferenciação N2B27 e solução de colágeno I utilizados para manutenção de hiPSCs, diferenciação, formação de redes vasculares e cultura de organoides. As condições de armazenamento e requisitos de preparação são fornecidos quando aplicáveis. Abreviações: DMEM = meio de Eagle modificado por Dulbecco; EDTA = ácido etilenodiaminotetraacético; FBS = soro bovino fetal; FGF-2 = fator de crescimento de fibroblastos 2; hiPSC = célula-tronco pluripotente induzida humana; NEAA = aminoácidos não essenciais; PGM1 = Pluripotency Growth Master 1; VEGF-A = fator de crescimento endotelial vascular A. Clique aqui para baixar esta tabela.
Tabela 3: Preparação do tampão de bloqueio para coloração de imunofluorescência em preparações inteiras de organoides vasculares. Composição e condições de armazenamento do tampão de bloqueio e permeabilização utilizados para coloração de imunofluorescência em preparações inteiras. Abreviações: BSA = albúmina sérica bovina; FBS = soro bovino fetal; PBS = solução salina tamponada com fosfato. Clique aqui para baixar esta Tabela.
Tabela 4: Sequências de iniciadores utilizadas para análise de PCR quantitativa em tempo real. As sequências dos iniciadores direto e reverso foram utilizadas para avaliar a expressão dos marcadores da linhagem vascular CD31, CDH5 e PDGFR-β; dos marcadores de pluripotência OCT4, SOX2 e NANOG; e do gene de referência GAPDH. As sequências dos iniciadores são apresentadas na orientação 5′→3′. Abreviações: qPCR = PCR quantitativa em tempo real. Clique aqui para baixar esta tabela.
Tabela Suplementar 1: Concentrações de trabalho e condições de preparação dos reagentes principais utilizados na geração e caracterização de organoides vasculares. Concentrações de trabalho, diluições e condições de preparação ou armazenamento de Y-27632, CHIR99021, BMP-4, VEGF-A, forskolina, FGF-2, PVA, diluentes de anticorpos primários e secundários, solução de trabalho de Hoechst, solução de lavagem PBST e fixador de PFA a 4%. Esses reagentes são utilizados durante a recuperação e agregação de hiPSCs, indução de linhagem mesodérmica e vascular, formação de rede vascular, coloração de imunofluorescência em montagem inteira e fixação de organoides. Abreviações: BMP-4 = proteína morfogenética óssea 4; FGF-2 = fator de crescimento de fibroblastos 2; PFA = paraformaldeído; PVA = álcool polivinílico; PBST = solução salina tamponada com fosfato contendo Tween 20; VEGF-A = fa Clique aqui para baixar esta tabela.
Discussão
O protocolo otimizado descrito aqui introduz diversas melhorias-chave no sistema de diferenciação de organoides vasculares originalmente estabelecido por Wimmer et al.18, com o objetivo de aprimorar a homogeneidade, reprodutibilidade e integridade estrutural da geração de organoides vasculares. Em comparação com o protocolo original, o método otimizado apresenta melhorias significativas nos seguintes aspectos. Primeiro, a otimização das condições de formação de agregados melhora substancialmente a homogeneidade dos corpos embrioides. O protocolo original utilizava agregação natural em placas de 6 poços com superfície de baixa adesão para gerar agregados de hiPSCs, semeando 2 × 10⁵ células por poço para a linhagem NC8 ou 5 × 10⁵ células por poço para a linhagem H9, dependendo da gravidade para promover a agregação celular. Essa abordagem depende fortemente do controle empírico da densidade de semeadura e do tempo de incubação, resultando em variabilidade entre lotes quanto ao tamanho dos agregados. No protocolo otimizado, mantendo-se as placas de 6 poços com superfície de baixa adesão para agregação, foram introduzidas três modificações para melhorar a uniformidade dos agregados: (1) semear 5 × 10⁵ células por poço, garantindo número suficiente de células para uma agregação estável; (2) adicionar 0,25% de álcool polivinílico (PVA) para reduzir a adesão celular inespecífica ao substrato e promover a agregação homotípica célula-célula; e (3) incubação das placas em agitador orbital a 37 °C para facilitar a distribuição uniforme das células e a agregação sincronizada por meio de agitação contínua e suave. Essas modificações resultaram na produção de agregados com morfologia esférica mais regular e bordas mais suaves, fornecendo material inicial mais homogêneo para a indução subsequente de mesoderma e diferenciação vascular (Figura 2A,B).
Se os agregados forem excessivamente pequenos ou frágeis ou não desenvolverem bordas lisas, verifique primeiro a viabilidade celular antes da semeadura, pois a má condição celular é uma causa comum de agregação ineficiente. Para linhagens de hiPSC com baixa capacidade de agregação, aumente a densidade de semeadura para 1 × 10⁶ células por poço ou prolongue o período de incubação de 1 dia para 2–3 dias. Por outro lado, agregados excessivamente grandes geralmente resultam da fusão de múltiplos agregados. Aumente a frequência de pipetagem suave durante o período de incubação para minimizar a fusão de agregados. Manter um tamanho uniforme de agregado nesta fase inicial é essencial, pois a heterogeneidade de tamanho está diretamente associada à variabilidade na eficiência da diferenciação vascular.
Em segundo lugar, a otimização da estratégia de troca de meio mantém melhor o ambiente de cultura durante a diferenciação vascular. Na fase de formação da rede vascular, o protocolo retém um terço do meio condicionado a cada troca e substitui os dois terços restantes por meio de diferenciação completo N2B27 fresco, contendo os mesmos suplementos. Em contraste, o protocolo original utilizava substituição completa do meio. Como o VEGF-A e o FGF-2 são instáveis sob condições de cultura a 37 °C, a troca completa do meio pode causar flutuações significativas nas concentrações dos fatores de crescimento, possivelmente comprometendo a proliferação sustentada das células endoteliais e a formação de brotos vasculares. A retenção de uma parte do meio condicionado preserva fatores pró-angiogênicos secretados pelas células e componentes extracelulares, ao mesmo tempo que minimiza mudanças bruscas no ambiente de cultura. Essa estratégia esteve associada a uma formação mais robusta da rede vascular e maior cobertura por pericitos (Figura 2D,E).
Se a matriz do gel se tornar instável ou colapsar após a adição do meio, confirme primeiro se o meio foi pré-aquecido completamente a 37 °C, pois meio frio pode causar contração do gel. Além disso, verifique a polimerização do colágeno confirmando que o pH da solução de colágeno I é aproximadamente 7,4 e que os lotes de colágeno I e de matriz da membrana basal formam géis estáveis. Se a matriz permanecer frágil ou não solidificar, utilize um novo lote de matriz da membrana basal ou de colágeno I e incube o gel por completo por 2 h a 37 °C antes de adicionar o meio. Prolongue o período de polimerização até 3 h, se necessário.
Terceiro, a simplificação do isolamento e maturação de organoides vasculares melhora a produtividade e a consistência. No protocolo original, as redes vasculares cultivadas em placas de 12 poços até o Dia 10 eram transferidas individualmente para placas de 6 poços com baixa adesividade por 1 dia de cultivo (Dia 11) e, em seguida, transferidas para placas de 96 poços com ultra-baixa adesividade para cultivo contínuo até o Dia 15. Essas duas etapas de transferência de placas aumentam a complexidade operacional e o risco de perda de organoides. O protocolo otimizado introduz três simplificações importantes: (1) transferir os organoides isolados diretamente para placas de 96 poços com ultra-baixa adesividade, com um organoide por poço, eliminando assim o passo intermediário de cultivo em placas de 6 poços e reduzindo o manuseio e os danos mecânicos; (2) cultivar um organoide por poço para evitar a fusão durante o cultivo em suspensão e manter a independência de cada organoide; e (3) realizar trocas diárias do meio por 5 dias para fornecer um suprimento contínuo de nutrientes e fatores de crescimento, permitindo que os organoides amadureçam em estruturas arredondadas e completamente encapsuladas. Essas modificações simplificam o cultivo de organoides, melhoram a produtividade e facilitam aplicações subsequentes de triagem de fármacos em alta escala.
Para minimizar a perda de organoides durante o isolamento, certifique-se de que a matriz de colágeno I–membrana basal esteja completamente destacada do fundo do poço antes de cortar. Mova suavemente uma espátula estéril ao longo do fundo do poço, partindo da borda em direção ao centro, até que todo o gel flutue livremente. Ao transferir organoides isolados, utilize uma pipeta descartável estéril em vez da ponteira de pipeta P1000 para reduzir o estresse mecânico e minimizar o cisalhamento dos organoides. Se os organoides se fragmentarem durante o manuseio, reavalie a qualidade da diferenciação, incluindo a viabilidade inicial das células e a atividade de fatores de crescimento essenciais, como VEGF-A e FGF-2. Se os organoides se fundirem durante o cultivo em suspensão, separe-os suavemente usando duas ponteiras de pipeta P200. No entanto, o cultivo de organoides individuais, um por poço, desde o início da fase de maturação, é a abordagem mais eficaz para prevenir a fusão.
Quarto, a unificação do sistema de meio de cultura simplifica o protocolo e reduz a variação entre lotes. O protocolo original utilizava o meio N2B27 durante a indução de mesoderma com CHIR99021 e BMP-4 e durante a indução da linhagem vascular com VEGF-A e forskolina, mas mudava para um meio de cultura de células hematopoiéticas livre de soro contendo FBS, VEGF-A e FGF-2 durante a formação da rede vascular. Em contraste, o protocolo otimizado utiliza o meio de diferenciação completo N2B27 suplementado com 15% de FBS, VEGF-A e FGF-2 durante toda a formação da rede vascular e a maturação subsequente do organoide, mantendo assim a mesma formulação basal de N2B27. Essa estratégia unificada reduz variáveis adicionais associadas à troca de meios de cultura e simplifica o preparo dos reagentes. O uso dos suplementos definidos B27 e N2 no meio N2B27 também pode contribuir para uma melhor consistência entre lotes, embora a contribuição relativa dessa modificação, isoladamente das demais alterações no protocolo, não tenha sido experimentalmente separada no presente estudo. A eficácia do protocolo otimizado foi confirmada pela superexpressão de marcadores da linhagem vascular e pela subexpressão de marcadores de pluripotência em organoides do dia 15 (Figura 1D). Além disso, a coloração de imunofluorescência em montagem inteira revelou extensas redes endoteliais CD31+ e pericitos PDGFR-β+ estreitamente associados, confirmando a formação de estruturas vasculares com cobertura de células murais (Figura 1C,E). PDGFR-β é um marcador bem estabelecido de pericitos em organoides vasculares humanos, conforme demonstrado em estudos anteriores21.
Se a brotação vascular for fraca ou se agregados grandes e indiferenciados se formarem sem redes endoteliais, pode haver indução insuficiente de mesoderma como causa subjacente. Confirme que CHIR99021 e BMP-4 estão ativos e sendo usados nas concentrações corretas. Uma recrutamento deficiente de pericitos, indicado por células PDGFR-β+ esparsas ao redor dos tubos endoteliais CD31+, pode refletir atividade subótima de VEGF-A ou FGF-2. Testar diferentes lotes de fatores de crescimento e validar funcionalmente os lotes de FBS quanto à sua capacidade de suportar a formação de organoides vasculares pode melhorar a cobertura de células murais. Para validar sistematicamente a eficácia das quatro melhorias metodológicas descritas acima, foram realizadas análises morfométricas quantitativas comparando o protocolo otimizado com o protocolo original de Wimmer (Figura 2; Tabela 1). A microscopia de campo claro revelou diferenças morfológicas acentuadas entre os dois protocolos ao longo da diferenciação. Enquanto o protocolo original produzia agregados e organoides de tamanhos heterogêneos e formas irregulares em todas as etapas, o protocolo otimizado gerou consistentemente agregados uniformes com bordas suaves a partir do Dia 0. Esses agregados subsequentemente se desenvolveram em organoides vasculares maduros mais arredondados e de tamanho uniforme até o Dia 15 (Figura 2A).
A análise quantitativa confirmou que o protocolo otimizado gerou agregados substancialmente mais uniformes no Dia 0 (120,3 ± 5,4 µm, CV = 4,47%, n = 3 lotes independentes) do que o protocolo original (112,2 ± 34,7 µm, CV = 30,93%, n = 3 lotes independentes; Figura 2B). Essa melhoria na uniformidade foi mantida até o ponto final da diferenciação, já que os organoides do Dia 15 gerados com o protocolo otimizado também exibiram variabilidade de tamanho substancialmente reduzida (Figura 2C). Esses resultados sugerem que a combinação da agregação assistida por PVA com agitação orbital reduz a heterogeneidade do tamanho dos agregados em comparação com o protocolo original, gerando um material inicial mais homogêneo para a indução subsequente de mesoderma e diferenciação vascular. No entanto, como o protocolo otimizado incorpora múltiplas modificações simultâneas, a contribuição específica de cada alteração individual para as melhorias observadas não foi separada experimentalmente no presente estudo.
O protocolo otimizado também aumentou significativamente a formação da rede vascular, elevando a cobertura de células endoteliais CD31+ (40,1 ± 2,9% versus 28,0 ± 7,0%; t = 2,856, df = 4, p = 0,05; Figura 2D) e a cobertura de pericitos PDGFR-β+ (36,2 ± 2,5% versus 17,5 ± 5,2%; t = 6,636, df = 4, p = 0,003; Figura 2E). A análise do índice de ramificação utilizando o AngioTool demonstrou ainda que o protocolo otimizado gerou redes vasculares mais complexas (50,2 ± 3,8 versus 24,1 ± 6,9 pontos/mm2; t = 6,163, df = 4, p = 0,004; Figura 2F). Essas melhorias podem resultar de dois fatores complementares. Primeiro, agregados homogêneos fornecem condições iniciais mais consistentes para a brotação vascular. Segundo, a retenção de um terço do meio condicionado pode ajudar a manter os fatores pró-angiogênicos suplementados, ao mesmo tempo que preserva fatores secretados pelas células que poderiam apoiar a migração dos pericitos e sua associação com os tubos endoteliais.
Em última análise, o protocolo otimizado resultou em uma eficiência de formação de organoides aproximadamente 1,6 vez maior (64,3 ± 3,8% vs. 41,3 ± 10,8%; t = 3,433, df = 4, p = 0,03), correspondendo a 60–67 organoides maduros por 1 × 10⁶ células iniciais, em comparação com 29–50 organoides obtidos com o protocolo original (Figura 2G). Notavelmente, o protocolo otimizado reduziu substancialmente a variabilidade entre lotes, com médias dos lotes variando de 60,0% a 67,0% (DP = 3,8%), enquanto o protocolo original exibiu uma variação entre lotes significativamente maior, com médias dos lotes variando de 29,0% a 50,0% (DP = 10,8%).
Coletivamente, os dados quantitativos apresentados na Figura 2 e na Tabela 1 apoiam as melhorias sistemáticas alcançadas com o protocolo otimizado em relação à homogeneidade agregada, formação da rede vascular, recrutamento de pericitos, complexidade vascular e rendimento de organoides. Essas melhorias abordam diretamente as principais limitações do protocolo original relacionadas à reprodutibilidade e escalabilidade.
Em resumo, o presente protocolo otimizado aborda limitações importantes do método original por meio de quatro melhorias principais: otimização da formação de agregados, modificação da estratégia de troca de meio, simplificação do fluxo de trabalho de isolamento e maturação de organoides e unificação do sistema de meio de cultura. Juntas, essas modificações tornam a geração de organoides vasculares mais eficiente, reprodutível e escalável, fornecendo uma plataforma in vitro mais confiável para estudos de desenvolvimento vascular, modelagem de doenças e triagem de fármacos. Contudo, como no método original, o protocolo atual continua dependendo de componentes derivados de animais, incluindo matriz da membrana basal e soro bovino fetal (FBS). Esforços futuros podem, portanto, focar no desenvolvimento de matrizes sintéticas quimicamente definidas e sistemas de cultura livres de soro para aprimorar ainda mais o potencial translacional dessa plataforma.
É importante observar que o protocolo otimizado introduziu múltiplas modificações simultâneas — suplementação com PVA, agitação orbital, retenção de meio condicionado, um fluxo de trabalho de maturação simplificado e um sistema unificado de meio de cultura — e os dados atuais não estabelecem qual modificação individual é responsável pelas melhorias observadas na homogeneidade dos agregados, cobertura endotelial, cobertura de pericitos ou rendimento de organoides. O presente estudo foi planejado para avaliar o efeito cumulativo dessas otimizações como um protocolo completo, em vez de analisar a contribuição de cada componente individual. Experimentos futuros fatoriais ou de ablação serão necessários para determinar o papel específico de cada modificação e aprimorar ainda mais o protocolo.
Apesar dessas limitações, o protocolo atual representa uma base prática e reprodutível para a geração de organoides vasculares. Várias direções emergentes no campo dos organoides vasculares oferecem oportunidades para aprimoramento adicional do protocolo e expansão de suas aplicações. Avanços recentes em hidrogéis sintéticos e livres de componentes animais forneceram alternativas promissoras à matriz da membrana basal e ao colágeno I, com hidrogéis dinâmicos demonstrando potencial para aprimorar a angiogênese e direcionar a diferenciação de organoides vasculares em arteríolas22. Um método robusto livre de origem animal, baseado em culturas em gota única em camada ("sitting drop"), também foi desenvolvido para manter a integridade celular, ao mesmo tempo que melhora a reprodutibilidade e a compatibilidade com automação23. Estudos de multi-ômica em nível de célula única forneceram uma resolução sem precedentes da heterogeneidade celular durante o desenvolvimento de organoides de vasos sanguíneos humanos, revelando transições-chave no destino e estado celular que podem orientar a otimização direcionada de protocolos de diferenciação24. A integração de plataformas microfluídicas permitiu o desenvolvimento de organoides vascularizados funcionais em chip, com redes capilares perfusíveis, aprimorando o crescimento, a maturação e a função dos organoides por meio de perfusão intravascular25. Além disso, sistemas especializados de organoides vasculares em chip estão surgindo como plataformas promissoras para triagem de fármacos e modelagem de doenças, com possíveis aplicações em medicina regenerativa e cirurgia reconstrutiva26. Juntamente com o protocolo de diferenciação otimizado apresentado aqui, essas abordagens complementares podem acelerar a aplicação translacional de organoides vasculares na modelagem de doenças e na triagem terapêutica.
Embora o protocolo atual tenha sido validado utilizando uma única linhagem de iPSCs, a robustez da abordagem de diferenciação é apoiada por resultados consistentes em múltiplos lotes independentes. Contudo, será necessário avaliar outras linhagens de iPSCs e ESCs para estabelecer ainda mais sua generalização. As condições otimizadas, particularmente o suplemento de PVA, a agitação orbital e a retenção de meio condicionado, foram projetadas para abordar aspectos fundamentais do cultivo de organoides, incluindo uniformidade da agregação, transferência de massa e suporte parácrino, e podem, portanto, proporcionar benefícios semelhantes em diferentes origens celulares.
Divulgações
Os autores declaram não haver interesses financeiros concorrentes.
Agradecimentos
Este trabalho foi apoiado pelo Fundo Nacional de Ciências Naturais da China (NSFC) por meio do Fundo para Cientistas Jovens (C) (nº 32200655) e do Programa Geral (nº 32270847). Os autores também agradecem à Plataforma de Serviços Públicos da Universidade de Anhui pelo apoio prestado.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Filtro de frasco com tampa de 0,22 μm | Nalgene | FPE204030 | Para filtração estéril de meios e tampões |
| Tubo cônico de 15 mL | SparkJade | GD0001 | Estéril |
| Tubo microcentrífugo de 2 mL | Eppendorf | 22363204 | Estéril |
| 2-Mercaptoetanol (1000×) | Gibco | 21985023 | Utilizar em capela de exaustão |
| Alexa Fluor 488 AffiniPure F2 Fragment Donkey Anti-Rabbit IgG (H+L) | Lablead | Y1104 | Anticorpo secundário; diluir 1:300 |
| Alexa Fluor 594 AffiniPure F(ab′)2 Fragment Donkey Anti-Goat IgG (H+L) | Lablead | Y1007 | Anticorpo secundário; diluir 1:300 |
| Anticorpo anti-CD31 | Cell Signaling | 3528s | Anticorpo primário; diluir 1:100 em tampão de bloqueio |
| Anticorpo anti PDGFR β | Zenbio | 347269 | Anticorpo primário; diluir 1:100 em tampão de bloqueio |
| Contador Automatizado de Células | Life Technologies | Countess™ II | Inclui lâminas com câmara de contagem |
| Suplemento B27 (50×) | Gibco | 17504044 | Para meio N2B27; descongelar a 4ºC, fracionar e armazenar a −20ºC, evitar ciclos de congelamento-descongelamento |
| Centrífuga de bancada | Zonkia | SC-3610 | Com rotor de balde oscilante |
| Capa de Segurança Biológica (Classe II) | Thermo Fisher | NA | NA |
| BMP4 | Proteintech | HZ-1045 | Reconstituir em ddH2O estéril até 100 ng/μL, fracionar e armazenar a −20 °C |
| Albumina Sérica Bovina (BSA) | Biosharp | 9048-46-8 | Para tampão de bloqueio |
| CHIR99021 | MCE | HY-10182 | Preparar estoque de 10 mM em DMSO, armazenar a −20ºC por até 1 ano |
| Incubadora de CO2 | Fisher Scientific | LS-CO150 | 37 ºC, 5% CO2, umidificada |
| Placa para Imagem Confocal | Biosharp | BS-20-GJM | Para imagem após coloração |
| Microscópio Confocal | LEICA | NA | Equipado com objetivas de 10×, 20×, 63× e software ZEN |
| DMEM | Vivacell | C3113-0500 | Para diluição de Matrigel e solução de colágeno I |
| DMEM/F-12, com Suplemento GlutaMAX | Gibco | 10565018 | Para diluição de Matrigel e meio N2B27 |
| EDTA (0,5 M, pH 8,0) | Invitrogen | AM9260G | Diluir com PBS até 0,02% para passagem |
| Soro Fetal Bovino (FBS) | Gibco | 10270-106 | Para meio de diferenciação completo N2B27 (15% final) |
| FGF-2 | Novoprotein | C046 | Preparar estoque de 1 mg/mL em PBS estéril, fracionar e armazenar a −20ºC |
| Forskolina | R&D Systems | 1099 | Preparar estoque de 10 mM em DMSO, armazenar a −20ºC |
| HEPES (1M) | Gibco | 15630080 | Para solução de colágeno I |
| Hoechst | Beyotime | C1071S-4 | Preparar estoque de 1 mg/mL em água desionizada, fracionar e armazenar a −20ºC |
| Microscópio Invertido | LEICA | DMIL LED | Observação rotineira de células |
| Matrigel (com fatores de crescimento reduzidos) | STEEMA | BM05 | Armazenar a −20ºC após fracionamento, evitar ciclos de congelamento-descongelamento; manipular em gelo |
| Solução de Aminoácidos Não Essenciais MEM (NEAA, 100×) | Gibco | 11140035 | Para meio N2B27 |
| Suplemento N2 (100×) | Gibco | 17502048 | Para meio N2B27; armazenar a −20ºC protegido da luz |
| Meio Neurobasal | Gibco | 21103049 | Para meio N2B27 |
| Água Livre de Nucleases (Livres de DNase/RNase) | Lablead | Doo55WJ | Para preparação de RNA/cDNA e qPCR |
| Agitador Orbital | Joan Lab | NA | Para etapas de lavagem |
| Paraformaldeído (solução a 4%) | Servicebio | G1101 | Diluir com PBS até 4% para fixação; usar em capela de exaustão |
| Penicilina-Estreptomicina (100×) | Gibco | 15140122 | Para meio N2B27 |
| Meio PGM1 | Cellapy | A1517001 | Meio de expansão de hiPSC; armazenar a 4ºC protegido da luz, estável por 2 semanas |
| Suplemento PGM1 (25×) | Cellapy | A1517101 | Para uso com Meio Básico PGM1 |
| Álcool Polivinílico (PVA) | Sigma-Aldrich | P8136 | Dissolver no PGM1 a 0,25% (p/v) para promover agregação |
| PureCol (Colágeno Tipo I Bovino, 3 mg/mL) | Advanced BioMatrix | 5005 | Para mistura de colágeno I-Matrigel; testar lote quanto à capacidade de polimerização |
| Ciclador Térmico para qPCR | Thermo Fisher | StepOnePlus™ | Com capacidade de curva de dissociação; para detecção de PCR em tempo real |
| Kit de Transcrição Reversa | Accurate Biology | AG11706 | Para síntese de cDNA a partir de RNA total; contém mix mestre de RT com transcriptase reversa, tampão, dNTPs e primers aleatórios |
| Kit de Extração de RNA | Yeasen | 19221ES50 | Para isolamento de RNA total de organoides vasculares; inclui colunas de eliminação de DNA genômico e DNase I livre de RNase |
| Bicarbonato de Sódio (7,5%) | Gibco | 25080094 | Para solução de colágeno I |
| Desoxicolato de Sódio | Sigma-Aldrich | D6750 | Preparar solução a 1% (p/v) em água desionizada para tampão de bloqueio |
| Hidróxido de Sódio (1,0 N) | Sigma-Aldrich | S2770 | Para ajuste de pH da solução de colágeno I |
| Pipetas Descartáveis Estéreis (10 mL) | Bkmamlab | 110205007 | Individualmente embaladas, estéreis |
| Pontas de Pipeta Filtradas Estéreis (1000, 200, 20 μL) | Biozym | VT0270/VT0250/VT0220 | Estéreis, com filtro |
| Agulha Estéril (30 G) | NA | NA | Para dissecção de redes vasculares |
| Esátula Estéril (ponta redonda) | Fisher Scientific | 21-401-5 | Aço inoxidável |
| SYBR Green Master Mix | Accurate Biology | AG11733 | Concentração 2× para qPCR; contém DNA polimerase com ativação térmica, tampão, dNTPs e corante SYBR Green |
| Placa de 12 poços tratada para cultura de tecidos | BD Falcon | 353043 | Para incorporação em gel e cultura de rede vascular |
| Placa de 6 poços tratada para cultura de tecidos | Eppendorf | 30720113 | Tratamento padrão TC |
| Triton X-100 | Sigma-Aldrich | T9084 | Para tampão de bloqueio |
| Azul de Tripano (0,4%) | Thermo Fisher | 15250061 | Para contagem celular |
| Tween 20 | Sigma-Aldrich | P7949 | Para solução de lavagem PBS-T a 0,05% |
| Placa de 6 poços com aderência ultra baixa | Corning | 3471 | Para formação de agregados e diferenciação |
| Placa de 96 poços com fundo redondo e aderência ultra baixa | Beyotime | FULA962-6pcs | Para cultura em suspensão de organoides vasculares |
| VEGF-A | Proteintech | HZ-1038 | Preparar estoque de 1 mg/mL em PBS estéril, fracionar e armazenar a −20ºC |
| Banho-maria | Blue pard | HWS-24 | 37ºC |
| Y-27632 | MCE | HY-10071 | Preparar estoque de 10 mM em PBS estéril ou DMSO, armazenar a −20ºC; concentrações de trabalho: 5 μM (descongelamento), 50 μM (formação de agregados) |
Referências
- Lancaster MA, Knoblich JA. Organogenesis in a dish: modeling development and disease using organoid technologies. Science. 2014;345:1247125.
- Clevers H. Modeling development and disease with organoids. Cell. 2016;165:1586-1597.
- Spence JR, et al. Directed differentiation of human pluripotent stem cells into intestinal tissue in vitro. Nature. 2011;470:105-109.
- Lancaster MA, et al. Cerebral organoids model human brain development and microcephaly. Nature. 2013;501:373-379.
- Quadrato G, et al. Cell diversity and network dynamics in photosensitive human brain organoids. Nature. 2017;545:48-53.
- Takasato M, et al. Kidney organoids from human iPS cells contain multiple lineages and model human nephrogenesis. Nature. 2015;526:564-568.
- Takebe T, et al. Vascularized and functional human liver from an iPSC-derived organ bud transplant. Nature. 2013;499:481-484.
- Huch M, et al. Long-term culture of genome-stable bipotent stem cells from adult human liver. Cell. 2015;160:299-312.
- Nakano T, et al. Self-formation of optic cups and storable stratified neural retina from human ESCs. Cell Stem Cell. 2012;10:771-785.
- Mansour AA, et al. An in vivo model of functional and vascularized human brain organoids. Nat Biotechnol. 2018;36:432-441.
- Ham O, et al. Blood vessel formation in cerebral organoids formed from human embryonic stem cells. Biochem Biophys Res Commun. 2020;521:84-90.
- Sun XY, et al. Generation of vascularized brain organoids to study neurovascular interactions. eLife. 2022;11:e76707.
- Grebenyuk S, Ranga A. Engineering organoid vascularization. Front Bioeng Biotechnol. 2019;7:39.
- Parikh M, Pierce GN. Considerations for choosing an optimal animal model of cardiovascular disease. Can J Physiol Pharmacol. 2024;102:75-85.
- Krug A, et al. Three-dimensional spheroid models for cardiovascular biology and pathology. Mechanobiol Med. 2025;3:100144.
- Carmeliet P. Angiogenesis in health and disease. Nat Med. 2003;9:653-660.
- Wimmer RA, et al. Human blood vessel organoids as a model of diabetic vasculopathy. Nature. 2019;565:505-510.
- Wimmer RA, et al. Generation of blood vessel organoids from human pluripotent stem cells. Nat Protoc. 2019;14:3082-3100.
- Naderi-Meshkin H, et al. Vascular organoids: unveiling advantages, applications, challenges, and disease modelling strategies. Stem Cell Res Ther. 2023;14:292.
- Xu C, et al. Vascular organoid generation from human-induced pluripotent stem cells. J Vis Exp. 2024;214:e67125.
- Frenz-Wiessner S, et al. Generation of complex bone marrow organoids from human induced pluripotent stem cells. Nat Methods. 2024;21:868-881.
- Sun D, et al. Matrix viscoelasticity controls differentiation of human blood vessel organoids into arterioles and promotes neovascularization in myocardial infarction. Adv Mater. 2025;37:e2410802.
- Hoffmann A, et al. Animal-origin-free method for generating blood vessel organoids. Sci Rep. 2026;16:12096.
- Nikolova MT, et al. Fate and state transitions during human blood vessel organoid development. Cell. 2025;188:3329-3348.e31.
- Quintard C, et al. A microfluidic platform integrating functional vascularized organoids-on-chip. Nat Commun. 2024;15:1452.
- Sun L, Wang P, Lin X, Qiu Y. Microfluidic vascular organoids-on-chips: a promising platform for advancing plastic and reconstructive surgery. Chinese Journal of Plastic and Reconstructive Surgery. 2025.