Este estudo combina tecidos humanos pareados, duas linhagens celulares de carcinoma de células escamosas de pulmão, ensaios de estabilidade de RNA e proteína, experimentos de resgate genético e um modelo de xenotransplante com silenciamento de FOXD1 para examinar a regulação de FOXD1 associada a METTL3 e fornecer uma estrutura reproduzível para investigar mecanismos oncológicos pós-transcricionais.
Artigo de investigação
A Regulação de FOXD1 Associada ao METTL3 Promove a Progressão do Carcinoma de Células Escamosas do Pulmão: Uma Abordagem Experimental Multimodelo
* These authors contributed equally
Neste artigo
Resumo
Resumo
O carcinoma de células escamosas do pulmão (LUSC) possui opções de tratamento limitadas, o que motiva a investigação de vias moleculares que sustentem o crescimento das células tumorais. A expressão da proteína Forkhead box D1 (FOXD1) foi avaliada utilizando análise interativa de perfis de expressão gênica (GEPIA), reação em cadeia da polimerase com transcriptase reversa quantitativa (qRT-PCR), western blot e imunohistoquímica em tecidos pareados e linhagens celulares. A depleção de FOXD1 ou da metiltransferase-like 3 (METTL3) foi realizada em células de LUSC, e foram avaliadas a viabilidade celular, apoptose, migração, níveis globais de N6-metiladenosina (m6A), estabilidade de transcritos e estabilidade proteica. Um modelo xenotransplantado com silenciamento de FOXD1 testou o papel in vivo da FOXD1; METTL3 não foi manipulada em animais.
A expressão de FOXD1 foi maior em tecidos e células de LUSC do que nos controles correspondentes. O silenciamento de FOXD1 reduziu a viabilidade e a migração, aumentou a apoptose e suprimiu o crescimento de xenoenxertos. A expressão de METTL3 correlacionou-se com FOXD1 em tecidos emparelhados de LUSC. Em células cultivadas, o silenciamento de METTL3 diminuiu a abundância global de m6A e de FOXD1, enquanto a reexpressão de FOXD1 resgatou parcialmente os fenótipos associados. Ensaios com actinomicina D, cicloheximida e MG132 foram consistentes com alterações associadas a METTL3 na estabilidade do RNA e da proteína FOXD1.
Esses dados apoiam uma associação funcional entre METTL3 e FOXD1 em células de LUSC. In vivo, o silenciamento de FOXD1 suprimiu o crescimento do xenoenxerto e reduziu a marcação de Ki-67, estabelecendo FOXD1 como um promotor do crescimento do xenoenxerto. A ligação direta entre METTL3 e FOXD1, a modificação específica de sítio por m6A, a dependência de proteínas leitoras e a validação in vivo da via completa METTL3–FOXD1 permanecem a ser estabelecidas.
Introdução
O câncer de pulmão continua sendo uma das principais causas de mortalidade por câncer em todo o mundo1,2. O carcinoma de células escamosas de pulmão (LUSC), um subtipo histológico importante do câncer de pulmão não microcítico (NSCLC), frequentemente se apresenta após o tratamento local curativo já não ser mais viável3,4. O tratamento sistêmico apresentou melhorias, mas muitos pacientes ainda têm desfechos desfavoráveis5. Portanto, definir programas moleculares que sustentam o crescimento do LUSC pode revelar biomarcadores passíveis de teste e hipóteses terapêuticas.
Forkhead box D1 (FOXD1) é um fator de transcrição implicado nos cânceres colorretal, de cabeça e pescoço, gástrico, de células escamosas orais e de mama6,7,8,9,10. No CEPNPC, a expressão de FOXD1 tem sido associada a desfecho adverso e ao crescimento celular e metástase experimentais11,12. O microRNA-30a-5p também suprime a proliferação e migração de células de CESC ao direcionar o FOXD113. Essas observações identificam o FOXD1 como um regulador plausível do CESC, mas não estabelecem como sua expressão é mantida nesta doença.
A N6-metiladenosina (m6A) é uma modificação reversível do RNA instalada, removida e interpretada por proteínas escritoras, apagadoras e leitoras. Esse sistema regulatório pode influenciar o processamento do RNA, tradução e degradação, e sua desregulação tem sido associada a fenótipos malignos e resposta ao tratamento14,15,16,17. A metiltransferase-like 3 (METTL3) é um componente catalítico do complexo escritor de m6A; no entanto, uma correlação entre METTL3 e FOXD1 isoladamente não pode demonstrar metilação direta ou regulação mediada por proteínas leitoras.
Hipotetizamos que o METTL3 promove a progressão do LUSC ao manter a expressão do FOXD1 por meio da regulação pós-transcricional associada à m6A. Ao integrar espécimes clínicos pareados, duas linhagens celulares tumorais, ensaios de perda de função e de resgate, análises de estabilidade de transcritos e proteínas e um modelo de xenotransplante com silenciamento do FOXD1, este estudo fornece uma base funcional para investigar a relação entre METTL3 e FOXD1, ao mesmo tempo que distingue associação de metilação direta e específica por sítio.
Protocolo
A coleta de tecido humano foi realizada de acordo com a Declaração de Helsinque e foi aprovada pelo Comitê de Ética em Pesquisa do Primeiro Hospital da Universidade Jilin (número de aprovação 2022-339; 22 de julho de 2022), e o consentimento informado por escrito foi obtido de todos os participantes. O protocolo com animais foi aprovado pelo Comitê de Manejo Animal do Primeiro Hospital da Universidade Jilin (número de aprovação 2022-0015; 25 de janeiro de 2022) e foi conduzido de acordo com as diretrizes institucionais para cuidado e uso de animais.
Participantes do estudo
Os espécimes arquivados compreenderam 12 pares de tecidos primários de CEP e tecidos não tumorais adjacentes coletados de pacientes submetidos à cirurgia entre janeiro de 2019 e dezembro de 2020. Os pacientes elegíveis tinham diagnóstico histopatológico confirmado de CEP primário, sem metástase documentada e sem tratamento direcionado ao CEP nos 6 meses anteriores. Os casos foram selecionados por meio de uma tabela de números aleatórios e incluíram sete homens e cinco mulheres com idades entre 30 e 65 anos. O consentimento informado por escrito foi obtido de todos os participantes.
Linhas celulares
Células epiteliais brônquicas humanas BEAS-2B (RRID: CVCL_0168), LUSC SK-MES-1 (RRID: CVCL_0630) e células NCI-H226 (RRID: CVCL_1544) foram obtidas do Banco de Células da Academia Chinesa de Ciências. As células foram mantidas em meio de Eagle modificado por Dulbecco contendo 10% de soro bovino fetal e 1% de penicilina-estreptomicina a 37 °C em 5% de CO2. Os identificadores comerciais estão consolidados na Tabela de Materiais acompanhante.
Triagem com RNA de interferência pequeno e resgate
Três RNAs de interferência pequenos individuais direcionados a FOXD1 ou METTL3 foram testados em células SK-MES-1 e NCI-H226. A redução da expressão gênica foi avaliada 48 h após a transfeção por meio de PCR quantitativo de transcrição reversa (qRT-PCR) e western blotting. O siRNA-1 para FOXD1 foi utilizado nos ensaios funcionais downstream de FOXD1 porque promoveu a maior redução em ambas as linhagens celulares. Os experimentos downstream com METTL3 utilizaram o reagente si-METTL3 selecionado a partir da triagem. O registro arquivado não identifica um SmartPool nem preserva uma sequência ou identificador de fornecedor que possa ser atribuído com confiança. Para os experimentos de resgate, as células receberam o reagente si-METTL3 selecionado, o construto de superexpressão de FOXD1 ou ambos; a expressão e os fenótipos celulares foram avaliados 48 h após a transfeção.
Isolamento de RNA e qRT-PCR
O RNA total foi isolado de tecidos ou células com um reagente de fenol–guanidinina e transcrito reversamente utilizando um kit comercial de transcrição reversa. A qRT-PCR foi realizada com uma mistura mestra TB Green em um sistema de PCR em tempo real (RRID: SCR_018051). As sequências dos iniciadores estão fornecidas na Tabela 1. A expressão relativa foi normalizada em relação à desidrogenase de gliceraldeído 3-fosfato (GAPDH). A montagem da reação e o ciclo térmico seguiram o protocolo do fabricante para a mistura mestra listada.
Western blotting
Tecidos ou células foram lisados em tampão de ensaio de radioimunoprecipitação (RIPA) contendo inibidores de protease. Quantidades equivalentes de proteína foram separadas por eletroforese em gel de poliacrilamida com dodecilsulfato de sódio (SDS-PAGE) e transferidas para membranas de fluoreto de polivinilideno (PVDF). As membranas foram incubadas durante a noite a 4 °C com anticorpos contra FOXD1 (1:1.000), METTL3 (1:1.000; RRID: AB_2142033) ou GAPDH (1:2.000; RRID: AB_10622025), seguidas por imunoglobulina G anti-coelho conjugada à peroxidase do rabo-de-cavalo por 1 h à temperatura ambiente. Os sinais foram revelados por quimioluminescência aprimorada, utilizando GAPDH como controle de carga. A Tabela de Materiais identifica os anticorpos primários comerciais e registra o reagente secundário como um anticorpo de detecção de imunoglobulina G anti-coelho.
Viabilidade celular e apoptose
Para medições de viabilidade, células LUSC controle e transfectadas foram semeadas em placas de 96 poços a 2.000 células por poço. Em intervalos de 12 h, 10 µL do reagente do kit de contagem de células-8 foram adicionados por poço, as placas foram incubadas por 1 h a 37 °C, e a absorbância foi registrada a 450 nm. Para análise de apoptose, 1 × 10⁵ células por poço foram semeadas em placas de 6 poços e analisadas 48 h após a transfeção. As células colhidas foram processadas de acordo com as instruções do kit Annexin V–fluoresceína isotiocianato (FITC)/iodeto de propídio (PI), suspensas em 100 µL de tampão de ligação, coradas com 5 µL de cada reagente por 30 min à temperatura ambiente no escuro, e analisadas por citometria de fluxo dentro de 4 h.
Migração em Transwell
Células LUSC transfectadas foram colocadas em meio livre de soro na câmara superior do transwell; a câmara inferior continha 500 µL de meio suplementado com 10% de soro bovino fetal. Após 24 h, as células migradas foram fixadas com paraformaldeído a 4% e coradas com violeta de cristal por 10 min. Células não migradas na superfície superior da membrana foram removidas com um cotonete. As células migradas foram imagiadas com um microscópio sob condições idênticas de aquisição e quantificadas com o ImageJ (RRID: SCR_003070).
Modificação da metilação m6A
A abundância global de m6A foi medida por meio de um ensaio colorimétrico de metilação de RNA. Após extração do RNA e avaliação da qualidade, 200 ng de RNA foram aplicados em cada poço do ensaio. O anticorpo de captura (50 µL) foi adicionado por 60 min a temperatura ambiente. Os poços foram lavados três vezes, incubados com 50 µL de anticorpo de detecção por 30 min, lavados quatro vezes e incubados com solução de realce de sinal por 30 min. A absorbância foi medida a 450 nm. Todos os passos seguiram as instruções do kit listado.
Detecção da estabilidade de mRNA
Células LUSC foram semeadas em placas de 6 poços e transfectadas com RNA interferente pequeno controle negativo (si-NC) ou com RNA interferente pequeno direcionado ao METTL3 (si-METTL3). Após 48 h, actinomicina D foi adicionada até 5 µg/mL para interromper a transcrição. As células foram coletadas nos tempos de 0 h, 2 h, 4 h e 6 h, o RNA total foi isolado e a abundância do transcrito FOXD1 foi medida por qRT-PCR.
Cicloeximida (CHX) e ensaios com MG132
Para cada ensaio de ponto final com inibidor, foram comparadas células controle de vetor sem tratamento, células controle de vetor tratadas com inibidor e células superexpressando METTL3 tratadas com inibidor. Utilizou-se MG132 a 10 µM e CHX a 20 µM; os lisados foram coletados após 12 h para análise por western blot. Para o curso temporal com CHX, células transfectadas com si-NC ou si-METTL3 foram tratadas com CHX a 20 µM e coletadas aos 0 h, 3 h, 6 h e 9 h. A abundância da proteína FOXD1 foi medida por meio de western blot.
In vivo experimentos
Camundongos nu BALB/c atímicos com cinco semanas de idade foram distribuídos nos grupos controle negativo e com silenciamento de FOXD1 de células SK-MES-1 (n = 8 camundongos por grupo). Cada camundongo recebeu uma injeção subcutânea de aproximadamente 8 × 10⁶ células. O monitoramento dos tumores iniciou-se uma semana após o implante; o tamanho dos tumores foi registrado a cada 4 dias durante 20 dias consecutivos. Os camundongos foram eutanasiados conforme protocolos institucionais aprovados no dia 27 após a inoculação, imediatamente após a última medição, e os tumores foram ressecados, pesados e fotografados. Populações celulares estáveis com silenciamento de FOXD1 e controles negativos pareados de células SK-MES-1 foram utilizadas para o implante.
Imunoquímica
Tumores ressecados foram emblocados em parafina e seccionados com espessura de 4–5 µm. Os cortes foram desparafinizados, reidratados, incubados durante a noite a 4 °C com o anticorpo primário e, em seguida, incubados com o anticorpo secundário apropriado por 30 minutos. As células positivas para antígeno foram visualizadas com um substrato de diaminobenzidina. FOXD1 e Ki-67 foram avaliados nos xenografos, com cortes pareados processados no mesmo lote de coloração e analisados com as mesmas configurações de aquisição de imagem.
Análise estatística
As análises foram realizadas com o GraphPad Prism versão 8 (RRID: SCR_002798) e R (RRID: SCR_001905). As comparações entre dois grupos utilizaram o teste t de Student, e as comparações envolvendo mais de dois grupos utilizaram análise de variância. As análises pareadas de tecidos humanos utilizaram 12 pares de pacientes; os resumos in vitro representam três experimentos biológicos independentes; as análises de xenotransplantes utilizaram oito camundongos por grupo. Repetições técnicas não foram consideradas observações independentes. Os dados são apresentados como média ± desvio padrão. Um valor de P bicaudal < 0,05 foi considerado estatisticamente significativo.
Resultados
A expressão de FOXD1 está elevada em tecidos humanos de CCEP
Uma consulta ao Gene Expression Profiling Interactive Analysis (GEPIA) mostrou maior abundância de transcritos de FOXD1 no LUSC em comparação com amostras normais de pulmão, enquanto a comparação com adenocarcinoma de pulmão não alcançou significância estatística (Figura 1A). A análise de 12 pares de tecidos de LUSC e tecidos não tumorais adjacentes revelou a mesma tendência de alteração por qRT-PCR e por western blotting (Figura 1B,C). A coloração por imunohistoquímica também mostrou um sinal mais intenso de FOXD1 em seções tumorais do que em tecido adjacente pareado (Figura 1D).
A diminuição de FOXD1 reduz a viabilidade e a migração e aumenta a apoptose em células de carcinoma de pulmão de células escamosas (LUSC)
A abundância do transcrito FOXD1 foi maior nas células SK-MES-1 e NCI-H226 do que nas células BEAS-2B (Figura 2A). Três RNAs interferentes pequenos direcionados ao FOXD1 foram testados; o siRNA-1 produziu a maior redução detectada por qRT-PCR e por western blotting e foi selecionado para ensaios subsequentes (Figura 2B,C). Em relação ao controle negativo, o silenciamento do FOXD1 reduziu o sinal do Cell Counting Kit-8 (Figura 2D), aumentou o número de células positivas para Annexina V (Figura 2E) e diminuiu a migração em Transwell (Figura 2F) em ambas as linhagens celulares de LUSC. Um único reagente selecionado foi utilizado nas etapas seguintes, de modo que os resultados funcionais não constituem exclusão independente de sequência de efeitos fora do alvo.
A expressão de METTL3 correlaciona-se com FOXD1 em amostras de LUSC
A metilação m6A é uma modificação química dinâmica e reversível amplamente presente em eucariotos, regulada por metiltransferases e desmetilases, e reconhecida e processada por proteínas ligadoras de m6A18. O sinal global de m6A foi maior em 12 tecidos de LUSC do que em tecidos adjacentes pareados e também foi maior em ambas as linhagens celulares de LUSC do que nas células BEAS-2B (Figura 3A). Os transcritos que codificam METTL3, METTL14, WTAP e RBM15 estavam aumentados nas amostras tumorais pareadas (Figura 3B). Nos dados do GEPIA e no conjunto de 12 tumores, FOXD1 mostrou sua associação positiva mais clara com METTL3; a associação com RBM15 foi mais fraca (Figura 3C,D). A análise por Western blot confirmou ainda maior abundância de METTL3 nos tecidos tumorais (Figura 3E). Essas análises estabelecem co-variação, não regulação direta.
A diminuição de METTL3 altera a abundância de FOXD1 e os fenótipos das células de LUSC
Três RNAs interferentes pequenos direcionados ao METTL3 foram testados em células SK-MES-1 e NCI-H226 por qRT-PCR e western blotting (Figura 4A,B). A diminuição do METTL3 reduziu o sinal global de m6A (Figura 4C). A superexpressão de FOXD1 aumentou os níveis de FOXD1 sem elevar o METTL3 (Figura 4D), e o experimento de resgate com quatro grupos confirmou a menor abundância de FOXD1 após a diminuição do METTL3 e sua restauração pelo construto de FOXD1 (Figura 4E,F). A diminuição do METTL3 reduziu a viabilidade e a migração e aumentou a apoptose; a reexpressão de FOXD1 contrapôs parcialmente essas alterações (Figura 4G–I). Assim, os dados de resgate são consistentes com a atuação de FOXD1 downstream do METTL3 em células cultivadas.
A perturbação de METTL3 está associada à estabilidade do RNA e da proteína FOXD1
Evidências crescentes sugerem que a modificação de mRNA m6A modula diversos aspectos do ciclo do mRNA, incluindo o processamento de pré-mRNA, tradução, exportação nucleocitoplasmática, degradação e splicing19,20. O SRAMP identificou motivos candidatos de m6A no RNA de FOXD1, e o m6A2Target listou METTL3 como uma enzima escritora predita associada a FOXD1 em células H1299 (Figura 5A,B). Essas saídas de banco de dados têm caráter gerador de hipóteses e não demonstram ligação ou metilação em sítios específicos em células de LUSC. Após o bloqueio transcricional com actinomicina D, o RNA de FOXD1 diminuiu mais rapidamente após o silenciamento de METTL3 do que em células controle (Figura 5C). A abundância de FOXD1 foi maior em células com superexpressão de METTL3 tratadas com MG132 do que em controles vetoriais tratados com MG132, enquanto esse padrão não foi observado após tratamento com CHX (Figura 5D,E). O curso temporal com CHX mostrou perda mais rápida da proteína FOXD1 após o silenciamento de METTL3 (Figura 5F). Em conjunto, esses ensaios são compatíveis com alterações associadas a METTL3 na estabilidade do RNA e da proteína FOXD1, mas não identificam a adenosina modificada, não demonstram ligação direta nem definem um leitor de m6A.
A supressão do FOXD1 inibe o crescimento de xenografias de LUSC
Para testar a função da FOXD1 in vivo, células SK-MES-1 controle e com silenciamento de FOXD1 foram implantadas subcutaneamente em camundongos nu (n = 8 por grupo). A partir de uma semana após o implante, os tumores foram medidos a cada 4 dias durante 20 dias e coletados no dia 27 após a inoculação. Os tumores ressecados foram menores no grupo com silenciamento de FOXD1 (Figura 6A), suas curvas de crescimento aumentaram mais lentamente (Figura 6B) e seus pesos finais foram menores (Figura 6C). A coloração para FOXD1 e Ki-67 também foi reduzida nos tumores com silenciamento (Figura 6D). Esses experimentos avaliam apenas o silenciamento de FOXD1; eles não testam a inibição de METTL3 in vivo.
Em conjunto, FOXD1 foi superexpresso em tecidos e células de carcinoma de pulmão de células escamosas e promoveu a proliferação, migração e crescimento de xenografte. A diminuição de METTL3 reduziu os níveis globais de m6A, diminuiu a expressão de FOXD1 e prejudicou fenótipos celulares malignos, enquanto a reexpressão de FOXD1 reverteu parcialmente esses efeitos. Os ensaios de estabilidade apoiam a regulação pós-transcricional de FOXD1 associada a METTL3, mas não estabelecem metilação direta em sítios específicos ou o resgate in vivo de toda a via. O delineamento do estudo é resumido na Figura 7.
DISPONIBILIDADE DE DADOS:
Todos os dados analisados neste estudo estão incluídos no artigo e nas suas figuras. Os dados numéricos com identificação removida que sustentam os resumos relatados estão disponíveis mediante solicitação razoável ao autor correspondente, sujeitos às exigências institucionais de governança e de proteção aos participantes. Nenhum arquivo de simulação ou código personalizado de análise foi utilizado.
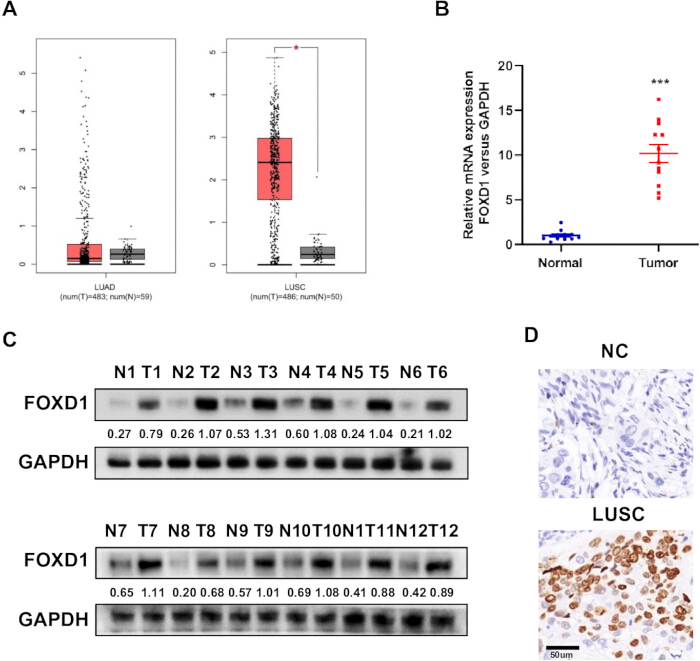
Figura 1: Expressão de FOXD1 em amostras de câncer de pulmão humano. (A) Comparação pelo GEPIA da abundância de transcritos de FOXD1 em adenocarcinoma de pulmão (LUAD) e carcinoma de células escamosas de pulmão (LUSC) versus amostras normais de pulmão. (B) Abundância de transcritos de FOXD1 em 12 pares de tecidos de LUSC e tecidos não tumorais adjacentes. (C) Abundância de proteína FOXD1 nos mesmos tecidos pareados. (D) Imunohistoquímica representativa de FOXD1. Número de pares de tecidos humanos = 12; repetições técnicas no estilo in vitro não alteram o valor de n ao nível do paciente. Barra de escala no painel D = 50 µm. ***P < 0,001. Clique aqui para visualizar uma versão maior desta figura.
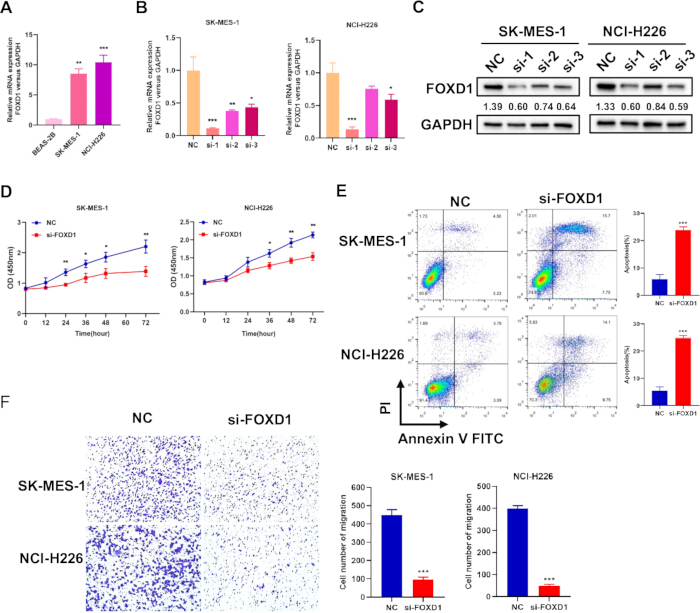
Figura 2: Efeitos do silenciamento de FOXD1 em células SK-MES-1 e NCI-H226. (A) Abundância do transcrito de FOXD1 em células BEAS-2B, SK-MES-1 e NCI-H226. (B) Triagem por qRT-PCR de três RNAs interferentes pequenos direcionados a FOXD1, 48 h após a transfeção. (C) Triagem por Western blot dos mesmos três RNAs interferentes pequenos direcionados a FOXD1. (D) Ensaio com o kit de contagem celular-8 após o silenciamento de FOXD1. (E) Análise de apoptose com anexina V–isotiocianato de fluoresceína/iodeto de propídio após 48 h. (F) Migração em Transwell medida 24 h após a semeadura das células transfectadas; as imagens arquivadas do campo de visão são apresentadas sem barra de escala retrospectiva, pois os metadados de calibração estavam indisponíveis. Três experimentos biológicos independentes foram realizados. *P < 0,05; **P < 0,01; ***P < 0,001. Clique aqui para visualizar uma versão maior desta figura.
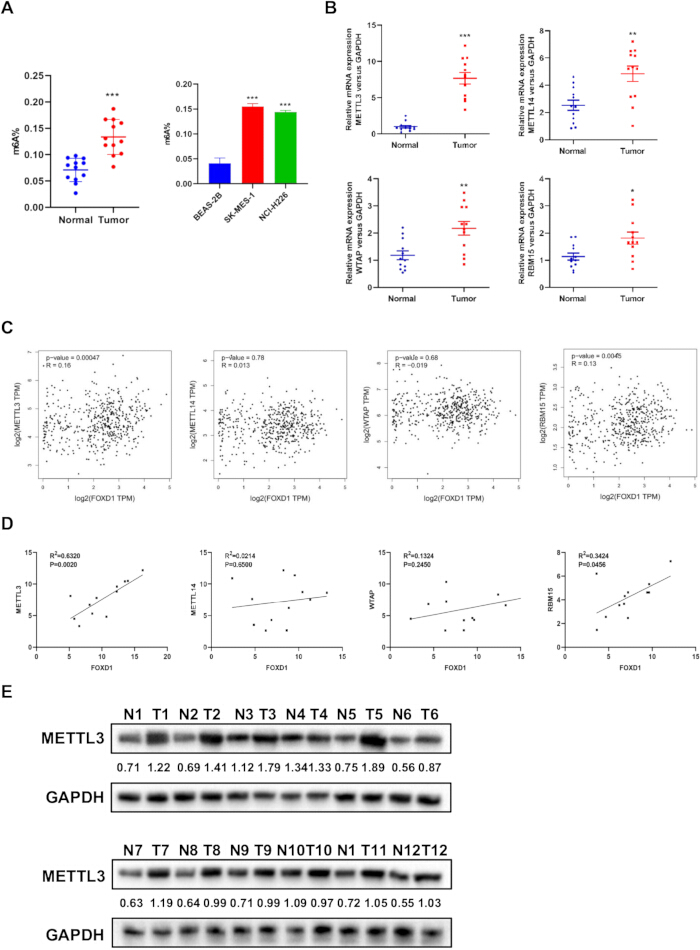
Figura 3: N6-metiladenosina global e a associação entre METTL3 e FOXD1. (A) Sinal global de m6A em tecidos pareados e nas células BEAS-2B, SK-MES-1 e NCI-H226. (B) Transcritos de METTL3, METTL14, WTAP e RBM15 em 12 pares de tecidos de CECP e tecidos adjacentes. (C) Correlações GEPIA entre FOXD1 e cada enzima metiltransferase. (D) Correlações entre FOXD1 e os transcritos das enzimas metiltransferases em 12 tumores de CECP. (E) Proteína METTL3 em tecidos de CECP pareados e tecidos adjacentes. Número de pares de tecidos humanos = 12; os ensaios celulares representam três experimentos biológicos independentes. *P < 0,05; **P < 0,01; ***P < 0,001. Clique aqui para visualizar uma versão ampliada desta figura.
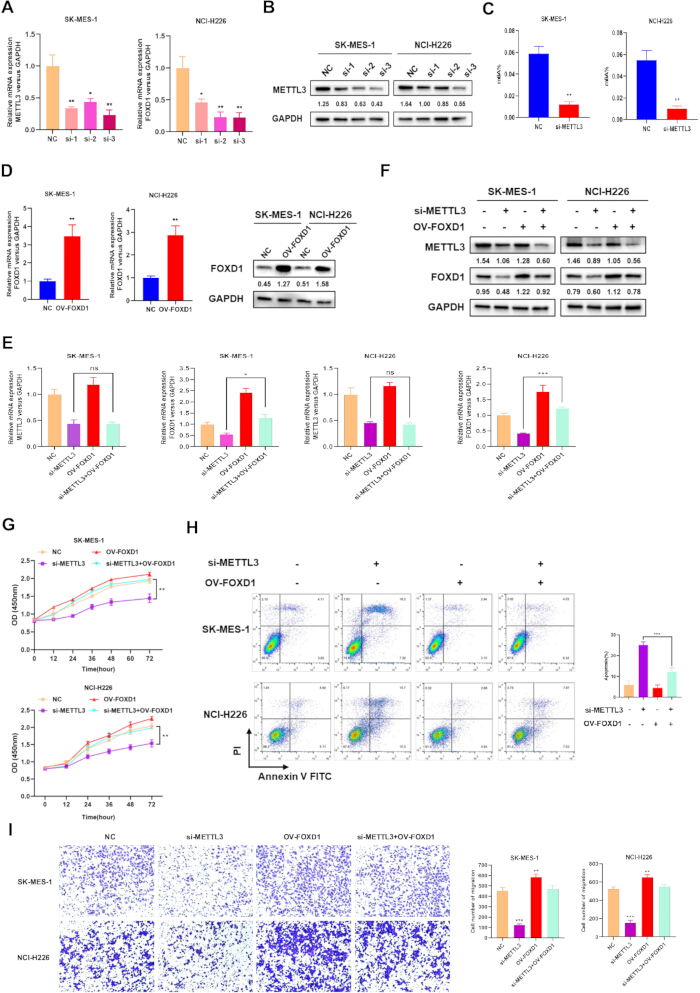
Figura 4: Silenciamento de METTL3, resgate de FOXD1 e fenótipos de células de LUSC. (A) Triagem por qRT-PCR de três RNAs interferentes pequenos direcionados ao METTL3, 48 h após a transfeção. (B) Triagem por western blot dos mesmos três RNAs interferentes pequenos direcionados ao METTL3. (C) Sinal global de m6A após o silenciamento de METTL3. (D) Abundância do transcrito e da proteína FOXD1 após superexpressão de FOXD1. (E) Abundância dos transcritos de METTL3 e FOXD1 nas condições controle, si-METTL3, ov-FOXD1 e si-METTL3 + ov-FOXD1 combinadas, medida por qRT-PCR. (F) Abundância proteica de METTL3 e FOXD1 nos mesmos grupos de resgate, medida por western blot. (G) Ensaio com o Kit Cell Counting Kit-8. (H) Apoptose por citometria de fluxo. (I) Migração em Transwell. Três experimentos biológicos independentes foram realizados. Os números abaixo das bandas do western blot indicam as razões normalizadas entre a proteína-alvo e a GAPDH. ns, não significativo; *P < 0,05; **P < 0,01; ***P < 0,001. Clique aqui para visualizar uma versão ampliada desta figura.
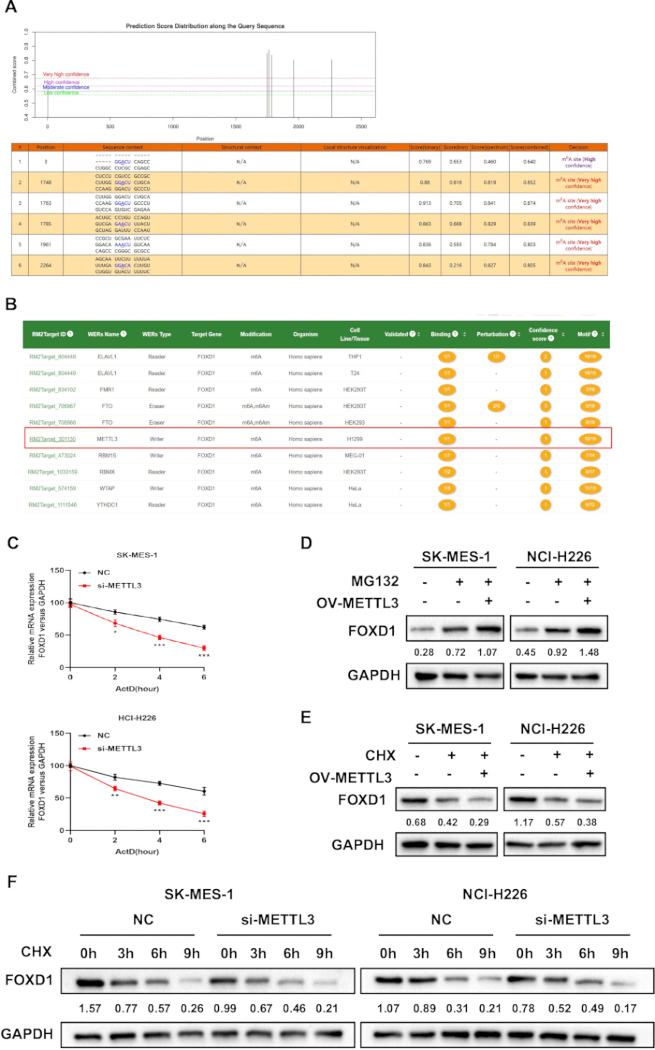
Figura 5: METTL3 está associado à regulação do transcripto e da proteína FOXD1. (A) Sítios de N6-metiladenosina previstos pelo SRAMP dentro do transcripto FOXD1. (B) Previsão por m6A2Target identificando METTL3 como um escritor candidato associado ao FOXD1. (C) Abundância relativa de mRNA de FOXD1 após tratamento com actinomicina D a 5 µg/mL em células controle negativo e com redução de METTL3 nos tempos de 0 h, 2 h, 4 h e 6 h. (D) Abundância da proteína FOXD1 em células controle com vetor não tratadas, células controle com vetor tratadas com MG132 e células com superexpressão de METTL3 tratadas com MG132 (10 µM MG132). (E) Abundância da proteína FOXD1 em células controle com vetor não tratadas, células controle com vetor tratadas com CHX e células com superexpressão de METTL3 tratadas com CHX (20 µM CHX). (F) Expressão da proteína FOXD1 após tratamento com CHX a 20 µM por 0 h, 3 h, 6 h e 9 h em células controle negativo e com redução de METTL3. GAPDH foi utilizada como controle de carregamento. Os experimentos celulares foram realizados em três réplicas biológicas independentes. Os ensaios de blot mostrados são representativos; os números abaixo das bandas indicam as razões normalizadas de FOXD1/GAPDH. *P < 0,05; **P < 0,01; ***P < 0,001. Clique aqui para visualizar uma versão maior desta figura.
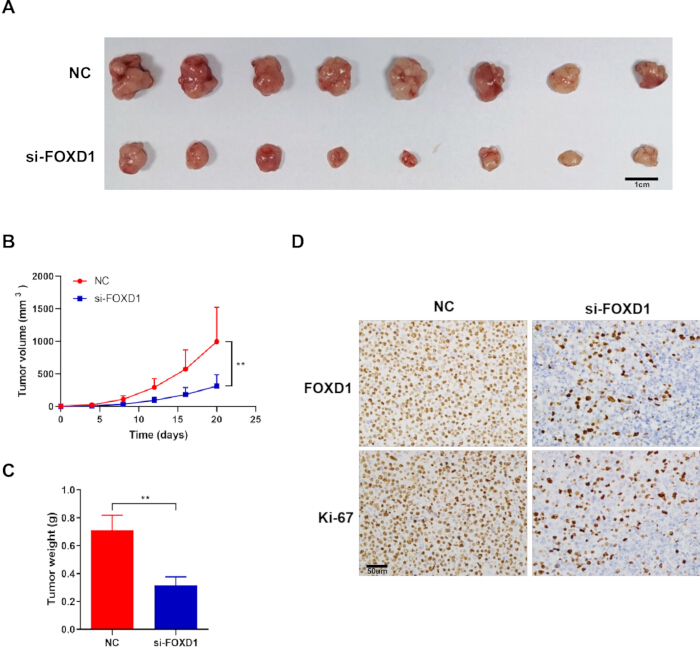
Figura 6: A supressão de FOXD1 inibe o crescimento de xenografias de SK-MES-1. (A) Tumores removidos dos grupos controle negativo e com supressão de FOXD1; barra de escala = 1 cm. (B) Crescimento tumoral medido a cada 4 dias durante 20 dias, iniciando 1 semana após a implantação, com coleta no dia 27 após a inoculação. (C) Peso tumoral na coleta. (D) Imunohistoquímica representativa de FOXD1 e Ki-67 em tecido de xenograftia; barra de escala = 50 µm. n = 8 camundongos por grupo; **P < 0,01. Clique aqui para visualizar uma versão maior desta figura.
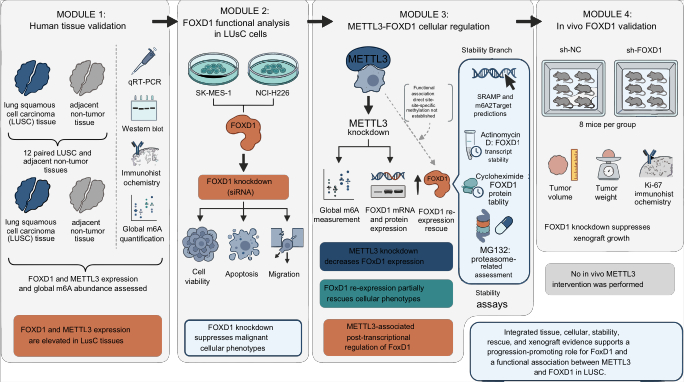
Figura 7: Desenho geral do estudo e limites das evidências. Tecidos LUSC pareados (n = 12 pares) e linhagens celulares foram utilizados para perfis de FOXD1, METTL3 e m6A global; após perturbação genética e experimentos de resgate, foram realizados ensaios de viabilidade, apoptose, migração e estabilidade. Um modelo de xenotransplante com silenciamento de FOXD1 (n = 8 camundongos por grupo) foi monitorado por 20 dias. O diagrama distingue as evidências baseadas em células para METTL3 das evidências específicas de FOXD1 in vivo e identifica a ligação direta, a metilação m6A em sítios específicos, a identidade do leitor e a atividade de METTL3 in vivo como não testadas. Clique aqui para visualizar uma versão maior desta figura.
| Gene | Sentido | Sequência (5′–3′) |
| FOXD1 | Sentido | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Antissentido | CGGAATCGGACGCAAGTCTT |
| GAPDH | Sentido | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Antissentido | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Sentido | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Antissentido | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Sentido | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Antissentido | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Sentido | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Antissentido | CACTTAAAACACCGGCATTGG |
| WTAP | Sentido | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Antissentido | CTGCTGGACTTGCTTGAGGTAC |
Tabela 1: Sequências de iniciadores para reação de polimerase em cadeia com transcrição reversa quantitativa. As sequências são apresentadas na direção 5′–3′.
Discussão
O fluxo de trabalho atual apoia um papel para o FOXD1 no LUSC em tecidos pareados, duas linhagens celulares e um modelo de xenoenxerto. O FOXD1 apresentou níveis mais elevados em espécimes tumorais e células de LUSC, e sua redução diminuiu a viabilidade e a migração, enquanto aumentou a apoptose. Esses achados estão de acordo com relatos que associam o FOXD1 ao crescimento, invasão, resistência terapêutica e desfechos adversos em diversos tipos de câncer 10,11,12,13,21,22,23,24,25,26,27,28. Eles também ampliam observações prévias em LUSC ao conectar fenótipos baseados em células com um experimento de xenoenxerto com silenciamento de FOXD1.
As análises pareadas de tecidos e células associaram ainda mais a abundância de FOXD1 com METTL3 e m6A global. Quatro genes escritores estavam elevados nos 12 pares de tumores, mas METTL3 apresentou a associação positiva mais forte com FOXD1. Em células cultivadas, a diminuição de METTL3 reduziu o m6A global e a abundância de FOXD1, e a reexpressão de FOXD1 resgatou parcialmente os fenótipos associados de viabilidade, apoptose e migração. Esses dados sustentam uma relação funcional entre METTL3 e FOXD1 nas células testadas, consistente com a ampla influência da regulação de m6A sobre fenótipos malignos29,30,31,32,33,34,35,36.
Vários pontos do protocolo são importantes para a reprodutibilidade. A eficiência do silenciamento gênico deve ser confirmada em cada linhagem celular antes dos ensaios funcionais, e as condições de resgate devem verificar a restauração de FOXD1 sem interpretar o construto como superexpressão de METTL3. Os tratamentos com actinomicina D, CHX e MG132 devem utilizar as concentrações e tempos de coleta indicados no protocolo. A densidade celular, o gradiente de soro e um campo de imagem consistente devem ser controlados nos ensaios de Transwell. Se um pesquisador adaptar o fluxo de trabalho, o uso de RNA em curto cabelo estável ou edição genômica pode ser preferível para experimentos in vivo de longa duração, mas essas alternativas exigem validação independente.
O estudo possui várias limitações. A coorte humana compreendeu 12 amostras pareadas e não foi planejada para modelagem de resultados. Apenas um pequeno RNA interferente selecionado foi levado aos ensaios funcionais, de modo que a validação de efeitos fora do alvo independentes da sequência não foi alcançada. A interpretação do western blot restringe-se aos valores normalizados apresentados nas figuras; testes inferenciais pós-hoc não foram realizados. As previsões do SRAMP e do m6A2Target, as medidas globais de m6A e os ensaios de estabilidade não substituem a imunoprecipitação de RNA, a imunoprecipitação de RNA metilado, a mutagênese direcionada a sítios específicos ou o resgate específico de leitores. O METTL3 não foi perturbado in vivo, portanto os dados de xenotransplante não sustentam uma afirmação sobre METTL3 in vivo.
Estudos futuros devem testar a inibição farmacológica da METTL3, mapear os sítios de m6A associados à FOXD1 e sua ligação direta, identificar a proteína leitora relevante e repetir a estratégia de resgate in vivo. Também seria necessário um coorte maior e independentemente anotado para avaliar os desfechos clínicos. Dentro de seu escopo atual, o estudo apoia a FOXD1 como um regulador funcional do LUSC e fornece evidências baseadas em células de que a METTL3 influencia a abundância da FOXD1; no entanto, não estabelece uma via completa METTL3-m6A-leitora-FOXD1.
Divulgações
Os autores declaram que não possuem conflito de interesse.
Contribuições dos Autor es:
D.A. e Q.D. contribuíram com a coleta de dados e a aquisição de informações clínicas. K.W. e S.F. realizaram experimentos de biologia molecular e análise de dados. L.G. participou do planejamento do estudo e da interpretação dos dados. H.Z. realizou a análise estatística e auxiliou na validação dos dados. Y.S. conduziu os experimentos com animais e a análise imunohistoquímica. Q.P. contribuiu com os ensaios de migração e com os recursos experimentais. G.L. concebeu e supervisionou o estudo e redigiu o manuscrito. Todos os autores revisaram, modificaram e aprovaram o manuscrito.
Agradecimentos
Os autores agradecem a Zhe Tang e Yan Zhang pela assistência técnica com a reação em cadeia da polimerase quantitativa e o western blotting, respectivamente, e a Yang Li pela assistência com os ensaios de viabilidade celular e apoptose. Esta pesquisa foi financiada pela Fundação de Ciências Naturais da Região Autônoma do Tibete (nº XZ202001ZR0040G).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Sistema 7500 Fast de PCR em Tempo Real | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| Actinomicina D | Sigma-Aldrich | SBR00013 | Ensaio de estabilidade de RNA, 5 µg/mL |
| Kit de apoptose Annexina V-FITC/PI | BD Biosciences | 556547 | Apoptose por citometria de fluxo |
| Murinos nus BALB/c atímicos | N/A | N/A | Xenotransplante subcutâneo |
| BEAS-2B | Banco de Células da Academia Chinesa de Ciências | https://www.cellosaurus.org/CVCL_0168 | Referência de epitélio brônquico não tumoral; RRID: CVCL_0168 |
| Kit de contagem celular-8 | Beyotime | C0037 | Viabilidade celular |
| Violeta de cristal | N/A | N/A | Coloração em Transwell, 10 min |
| Cicloeximida | MedChemExpress | HY-12320 | Ensaios de estabilidade proteica, 20 µM |
| Kit de substrato DAB | N/A | N/A | Visualização em imunohistoquímica |
| Meio de Eagle modificado por Dulbecco | Gibco | 11995065 | Cultivo celular |
| Reagente de quimioluminescência aprimorado | Thermo Fisher Scientific | A38556 | Detecção em Western blot |
| Soro bovino fetal | Gibco | 10091148 | Cultivo celular, 10% |
| Citômetro de fluxo | N/A | N/A | Medição de apoptose |
| Anticorpo contra FOXD1 | Thermo Fisher Scientific | PA5-27142 | Western blot, 1:1.000; imunohistoquímica |
| Construto de superexpressão de FOXD1 | N/A | N/A | Recuperação de FOXD1 |
| Anticorpo contra GAPDH | Cell Signaling Technology | 5174 | Controle de carga em Western blot, 1:2.000 (RRID: AB_10622025) |
| GEPIA | Universidade de Pequim | http://gepia.cancer-pku.cn/ | Consultas de expressão e correlação; RRID: SCR_018294 |
| GraphPad Prism | GraphPad Software | Versão 8 | Análise estatística; RRID: SCR_002798 |
| Imunoglobulina G anti-coelho conjugada com peroxidase do rábano silvestre | N/A | N/A | Western blot, 1 h à temperatura ambiente |
| ImageJ | Institutos Nacionais de Saúde | https://imagej.nih.gov/ij/ | Quantificação de imagens de migração; RRID: SCR_003070 |
| Anticorpo contra Ki-67 | N/A | N/A | Imunohistoquímica em xenotransplante |
| m6A2Target | Recurso Web | http://m6a2target.canceromics.org/ | Associação predita entre regulador e alvo de m6A |
| Anticorpo contra metiltransferase-like 3 | Proteintech | 15073-1-AP | Western blot, 1:1.000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Ensaio de inibição do proteassoma, 10 µM |
| Ensaio colorimétrico de N6-metiladenosina | Epigentek | P-9005-96 | Medição global de m6A |
| NCI-H226 | Banco de Células da Academia Chinesa de Ciências | https://www.cellosaurus.org/CVCL_1544 | Modelo celular de LUSC; RRID: CVCL_1544 |
| Microscópio Olympus | Olympus | Modelo não registrado | Imagem em Transwell |
| Penicilina-estreptomicina | Gibco | 10378016 | Cultivo celular, 1% |
| Membrana de fluoreto de polivinilideno | Merck | IPVH00010 | Transferência em Western blot |
| Kit de reagentes de transcrição reversa PrimeScript | Takara | RR037A | Síntese de DNA complementar |
| Projeto R para Computação Estatística | Fundação R | https://www.r-project.org/ | Análise estatística; RRID: SCR_001905 |
| Tampão de lise para ensaio de imunoprecipitação por radioimunoensaio | Beyotime | P0013B | Extração proteica |
| RNAiso Plus | Takara | 9108 | Extração de RNA |
| Reagentes de siRNA | N/A | N/A | Silenciamento de FOXD1 e METTL3; siRNA-1 selecionado |
| SK-MES-1 | Banco de Células da Academia Chinesa de Ciências | https://www.cellosaurus.org/CVCL_0630 | Modelo celular e de xenotransplante de LUSC; RRID: CVCL_0630 |
| SRAMP | Recurso Web | http://www.cuilab.cn/sramp | Previsão de sítios candidatos de m6A em FOXD1 |
| Master mix TB Green para PCR | Takara | RR820A | qRT-PCR |
| Reagente de transfeção | N/A | N/A | Entrega de siRNA e plasmídeo |
| Insertos Transwell | N/A | N/A | Ensaio de migração |
Referências
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.