Apresentamos um fluxo de trabalho de redução por emissão estimulada tridimensional (STED 3D) que combina ensaios de captação e perturbação farmacológica para visualizar o tráfego de proteínas de membrana em discos imaginais de asas de Drosophila intactos com resolução super-resoluta quase isotrópica.
Artigo de método
Visualizando o Tráfego de Proteínas em Contexto de Tecido Inteiro Utilizando Nanoscopia de Super-Resolução em Drosophila
Neste artigo
Resumo
Resumo
A mosca-das-frutas Drosophila melanogaster é amplamente utilizada para estudar vias de sinalização celular e desenvolvimentais conservadas in vivo. Muitas vias de sinalização, incluindo a sinalização Wnt, dependem de eventos rigorosamente regulados de secreção, endocitose e tráfego intracelular. No entanto, visualizar a dinâmica de proteínas associadas à membrana em tecidos epiteliais intactos, como os discos imaginais das asas, permanece desafiador devido ao pequeno tamanho e à organização densamente empacotada em coluna dessas células. Aqui, apresentamos um protocolo que combina nanoscopia tridimensional por emissão estimulada de depleção (3D STED) com ensaios de captação e perturbações farmacológicas em discos imaginais das asas de Drosophila. Este fluxo de trabalho permite a obtenção de imagens em super-resolução da dinâmica de proteínas associadas à membrana dentro da arquitetura tecidual intacta, com resolução quase isotrópica. Usando células secretoras de Wingless como exemplo, visualizamos a localização e o tráfego de Wingless (Wg) na membrana apical. Para analisar processos dinâmicos de tráfego, o fluxo de trabalho de imagem é combinado com um ensaio de captação que rotula seletivamente proteínas em processo de secreção e reinternalização dentro de uma janela de tempo definida. Em combinação com inibidores químicos e visualização por nanoscopia 3D STED, esta abordagem permite a análise funcional da dinâmica do tráfego de membrana. Em conjunto, este fluxo de trabalho fornece uma estrutura versátil para o estudo da organização da membrana e do tráfego de proteínas em resolução subcelular em amostras completas de tecidos de Drosophila.
Introdução
A mosca-das-frutas Drosophila melanogaster é um organismo modelo amplamente utilizado em biologia do desenvolvimento, evolução, comportamento e pesquisa biomédica, incluindo o estudo do câncer e outras doenças humanas1,2. Muitas vias de sinalização celular fundamentais são altamente conservadas entre Drosophila e vertebrados, tornando este sistema modelo particularmente valioso para investigar mecanismos biológicos conservados in vivo.
Neste protocolo, o disco imaginal da asa de Drosophila é utilizado como um sistema modelo para estudar a dinâmica associada à membrana na via de sinalização Wingless (Wg)/Wnt. Muitas vias de sinalização no desenvolvimento dependem da secreção rigorosamente regulada, localização na membrana, endocitose e tráfego intracelular de moléculas sinalizadoras3. Esse também é o caso no limite dorsoventral (DV) do disco imaginal da asa, onde Wg é secretado pelas células produtoras na membrana apical e transportado para células vizinhas receptoras por meio de interações com glicoproteínas4,5,6,7. Nas células receptoras, Wg liga-se aos receptores Frizzled e ativa a sinalização Wnt downstream. Além do pool de Wg que é transportado para longe do limite DV, uma fração de Wg é reinternalizada pelas células produtoras e direcionada através do sistema endossomal para destinos intracelulares distintos8,9,10. Assim, as células produtoras de Wg no limite DV fornecem um excelente modelo para investigar o tráfego de membrana, a dinâmica da secreção e os mecanismos celulares que regulam a atividade de sinalização in vivo.
No entanto, a arquitetura altamente colunar das células epiteliais dos discos imaginais dificulta a visualização, exigindo uma resolução mais alta e isotrópica do que a microscopia confocal convencional pode oferecer para resolver vesículas individuais. Para superar essas limitações, otimizamos as condições de preparação, coloração e imagem de tecidos para nanoscopia de super-resolução em tecidos intactos de Drosophila. Especificamente, estabelecemos um fluxo de trabalho para nanoscopia por esgotamento estimulado em três dimensões (3D STED) que permite a visualização ortogonal da localização de proteínas associadas à membrana ao longo do eixo apicobasal do epitélio11,12. O 3D STED é particularmente adequado para esta aplicação porque oferece uma resolução axial aprimorada em comparação com a microscopia confocal convencional, permitindo a visualização de estruturas subcelulares finas em tecidos densamente empacotados13,14. Utilizando esta abordagem, analisamos a região da membrana apical de células secretoras de Wg na borda DV do disco imaginal da asa e detectamos Wg na membrana apical juntamente com outras proteínas associadas à membrana, como Discs large 1 (Dlg1) ou Evenness interrupted/Wntless (Evi/Wls).
Para investigar mais profundamente a dinâmica do tráfego proteico, este fluxo de trabalho de imagem foi combinado com um ensaio de captação previamente estabelecido15. Este ensaio permite a detecção seletiva de proteínas que passaram por secreção e subsequente reinternalização dentro de uma janela de tempo definida, permitindo assim a visualização de um compartimento dinâmico de proteínas em trânsito pela membrana plasmática. Para ampliar sua utilidade, o ensaio de Captação foi combinado com perturbações farmacológicas, permitindo a análise de como processos celulares específicos influenciam a dinâmica do tráfego pela membrana. Em conjunto, essas abordagens fornecem uma estrutura poderosa para o estudo dos mecanismos de tráfego proteico, secreção e sinalização em seu contexto tecidual nativo com alta resolução espacial.
Além disso, o protocolo é compatível com uma ampla variedade de abordagens de coloração, incluindo protocolos-padrão de imunofluorescência. A incorporação de corantes fluorescentes também é viável, ampliando ainda mais a gama de estruturas celulares e alvos moleculares que podem ser visualizados. Em todos os casos, os fluoróforos devem ser escolhidos com base na compatibilidade com a nanoscopia STED. Embora o presente protocolo enfatize a imagem 3D STED de duas cores (vermelha e vermelha distante), o fluxo de trabalho pode ser facilmente adaptado a fluoróforos adicionais e configurações alternativas de imagem, aumentando assim sua flexibilidade para diversas aplicações experimentais.
Em conjunto, este protocolo estabelece uma estrutura versátil para combinar a nanoscopia de super-resolução STED com abordagens de perturbação funcional em tecidos intactos de Drosophila. O fluxo de trabalho fornece uma base para estudos futuros que investiguem a organização da membrana, o tráfego de proteínas e a dinâmica de sinalização com resolução subcelular em ambientes teciduais complexos.
Protocolo
1. Ensaio combinado de tratamento com inibidor ex vivo e captação
OBSERVAÇÃO: Consulte a Tabela de Materiais para obter informações detalhadas sobre os produtos químicos e materiais utilizados.
- Preparação de meios e soluções
- Prepare o meio SchM+.
- Adicione 4% de soro bovino fetal (FBS) ao meio para insetos de Schneider e misture bem.
OBSERVAÇÃO: O meio SchM+ deve ser preparado recentemente no dia do experimento.
- Adicione 4% de soro bovino fetal (FBS) ao meio para insetos de Schneider e misture bem.
- Prepare 1× PBS-T
- Adicione 0,1% de Triton X-100 a 1× salina tamponada com fosfato (PBS) e misture bem.
- Prepare soluções de compostos químicos.
ATENÇÃO: Muitos dos seguintes compostos químicos são considerados citotóxicos, e o manuseio cuidadoso em capela de exaustão com equipamentos apropriados e descarte adequado de resíduos é essencial.- Dynasor2-24: Dissolva o Dynasor2-24 (também conhecido como Dyngo-4a) em dimetilsulfóxido (DMSO), de acordo com as instruções do fabricante, para preparar uma solução estoque de 10 mM. Para o tratamento, dilua a solução estoque em 1:1000 ou 1:2000 em SchM+ para obter concentrações finais de 10 µM ou 5 µM, respectivamente.
- Controle de DMSO: Dilua DMSO 1:1000 em SchM+ e utilize 200 µL como controle negativo em cada experimento.
- Prepare o tampão ácido para o ensaio de captação.
- Prepare uma solução de 0,1 M de Glicina em dH₂O2O.
- Ajuste o pH para 3,5 com HCl a 37% (ácido clorídrico).
- Prepare o meio SchM+.
- Coleta de amostras
- Mantenha as moscas em 25 °C com um ciclo claro/escuro de 12/12 h.
- Coletar larvas do estágio larval 3 (L3) de frascos usando pinça e colocar em uma placa de vidro para coloração de 12 poços, sendo cada poço preenchido com SchM+.
OBSERVAÇÃO: Prepare quantidade suficiente de tecido para sempre incluir amostras controle em cada replicata experimental. - Abra as larvas na extremidade posterior e inverta-as.
- Remova o intestino e o corpo gorduroso do tecido larval invertido tão completamente quanto possível, mantendo o tecido submerso em SchM+.
- Em seguida, transfira o tecido para um tubo PCR de 0,2 mL contendo SchM+.
OBSERVAÇÃO: colocamos apenas 6-7 larvas invertidas por tubo de reação em cadeia da polimerase (PCR) para garantir a completa imersão e o livre movimento do tecido.
OBSERVAÇÃO: Deve-se evitar o excesso de tecido no tubo para prevenir artefatos durante a coloração. Consulte o Tabela de Materiais para informações detalhadas sobre os produtos químicos e materiais utilizados neste estudo.
- Ex vivo tratamento com inibidor e ensaio de captação
- Remova o meio SchM+ da amostra.
- Adicione a solução do composto químico previamente preparada conforme necessário, por exemplo, 200 µL de 5 µM Solução Dynasor2-24.
ATENÇÃO: Esses compostos químicos são considerados citotóxicos, e o manuseio cuidadoso em capela de exaustão com equipamentos apropriados e descarte adequado de resíduos é essencial. - Adicione 200 µL de solução de DMSO (1:1000) à amostra controle, representando um controle negativo.
- Para o ensaio de captação (Witte et al., 202115), adicione o anticorpo primário à solução do fármaco: para anti-Wg, utilize uma diluição de 1:20 para detecção de Wg, e para anti-GFP, para detecção de proteínas marcadas com proteína verde fluorescente (GFP), utilize uma diluição de 1:40.
- Incube as amostras à temperatura ambiente (TA) durante 90 min no escuro.
OBSERVAÇÃO: O ensaio de captação é opcional e pode ser facilmente excluído do protocolo, se não for necessário. Além disso, outros compostos químicos podem ser utilizados dependendo da questão experimental. Recomenda-se realizar uma titulação do composto para determinar a melhor concentração para cada aplicação específica. Consulte o Tabela de Materiais para informações detalhadas sobre os produtos químicos e materiais utilizados neste estudo.
- Fixação da amostra
- Remova a solução de coloração do passo 1,3 imediatamente após o tempo de incubação.
- (Opcional) Lave as amostras duas vezes com 200 µL de SchM+
- Para a remoção adequada do anticorpo primário do ensaio de captação, lave o tecido por 5 min com o tampão ácido à temperatura ambiente (TA).
- Lave rapidamente 3 vezes× por 3 min com SchM+
- Fixe as amostras em 4% de formaldeído em SchM+ durante 30 min à temperatura ambiente.
- Incubação com anticorpo primário
OBSERVAÇÃO: Se um anticorpo primário adicional for necessário juntamente com o anticorpo utilizado no ensaio de captação, ele deve ser aplicado nesta etapa e processado de acordo com os procedimentos-padrão de coloração em imunohistoquímica.- Bloqueie o tecido com soro normal de cabra a 4% em 1× PBS-T por pelo menos 30 min a temperatura ambiente sob agitação suave.
- Remova a solução bloqueadora.
- Adicione a solução de anticorpo primário em 1× PBS na concentração desejada (exemplos: anti-wg em 1:200, anti-dlg1 em 1:50 ou anti-GFP em 1:200, ou qualquer outro anticorpo necessário)
- Incubar amostras a 4 °C durante a noite sob agitação suave.
- (Opcional) Incubar com o anticorpo primário por pelo menos 1,5 h à temperatura ambiente sob agitação suave.
- OBSERVAÇÃO: Consulte o Tabela de Materiais para informações detalhadas sobre os produtos químicos e materiais utilizados neste estudo.
- Incução com anticorpo secundário
- Remova a solução de anticorpo primário.
OBSERVAÇÃO: Utilize a solução do anticorpo primário em 1× O PBS pode ser reutilizado várias vezes quando armazenado em um tubo de reação novo de 1,5 mL a 4 °C. - Lavar o tecido 3 vezes× 10 min em 1× PBS-T com agitação suave.
Adicione os anticorpos secundários desejados na diluição de 1:200 em 1× PBS-T com coloração nuclear contraste de Hoechst33342 na diluição de 1:2000. Os anticorpos secundários para STED incluem anticorpo de galinha anti-murino Alexa Fluor 594, anticorpo de cabra anti-coelho Alexa Fluor 594, anticorpo de cabra anti-coelho STAR635P e anticorpo de cabra anti-murino STAR635P. Consulte o Tabela de Materiais para informações detalhadas sobre os produtos químicos e materiais utilizados neste estudo. - Incubar no anticorpo secundário durante a noite a 4 °C (Opcional: incubar por pelo menos 1,5 h sob agitação suave à temperatura ambiente).
- Lave o tecido no dia seguinte 3× 10 min em 1× PBS-T com agitação suave. As amostras estão agora prontas para serem montadas para imagem por STED. Veja todo o fluxo de trabalho Figura 1.
OBSERVAÇÃO: A ótica dos microscópios é tipicamente projetada para 23 °C operação, salvo se outras condições forem necessárias. A estabilidade térmica é crítica, pois flutuações provocam deriva térmica e podem afetar o tempo de laser. Uma temperatura ambiente estável entre 20–23 °C (≤ ±±1 °C recomenda-se flutuações)16., com 21,5–22 °C compensando frequentemente o calor gerado pelo microscópio. Todos os componentes do microscópio devem atingir o equilíbrio térmico antes da aquisição de imagens. Incubadoras de platina oferecem controle preciso da temperatura da amostra, mas as estruturas fechadas podem aprisionar calor e aumentar a deriva. O resfriamento ativo melhora a estabilidade. Neste estudo, uma incubadora personalizada (EMBL Heidelberg) manteve uma temperatura de 21,5 ±± 0.05 °C, minimizando a deriva térmica e garantindo desempenho estável de STED em 3D.
- Remova a solução de anticorpo primário.
2. Preparação da amostra para nanoscopia de super-resolução 3D STED e imageamento
- Preparação de equipamentos e materiais:
- Configure o microscópio.
- Certifique-se de usar um microscópio apropriado para o experimento. Aqui, foi utilizado o microscópio Leica Stellaris 8 STED Falcon.
- Use um objetivo apropriado. Aqui, foi utilizado o objetivo HC PL APO 86x/1,20 W motCORR STED white.
- Para permitir uma imagem adequada, ligue todo o conjunto do microscópio pelo menos 2 h antes da aquisição de imagens (veja a NOTA após o passo 1.6.4).
- Prepare placas revestidas com poli-L-lisina.
- Prepare uma solução de poli-L-lisina com 0,6% de poli-L-lisina e 0,002% de Photo Flo em H2O dH. Aliquote a solução e armazene-a a longo prazo a -20 °C. Após o descongelamento, mantenha-a a 4 °C e reutilize até 10 vezes.
- Adicione 200 µL da solução de poli-L-lisina ao fundo de lamínula de vidro 1,5H de uma placa µ (∅35 mm).
- Coloque as placas inclinadas verticalmente para secar.
- Após a solução de poli-L-lisina secar completamente, repita o revestimento mais uma vez.
- Cuidadosamente, adicione espaçadores de esmalte de unha em dois lados do fundo de lamínula de vidro.
- Após o montagem, cubra as amostras com lamínulas redondas 1,5H (∅12 mm) (veja Figura 2).
- Configure o microscópio.
- Configuração de montagem para STED 3D
- NOTA: Para a nanoscopia STED 3D (veja a NOTA após o passo 2.2.12), é essencial que os índices de refração entre o objetivo STED e o meio de montagem sejam compatíveis (exemplo aqui: objetivo a óleo e meio de montagem PBS 1×).
- Coloque as amostras em uma pequena placa de Petri preenchida com PBS 1×.
- Adicione 15 µL de PBS 1× em forma de gota sobre a placa previamente revestida com poli-L-lisina.
- Disseque os discos imaginais das asas do tecido larval remanescente e coloque-os em uma gota de PBS 1× de 15 µL.
- Certifique-se de que os discos das asas estejam aderidos à lamínula revestida e não flutuando.
- Não pressione os discos com força; deixe-os descer suavemente até a lamínula. Para a orientação correta, certifique-se de que os discos das asas sejam montados com a membrana peripodal voltada para baixo, em direção à lamínula.
- Após a montagem, cubra as amostras com lamínulas redondas 1,5H (∅12 mm).
- Certifique-se de que as bordas da lamínula estejam apoiadas nos espaçadores de esmalte de unha previamente aplicados para evitar esmagamento da amostra.
- Selar a lamínula com esmalte de unha em todos os lados para evitar a evaporação do meio de montagem.
- Mantenha as placas no escuro até a aquisição final de imagens.
- Ajuste a temperatura da amostra à temperatura da câmara de incubação do microscópio colocando a amostra na câmara de incubação pelo menos 30 min antes da aquisição de imagens no microscópio.
- Para evitar qualquer movimento da amostra, estabilize a placa no suporte do microscópio com um adesivo sensível à pressão (por exemplo, Blu Tack).
NOTA: Os termos STED 2D e STED 3D descrevem o tipo de melhoria de resolução, não se uma única imagem ou um z-stack é adquirido12,17. O STED 2D melhora apenas a resolução lateral (x,y), tipicamente para <50 nm, enquanto a resolução axial (z) permanece semelhante à da microscopia confocal (~600 nm). É comparativamente robusto e geralmente tolera uma correspondência imperfeita de índice de refração entre a amostra e o meio de imersão do objetivo12. O STED 3D melhora tanto a resolução lateral quanto a axial, com uma melhoria particularmente acentuada ao longo do eixo z. Ao otimizar as condições do fluoróforo e de esgotamento STED, uma resolução quase isotrópica de ~100-120 nm pode ser alcançada em amostras biológicas17,18. No entanto, o padrão de esgotamento STED 3D é altamente sensível a aberrações esféricas. Portanto, a imagem bem-sucedida exige uma compatibilidade cuidadosa do índice de refração e um ajuste preciso do colar de correção do objetivo à espessura real da lamínula.
- Requisitos e configuração da nanoscopia
- Ligue todos os dispositivos do microscópio necessários conforme as instruções do fabricante.
- Ainda não ligue as chaves dos lasers.
- Defina a temperatura da câmara de incubação do microscópio para 22–23 °C pelo menos 1,5 h antes da aquisição de imagens.
- Coloque também a amostra na câmara do microscópio e permita que ela se ajuste à temperatura por pelo menos 30 min.
- Ligue o computador e abra o software LAS X (Versão 4.9.0).
- Selecione Imagem STED na janela de abertura e inicialize o software.
- Quando o software for carregado, ligue as chaves de segurança de ambos os lasers quando as luzes estiverem verdes.
- Vá até a aba Adquirir e selecione o objetivo STED apropriado (HC PL APO 86x/1,20 W motCORR STED).
- Vá até a aba Configuração e clique no botão de Configuração do laser.
- Clique em todos os controles deslizantes dos lasers para ligá-los ON.
- Vá até a aba Configuração e clique no botão para STED.
- Clique em Alinhar feixes.
- Repita o alinhamento dos feixes após 30 min e 2 h de aquisição de imagens para garantir um alinhamento ideal – repita posteriormente se necessário, por exemplo, quando uma queda na resolução ou um fundo mais alto for detectado.
- Alinhe o colar de correção (motorizado) do objetivo à espessura da lamínula usando o sinal de reflexão da superfície da lamínula:
- Vá até a aba Adquirir e comece a definir o valor motCORR.
- Crie um novo canal para fluorescência de GFP no modo confocal e foque nas células do espécime.
- Clique no botão Live e mova a amostra para uma posição onde não haja amostra.
- Pare a aquisição ao vivo.
- Certifique-se de que apenas o detector HyDS seja usado para este canal.
- Defina a configuração do Filtro Notch para Reflexão.
- Clique no botão Orientação e selecione Orientação xzy.
- Reduza a velocidade de aquisição ao vivo rápida para 100 Hz se a amostra parecer instável ou apresentar movimento no eixo z.
- Inicie a aquisição ao vivo clicando no botão Live Rápido.
- Localize a lamínula da amostra, que aparecerá como uma linha.
- Ajuste o valor motCORR até que o sinal dessa linha seja o mais nítido e estreito possível
NOTA: Com uma lamínula 1,5H, o valor geralmente está na faixa de 48–56%. - Agora comece a selecionar os canais para aquisição de imagens na aba Adquirir.
- Consulte Tabela 1 para as configurações de detecção de Alexa Fluor 594 e STAR635P no modo STED.
- Aquisição de imagens
- Selecione a área de imagem através das oculares do microscópio.
- Gire cuidadosamente a amostra para alinhar o limite DV verticalmente (Figura 2).
- Feche o obturador do microscópio e mude para a imagem confocal, operando o microscópio via computador.
- Clique no botão Live Rápido, ajuste o foco e verifique a orientação do limite DV.
- Pare a aquisição ao vivo.
- (Opcional) Tire uma imagem geral na orientação xyz no modo confocal (defina o laser STED para 0% em ambos os canais) para referência posterior nesta etapa. Ligue o laser STED após adquirir a imagem geral.
- Selecione a orientação xzy e ajuste a linha exibida à área exata para a imagem ortogonal.
- Clique no botão Live Rápido e ajuste o foco se necessário.
- Ajuste a posição x da amostra usando a roda z do microscópio.
- Certifique-se de que os lasers STED estejam ligados em ambos os canais e que todas as configurações estejam corretas.
- Clique em Iniciar Experimento.
- A intensidade por pixel (detector no modo de contagem de fótons) está entre 50 e 300 fótons detectados; isso também depende da potência do laser, tempo de permanência do pixel e número de acumulações de linha aplicadas. Se o módulo de medições de tempo de vida fluorescente (FLIM) (Falcon) estiver disponível, confirme que menos de um fóton por pulso do laser seja detectado.
- Ajuste os valores conforme necessário para a amostra individual.
- Dificuldades na nanoscopia STED
- Para visualizar uma área morfológica específica em STED 3D, gire e oriente a amostra no microscópio para alinhar o tecido precisamente com o eixo necessário antes de alternar da visão XY para a visão XZ. Alcance essa liberdade montando em placas redondas que podem ser movidas de acordo com os requisitos experimentais (Figura 2).
- Durante a varredura xz, a amostra é fisicamente movida ao longo do eixo z, o que inicialmente causava um leve movimento da placa no plano xy devido às oscilações ao longo do eixo vertical. Para evitar qualquer movimento da placa, fixe-a no suporte da amostra do microscópio com massa de fixação (Blu Tack). Isso permitiu rotação livre, ao mesmo tempo que evitou movimento vertical (eixo z).
- Para evitar a evaporação do meio de montagem e o ressecamento do tecido, as lamínulas foram seladas com esmalte de unha.
- Para evitar a deriva da amostra devido a diferenças de temperatura entre a amostra e o microscópio, leve as amostras à câmara de incubação do microscópio pelo menos 30 min antes da aquisição de imagens e permita que se ajustem à temperatura do microscópio16.
- Para a seleção do anticorpo secundário, siga os passos abaixo:
- Uma ampla gama de fluoróforos é adequada para imagem STED, mas apenas um subconjunto combina propriedades fotofísicas e espectrais favoráveis para STED de duas cores usando um único laser de esgotamento (aqui, 775 nm). Use um comprimento de onda de esgotamento STED para ambos os fluoróforos para garantir o alinhamento cromático intrínseco e eliminar a necessidade de correção de desvio cromático, definindo ambos os canais com o mesmo padrão de esgotamento STED.
- Os pares comuns de fluoróforos incluem STAR RED/STAR635P, ATTO 647N/ATTO 643, combinados com Alexa Fluor 594, STAR 580 ou STAR ORANGE18,19. Aqui, foi utilizada a combinação amplamente adotada de Alexa Fluor 594 e STAR635P. Embora seus espectros de emissão se sobreponham parcialmente, adquira os fluoróforos em modo linha por linha usando uma janela de detecção estreita para Alexa Fluor 594 para minimizar a interferência (veja Tabela 1). Como isso reduz a eficiência de detecção de Alexa Fluor 594, atribua a imunomarcação mais intensa a este canal.
Resultados
Para estabelecer condições adequadas de imagem para nanoscopia 3D por STED em discos imaginais de asas, realizamos primeiramente coloração padrão por imunofluorescência de Wg e da proteína associada à membrana apical Dlp. Wg foi detectado usando Alexa Fluor 594, enquanto Dlp foi marcado com STAR635P, dois fluoróforos compatíveis com nanoscopia por STED (Figura 3). As imagens foram adquiridas tanto sem esgotamento STED, para obter imagens de qualidade confocal, quanto com esgotamento STED, para imagens de super-resolução, utilizando as configurações descritas na etapa 2.3 (Figura 3).
A comparação direta da mesma região tecidual obtida em condições de confocal e STED como seções xz demonstrou o aumento substancial na resolução espacial proporcionado pela nanoscopia 3D STED (Figura 3A–D′). Estruturas que apareciam como sinais alongados nas imagens confocais (Figura 3A,A′ e Figura C,C′) foram resolvidas em múltiplos pontos distintos no modo STED (Figura 3B,B′ e Figura D,D′). Essa melhoria foi observada tanto nos canais Alexa Fluor 594 quanto STAR635P e foi utilizada para otimizar os parâmetros de marcação e de imagem, a fim de alcançar a melhor qualidade de sinal possível e uma resolução isotrópica em tecido de disco alar intacto.
Em seguida, combinamos o ensaio de captação de Wg15 com inibição farmacológica para investigar o tráfego de Wg na membrana apical e sua reciclagem por endocitose dependente de clatrina. Utilizamos uma linhagem de moscas com Wg::GFP marcado endogenamente20, permitindo a detecção de Wg::GFP extracelular com anticorpo anti-GFP, ao mesmo tempo que preservamos a compatibilidade com anticorpos adicionais derivados de camundongo.
Discos imaginais de asas foram tratados com Dynasore 2-24, um inibidor da dinamina que atua na endocitose dependente de clatrina e dinamina21,22, e posteriormente submetidos ao ensaio de captação de Wg. O Wg::GFP extracelular foi marcado com anticorpo anti-GFP para monitorar a internalização, enquanto a coloração com anti-Dlg1 foi utilizada para visualizar a morfologia do tecido. O Wg foi detectado com Alexa Fluor 594 e visualizado no modo STED, enquanto o Dlg1 foi marcado com STAR635P (Figura 4). Discos-controle tratados com DMSO mostraram internalização progressiva de Wg::GFP ao longo do ensaio de captação, com sinal endocitado detectado até uma profundidade de aproximadamente 14 µm (Figura 4A,A′). O experimento foi repetido independentemente duas vezes seguindo os protocolos descritos nas seções 1 e 2 (Figura 4B,C). Na primeira réplica, o tratamento com 5 µM de Dynasore2-24 aboliu completamente a captação de Wg (n = 4; Figura 4B,B′). Na segunda réplica, a internalização de Wg foi reduzida, mas não eliminada (n = 4; Figura 4C,C′), com a profundidade máxima de penetração diminuída para aproximadamente 5 µm.
Essa variabilidade é comumente observada em experimentos de inibição farmacológica e provavelmente reflete diferenças na eficácia do inibidor ou no tempo de ação. A inibição incompleta, a penetração limitada do inibidor nos tecidos, a recuperação da endocitose durante o ensaio ou os atrasos introduzidos pelas etapas de lavagem ácida e fixação podem todos contribuir para a internalização residual de Wg. Apesar disso, ambos os experimentos mostraram consistentemente uma redução acentuada na captação de Wg e na profundidade de penetração em comparação com os controles de DMSO, demonstrando a inibição bem-sucedida da endocitose. Esses resultados também enfatizam que o controle preciso do tempo em todo o protocolo é essencial para obter resultados reprodutíveis.
O sinal residual associado à membrana após a remoção ácida foi ocasionalmente observado e provavelmente representa moléculas de Wg::GFP que já haviam entrado nas depressões endocíticas iniciais e, portanto, estavam inacessíveis à remoção do anticorpo23,24,25.
Em conjunto, esses experimentos demonstram que a combinação do ensaio de captação de Wg com perturbação farmacológica e nanoscopia 3D por STED permite a visualização da dinâmica do tráfego de membrana em discos imaginais de asas intactos. Eles também identificam parâmetros-chave para a implementação bem-sucedida do protocolo, incluindo combinações apropriadas de fluoróforos e anticorpos, tratamento otimizado com inibidores, tempo rigoroso no ensaio de captação e montagem imediata das amostras antes da aquisição de imagens.
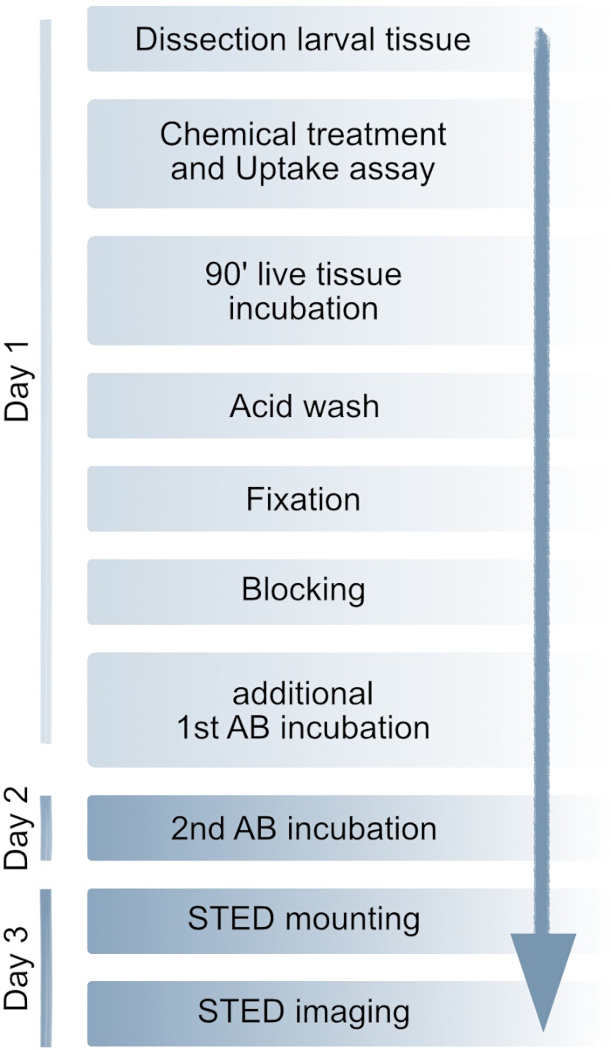
Figura 1: Fluxo do método. O protocolo completo pode ser concluído em até 3 dias. Opcionalmente, a incubação com anticorpo secundário pode ser realizada no mesmo dia. Procedimentos detalhados são fornecidos na seção Protocolo. AB: anticorpo. Clique aqui para visualizar uma versão maior desta figura.
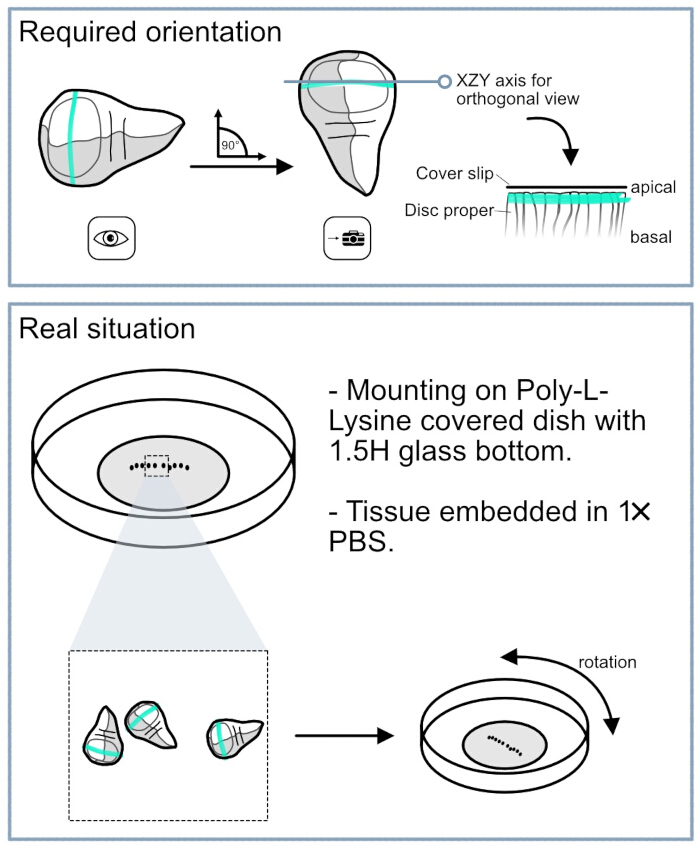
Figura 2: Desafios no montagem de discos alares de Drosophila para STED 3D. No painel superior, ilustra-se a orientação necessária dos discos alares. Para a análise de células secretoras de Wg, é essencial que o limite DV esteja alinhado perfeitamente na vertical na visão da ocular. Esse alinhamento permite que a visão da câmera seja girada para o plano ortogonal, possibilitando o direcionamento preciso da população celular desejada. O painel inferior mostra a configuração prática utilizada para manipular os discos alares durante a aquisição de imagens. Os discos alares foram montados em placas de Petri redondas com fundo de lamínula de vidro 1,5H. A superfície da lamínula foi revestida com poli-L-lisina para facilitar a adesão do tecido. O design circular da placa permite a rotação dentro do suporte do microscópio, possibilitando o alinhamento vertical preciso do limite DV, conforme exigido para a imagem. Clique aqui para visualizar uma versão maior desta figura.
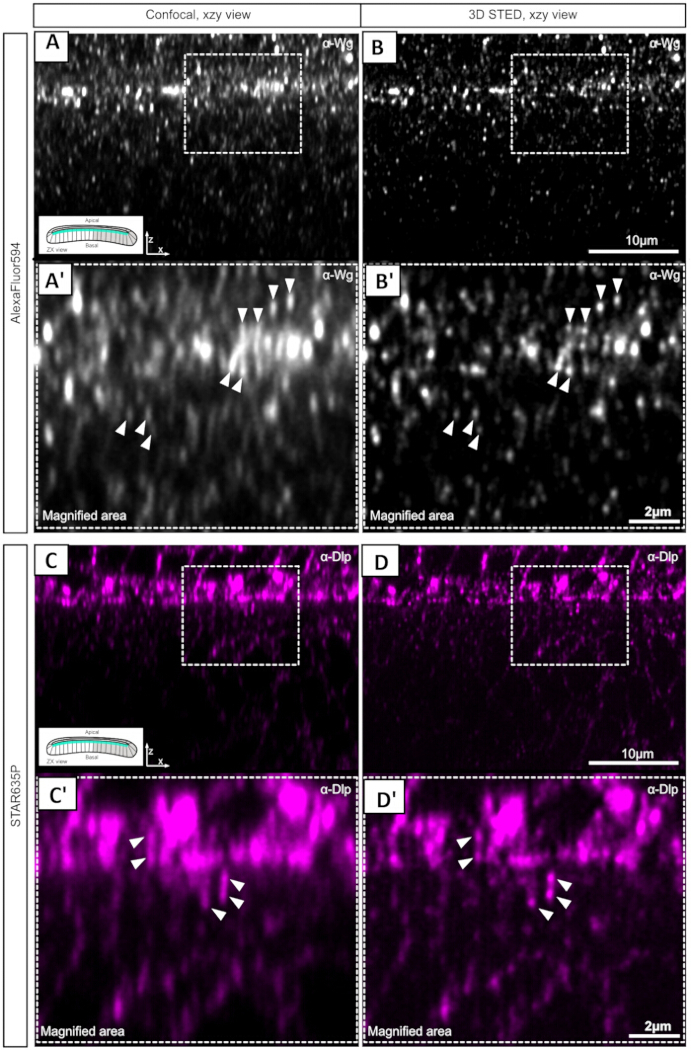
Figura 3: Comparação entre imagens confocal e STED 3D na fronteira DV de discos alares de Drosophila. (A) Imagem confocal de células secretoras de Wg na fronteira DV, mostrada no plano XZ. A marcação com anti-Wg foi detectada usando Alexa Fluor 594. (A’) Vista ampliada da região indicada, mostrando sinais alongados (cabeças de seta) na região da membrana apical. (B,B’) A mesma região obtida por nanoscopia STED 3D. O sinal de Alexa Fluor 594 é mostrado. Em comparação com a imagem confocal, a STED 3D resolve os sinais alongados em pontos distintos e revela múltiplos sinais individuais (cabeças de seta). (C) Imagem confocal do canal STAR635P do mesmo espécime mostrado em A e B. Como exemplo, Dlp foi detectado usando um anticorpo secundário conjugado a STAR635P, destacando a membrana apical. (C’) Vista ampliada mostrando sinais alongados na imagem confocal. (D) Imagem STED 3D da mesma região mostrada em C. (D’) Vista ampliada demonstrando que os sinais largos e alongados observados por microscopia confocal são resolvidos em pontos distintos pela imagem STED 3D. Clique aqui para visualizar uma versão maior desta figura.
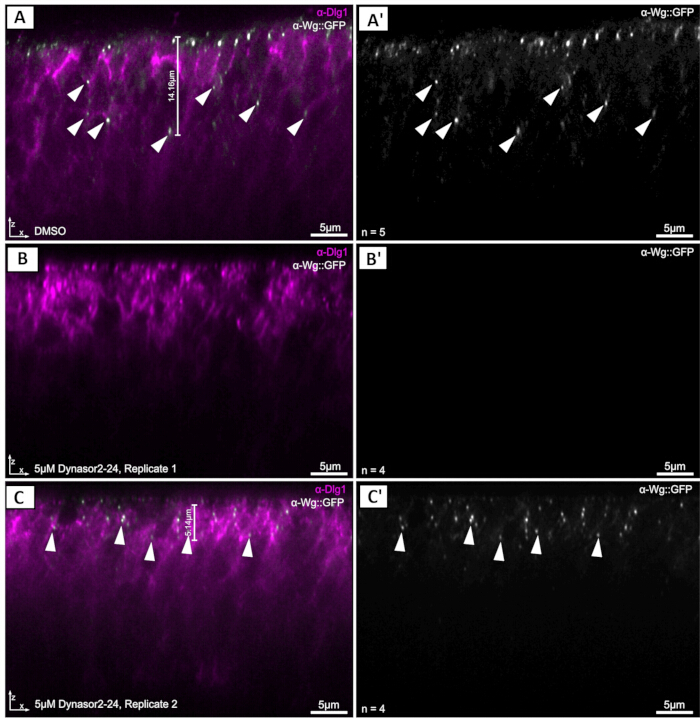
Figura 4: Combinação da inibição química com o ensaio de captação de Wg em discos imaginais de asas de Drosophila, visualizado por STED tridimensional. (A,A’) Disco controle tratado com DMSO representativo (n = 5). A proteína Wg::GFP extracelular (cinza) é eficientemente marcada, e a Wg::GFP internalizada é detectada no interior da célula (setas). Dlg1 (magenta) marca a morfologia tecidual e a região apical do disco propriamente dito. (B,B’) Amostra representativa da réplica 1 tratada com 5 µM de Dynasore2-24 para inibir a endocitose dependente de clatrina e dinamina (n = 4). O sinal de Wg::GFP é abolido após o ensaio de captação. (C,C’) Amostra representativa da réplica 2 tratada com 5 µM de Dynasore2-24 (n = 4). O sinal residual de Wg::GFP permanece detectável próximo à superfície apical (setas), mas o sinal intracelular está restrito aos primeiros aproximadamente 5 µm do tecido, em comparação com cerca de 14 µm nos controles tratados com DMSO (barras de medida em A e C). Dlg1 (magenta) serve como referência morfológica. Clique aqui para visualizar uma versão maior desta figura.
| Configurações | canal Alexa Fluor 594 | canal STAR635P |
| Objetivo | 86x/1,2 HC PL APO CS2 (água) | 86x/1,2 HC PL APO CS2 (água) |
| Tamanho do Pixel | 37 nm × 37 nm | 37 nm × 37 nm |
| Aumentar o zoom | 1.2 | 1.2 |
| Janela de detecção | 3072 × 1536 pixel | 3072 × 1536 pixel |
| Média da linha | 1 | 1 |
| Acúmulo linear | 16 | 16 |
| Velocidade de digitalização | 100–200 | 100–200 |
| Tamanho do orifício | 70 μm | 70 μm |
| Linha de laser de excitação | 580 nm | 638 nm |
| Intensidade da linha do laser de excitação | 4%–10% (depende da amostra) | 8%–10% (depende da amostra) |
| Detector | HyD X2, 595–625 nm | HyD X4, 650–740 nm |
| Laser de excitação com bloqueio de Tau | 0,5–8 ns | 0,5–8 ns |
| Linha do laser de esgotamento | 775 nm | 775 nm |
| Potência do laser de esgotamento | 65-75% (depende da amostra) | 65-75% (depende da amostra) |
| Pós-processamento de imagens baseado na vida útilτ-STED | τ-Força: 10 | τ-Força: 10 |
| τ-Supressão de Fundo: ativa | τ-Supressão de Fundo: ativa | |
| Suavização: 0 | Suavização: 0 |
Tabela 1: Configurações detalhadas do microscópio para fluoróforos em um microscópio STELLARIS SP8. Foram fornecidas as configurações utilizadas para os fluoróforos Alexa Fluor 594 e Star635P.
Discussão
A visualização do tráfego de membrana e da dinâmica de sinalização em tecidos intactos permanece um desafio técnico, particularmente em células epiteliais altamente polarizadas, como aquelas encontradas no disco imaginal da asa de Drosophila. A morfologia estreita e colunar dessas células limita as informações que podem ser obtidas por meio da microscopia confocal convencional, especialmente ao analisar a localização proteica ao longo do eixo apical-basal. Neste protocolo, superamos essas limitações combinando a nanoscopia 3D STED11,12 com ensaios de captação baseados em anticorpos e perturbações farmacológicas. Em conjunto, essas abordagens permitem a visualização de eventos dinâmicos de tráfego proteico no ambiente tecidual nativo com uma resolução espacial inatingível pela imagem confocal padrão.
Uma grande vantagem do fluxo de trabalho é o uso da nanoscopia 3D STED para investigar processos associados à membrana em tecidos inteiros. A comparação direta entre imagens confocais e STED demonstrou que sinais alongados observados por microscopia confocal puderam ser resolvidos em pontos distintos pela imagem 3D STED (Figura 3), melhorando substancialmente a visualização de proteínas na membrana apical. Essa resolução aumentada é particularmente valiosa para analisar vias de secreção, endocitose e tráfego intracelular, nas quais a localização precisa de vesículas individuais e complexos proteicos associados à membrana é essencial. Além disso, a capacidade de adquirir vistas ortogonais permite examinar a organização e o tráfego de proteínas ao longo do eixo apical-basal de células epiteliais.
A integração de perturbações farmacológicas com o ensaio de captação amplia ainda mais as possibilidades experimentais do método. Enquanto o ensaio de captação marca seletivamente proteínas que sofreram secreção e subsequente reinternalização dentro de uma janela de tempo definida, tratamentos farmacológicos permitem a perturbação de vias específicas de tráfego intracelular. A combinação dessas abordagens fornece, portanto, uma visão direta de como os processos celulares influenciam a dinâmica do tráfego proteico in vivo. Como demonstrado, a visualização de Wg::GFP captado sob inibição da endocitose dependente de clatrina resultou na perda do sinal internalizado da proteína marcada na membrana apical e/ou em uma redução do sinal intracelular de captação, ilustrando como o fluxo de trabalho pode ser usado para investigar mecanismos de tráfego no contexto fisiológico do tecido. De forma mais ampla, esta abordagem complementa estratégias genéticas clássicas e reforça ainda mais a utilidade de Drosophila como sistema modelo para estudos mecanicistas de vias de sinalização.
Vários fatores são fundamentais para a implementação bem-sucedida do protocolo. Primeiro, a escolha dos anticorpos primários é crucial, pois é necessária uma marcação robusta e específica para a detecção confiável do sinal. No entanto, a disponibilidade limitada de anticorpos validados contra proteínas endógenas de Drosophila continua sendo uma grande limitação. Neste protocolo, isso exigiu o uso de uma linhagem com Wg::GFP marcado endogenamente, já que muitos anticorpos comumente utilizados em Drosophila são produzidos em camundongo, o que limita a imunomarcação multiplex. Embora corantes fluorescentes possam fornecer uma alternativa para marcar estruturas celulares como membranas, mitocôndrias ou outras organelas, a maioria dos corantes comercialmente disponíveis foi otimizada para células cultivadas e é difícil de aplicar de forma eficiente em tecidos intactos de Drosophila.
Além disso, os anticorpos secundários e fluoróforos devem ser cuidadosamente avaliados quanto à compatibilidade com a nanoscopia STED, pois nem todos os fluoróforos fornecem intensidade de sinal suficiente, fotostabilidade ou eficiência de esgotamento adequadas sob condições de imagem STED19,26. Os resultados apresentados aqui reforçam ainda mais a importância do preparo da amostra e do manuseio do tecido. Da mesma forma, os tratamentos farmacológicos devem ser otimizados com cuidado, já que concentrações excessivas de fármacos podem comprometer a integridade do tecido e gerar artefatos de imagem que obscurecem os sinais biológicos. A orientação precisa do tecido é igualmente importante, uma vez que o alinhamento exato do limite dorsoventral é necessário para obter vistas ortogonais e imagens reprodutíveis das populações celulares desejadas (Figura 2).
Várias modificações podem ser introduzidas para adaptar o fluxo de trabalho a diferentes requisitos experimentais: A duração do ensaio de captação pode ser ajustada para equilibrar uma marcação proteica suficiente com a preservação da integridade do tecido. Da mesma forma, as concentrações de inibidores podem exigir titulação dependendo do tipo de tecido, estágio de desenvolvimento ou via de sinalização em estudo. O protocolo também é compatível com diversas abordagens de coloração, incluindo imunofluorescência padrão, imunofluorescência extracelular e estratégias de marcação baseadas em fluoróforos, desde que os fluoróforos selecionados sejam adequados para nanoscopia STED. Embora o presente fluxo de trabalho enfatize a imagem com duas cores, fluoróforos adicionais e configurações de imagem poderiam ampliar ainda mais sua aplicabilidade.
Embora este protocolo tenha sido desenvolvido utilizando discos imaginais de asas de Drosophila e a via de sinalização Wg/Wnt como sistema modelo, a abordagem não se limita a essas aplicações. O fluxo de trabalho pode ser facilmente adaptado a outros tecidos de Drosophila e provavelmente transferido para outros modelos de insetos com dimensões teciduais e propriedades ópticas comparáveis. De forma mais geral, a combinação de ensaios de captação, perturbações farmacológicas e nanoscopia 3D STED fornece uma estrutura versátil para investigar a organização da membrana, tráfego de proteínas, secreção e dinâmica de sinalização in vivo. Essa capacidade provavelmente será valiosa não apenas para estudos fundamentais de vias de sinalização no desenvolvimento, mas também para pesquisas biomédicas destinadas a compreender defeitos de tráfego associados a doenças. Ao permitir a visualização direta de populações dinâmicas de proteínas com resolução subcelular em tecidos intactos, o método fornece uma plataforma poderosa para estudar os mecanismos celulares que regulam a sinalização em sistemas biológicos complexos.
Divulgações
Os autores declaram não haver conflitos de interesses.
Agradecimentos
M.B. e M.H. são apoiados pelo Centro Collaborativo de Pesquisa da Deutsche Forschungsgemeinschaft CRC/SFB1324 (número do projeto 331351713) sobre Mecanismos e Funções da Sinalização Wnt. Gostaríamos de agradecer à instalação central de microscopia de luz do DKFZ (LMCF) por sua expertise e apoio.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Tubos de reação PCR de 0,2 mL | Biozym | 711068 | |
| Tubo de reação de 1,5 mL | Sarstedt | 72.706.700 | |
| Fundo de lamínula de vidro 1.5H de μ-Dish, 35 mm | Ibidi | #81158 | |
| Lâminas redondas (12 mm) 1.5H | Marienfeld | none | |
| Placa de vidro para coloração com 12 poços | Marienfeld | CET6.20 | |
| Formaldeído a 37% | Merck | F8775 | |
| anti-dlg1 | DSHB | 4F3 | |
| anti-dlp | DSHB | 13G8 | |
| anti-GFP | Invitrogen | A11122 | |
| anti-mouse Alexa Fluor 594 | Invitrogen | A21201 | |
| anti-mouse STAR635P | Abberior | ST635P-1001 | |
| anti-rabbit Alexa Fluor 594 | Invitrogen | A11012 | |
| anti-rabbit STAR635P | Abberior | ST635P-1002 | |
| anti-Wg | DSHB | 4D4 | |
| Blu Tack | Bostik | 30811745 | Adesivo sensível à pressão |
| DMSO | VWR | SIAL472301 | |
| Pinça Dumont 5 | Dumaont | No. 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| FBS | Sigma-Aldrich | F7524 | |
| Glicina | Gerbu | 10.231.000 | |
| Microscópio Leica Stellaris 8 STED Falcon | Leica Microsystems | N/A | |
| Escolha de unhas | essence | N/A | |
| Soro de cabra normal | Cell Signalling | 5425S | |
| Objetiva: HC PL APO 86x/1.20 W motCORR STED white objective | Leica Microsystems | N/A | |
| Comprimidos de PBS | Life technologies | 18912014 | |
| Photo Flo | Kodak | N/A | |
| Poli-L-Lisina | Sigma-Aldrich | P1524 | |
| Meio para insetos de Schneider | Sigma | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
Referências
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.