Este estudo tem como objetivo explorar os possíveis mecanismos moleculares subjacentes aos efeitos antioxidantes e anti-inflamatórios da amigdalina no modelo de alopecia areata em camundongos C3H/HeJ e em um modelo de lesão de melanócitos epidérmicos primários humanos induzido por H2O2.
Artigo de investigação
A Amigdalina Regula a Sinalização de FOXO3a para Inibir o Estresse Oxidativo e Melhorar a Alopecia Areata em Camundongos
* These authors contributed equally
Neste artigo
Resumo
Resumo
Este artigo tem como objetivo explorar o mecanismo do efeito terapêutico da amigdalina (AMG) na alopecia areata (AA). A coloração com hematoxilina-eosina foi utilizada para investigar a toxicidade hepatorenal da AMG. Após estabelecer o modelo de AA em camundongos C3H/HeJ e H2O2-melanócitos epidérmicos primários humanos (HPEMs) danificados, e após a intervenção com AMG, o conteúdo de espécies reativas de oxigênio (ROS) e os níveis da proteína e do gene da cauda de raposa O3A (FOXO3a) foram monitorados. Kits bioquímicos ou ensaio imunoenzimático foram utilizados para detectar os teores de superóxido dismutase (SOD), catalase (CAT), glutationa peroxidase 4 (GPX-4), malondialdeído (MDA), interleucina-15 (IL-15), interferon-gama (IFN-γ) e interleucina-6 (IL-6). Foi realizada uma análise por Western blot para avaliar os níveis de MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4, IFN-γ, IL-6 e IL-15. A PCR com imunoprecipitação de cromatina (ChIP-PCR) foi realizada para avaliar o enriquecimento de AMG nos promotores de SOD, CAT e GPX-4 em FOXO3a. Paralelamente, foram investigados os níveis de ERO, apoptose e as expressões proteica e gênica de FOXO3a, SOD, CAT e GPX-4 em HPEMs com baixa expressão de FOXO3a. AMG não apresenta toxicidade hepática ou renal potencial e pode reduzir a expressão das proteínas MHC I e IL-15 na pele, bem como a IL-15 sérica. AMG pode aumentar a expressão da proteína e do gene FOXO3a na pele, assim como os níveis de SOD, CAT e GPX-4, ao mesmo tempo que reduz os níveis de ROS e MDA. AMG pode inibir MHC I, IFN-γ, IL-6 e IL-15, MDA, apoptose e produção de ERO em HPEMs, e aumentar os teores de SOD, CAT e GPX-4. Importante, a AMG pode upregular a expressão dos genes e proteínas FOXO3a, SOD, CAT e GPX-4, e enriquecer FOXO3a nos promotores de SOD, CAT e GPX-4. Esses dados sugerem que a AMG pode promover a expressão de FOXO3a e inibir o estresse oxidativo e as respostas inflamatórias, melhorando, assim, a AA em camundongos C3H/HeJ.
Introdução
Como uma desordem autoimune caracterizada por perda de cabelo súbita e não cicatricial, a alopecia areata (AA) apresenta uma prevalência global de aproximadamente 2–3%, e há mais de 30 milhões de pacientes na China1. Dados epidemiológicos mostram que a doença pode afetar indivíduos de todas as faixas etárias, mas exibe maior prevalência entre adultos jovens, com cerca de 60% dos pacientes experimentando o primeiro surto antes dos 20 anos de idade, com uma razão homem-mulher quase igual1,2. Globalmente, a incidência anual da AA é de aproximadamente 0,2–0,3%, sendo 40% casos de AA de localização única, 35% de AA multifocal, 5% de alopecia totalis e 2% de alopecia universalis3,4,5. Em termos de complicações, cerca de 30% dos pacientes apresentam depressões ungueais, estrias longitudinais e outros danos nas unhas, e a taxa de comorbidade com doenças autoimunes como distúrbios tireoidianos e vitiligo supera os níveis observados na população geral6,7. Do ponto de vista prejudicial, a AA não apenas afeta a aparência, mas também tende a causar problemas psicológicos como depressão e ansiedade, com cerca de 70% dos pacientes com novo diagnóstico relatando eventos estressantes significativos nos 3 meses anteriores ao início da doença8,9. Quando não tratada por longo período, os pacientes podem evoluir para alopecia totalis ou alopecia universalis, afetando gravemente sua função social e qualidade de vida10.
Atualmente, a medicina ocidental utiliza principalmente uma combinação de medicamentos tópicos, medicamentos orais, terapia física e transplante capilar para o tratamento da AA11,12. O tratamento tópico inclui principalmente solução de minoxidil e corticosteroides (como creme de propionato de fluticasona), que estimulam os folículos capilares e inibem as respostas imunes locais para promover o crescimento dos cabelos, mas o uso prolongado pode levar a reações adversas, como atrofia da pele13,14. Para pacientes com doença progressiva, imunossupressores orais (como prednisona e ciclosporina) podem regular eficazmente a resposta imune sistêmica, mas é necessário monitoramento regular da função hepática e renal12,15. Na terapia física, a radiação ultravioleta de onda média de banda estreita e a terapia a laser de baixa energia melhoram a microcirculação para auxiliar o crescimento capilar, mas são necessários múltiplos tratamentos, e o efeito varia de pessoa para pessoa16,17. Para casos resistentes, a cirurgia de transplante capilar pode transplantar folículos capilares saudáveis para a área com calvície, mas existe o risco de falha do transplante, e é necessária manutenção medicamentosa18. As vantagens do tratamento pela medicina ocidental residem em seu início rápido e alta padronização, especialmente para AA localizada em estágio inicial19. No entanto, suas desvantagens incluem a tendência de recaída com medicamentos hormonais, efeitos colaterais significativos com imunossupressores e sua eficácia limitada em pacientes com calvície total ou alopecia universal20,21. Além disso, o ciclo de tratamento é longo (geralmente de 3 a 6 meses), e o custo é elevado (como o custo anual de inibidores de JAK e agentes biológicos, excedendo 100.000 yuans), o que também restringe sua ampla aplicação19,22. Devido aos inúmeros motivos mencionados acima, os autores precisam urgentemente explorar novos medicamentos direcionados.
O estresse oxidativo contribui significativamente para o mecanismo patogênico da AA. Durante o processo de síntese de pigmento pelos melanócitos, é produzida uma grande quantidade de peróxido de hidrogênio (H2O2)23,24. Em condições normais, isso pode ser eliminado por enzimas antioxidantes (como a superóxido dismutase (SOD) e a catalase (CAT))25. No entanto, em indivíduos com AA, a atividade das enzimas antioxidantes é frequentemente reduzida, resultando no acúmulo de produtos oxidativos e causando danos ao DNA e apoptose celular26,27. Esse estado de estresse oxidativo ativa ainda mais a resposta inflamatória, liberando mediadores pró-inflamatórios (como TNF-α e IFN-γ), formando um ciclo vicioso de estresse oxidativo e inflamação28. A resposta inflamatória ataca os folículos capilares por meio de linfócitos T, fazendo com que os folículos capilares entrem em uma fase de repouso e caiam29. Ensaios clínicos constataram que pacientes com AA frequentemente apresentam outras doenças autoimunes (como doenças da tireoide)30, sugerindo que a desregulação imunológica sistêmica atua como fator desencadeante crítico. Além disso, o estresse oxidativo e a inflamação promovem conjuntamente a apoptose das células dos folículos capilares, e a desordem dos sinais apoptóticos danificará ainda mais a capacidade regenerativa do folículo capilar, impedindo o crescimento de novos cabelos31. Portanto, o tratamento da AA precisa levar em consideração a ação antioxidante, anti-inflamatória e a regulação das vias apoptóticas para interromper esse ciclo vicioso.
A amígdalina (AMG) é um composto glicosídeo cianogênico natural, encontrado principalmente em sementes de plantas pertencentes à família Rosaceae (como damasco, amêndoa, caroços de pêssego e nêspera)32,33,34. Estudos anteriores demonstraram que a AMG pode melhorar a psoríase ao potencializar a função de barreira da pele35. Além disso, os efeitos antiapoptóticos e antioxidantes da AMG tornam possível seu uso no tratamento da AA36,37. Evidências prévias também confirmaram que a AMG pode inibir a resposta inflamatória, aliviando os sintomas da AA em camundongos C3H/HeJ38. No entanto, o mecanismo molecular pelo qual a AMG inibe a inflamação e alivia o estresse oxidativo para mitigar a AA ainda não foi amplamente relatado. Este estudo demonstrou principalmente os eventos de estresse oxidativo mediados pela sinalização da forkhead box O3A (FOXO3a) por meio da intervenção da AMG no tratamento do modelo de AA em camundongos C3H/HeJ e no modelo de lesão de melanócitos epidérmicos primários humanos (HPEMs) induzido por H2O2.
Protocolo
Ethics approval and consent to participate
The experimental protocols involving animals were authorized by the Ethics Committee of Scientist Biotechnology Co., Ltd. (Ethical Approval Number: SYST-2024-014), following the ARRIVE 2.0, NIH Guide for the Care and Use of Laboratory Animals. And the Ethics Committee of Sichuan Provincial People’s Hospital granted approval for the ethical use of human clinical samples for in vitro experiments (Ethical Approval Number: 2024103). Informed consent was obtained from all tissue donors. All commercial details of the reagents and the equipment used in this study are provided in the Table of Materials.
Construction of the AA model in C3H/HeJ mice and AMG administration
Based on the previous literature, the AA model of C3H/HeJ mice was induced and treated with AMG38,39. In brief, thirty female C3H/HeJ mice (6–8 weeks old) underwent a one-week acclimatization period before being randomly assigned to five distinct groups: Control, AA, AMG-L, AMG-M, and AMG-H. Except for the control group, the AA model in the remaining four groups was established by applying 0.05 g imiquimod cream to the murine dorsal skin. This application was performed three times weekly, accumulating to a total of nine doses. The area of the skin that was applied was 1.5 cm × 1.5 cm. Mice in both the control and AA cohorts received 0.02 mL/g of normal saline by gavage daily. While the mice in AMG groups were given intragastric injections of 60, 90, and 120 mg/kg daily. The administration period is 21 days. For the general observation and assessment of the AA model, a well-defined circular alopecia patch ≥ 1 cm in diameter, with no scarring or severe inflammation, and with broken hair shafts, is required. If mice show diffuse whole-body depilation, severe skin ulceration, or spontaneous rapid hair regrowth, they are excluded.
HPEMs
Following the previous method40, healthy skin tissues from patients who underwent circumcision in the hospital were selected and immersed in 75% alcohol for 5 min. The skin tissues were then repeatedly washed with PBS containing ampicillin (100 U/mL) and streptomycin sulfate (100mg/mL), and incubated in dispase II solution at 4°C overnight for digestion. The separated and isolated epidermal layers were minced and filtered via a sterile membrane to yield the cell suspension. After centrifugation, the sedimentary lower-layer cells were harvested and subsequently resuspended in melanocyte 254 medium without serum and reseeded at a density of approximately 5 × 10⁵ in culture flasks and cultured in a CO2 incubator. After three passages, pure melanocytes were employed for subsequent experiments.
Establishment of H2O2-induced human melanocyte oxidative stress injury model and AMG intervention
Human melanocytes with a fusion degree of 60% to 80% were divided into a control group and groups with different concentrations of H2O2 (200, 400, 600, 800, and 1000 µM). After a 24-h incubation, cell viability was assessed by the CCK-8 method. Subsequently, the optimal concentration of H2O2 was used to establish the melanocyte oxidative stress model, and different concentrations of AMG (0.1, 0.25, 0.5, 1, 2.5, 5, and 10 mg/mL) were added for a 24-hour culture. Cell viability was then chosen to assess and screen the concentration of AMG.
HE examination
Mouse liver and kidney tissues were fixed in 4% paraformaldehyde for 24 h and embedded with paraffin, followed by a dehydration process in the following steps: 70% ethanol for 4 h, 80% ethanol for 2 h, 90% ethanol for 2 h, 95% ethanol for 2 h, anhydrous ethanol, twice, 1 h each time; xylene, twice, 30 min each time38,39,41. Then, 4-µm paraffin sections underwent H&E staining, were dehydrated, cleared, and mounted with neutral gum. A 3D HISTECH scanner was employed to digitize the tissue sections, and images at 20× and 40× magnifications were captured.
Enzyme-linked immunosorbent assay (ELISA) and biochemical detection
Skin tissues were homogenized in a buffer solution at a 1:9 (w/v) ratio, then centrifuged at 1006–1789 × g for 10 min. After protein quantification in serum, skin tissue extracts, and cell supernatants using BCA, the levels of MDA, IL-6, IL-15, and IFN-γ were assessed using the corresponding ELISA kits. And the enzyme activities of SOD, CAT, and GPX-4 were detected according to the instructions of the respective biochemical kits.
Flow cytometry for detecting reactive oxygen species (ROS)
Serum-free culture medium was used to dilute 10µM DCFH-DA at a 1:1000 ratio. And then, mouse skin tissues or human melanocytes were prepared into cell suspensions of 1–20×106 cells/mL using 10µM DCFH-DA. Cells were incubated at 37°C for 20 min. During this period, cells were shaken and mixed every 3–5 min. Following three washes with serum-free medium, intracellular ROS levels were quantified via flow cytometry, setting the excitation and emission wavelengths at 488nm and 525nm, respectively42,43.
Immunofluorescence measurement
FOXO3a (1:1000) primary antibody was incubated with 4-µm skin tissue sections or fixed HPEMs overnight at 4°C. And then, the specimens were treated with secondary antibodies labeled with Alexa Fluor fluorophores and counterstained with DAPI solution. Finally, the sections were observed and captured through fluorescence microscopy. For fluorescence imaging with ROS, a 4-µm frozen section of skin tissue or HPEMs slides were rewarmed at room temperature and dried. A circle was drawn around the tissue with a histochemical pen. The slides were treated with an autofluorescence quencher for 5 min and then rinsed under running water for 10 min. ROS staining solution was dropped and incubated in the dark at 37°C for 30 min. The sections underwent three 5-minute washes in PBS using a decolorization shaker. Then, DAPI staining solution was dropped and incubated for a duration of 10 min under dark conditions at room temperature. The slides were sealed with an anti-fluorescence quencher medium. The specimens were then observed, and images were collected via a fluorescence microscope. The excitation/emission profiles are 330–380/420 nm for DAPI and 510–560/590 nm for Cy3.
Western blot
For mouse skin tissue or human melanocytes, 50 mg of the skin tissue or 2 × 10⁵ cells and 1 mL of RIPA lysis buffer, enriched with protease inhibitors, were dispensed into a 1.5-mL microcentrifuge tube. After an ice bath for 30 min, a 5-min centrifugation was performed at 12,000 g to collect the supernatant fraction. After protein concentration was determined by the BCA method, the protein solution and 5× SDS loading buffer were mixed in a volume ratio of 4:1, and then boiled in a metal bath at 95 °C for 5 min. After the sample was subjected to 10% SDS-PAGE electrophoresis at 80 V or 120 V, proteins were electrotransferred onto a 0.22-µm PVDF membrane at a constant current of 200 mA for 1 h44,45. The membranes were then blocked at room temperature on a centrifuge shaker for 1 h using 5% skimmed milk (prepared with TBST buffer). The membranes were then exposed to primary antibodies specific to major histocompatibility complex class I (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-Actin (1:1000), SOD (1:1000), CAT (1:1000), glutathione peroxidase 4 (GPX-4) (1:1000), and FOXO3a (1:1000) at 4 °C overnight. And the membranes were probed with the secondary antibody (1:10000) for 1 h at room temperature. ECL chemiluminescent reagent was employed to develop and capture images using ChemiScope 6100.
Quantitative reverse transcription-polymerase chain reaction (qRT-PCR)
Firstly, the sample RNA from mouse skin tissue or human melanocytes was obtained in accordance with the manufacturer’s instructions of the total RNA extraction kit. According to the operation instructions of the reverse transcription kit, the PCR instrument parameters were set as 25°C for 10 min, 42°C for 15 min, and 85°C for 5 min to obtain cDNA samples. Similarly, the parameters for setting up the PCR instrument were as follows to obtain sufficient DNA copy numbers: Pre-denaturation: 95°C for 5 min, 1 cycle; Denaturation: 95°C for 10 s, 40 cycles; Annealing and extension: 60°C for 30 s, 40 cycles. The normalized expression of the gene of interest is calculated using the following formula: 2‑ΔΔCq (ΔΔCq = Cqtarget‑Cqβ‑Actin)46,47. The information on the gene primer sequences for qRT-PCR is shown in Table 1.
ChIP-PCR analysis
ChIP-PCR analysis was carried out in accordance with the previous protocol48. First, the cells were cross-linked with 1% formaldehyde for 10 min, and glycine solution was added to terminate the cross-linking reaction. After washing with pre-cooled PBS containing PMSF, the cells were lysed with SDS lysis buffer containing PMSF. Subsequently, the chromatin DNA was sheared into fragments mainly ranging from 200 to 1,000 bp using an ultrasonic cell disruptor, and the fragment size was verified by agarose gel electrophoresis. The sheared chromatin samples were resuspended in ChIP dilution buffer containing PMSF, and 20µL of the sample was taken as the input control group. The remaining samples were pre-treated with Protein A+G Agarose/Salmon Sperm DNA. Then, 0.5µg of primary antibody was applied, followed by an overnight incubation at 4°C with slow shaking. The negative control group was treated with an equal amount of rabbit IgG. The next day, Protein A+G agarose beads were added to capture the antigen-antibody complexes, and the complexes were washed successively with low salt immune complex wash buffer, high salt immune complex wash buffer, LiCl immune complex wash buffer, and TE buffer. The immunoprecipitated complexes were eluted with elution buffer, and both the elution products and the samples in the input control group underwent a heat treatment of 65°C for 4h to break the cross-links. Subsequent to proteinase K-mediated protein digestion, DNA was isolated via phenol-chloroform extraction followed by ethanol precipitation. The purified DNA was dissolved in TE buffer and used for subsequent qRT-PCR analysis. And the gene sequence information for ChIP-PCR is shown in Table 2.
The candidate genomic sites for ChIP-PCR were selected through in silico prediction using the JASPAR database (https://jaspar.elixir.no/). Specifically, researchers retrieved the promoter sequences spanning 2000 bp upstream of the TSS of the CAT, SOD, and GPX4 genes. These sequences were scanned for FOXO3a binding motifs using the corresponding position weight matrix. To balance sensitivity and specificity, the authors set a relative profile score threshold of >80%. Among all predicted motifs meeting this criterion, the authors selected the top two highest-scoring putative sites for each gene as candidate regions for ChIP-PCR validation. For example, in the CAT gene, the selected sites were located at -733 bp and -1259 bp relative to the TSS. The anti-FOXO3a antibody used in this study is a commercially available ChIP-grade antibody. To ensure specificity, the authors applied two independent negative controls for every ChIP-PCR assay: isotype IgG and a negative genomic locus. The isotype IgG control was performed as parallel immunoprecipitations using non-immune IgG from the same species. For the negative genomic locus, the authors designed a specific primer pair targeting a non-binding region that lacks any predicted FOXO3a consensus motif. This control region allowed the authors to exclude enrichment due to random chromatin shearing or nonspecific PCR amplification. The fold enrichment was calculated using a three-step normalization strategy.
Step 1: Input normalized ΔCt, ΔCt [normalized IP] = Ct[IP]-(Ct[Input]-log₂(DF)) (1)
ΔCt [normalized IgG] = Ct[IgG] - (Ct[Input] - log₂(DF)). (2)
DF = Input Dilution Factor; in the experiment, DF = 10, as they used 10% input.
Step 2: ΔΔCt between IP and IgG:
ΔΔCt [IP/IgG] =ΔCt [normalized IP]-ΔCt [normalized IgG] (3)
Step 3: Fold enrichment = 2(-ΔΔCt [IP/IgG]). (4)
Statistical analysis
Data are expressed as mean ± standard deviation based on a minimum of three independent experiments. Statistical analyses were performed using GraphPad Prism software (version 6.0). Comparison of data among multiple groups following a normal distribution and homogeneity of variance was assessed using one-way analysis of variance (ANOVA), followed by Tukey’s post-test. Statistical significance was established at p < 0.05.
Resultados
AMG não apresenta toxicidade hepatorenal em camundongos C3H/HeJ normais
Para identificar claramente, do ponto de vista experimental, a possível toxicidade hepática e renal do AMG, os pesquisadores administraram as três doses (60, 90 e 120 mg/kg) previamente estudadas em camundongos C3H/HeJ normais por gavagem 38. Conforme mostrado na Figura 1, após a administração intragástrica do AMG em três doses durante 21 dias, a arquitetura dos lóbulos hepáticos era distinta, com hepatócitos dispostos de maneira ordenada. Os tecidos cortical e medular do rim estavam normais, e não foram observados danos ou lesões nos glomérulos ou nos túbulos renais. Durante o período de administração do AMG, nenhum dos camundongos exibiu manifestações comportamentais anormais. De fato, neste artigo, os dados de toxicidade bioquímica/peso corporal não foram testados, o que pode afetar a racionalidade da conclusão de que o AMG não apresenta toxicidade hepática e renal. No entanto, com base nos resultados do exame histopatológico do fígado e do rim, esses dados sugerem parcialmente que o tratamento com AMG para AA nas doses estabelecidas pelos autores é razoável.
A AMG inibe a ocorrência e o desenvolvimento da AA, bem como a geração de ERO
Primeiramente, eles mediram os indicadores de MHC I e IL-15 que são intrinsecamente ligado ao início e à progressão de AA. Como mostrado em Figura 2A–C, nas condições patológicas da simulação de AA, a quantidade de proteínas MHC I e IL-15 nos tecidos cutâneos de camundongos C3H/HeJ aumentou significativamente (p < 0,001). Por outro lado, os tratamentos com AMG-M e AMG-H reduziram significativamente os níveis de expressão dessas duas proteínas (p < 0,01 ou p < 0.001). Da mesma forma, as três doses do tratamento com AMG suprimiram significativamente o nível de IL-15 no soro (p < 0.001, Figura 2D). Além disso, os resultados de imunofluorescência indicaram que havia uma grande quantidade de ERO na pele dos camundongos do grupo AA, enquanto a intervenção com AMG reduziu significativamente a expressão de ERO em comparação com o grupo AA (p < 0.001, Figura 2E e F). De forma consistente, os resultados de citometria de fluxo mostraram que os níveis de ESP no tecido cutâneo do grupo AA foram significativamente elevados em comparação com o grupo controle. No entanto, em comparação com o grupo AA, a intervenção com AMG reverteu o aumento de ERO (p < 0.001, Figura 2G e H).
AMG estimulou a expressão proteica e gênica de FOXO3a
Para investigar o efeito do AMG sobre o FOXO3a, os autores analisaram seus níveis de expressão tanto a nível proteico quanto genético. Os resultados de imunofluorescência demonstraram que o grupo AA apresentou uma redução acentuada na expressão proteica de FOXO3a, enquanto o AMG estimulou o nível da proteína FOXO3a no tecido cutâneo de camundongos C3H/HeJ (p < 0.001, Figura 3A e B). Dados adicionais de qRT-PCR indicam que AMG aumentou significativamente a expressão gênica de FOXO3a (p < 0.001; Figura 3C). Da mesma forma, o experimento de Western blot indicou que AMG acentuadamente intensificado a expressão proteica de FOXO3a (p < 0,05 ou p < 0.001, Figura 3D e E).
AMG inibiu os eventos de estresse oxidativo nos tecidos cutâneos de camundongos com AA
A progressão patológica da AA estimulada pelo estresse oxidativo leva à sua deterioração. Os resultados dos testes bioquímicos na Figura 4 mostram que, em comparação com o grupo controle, os indicadores antioxidantes SOD, CAT e GPX-4 nos tecidos cutâneos de camundongos do grupo AA foram significativamente inibidos (p < 0,001, Figura 4A e B), enquanto o indicador pró-oxidativo MDA aumentou substancialmente (p < 0,001, Figura 4C). Como esperado, os pesquisadores descobriram que após o tratamento com AMG, os indicadores antioxidantes aumentaram significativamente, enquanto os indicadores pró-oxidativos diminuíram significativamente (p < 0,001; Figura 4A–C). Da mesma forma, os dados de Western blot também sugeriram que a intervenção com AMG aumentou significativamente os níveis de expressão proteica dos indicadores antioxidantes SOD, CAT e GPX-4 (p < 0,001; Figuras 4D e 4E).
AMG reduziu a apoptose e os eventos inflamatórios em HPEMs induzidos por H2O2
Os resultados apresentados na Figura 5A indicam que concentrações crescentes de H2O2 (200–1000 µM) prejudicaram progressivamente a viabilidade de HPEMs (p < 0,001). Dentre elas, a concentração de 600 µM de H2O2 foi a mais adequada para reduzir a viabilidade celular de HPEMs (p < 0,001). Além disso, os autores verificaram que, na condição de estimulação de células HPEM com 600 µM de H2O2, a adição de AMG nas concentrações de 0,1–10 mg/mL aumentou significativamente a viabilidade celular (p < 0,05 ou p < 0,001, Figura 5B). Em consonância com os resultados dos experimentos em animais, os autores também observaram que o AMG inibiu significativamente a apoptose induzida por H2O2 em HPEMs, conforme indicado pela citometria de fluxo para detecção de apoptose nas Figuras 5C e 5D (p < 0,001). Para o indicador MHC I, análises por Western blot demonstraram ainda que o AMG suprimiu acentuadamente a expressão proteica em HPEMs submetidas a lesão induzida por H2O2 (p < 0,05 ou p < 0,01; Figuras 5E e 5F). Na detecção de fatores inflamatórios, os resultados de ELISA indicaram que o AMG reduziu significativamente a abundância de citocinas pró-inflamatórias, incluindo IFN-γ, IL-6 e IL-15, em HPEMs induzidas por H2O2 (p < 0,001; Figura 5G). Adicionalmente, a inibição dessas três proteínas pró-inflamatórias pelo AMG foi confirmada por meio de análise de Western blot, conforme apresentado nas Figuras 5H e 5I (p < 0,01 ou p < 0,001).
AMG reduziu os níveis de ERO em HPEMs induzidos por H2O2
Em comparação com células HPEM que não foram tratadas com H2O2 e AMG, a estimulação com 600 µM de H2O2 promoveu significativamente a produção de ERO, conforme evidenciado pelos resultados dos experimentos de imunofluorescência (p < 0,001, Figura 6A e B) e citometria de fluxo (p < 0,001, Figura 6C e D), respectivamente. Curiosamente, AMG reduziu significativamente a quantidade de ERO (p < 0,001, Figura 6).
AMG restringiu o evento de estresse oxidativo em HPEMs induzido por H2O2
Da mesma forma, os autores avaliaram como a AMG influencia o estresse oxidativo em HPEMs induzido por H2O2. Em comparação com o grupo controle, H2O2 a estimulação levou a uma diminuição nas funções da SOD, CAT e GPX-4 (p < 0.001, Figura 7A e B), enquanto aumenta significativamente os níveis de MDA (p < 0.001, Figura 7C). Surpreendentemente, a intervenção com AMG aumentou significativamente as atividades de SOD, CAT e GPX-4 (p < 0.001, Figura 7A e B), enquanto reduz o nível de MDA (p < 0.001, Figura 7C). Resultados adicionais de Western blot também confirmaram que a intervenção com AMG aumentou significativamente a expressão proteica de SOD, CAT e GPX-4 (p < 0,05 ou p < 0.01, Figura 7D e E).
AMG promoveu o nível de FOXO3a e de SOD, CAT e GPX-4 reguladas por FOXO3a em HPEMs induzidas por H2O2
Em comparação com o grupo controle, H2O2 a estimulação resultou em uma redução acentuada na expressão gênica de FOXO3a (p < 0.001, Figura 8A), enquanto a intervenção com AMG atenuou significativamente esse efeito (p < 0.05, Figura 8A). Ensaios adicionais de Western blot (p < 0.05, Figura 8B e C) e imunofluorescência (p < 0.05, Figura 8D e E) também confirmaram que a aplicação de AMG aumentou substancialmente a expressão proteica de FOXO3a. O experimento de ChIP-PCR confirmou que AMG pode aumentar os níveis de expressão de SOD (p < 0,001), CAT (p < 0,01) e GPX-4 (p < 0,01), conforme mostrado em Figura 8F–I, bem como o nível de enriquecimento de FOXO3a nos promotores da SOD (p < 0,001), CAT (p < 0,001) e GPX-4 (p < 0.001) (Figura 8J–L).
AMG reprimiu o estresse oxidativo e os fenômenos apoptóticos regulados por FOXO3a em HPEMs induzidos por H2O2
Inicialmente, os pesquisadores estabeleceram uma linhagem de HPEM com baixa expressão de FOXO3a, caracterizada por uma diminuição acentuada nos níveis de expressão proteica (p < 0,001, Figura 9A e B) e gênica (p < 0,001, Figura 9C) de FOXO3a. Os resultados de citometria de fluxo indicaram ainda que, em comparação com o grupo H2O2, o AMG reduziu acentuadamente os níveis de ERO e a apoptose celular em HPEMs com baixa expressão de FOXO3a (p < 0,001, Figura 9D–G). Enquanto isso, o AMG aumentou significativamente a expressão proteica e gênica de FOXO3a (p < 0,01, Figura 9H–J) e os níveis de expressão das proteínas SOD, CAT e GPX-4 reguladas por FOXO3a (p < 0,05, p < 0,01 ou p < 0,001, Figura 9H, K–O) e seus genes em HPEMs com baixa expressão de FOXO3a.
DISPONIBILIDADE DE DADOS:
Todos os dados brutos estão disponíveis no repositório público de dados no seguinte URL https://doi.org/10.5281/zenodo.22090466.
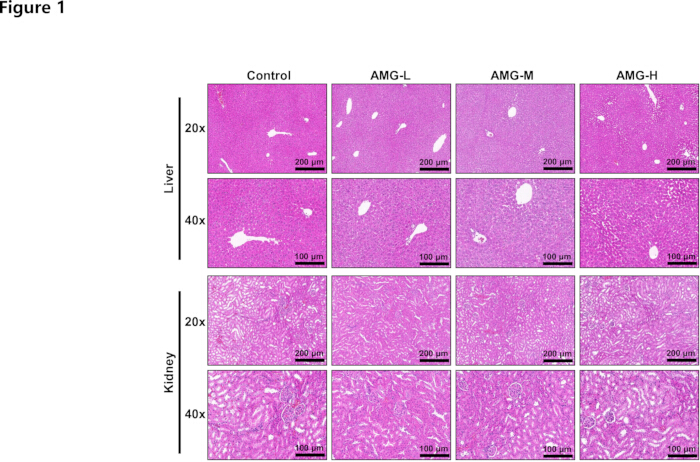
Figura 1: Coloração HE. A coloração HE foi utilizada para avaliar a toxicidade dependente da dose de AMG (60, 90 e 120 mg/kg) no fígado e nos rins de camundongos normais C3H/HeJ. Nenhum dano patológico específico foi observado no fígado e nos rins nas ampliações de 20× (200 µm) e 40× (100 µm). n = 6. Clique aqui para visualizar uma versão maior desta figura.
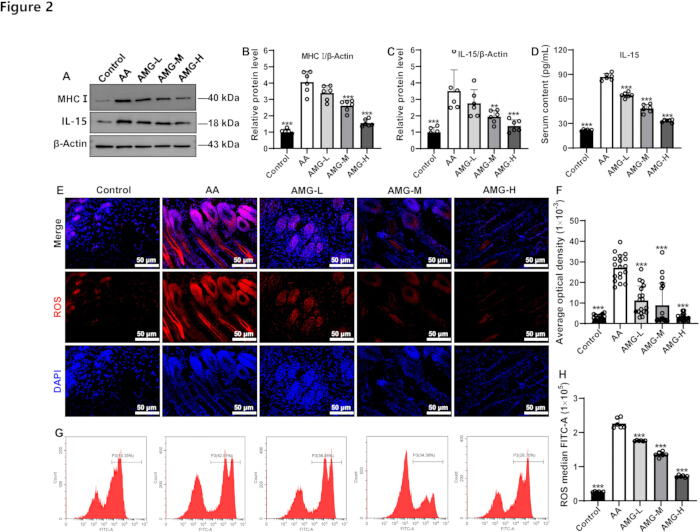
Figura 2: Efeitos do AMG sobre MHC I, IL-15 e ERO em amostras de pele de camundongos com AA. (A–C), a AMG reduziu os níveis de expressão proteica de MHC I e IL-15, conforme avaliado por Western blot. (D), AMG reduziu Níveis de IL-15 no soro dos camundongos.E e F), a AMG reduziu os níveis de ERO em amostras de pele de camundongo, conforme detectado pelo ensaio de IF. (G e H), a AMG reduziu os níveis de ERO em amostras de pele de camundongo, conforme determinado por citometria de fluxo. Os resultados experimentais são apresentados na forma de média ± SD. **p < 0,01 e ***p < 0,001 versus o grupo AA; n = 6. Clique aqui para visualizar uma versão maior desta figura.
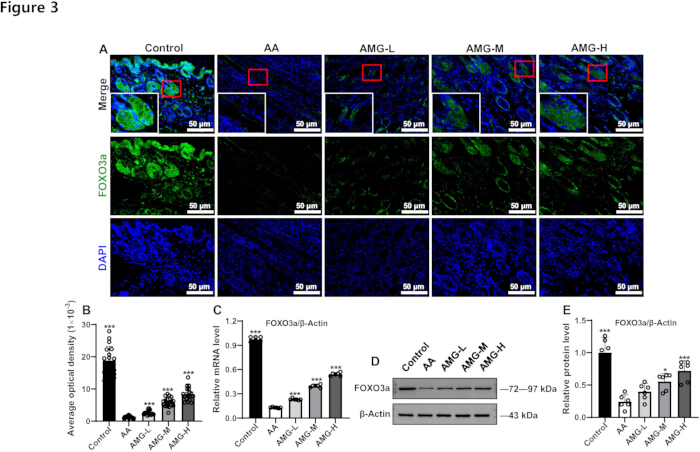
Figura 3: Efeitos da AMG nos níveis proteicos e gênicos da FOXO3a em amostras de pele de camundongos AA. (A) A AMG aumentou os níveis proteicos da FOXO3a, conforme avaliado pelo ensaio de IF. (B) Resultados quantitativos da IF. (C) A AMG aumentou a expressão gênica da FOXO3a. (D) A AMG aumentou a expressão proteica da FOXO3a, conforme detectado por Western blot. (E) Resultados quantitativos do Western blot. Os resultados experimentais são apresentados como média ± DP. *p < 0,05 e ***p < 0,001 em comparação com o grupo AA; n = 6. Clique aqui para visualizar uma versão maior desta figura.
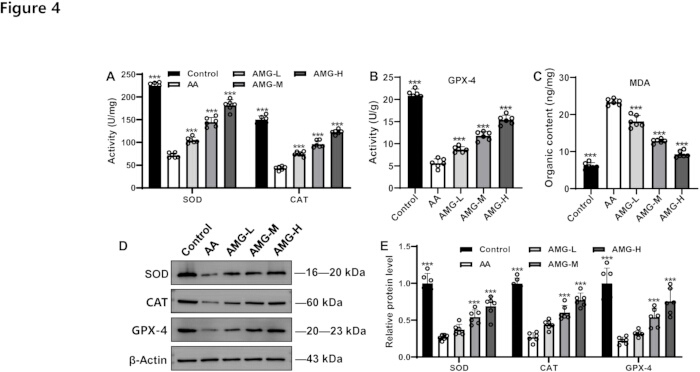
Figura 4: Efeitos do AMG sobre indicadores de estresse oxidativo em amostras de pele de camundongos AA. (A) O AMG estimulou os níveis de SOD e CAT, conforme avaliado por meio de um kit de teste bioquímico. Em (B) e (C), o AMG aumentou os níveis de GPX-4 e suprimiu os níveis de MDA. (D) bandas proteicas representativas de SOD, CAT e GPX-4. (E) Resultados quantitativos da expressão proteica de SOD, CAT e GPX-4. Os resultados experimentais são apresentados na forma de média ± DP. ***p < 0,001 em comparação com o grupo AA; n = 6. Clique aqui para visualizar uma versão ampliada desta figura.
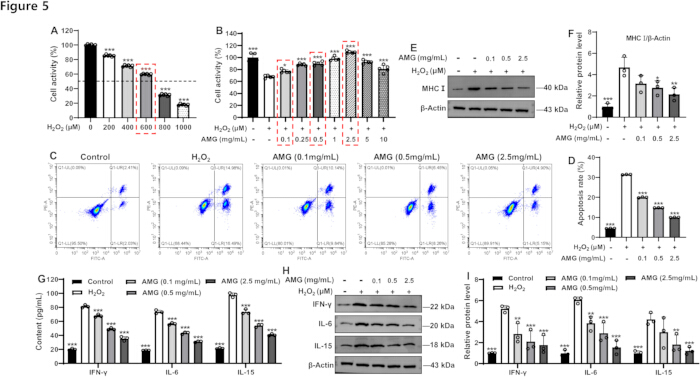
Figura 5: Efeitos da AMG sobre a apoptose e indicadores inflamatórios de HPEMs induzidos por H2O2. (A) consequências de diferentes concentrações de H2O2 sobre a viabilidade de HPEMs (n = 6). (B) Efeitos de diferentes concentrações de AMG sobre a sobrevivência de HPEMs induzidos por estímulos de H2O2 (n = 6). (C) A análise por citometria de fluxo foi empregada para avaliar a apoptose mediada por AMG em HPEMs induzidos por estímulos de H2O2. (D) Resultados estatísticos da apoptose celular. (E) Banda de Western blot de MHC I. (F) Resultado quantitativo da expressão relativa da proteína MHC I. (G) Efeitos da AMG sobre IFN-γ, IL-6 e IL-15 em HPEMs induzidos por estímulos de H2O2. (H) Bandas de Western blot de IFN-γ, IL-6 e IL-15. (I) Resultado quantitativo do nível relativo das proteínas IFN-γ, IL-6 e IL-15. Os resultados experimentais são apresentados na forma de média ± DP. *p < 0,05, **p < 0,01 e ***p < 0,001 em comparação com o grupo H2O2; n = 3. Clique aqui para visualizar uma versão ampliada desta figura.
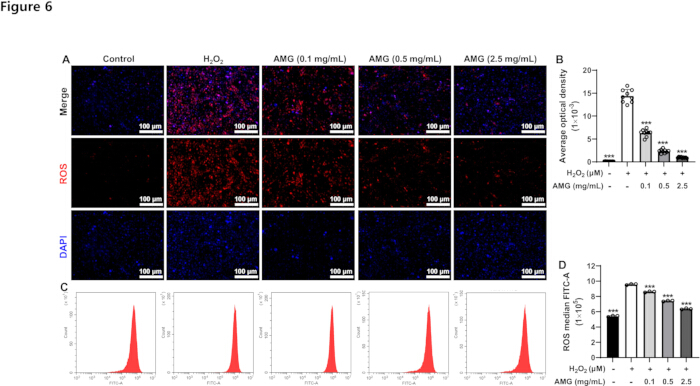
Figura 6: Efeitos do AMG sobre as ERO em HPEMs induzidas por H2O2. (A) A imagem de fluorescência das ERO. (B) Os resultados estatísticos quantitativos da fluorescência das ERO. (C) A imagem de citometria de fluxo das ERO. (D) Os resultados estatísticos quantitativos da citometria de fluxo das ERO. Os resultados experimentais são apresentados na forma de média ± DP. ***p < 0,001 em comparação com o grupo H2O2; n = 3. Clique aqui para visualizar uma versão maior desta figura.
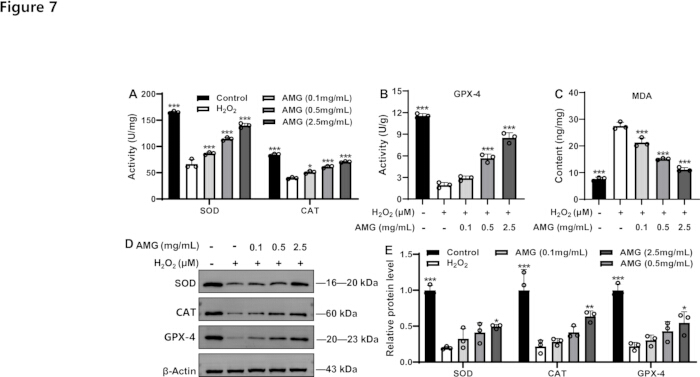
Figura 7: Efeitos do AMG sobre indicadores de estresse oxidativo em HPEMs induzidos por H2O2. Os níveis de SOD, (A) CAT, (B) GPX-4 e (C) MDA em HPEMs foram medidos utilizando kits bioquímicos ou ELISA. Bandas de Western blot de SOD, CAT e GPX-4 (D) e seus resultados quantitativos (E). Os resultados experimentais são apresentados como média ± DP. *p < 0,05, **p < 0,01 e ***p < 0,001 em comparação com o grupo H2O2; n = 3. Clique aqui para visualizar uma versão maior desta figura.
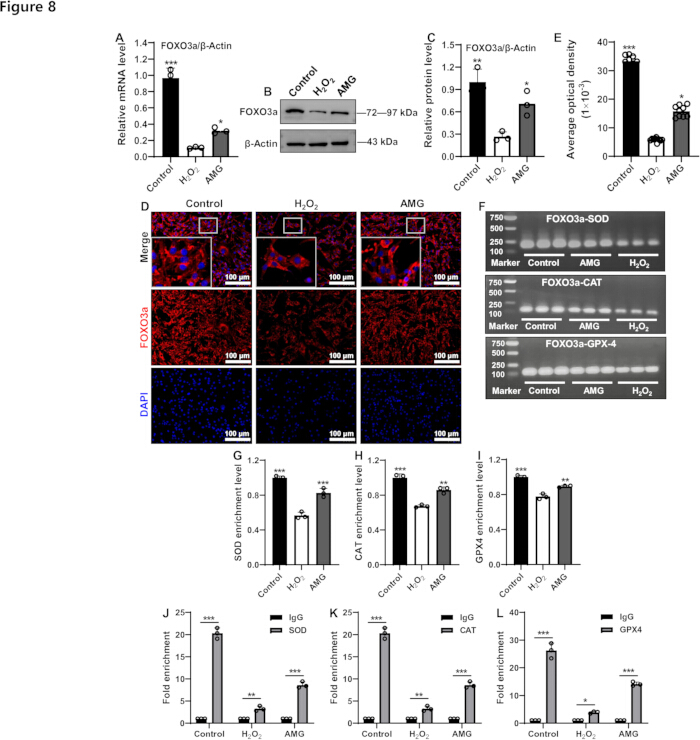
Figura 8: Efeitos do AMG sobre a FOXO3a em HPEMs induzidas por H2O2. (A) nível de expressão do gene FOXO3a. Bandas de Western blot da FOXO3a (B) e seus resultados quantitativos (C). A imagem de fluorescência da FOXO3a (D) e seus resultados estatísticos quantitativos de fluorescência (E). (F) padrões eletroforéticos representativos de ChIP-PCR para FOXO3a-SOD, FOXO3a-CAT e FOXO3a-GPX-4. Análise quantitativa dos valores de cinza das bandas de ChIP-PCR para SOD (G), CAT (H) e GPX-4 (I). Os níveis de enriquecimento da FOXO3a nos promotores da SOD (J), CAT (K) e GPX-4 (L) foram detectados por ChIP-PCR. Os resultados experimentais são apresentados na forma de média ± DP. *p < 0,05, **p < 0,01 e ***p < 0,001 em comparação com o grupo H2O2, ou em comparação com os grupos indicados; n = 3. Clique aqui para visualizar uma versão ampliada desta figura.
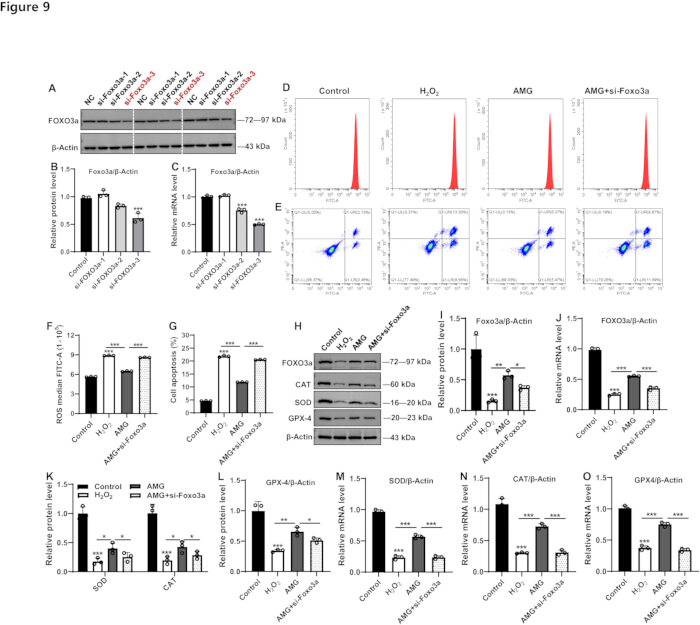
Figura 9: Efeitos do AMG sobre o estresse oxidativo e apoptose em células HPEMs com baixa expressão de FOXO3a e estímulo com H2O2. (A) Bandas de Western blot de FOXO3a e seu resultado quantitativo (B). (C) resultado quantitativo da expressão de mRNA de FOXO3a. (D) gráfico de citometria de fluxo de ERO e apoptose celular (E). E os resultados estatísticos correspondentes (F e G). (H) bandas de Western blot de FOXO3a, SOD, CAT e GPX-4. (I) Resultado quantitativo da expressão proteica de FOXO3a. (J) resultado quantitativo da expressão de mRNA de FOXO3a. (K e L) resultados quantitativos da expressão proteica de SOD, CAT e GPX-4. Resultados quantitativos da expressão gênica de SOD (M), CAT (N) e GPX-4 (O). Os resultados experimentais são apresentados na forma de média ± DP. *p < 0,05, **p < 0,01 e ***p < 0,001 em comparação com o grupo controle ou com os grupos indicados; n = 3. Clique aqui para visualizar uma versão maior desta figura.
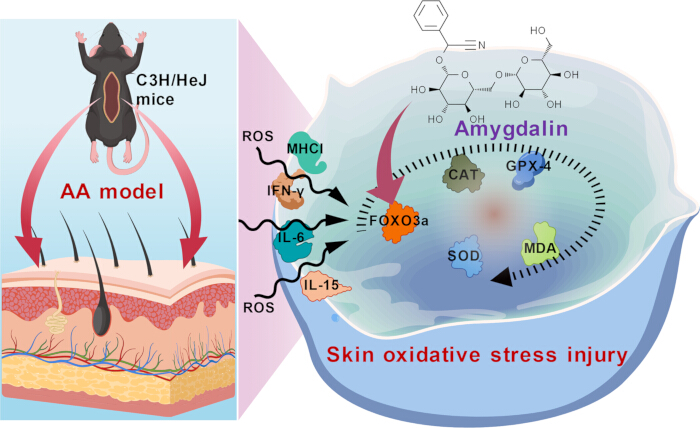
Figura 10: Diagrama esquemático. Este diagrama ilustra o mecanismo pelo qual a AMG estimula a expressão de FOXO3a, inibindo assim o estresse oxidativo e a inflamação e melhorando o AA. Foi criado pelos autores utilizando o BioGDP.com, e não há preocupações de direitos autorais. Clique aqui para visualizar uma versão maior desta figura.
| Genes | Espécie | Sequências (5' - 3') | Comprimento (pb) |
| FOXO3a | Mouse | Sentido: GCAAGCCGTGTACTGTGGA | 116 |
| Antissentido: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | Human | Sentido: CGGACAAACGGCTCACTCT | 150 |
| Antissentido: GGACCCGCATGAATCGACTAT | |||
| SOD | Human | Sentido: AAAGATGGTGTGGCCGATGT | 167 |
| Antissentido: CAAGCCAAACGACTTCCAGC | |||
| CAT | Human | Sentido: CTATCCTGACACTCACCGCC | 129 |
| Antissentido: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | Human | Sentido: GCAAGGGCATCCTGGGAAAT | 84 |
| Antissentido: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | Human | Sentido: AATCTGGCACCACACCTTCTACAA | 172 |
| Antissentido: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | Mouse | Sentido: GTGCTATGTTGCTCTAGACTTCG | 174 |
| Antissentido: ATGCCACAGGATTCCATACC |
Tabela 1: Informações da sequência gênica para qRT-PCR. Os primers utilizados para qRT-PCR.
| Genes | Espécie | Sequências (5' - 3') | Comprimento (pb) |
| SOD | Humano | Sentido: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Antissentido: ATCCGCCCACAGACACGAGAG | |||
| CAT | Humano | Sentido: GGGAAGCAGATTTCTCCAGTG | 141 |
| Antissentido: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | Humano | Sentido: TGGCACATTTTGGGGTTGGAAC | 103 |
| Antissentido: TGAACGCTCCTCCTCCTTAAACG |
Tabela 2: Informações de sequência gênica para ChIP-PCR. Os primers utilizados para ChIP-PCR.
Discussão
O AMG em si não possui toxicidade direta. Ele é hidrolisado por enzimas microbianas intestinais ou pelo ácido gástrico, gerando e liberando cianeto de hidrogênio altamente tóxico49. O cianeto de hidrogênio é então rapidamente absorvido pelo trato digestivo na corrente sanguínea e se espalha por todos os tecidos do corpo, causando hipóxia nos tecidos do sistema nervoso, sistema cardiovascular e sistema respiratório50. Em termos de mecanismo, o cianeto de hidrogênio combina-se com os íons de ferro na citocromo oxidase, bloqueando a cadeia respiratória celular, resultando em hipóxia tecidual e distúrbios metabólicos celulares, e desencadeando intoxicação aguda51. Os sintomas tóxicos incluem dor de cabeça, náusea, vômito e dificuldade respiratória49,52. Em casos graves, pode levar à falência respiratória e à morte49,52. Portanto, garantir a faixa de dosagem segura do AMG é um pré-requisito para o estudo de seus efeitos farmacológicos. Neste estudo, os autores confirmaram inicialmente por meio de exame histopatológico que as doses utilizadas (60, 90 e 120 mg/kg) não causaram toxicidade hepática ou renal em camundongos C3H/HeJ normais, o que constitui a base para pesquisas posteriores sobre o tratamento da alopecia areata com AMG.
O IFN-γ atua como um fator crítico na inflamação durante o desenvolvimento da AA, sendo principalmente secretado por linfócitos T CD4+/CD8+ ativados53,54,55. Ele rompe o privilégio imunológico dos folículos capilares (por exemplo, ao inibir a baixa expressão de MHC I), levando linfócitos T autoreativos a atacar os melanócitos dos folículos capilares e resultando em vacuolização das células matriciais capilares e queratinização anormal da lâmpada capilar56,57. Experimentos em animais demonstraram que camundongos deficientes no gene IFN-γ exibem resistência à AA58. A IL-6 e a IL-15 podem potencializar respostas imunes do tipo Th1 ao ativar a cascata de transdução de sinal JAK/STAT e promover a liberação de IFN-γ 59. Além disso, a IL-15 pode estimular a proliferação de células NK e linfócitos T, agravando a infiltração inflamatória ao redor das estruturas dos folículos capilares60. Folículos capilares normais escapam da vigilância imunológica por meio da baixa expressão de MHC I, enquanto em pacientes com AA, o MHC I é anormalmente superexpresso, tornando os melanócitos dos folículos capilares alvo do ataque por linfócitos T61. Neste estudo, os autores observaram que o tratamento com AMG reduziu significativamente os níveis de proteínas MHC I e IL-15 na pele de camundongos C3H/HeJ. Experimentos prévios em animais também confirmaram que o AMG pode inibir os níveis de IFN-γ e IL-6 em camundongos com AA38. Em lesão de HPEMs induzida por H2O2, o MHC I, bem como citocinas pró-inflamatórias incluindo IFN-γ, IL-6 e IL-15, foram consideravelmente reduzidos após o tratamento com AMG. Esses dados sugerem que o potencial do AMG no tratamento da AA pode estar relacionado à manutenção do equilíbrio entre imunidade e inflamação.
O desequilíbrio entre o sistema enzimático antioxidante (SOD, CAT e GPX-4) e os marcadores de peroxidação lipídica MDA e ROS desempenha um papel crucial na patogênese da AA62. A SOD reduz o estresse oxidativo catalisando a conversão de O2·⁻ em H2O2, enquanto a CAT e a GPX-4 decompõem ainda mais o H2O2 em H2O, impedindo o acúmulo de ROS. Evidências sugerem que o excesso de ROS pode desencadear a peroxidação lipídica, levando ao aumento dos níveis de MDA e ao dano direto às células do folículo capilar63. Em pacientes com AA, a capacidade de eliminação de ROS nos folículos capilares diminui, e o acúmulo de MDA agrava a morte apoptótica das células da papila capilar, fazendo com que os folículos capilares entrem prematuramente na fase de repouso63. Além disso, o estresse oxidativo pode promover a liberação do fator pró-inflamatório IFN-γ, agravando ainda mais o ataque imune e a degeneração do folículo capilar64. Neste estudo, os pesquisadores esclareceram que a intervenção com AMG reduziu a superexpressão de ROS na pele de camundongos com AA e na lesão de células HPEM induzida por H2O2. Ao mesmo tempo, investigações experimentais in vivo e ex vivo demonstraram que o tratamento com AMG aumentou significativamente os indicadores antioxidantes (SOD, CAT e GPX-4), enquanto reduziu o indicador pró-oxidativo MDA. Essas evidências indicam que a manutenção do equilíbrio do estresse oxidativo é a contribuição da AMG para a AA. Considerando que a atividade comprometida da GPX-4 levaria à geração descontrolada de MDA, isso poderia desencadear o processo de ferroptose. Esses processos moleculares também podem contribuir para agravamento da AA e servir como um mecanismo potencial do tratamento com AMG. Tudo isso exige verificação experimental adicional no futuro.
Como um fator de transcrição essencial, a FOXO3a pode estar envolvida na patogênese da AA por meio das vias de estresse oxidativo e de regulação imunológica65Pode translocar para o núcleo sob estresse oxidativo, regulando positivamente enzimas antioxidantes essenciais, como SOD e CAT, para eliminar o excesso de ERO e reduzir os danos oxidativos no tecido do couro cabeludo. Ao atenuar a carga oxidativa local, a FOXO3a pode estabilizar o privilégio imunológico dos folículos pilosos e inibir o ataque autoimune que desencadeia a perda de cabelo não cicatricial. No que diz respeito à regulação do estresse oxidativo, a ativação da FOXO3a pode aumentar a expressão de enzimas antioxidantes, como SOD e CAT, e inibir o acúmulo de ERO.65No entanto, a disfunção de FOXO3a pode desencadear o aumento da geração de MDA, um produto chave da peroxidação lipídica, exacerbando assim a apoptose celular 66. Ao nível da regulação imunológica, FOXO3a desencadeia ataques autoimunes ao regular os antígenos restritos ao MHC I67Este estudo relatou que a AMG aumentou drasticamente os níveis da proteína e do gene FOXO3a no tecido cutâneo de camundongos C3H/HeJ e em células HPEM induzidas por H2O2. Além disso, a AMG reduziu os níveis de ERO e a apoptose celular, enquanto aumentou a expressão de FOXO3a e os níveis de SOD, CAT e GPX-4 regulados por FOXO3a em células HPEM com baixa expressão de FOXO3a. Coletivamente, esses achados indicam que o efeito terapêutico da AMG sobre a AA está estreitamente ligado ao equilíbrio regulatório mediado por FOXO3a entre estresse oxidativo e apoptose celular. Considerando a relação causal da FOXO3a mediada pela AMG na melhora da AA, será necessário realizar estudos futuros com superexpressão de FOXO3a ou inibição farmacológica sob intervenção da AMG. Além disso, permanece por investigar se a FOXO3a mediada pela AMG pode atenuar o estresse oxidativo e modular as respostas inflamatórias para proteger as células-tronco do folículo capilar contra danos induzidos por ERO e destruição mediada pelo sistema imunológico. Outro ponto digno de nota é se a AMG exerce seu efeito antioxidante ao contrapor diretamente a toxicidade do H₂O₂ ou por meio da regulação da transdução de sinais intracelulares permanece uma questão não resolvida nesta pesquisa.
Em conclusão, este estudo confirmou pela primeira vez que AMG não apresentou toxicidade potencial para o fígado e os rins nas doses testadas. Além disso, foi demonstrado em nível molecular que AMG pode promover a expressão de FOXO3a, ativando assim transcricionalmente as expressões de SOD, CAT e GPX-4, e inibindo respostas inflamatórias e eventos apoptóticos para tratar AA (Figura 10). No entanto, algumas limitações que existem neste estudo ainda precisam ser exploradas e esclarecidas em pesquisas subsequentes. Em primeiro lugar, o esclarecimento da toxicidade de longo prazo e das propriedades farmacocinéticas de AMG em animais com AA constitui a base e o pré-requisito para pesquisas aprofundadas sobre seus efeitos farmacológicos e mecanismos moleculares. Em segundo lugar, os efeitos farmacológicos de AMG no tratamento de AA ainda requerem confirmação por meio de estudos em larga escala em múltiplos modelos animais e ensaios clínicos. Em termos do mecanismo molecular, ainda é necessário realizar experimentos de resgate para confirmar se é realmente FOXO3a que media o efeito farmacológico de AMG. Além disso, é necessário investigar se a atividade antioxidante direta de AMG ou o efeito antioxidante exercido por meio de FOXO3a mediado por AMG requer mais exploração.
Divulgações
Os autores não têm conflitos de interesse a declarar.
CONTRIBUIÇÃO DOS AUTORES:
Xun He: Investigação, Metodologia, Escrita – versão inicial. Jingsong Liu, Jiawei Wang e Zhe Dai: Curadoria de dados. Yugang Gong, Wei Lu e Xiaowei Sha: Software, Visualização e Validação. Xun He: Conceitualização, Escrita – Revisão &Edição, aquisição de financiamento e supervisão.
Agradecimentos
Este trabalho foi apoiado pelo Comitê de Cuidados Médicos para Funcionários da Província de Sichuan (2024-221).
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| MasterMix 5×Tudo-em-Um (com kit de remoção de DNA genômico AccuRT) | Applied Biological Materials Inc., Jiangsu, China | G492 | |
| anticorpo contra β-actina | Affinity Biosciences Co., Ltd., Wuhan, China | AF7018 | |
| Amygdalina | Chengdu Herbpurify Co., Ltd., Chengdu, China | K-001-181216 | |
| anticorpo contra catalase | Proteintech, Wuhan, China | 66765-1-Ig | |
| kit de catalase | Elabscience, Wuhan, China | E-BC-K031-M | |
| camundongos C3H/HeJ | Chengdu Yaokang Biotechnology Co., Ltd., Chengdu, China | N000190 | |
| kit de ensaio ChIP | Beyotime Biotechnology, Shanghai, China | P2078 | |
| meio de cultura 254 | Gibco, Thermo Fisher Scientific, America | M-254-500 | |
| reagente corante DAPI | Servicebio, Wuhan, China | G1012 | |
| Dispase II | Shanghai Yuanye Bio-Technology Co., Ltd., Shanghai, China | S25046 | |
| EvaGreen Express 2×qPCR MasterMix-Sem Corante | Applied Biological Materials Inc., Jiangsu, China | MasterMix-ES | |
| Preto rápido HB | Sangon Biotech Co., Ltd., Shanghai, China | A602008-0025 | |
| soro bovino fetal | Every Green | 13011-8611 | |
| microscópio de fluorescência | SOPTOP | CX40 | |
| anticorpo contra FOXO3a | Proteintech, Wuhan, China | 10849-1-AP | |
| microtomo congelador | Thermo | Cryotome E | |
| anticorpo contra glutationa peroxidase 4 | Proteintech, Wuhan, China | 67763-1-Ig | |
| kit de glutationa peroxidase 4 | Elabscience, Wuhan, China | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, USA | —— | |
| creme de imiquimode | Sichuan Mingxin Pharmaceutical Co. Ltd., Chengdu, China | H20030129 | |
| anticorpo contra interferon gama | Proteintech, Wuhan, China | 15365-1-AP | |
| kit de interferon gama | Elabscience, Wuhan, China | E-EL-H0108 e E-EL-M0048 | |
| anticorpo contra interleucina 6 | Proteintech, Wuhan, China | 21865-1-AP | |
| kit de interleucina 6 | Elabscience, Wuhan, China | E-EL-H6156 e E-EL-M0044 | |
| anticorpo contra interleucina 15 | Affinity Biosciences Ltd., Wuhan, China | DF2521 | |
| kit de interleucina 15 | Elabscience, Wuhan, China | E-EL-H0222 e E-EL-M0728 | |
| kit de malondialdeído | Elabscience, Wuhan, China | E-EL-0060 | |
| anticorpo contra MHC | Affinity Biosciences Ltd., Wuhan, China | DF8558 | |
| microscópio óptico | ZEISS | Primo Star | |
| cortador de parafina | Thermo scientific | HM325 | |
| software de digitalização patológica | 3DHISTECH (Hungary) | Slide Viewer2.5.0 | |
| solução penicilina-sintroid | Biosharp, Beijing, China | BL505A | |
| IgG de coelho | Beyotime Biotechnology, Shanghai, China | A7016 | |
| kit de ensaio de ERO | Beyotime Biotechnology, Shanghai, China | S0033M | |
| anticorpo contra superóxido dismutase 1 | Proteintech, Wuhan, China | 10269-1-AP | |
| inclusor de tecidos | Wuhan Junjie Electronics Co., Ltd., Wuhan China | JB-P5 | |
| hidroextrator de tecidos | Thermo scientific | STP420 ES | |
| kit de isolamento de RNA total | Foregene, Chengdu, China | RE-03014 | |
| kit de superóxido dismutase total | Elabscience, Wuhan, China | E-BC-K020-M | |
| Vaselina branca | Shanghai Aladdin Biochemical Technology Co., Ltd., Shanghai, China | P434227 |
Referências
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.