Fornecemos um protocolo detalhado e reprodutível para dissecar, imunomarcar e montar o sistema visual em desenvolvimento e o adulto de Drosophila para obtenção de imagens de alta resolução. Esses métodos permitem a visualização do padrão de neuroblastos, da especificação neuronal, do direcionamento dos axônios dos fotorreceptores e da organização do neuropilo adulto, oferecendo uma estrutura versátil para o estudo do desenvolvimento do sistema visual.
Artigo de método
Um Protocolo para Dissecação, Imunomarcação e Montagem do Sistema Visual de Drosophila
Neste artigo
Resumo
Resumo
O sistema visual de Drosophila é um modelo poderoso para investigar como a diversidade neuronal é gerada e integrada em circuitos neurais funcionais — uma questão central na neurociência do desenvolvimento. Ele compreende a retina e quatro neuropilos distintos: a lâmina, a medula, o lobula e a placa lobular, que juntos formam uma estrutura altamente organizada responsável por processar a entrada visual proveniente da retina e transmiti-la aos centros superiores do cérebro. Durante o desenvolvimento, o sistema visual passa por remodelações significativas. Na fase larval, neuroblastos são progressivamente gerados a partir do neuroepitélio e se dividem de maneira assimétrica para produzir diversos subtipos neuronais, integrando programas de padronização espacial e temporal. Esses neurônios então se diferenciam e estabelecem conexões sinápticas precisas, formando os circuitos funcionais do sistema visual adulto. Esses processos dinâmicos podem ser estudados com confiabilidade por meio de imunomarcação nas fases larval, pupal e adulta. Aqui, apresentamos um protocolo detalhado e reprodutível para a dissecação e imunomarcação do sistema visual em desenvolvimento e adulto de Drosophila. Concentramo-nos principalmente na obtenção de imagens representativas de neuroblastos larvais, com o objetivo de destacar a padronização espaciotemporal e a especificação neuronal, bem como visualizar a morfologia dos neuropilos adultos. Isso fornece uma base sólida para a visualização do sistema visual em desenvolvimento de Drosophila.
Introdução
O sistema visual de Drosophila melanogaster serve como um modelo importante no desenvolvimento para investigar os mecanismos celulares e moleculares subjacentes ao desenvolvimento do sistema nervoso. Suas estruturas altamente estereotipadas, ferramentas genéticas extensivas e processos de desenvolvimento conservados têm avançado nosso entendimento sobre o desenvolvimento de células-tronco neurais, especificação neuronal, montagem de circuitos e organização do cérebro. O sistema visual da mosca consiste na retina do olho composto e em quatro neuropilhos ópticos — lâmina, medula, lobula e placa lobular — organizados em um circuito hierárquico complexo1. As células fotorreceptoras sensoriais na retina detectam a luz e a convertem em sinais neurais2,3,4. Esses sinais passam por interneurônios locais e neurônios de projeção que interconectam os quatro neuropilhos ópticos, onde estágios sucessivos de processamento extraem características visuais como contraste, movimento e cor4,5. A informação visual processada é então transmitida para centros cerebrais superiores por meio de neurônios de projeção visuais para integração adicional4,5,6.
O lobo óptico em desenvolvimento passa por uma série de eventos desenvolvimentais precisamente cronometrados que transformam um neuroepitélio proliferativo (NE) em uma rede neural complexa7,8. O NE origina-se da placa óptica durante a embriogênese7,8. Durante as fases larvais, as células neuroepiteliais inicialmente se proliferam por divisões simétricas para expandir o reservatório de progenitores. Posteriormente, elas transitam gradualmente para neuroblastos, que se dividem de forma assimétrica para gerar neurônios e células gliais do sistema visual adulto9,10,11,12,13. Mecanismos de padronização espaço-temporal diversificam as identidades neuronais, com os neurônios recém-gerados formando camadas concêntricas dentro da medula em desenvolvimento e, subsequentemente, se diferenciando em circuitos funcionais durante o desenvolvimento pupal14,15,16,17,18,19. A integração de sinais espaço-temporais ativa fatores de transcrição neuronais específicos para cada tipo celular, cuja expressão sustentada define os tipos celulares neuronais14,15,20,21,22. Mecanismos semelhantes existem na lâmina e na lobula para definir identidades neuronais14,23,24,25,26.
A imagem de imunofluorescência do sistema visual em desenvolvimento tornou-se o método de escolha para visualizar os eventos celulares e moleculares subjacentes ao seu desenvolvimento. A visualização bem-sucedida depende não apenas da preparação de amostras teciduais de alta qualidade e reagentes de imunomarcação confiáveis, mas também da dissecação cuidadosa e da orientação precisa da amostra durante o montagem27,28. Diferentes estruturas e processos celulares em desenvolvimento exigem que as amostras sejam orientadas de maneiras específicas para revelar as características anatômicas do cérebro. Vários artigos e protocolos descreveram em detalhes a dissecação e a imunomarcação do cérebro de Drosophila28,29,30,31,32. No entanto, apenas alguns abordaram isso no contexto de um processo em desenvolvimento amplamente estudado no sistema visual27.
Aqui apresentamos um protocolo abrangente para a dissecação, imunomarcação e montagem dos sistemas visuais larvais e adultos. Um método simples e econômico de dissecação de cérebros larvais utiliza agulhas de seringa amplamente disponíveis, tornando o procedimento facilmente acessível para laboratórios e ambientes de ensino com ferramentas especializadas de dissecação limitadas. Demonstramos o protocolo por meio de exemplos representativos, incluindo a visualização da transição do epitélio neurogênico para neuroblasto (EN para NB) nas larvas, a organização neuronal concêntrica dentro da medula em desenvolvimento e os neuropilares do lobo óptico adulto. Também fornecemos exemplos que ilustram análises de padrões espaciais e temporais e o direcionamento dos fotorreceptores no sistema visual em desenvolvimento e no adulto. Em conjunto, esses procedimentos e orientações definidas de montagem fornecem uma estrutura prática para obtenção de imagens reprodutíveis e de alta qualidade do sistema visual em desenvolvimento e maduro de Drosophila, para estudos de neurodesenvolvimento.
Protocolo
1. Preparação dos reagentes e equipamentos
O sucesso na dissecação e imunomarcação do sistema visual de Drosophila exige o preparo de todos os reagentes e equipamentos antes de iniciar o experimento. Preparar todas as soluções com antecedência minimiza o tempo de manipulação do tecido e ajuda a preservar a morfologia tecidual ao longo do procedimento. Os seguintes reagentes devem ser preparados e mantidos à disposição:
- Solução Salina Tamponada com Fosfato (1x PBS): Prepare 1x PBS a partir da solução estoque 10x para dissecação de tecidos, lavagem e preparação de reagentes. O PBS fornece um ambiente isotônico que mantém a integridade do tecido durante o manuseio. Armazene o 1x PBS a 4 °C.
- Meio de Dissecação: Para dissecação, utilize o meio para insetos de Schneider gelado. O meio de Schneider é formulado para suportar tecidos de Drosophila, imitando de perto a composição iônica da hemolinfa de insetos, sendo recomendado para dissecações prolongadas.
- Solução Fixadora (4% de formaldeído em Solução Salina Tamponada com Fosfato com Triton X-100 (PBST)): Prepare uma solução fresca de 4% de formaldeído a partir de uma solução estoque de 16% em 1x PBST para garantir fixação e preservação tecidual ideais.
CAUTION: O formaldeído é altamente reativo e tóxico se inalado, ingerido ou absorvido pela pele. Manipule-o em uma cabine de segurança química utilizando equipamento de proteção individual (EPI) apropriado e descarte-o no recipiente designado para resíduos perigosos de formaldeído. - Tampão de Lavagem (1x PBST): Prepare PBST (1x PBS contendo 0,3% de Triton X-100) para uso como tampão de lavagem e permeabilização.
- Solução de Bloqueio: Utilize 5% de albumina de soro bovino (preparada a partir de BSA a 30% em 1x PBST) ou 5% de soro de cabra normal (5% NGS em 1x PBST) como solução de bloqueio. Isso ajuda a reduzir a ligação inespecífica de anticorpos. Armazene a 4 °C para uso prolongado.
- Preparação de Placas Revestidas com Sylgard: As placas de dissecação revestidas com Sylgard oferecem uma superfície macia que imobiliza os tecidos e protege as pontas de pinças finas. Misture a base Sylgard 184 e o agente de cura na proporção de 10:1 até completa homogeneização. Despeje em placas de Petri para obter uma camada uniforme e cure a 37 °C por 2–4 dias até secagem completa. O tempo útil da mistura catalisada de Sylgard 184 à temperatura ambiente (22–25 °C) é de aproximadamente 2 h; portanto, utilize a mistura dentro desse período.
- Resfrie previamente todos os meios e tampões de dissecação e mantenha-os em gelo durante o preparo das amostras, dissecação e imunomarcação para preservar a morfologia tecidual e reduzir a degradação. Antes de iniciar o protocolo, certifique-se de que todos os instrumentos de dissecação, lâminas, lamínulas, meio de montagem e pinças ou agulhas de dissecação estejam preparados e facilmente acessíveis. Colete moscas ou larvas no estágio de desenvolvimento apropriado e mantenha-as prontas para dissecação.
Não foi necessária aprovação ética ou orientação para trabalhar com Drosophila melanogaster.
2. Dissecação, imunomarcação e montagem do cérebro de larva
- Dissecação:
- Colete as larvas de Drosophila de terceiro instar vagantes, entre 8 e 10, do interior do frasco com um pincel úmido e lave-as em uma placa de vidro com PBS 1X gelado para remover resíduos de alimento.
- Usando pinças ou um pincel pequeno, transfira uma única larva da placa de vidro para a gota de PBS 1X gelado ou meio Schneider no centro da placa de Petri de 150 mm (sem Sylgard).
- Segure a larva na região mediana do corpo com uma agulha de seringa de 1 mL usando a mão não dominante. Com a mão dominante, faça um corte transversal com a agulha da seringa na mesma posição, dividindo a larva em duas metades (Figura 1A–B).
ATENÇÃO: Agulhas de seringa são afiadas e podem causar lesões. Descarte materiais cortantes usados em recipiente apropriado para materiais perfurocortantes. - Segure a metade anterior da larva (identificável pelos ganchos bucais pretos) pela borda do corte com a mão não dominante. Com a agulha da seringa na mão dominante, empurre suavemente os ganchos bucais para dentro da cavidade corporal, como se estivesse virando uma meia pelo avesso. Esse movimento eversa a cutícula larval, produzindo uma preparação invertida. O método de dissecação invertida é mais rápido e ajuda a preservar o cérebro e os discos oculares de danos (Figura 1C–D).
- Uma vez evertida a cutícula, o cérebro pode ser visto ligado aos discos imaginais e aos ganchos bucais. Usando a agulha da seringa, remova os tecidos indesejados, incluindo o intestino, glândulas salivares e corpo gorduroso (Figura 1E).
- Transfira o cérebro dissecado para a placa de vidro contendo 300 µL de PBS 1X gelado, mantida sobre gelo (Figura 1F).
- Repita os passos 2.1.2–2.1.6 até que um número suficiente de cérebros tenha sido dissecado ou até que 20 min tenham passado.
NOTA: O tempo de dissecação não deve exceder 20 min para preservar alta qualidade tecidual. - Use uma pipeta de 200 μL para aspirar a maior parte do tampão dos cérebros, deixando apenas o suficiente para mantê-los submersos.
- Fixação: Adicione 200 μL de solução fixadora fria (4% de formaldeído) aos cérebros no recipiente de dissecação e cubra com uma lâmina de microscópio, em seguida coloque o recipiente no agitador orbital na bancada com velocidade de 28 e ângulo de oscilação de 8° por 20 min.
NOTA: Evite altas velocidades de oscilação para prevenir a desintegração do tecido.
ATENÇÃO: O formaldeído é perigoso. Use EPI adequado, incluindo luvas, jaleco de laboratório, máscara facial e proteção ocular, ao manipular soluções contendo formaldeído. - Aspire a solução fixadora, em seguida adicione 200 μL de tampão de lavagem (PBS 1X com 0,3% de Triton X-100). Realize duas lavagens rápidas com PBST, seguidas por duas lavagens de 20 min.
NOTA: O Triton X-100 é um detergente essencial para a permeabilização de amostras teciduais e facilitar a penetração de anticorpos. - Bloqueio: Aspire o PBST e adicione solução de bloqueio (5% de soro normal de cabra ou 5% de BSA em 1x PBST) aos cérebros. Incube por 40 min à temperatura ambiente.
NOTA: A incubação na solução de bloqueio satura os sítios de ligação não específicos no tecido, reduzindo assim a coloração de fundo e aumentando a especificidade do anticorpo. Este passo é recomendado, embora possa ser omitido se a coloração com anticorpo for específica e apresentar fundo mínimo.
- Imunomarcação
- Prepare o coquetel de anticorpo primário na diluição recomendada em aproximadamente 50 μL de PBST de lavagem.
NOTA: Mantenha alíquotas de anticorpos sobre gelo durante o preparo para manter a estabilidade e atividade do anticorpo. - Transfira os cérebros do poço de vidro para tubos microcentrífugos de 1,5 mL. Remova o excesso de solução de bloqueio dos cérebros, deixando o suficiente para mantê-los submersos.
- Prepare a solução do coquetel de anticorpos e adicione-a ao tubo com os cérebros. Misture suavemente com uma ponteira de pipeta de 20 µL para garantir distribuição uniforme do anticorpo.
NOTA: Incubar os cérebros em 50 µL de solução de anticorpo primário reduz o consumo de anticorpo sem comprometer a qualidade da coloração. - Incube os tubos contendo os cérebros em suporte a 4 °C por 16 h.
NOTA: A incubação com anticorpo primário pode ser realizada por 48–72 h a 4 °C para melhorar a coloração em alguns casos. Os anticorpos primários podem ser reutilizados pelo menos 3 vezes sem redução na qualidade da coloração. - Adicione 200 μL de PBST. Realize 2 lavagens rápidas seguidas por 2 lavagens longas de 20 min cada.
- Prepare o coquetel de anticorpo secundário nas diluições recomendadas em aproximadamente 250 μL de PBST de lavagem.
NOTA: Realize todas as incubações após adicionar os anticorpos secundários no escuro para evitar exposição à luz, que pode causar fotodegradação. - Remova o excesso de PBST, em seguida adicione o coquetel de anticorpo secundário aos cérebros. Incube por 2 h à temperatura ambiente (22–25 °C) ou 16 h a 4°C em agitador orbital, coberto com uma caixa de papelão para manter o escuro.
- Repita os passos de lavagem anteriores (2 enxágues rápidos, seguidos por 2 lavagens longas de 20 min cada) usando PBST.
PARADA: Os cérebros podem ser armazenados em PBST a 4 °C por até 1 semana. No entanto, recomenda-se realizar a imagem dos amostras o mais rápido possível após o montagem para minimizar a perda de sinal devido à degradação tecidual ou decaimento do fluoróforo.
- Prepare o coquetel de anticorpo primário na diluição recomendada em aproximadamente 50 μL de PBST de lavagem.
- Montagem dos lobos ópticos larvais
- Prepare uma lâmina de microscópio limpando-a com etanol 70% e deixe secar por 5 min (Figura 2E).
- Aplicar duas tiras paralelas de fita dupla face no centro da lâmina de microscópio, deixando um espaço de 5–10 mm entre as tiras.
- Usando uma pipeta de 200 µL com ponteira cortada, transfira os cérebros para outra lâmina de microscópio limpa e remova tecidos indesejados, como discos imaginais de patas, que possam obstruir a região de interesse durante a imagem.
NOTA: Pequenos tecidos que não obstruem nossa região de interesse durante a imagem podem ser mantidos durante o montagem. - Transfira os cérebros para a lâmina de microscópio contendo a fita dupla face.
NOTA: Certifique-se de que os cérebros não sequem e estejam sempre submersos no tampão PBST 1x. - Identifique a orientação anterior–posterior de cada cérebro larval sob um estereomicroscópio usando a morfologia característica saliente do cérebro e a posição da corda nervosa ventral (VNC) como marcos anatômicos (Figura 2A–D).
- Montagem anterior: Posicione o cérebro com o lado saliente voltado para cima, afastado da lâmina, e a VNC voltada para a lâmina (Figura 2A, Figura 3A).
- Montagem posterior: Posicione o cérebro com o lado saliente voltado para a lâmina e a VNC voltada para cima, afastada da lâmina (Figura 2B, Figura 3F).
- Montagem lateral: Bisseccione o cérebro montado anteriormente e a VNC ao longo da linha média usando uma agulha de seringa de 1 mL ou uma agulha fina de tungstênio para gerar duas metades do cérebro (Figura 2C). Gire cada hemisfério em 90° e posicione-o com o lado lateral, voltado para o lóbulo-plug, em direção à lamínula e a superfície de corte medial afastada do plano de imagem (Figura 2D, Figura 3K).
NOTA: Ajuste a posição do cérebro sob o estereomicroscópio conforme necessário para obter a orientação desejada. Mantenha o cérebro submerso durante o posicionamento. - Aspire a maior parte do tampão, deixando o suficiente para manter os cérebros submersos.
- Adicione 20–40 μL de meio de montagem (SlowFade Gold Antifade) à área contendo os cérebros e espalhe uniformemente com uma pipeta de 20 μL.
- Coloque cuidadosamente uma lamínula de modo que ela repouse sobre ambas as tiras de fita e selar as bordas com esmalte de unha.
NOTA: Se grandes bolhas se formarem após colocar a lamínula, adicione mais meio de montagem na região entre a lamínula e a lâmina até que as bolhas desapareçam.
3. Dissecção, imunomarcação e montagem de cérebro adulto
- Dissecação: A dissecação do cérebro adulto é mais exigente tecnicamente e requer manipulação cuidadosa. Recomenda-se fortemente o uso de uma pinça afiada de aço inoxidável para a dissecação do cérebro adulto.
- Anestesie um número suficiente de moscas adultas da idade requerida em um suporte para CO2, então transfira-as para o lenço umedecido colocado no recipiente com gelo para manter a anestesia durante a dissecação.
OBSERVAÇÃO: Após a anestesia, as moscas podem ser mantidas úmidas com um lenço de papel sobre gelo durante a dissecação, eliminando a necessidade de manter o CO2 para facilitar o manuseio. - Usando pinças finas, pegue suavemente a mosca adulta pelas pernas e coloque-a na placa de Petri revestida com Sylgard.
- Fixe a mosca na placa revestida com Sylgard inserindo um alfinete por cima, atravessando o centro do tórax, longe da região cerebral. Mergulhe a mosca em uma gota de solução-tampão PBS 1X/mídia Schneider gelada e posicione a cabeça da mosca para a dissecação girando a mosca em sua direção ou movendo a placa.
ATENÇÃO: Os alfinetes de dissecação são afiados e podem causar lesões. Descarte-os em um recipiente apropriado para materiais perfurocortantes. - Usando pinças na mão dominante, remova cuidadosamente o probóscide e a cutícula frontal entre os olhos para expor parcialmente o cérebro. Isso cria uma abertura sob a cutícula retiniana para que as pinças facilitem a subsequente dissecação cerebral.
- Usando pinças finas, segure suavemente a retina nas suas bordas mais externas e puxe-a para os lados. Tenha cuidado para não perfurar os lóbulos ópticos ao destacar a retina.
- Remova cuidadosamente os tecidos residuais, como a traqueia ou o intestino anterior, aderidos ao cérebro.
- Transfira o cérebro limpo para uma placa de vidro tipo spot contendo 200 µL de PBS 1X, mantido sob gelo.
- Repita os passos de dissecação 3.1.2 a 3.1.7 até que um número suficiente de cérebros seja coletado ou até que 30 minutos tenham se passado.
- Utilize um 200 µL pipetar para aspirar o PBS dos cérebros, deixando apenas o suficiente para mantê-los submersos.
- Fixação: Adicione 200 μL de solução fixadora fria (formaldeído 4% em PBS 1X) na placa de vidro com gotas contendo cérebros adultos dissecados e, em seguida, colocar a placa, coberta com uma lamínula de microscopia, sobre o agitador horizontal com velocidade de rotação de 28 durante 30 min.
ATENÇÃO: O formaldeído é perigoso. Use luvas apropriadas, jaleco de laboratório e proteção ocular ao manipular soluções contendo formaldeído. - Aspire a solução de fixação, deixando o suficiente para cobrir os cérebros, e adicione 200 µL PBST. Repita 3 lavagens rápidas e 2 lavagens longas, cada uma por 20 min.
- Bloqueio: Remova o PBST e incube os cérebros em uma solução bloqueadora (5% NGS ou 5% BSA) por 45 min.
- Transfira os cérebros para um tubo de 1,5 mL e remova a maior parte da solução bloqueadora, deixando apenas o suficiente para mantê-los submersos.
- Anestesie um número suficiente de moscas adultas da idade requerida em um suporte para CO2, então transfira-as para o lenço umedecido colocado no recipiente com gelo para manter a anestesia durante a dissecação.
- Imunomarcação
- Prepare o coquetel de anticorpo primário na diluição apropriada em 50 µL de PBST.
- Adicione o coquetel de anticorpos primários ao tubo com os cérebros e incube por 12–16 h a 4 °C.
- Aspire a solução de anticorpo, depois adicione PBST para 2 lavagens rápidas e 2 lavagens longas de 20 min cada.
- Prepare o coquetel de anticorpo secundário nas diluições recomendadas em 250 µL de PBST.
- Remova o PBST e, em seguida, adicione o coquetel de anticorpo secundário. Incube em agitador na bancada à temperatura ambiente (22–25 °C) por 2 h ou deixar 12–16 h em 4 °C no escuro.
- Repita as lavagens (3 rápidas e 2 longas, cada uma por 20 min).
PONTO DE PAUSA: Pausar nesta etapa e manter os cérebros em PBST 4 °C por uma semana.
- Montagem de lóbulos ópticos de adultos
- Prepare um lâmina microscópica limpando-a com etanol 70%.
- Prepare uma ponte de lamínulas colocando duas lamínulas de 18 x 18 mm sobre uma pequena gota de cola adesiva universal para criar um espaço (menor que 1 mm) entre elas para os cérebrosFigura 2F).
- Usando um 200 µL corte a ponta, transfira os cérebros limpos para uma lâmina e remova tecidos, como traqueia ou cutícula da cabeça, que possam obstruir a visualização durante a imagem.
- Transfira os cérebros limpos para o lado de montagem preparado no passo 3.3.2.
OBSERVAÇÃO: Mantenha os cérebros submersos em PBST 1x durante todo o procedimento de montagem e não permita que sequem. - Sob um estereomicroscópio, identifique a orientação ântero-posterior de cada cérebro adulto utilizando sua morfologia geral. A superfície convexa corresponde ao lado anterior, enquanto a superfície côncava corresponde ao lado posterior.
- Montagem anterior: Posicione o cérebro com a superfície anterior e os lobos antenais voltados para a lamínulaFigura 4A).
- Montagem posterior: Posicione o cérebro com a superfície posterior voltada para a lamínula e os lóbulos antenais voltados para longe da lamínula (Figura 4D).
- Montagem lateral: Posicione o cérebro de modo que os neuropilos visuais fiquem orientados paralelamente ao plano de imagem. Coloque o cérebro na posição anterior e rotacione-o 90°, e apoie-o contra a borda da lamínula espaçadora (Figura 4G).
- Aspire a maior parte do tampão PBST 1x, deixando quantidade suficiente para manter os cérebros submersos.
- Adicione 40 μL de meio de montagem (preferencialmente VECTASHIELD Antifade Mounting Media) sobre a área contendo os cérebros, em seguida espalhe-o uniformemente com uma 20 μL pipetar. Adicione mais meio de montagem, se necessário.
OBSERVAÇÃO: o meio de montagem antidesvanecimento VECTASHIELD funciona bem com lâminas de montagem em ponte com lamínulas, pois sua maior viscosidade ajuda a mantê-lo no espaço entre as lamínulas. - Coloque cuidadosamente uma lamínula de 22 x 22 mm de modo que ela repouse sobre duas lamínulas. Remova quaisquer bolhas adicionando mais meio de montagem pela abertura.
- Sela as bordas com esmalte (Figura 2F).
4. Aquisição de imagens e processamento de imagens
- Adquira imagens usando um microscópio confocal Leica STELLARIS 8 com objetivas de 40x (NA = 1,3) e de imersão em óleo de 63x (NA = 1,4), com resolução de 1024 × 1024 pixels.
- Recolha pilhas Z com um passo z de 1 µm e velocidade de varredura de 200 Hz.
- Realize a imagem com varredura bidirecional e faixa de zoom de 0,75–1,0x, dependendo da amostra.
- Execute a detecção com ajuste de ganho de 100, utilizando o detector apropriado para cada fluoróforo.
NOTA: Utilize comprimentos de onda de excitação de 405, 488, 555 e 647 nm, e potência a laser ajustada conforme o anticorpo e o fluoróforo em análise. - Adquira imagens usando o software de aquisição da Leica e processe-as usando Fiji/ImageJ2 versão 2.16.0/1.54p.
Resultados
A dissecação bem-sucedida, a imunomarcação e as orientações corretas de montagem são essenciais para preservar a estrutura geral do lobo óptico em desenvolvimento e captar com precisão suas características anatômicas, transições desenvolvimentais e tipos celulares. Diferentes orientações de montagem fornecem vistas complementares dos sistemas visuais larvais e adultos de Drosophila e permitem a visualização de diferentes regiões anatômicas e características neuronais.
Orientações para Montagem de Larvas:
Esta seção ilustra orientações representativas de montagem que facilitam a obtenção de imagens do lobo óptico larval em desenvolvimento (Figura 3). O esquema do cérebro larval destaca as principais estruturas do lobo óptico, incluindo o CPO, a medula e a lâmina (Figura 3A). Uma montagem anterior mostra o CPO, a transição do neuroepitélio para neuroblasto (NE-para-NB), a faixa de neuroblastos da medula e a lâmina em desenvolvimento. Um cérebro montado anteriormente, corado com Deadpan (Dpn), E-Caderina (ECad) e Dachshund (Dac), evidencia essas estruturas (Figura 3B). Essa orientação também permite resolver a cascata de fatores de transcrição temporais nos neuroblastos da medula, conforme demonstrado pela expressão sequencial de Hth, Opa, Erm e Ey (Figura 3C). Os axônios dos fotorreceptores, marcados com anticorpos anti-Chp, intercalados com neurônios da lâmina, também podem ser visualizados na orientação anterior (Figura 3D, E). A montagem posterior expõe o centro de proliferação interno (CPI) e as pontas do CPO, fornecendo vistas complementares do lobo óptico em desenvolvimento (Figura 3F, G-H). Os axônios dos fotorreceptores (positivos para Chp), intercalados com neurônios da lâmina, também podem ser visualizados na orientação posterior (Figura 3I, J). Juntamente com a montagem anterior, essa orientação oferece acesso complementar a diferentes regiões do sistema visual larval em desenvolvimento. A montagem lateral revela o padrão espacial do CPO, juntamente com a organização concêntrica dos neurônios (Figura 3K). A montagem lateral fornece simultaneamente uma visão da organização concêntrica dos neurônios da medula (Figura 3L). Populações neuronais representativas incluem neurônios intrínsecos da medula positivos para Bsh, independentes de domínio espacial (Mi1), e neurônios transmedulares positivos para TfAP-2 (Tm1, Tm2, Tm4 e Tm6), bem como subtipos neuronais específicos de região, como Dm8, DRA-Dm8 e Dm11 (Figura 3L). Vsx e Optix (Optix-GAL4>GFP) estão presentes no neuroepitélio (NE), mas não nos neuroblastos (NB), enquanto Rx é encontrado tanto no NE quanto nos NBs19. Além disso, Vsx e Rx são expressos em neurônios pós-mitóticos específicos correspondentes aos seus domínios espaciais19 (Figura 3M). Os axônios dos fotorreceptores que se dirigem à lâmina e à medula podem ser visualizados na orientação lateral (Figura 3N, O). Essas orientações de montagem permitem a análise de como o padrão espacial e temporal dos neuroblastos da medula dá origem a identidades neuronais distintas14,22.
Orientações para Montagem de Adultos: Esta seção apresenta um esquema e um exemplo representativo das orientações de montagem para a obtenção de imagens do lobo óptico de Drosophila adulta. A montagem anterior fornece uma visão frontal do lobo óptico, revelando a lâmina, a medula e as regiões anteriores da lobula e da placa da lobula (Figura 4A). O anticorpo anti-Bruchpilot (Brp) marca os neuropilos ópticos, enquanto Bsh identifica os neurônios Mi1 no córtex da medula (Figura 4B). Na mesma orientação, o anticorpo anti-Chaoptin (Chp) marca os axônios dos fotorreceptores que se projetam para a lâmina e a medula (Figura 4C). A orientação de montagem posterior expõe regiões mais profundas do lobo óptico, permitindo a visualização em profundidade do neuropilo da medula (Figura 4D, E). Nessa orientação, a marcação com Chp permite distinguir os terminais dos fotorreceptores dentro da medula (Figura 4F). A montagem lateral fornece uma visão lateral do lobo óptico, possibilitando a visualização simultânea da lâmina, medula, lobula e placa da lobula (Figura 4G, H). Bsh marca os neurônios da lâmina (L4 e L5) juntamente com os neurônios intrínsecos da medula (Mi1), enquanto Brp define os limites dos neuropilos. As projeções dos fotorreceptores direcionam-se à lâmina e à medula (Figura 4I), fornecendo uma visão geral da organização do sistema visual adulto.
Juntas, as orientações de montagem anterior, posterior e lateral oferecem vistas complementares dos sistemas visuais em desenvolvimento e maduros, permitindo aos pesquisadores examinar diferentes regiões anatômicas, características de desenvolvimento e populações neuronais com base em seus objetivos experimentais.
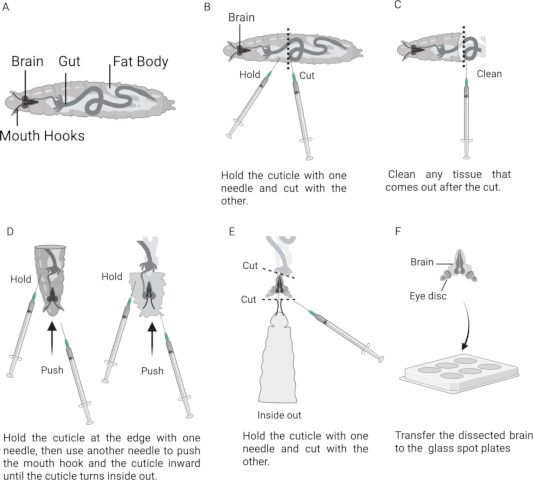
Figura 1: Dissecação do cérebro de larva de Drosophila utilizando o método da agulha de seringa. (A) Esquema de uma larva de terceiro instar tardio mostrando a localização do cérebro e estruturas anatômicas associadas. (B) Mostra a larva posicionada entre duas agulhas de seringa, com a linha tracejada indicando o local aproximado da separação transversal. (C) Metade anterior da larva após a remoção dos tecidos circundantes. (D) Etapas sequenciais mostrando a inversão da cutícula larval com agulhas de seringa. (E) Preparação evertida mostrando o cérebro, discos imaginais e ganchos bucais. (F) Cérebro larval isolado em uma placa de vidro com cavidades. Clique aqui para visualizar uma versão maior desta figura.
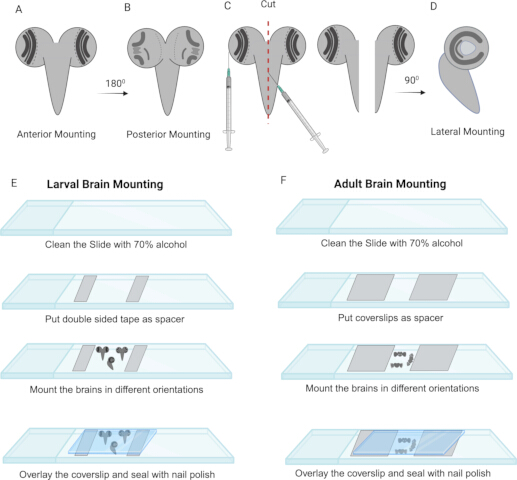
Figura 2: Etapas de montagem dos lóbulos ópticos larvais e adultos de Drosophila. (A) Orientação de montagem anterior do cérebro larval. (B) Orientação de montagem posterior do cérebro larval. (C) Bissecção bilateral do cérebro montado anteriormente utilizando uma agulha de seringa. (D) Orientação lateral de montagem do cérebro hemissecionado. (E) Etapas representativas para montagem do cérebro larval. (F) Etapas representativas para montagem do cérebro adulto. Clique aqui para visualizar uma versão maior desta figura.
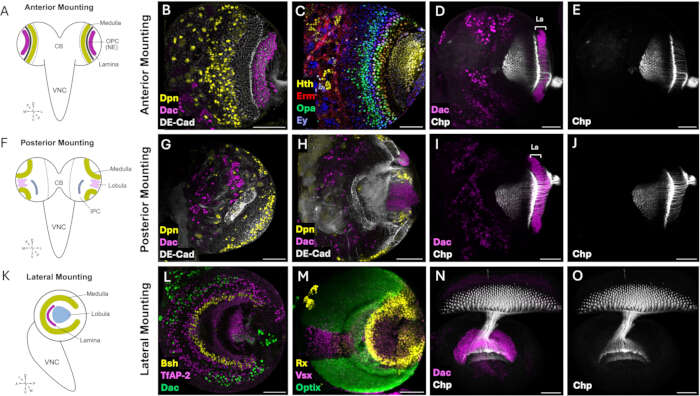
Figura 3: Orientações para montagem no processo de imagem do sistema visual de larvas de Drosophila. (A) Esquema ilustrando a orientação anterior de montagem do cérebro de larva de terceiro estágio, com a superfície anterior voltada para a lamínula. (B) Imagem confocal representativa de um cérebro larval montado em orientação anterior, mostrando o centro de proliferação externo (CPE) marcado com anti-DE-Caderina (DE-CAD, cinza), neuroblastos da medula marcados com anti-Deadpan (Dpn, amarelo) e a lâmina em desenvolvimento marcada com anti-Dachshund (Dac, magenta). (C) Imagem dos neuroblastos da medula expressando sequencialmente os fatores de transcrição temporais Homothorax (Hth), Odd-paired (Opa), Earmuff (Erm) e Eyeless (Ey) durante o desenvolvimento dos neuroblastos. (D-E) Imagem representativa de axônios de fotorreceptores projetando-se do disco imaginal do olho para a lâmina e medula em desenvolvimento. (F) Esquema ilustrando a orientação posterior de montagem do cérebro larval, com a superfície posterior voltada para a lamínula. (G) Imagem confocal da superfície posterior superficial do lobo óptico, mostrando o centro de proliferação interno (CPI) e os neuroblastos da medula posicionados nas pontas do CPE (pCPE). (H) Seção óptica adquirida mais profundamente no lobo óptico posterior, destacando o CPI e o lobulo em desenvolvimento. (I-J) Vista posterior dos axônios de fotorreceptores projetando-se para o lobo óptico em desenvolvimento. (K) Esquema ilustrando a orientação lateral de montagem de um cérebro larval hemissecionado, com a superfície medial cortada voltada para a lamínula, para visualizar a organização concêntrica da medula em desenvolvimento juntamente com a lâmina e o tampão do lobulo. (L) Imagem confocal representativa mostrando o arranjo concêntrico das populações neuronais da medula, incluindo neurônios Mi1 marcados por Brain-specific homeobox (Bsh), neurônios Tm1, Tm2, Tm4 e Tm6 marcados por TfAP-2, neurônios Dm8 positivos para Dachshund (Dac) na medula ventral e neurônios DRA-Dm8 e Dm11 na área da borda dorsal, ilustrando a organização espacial dos subtipos neuronais da medula. (M) Projeção de intensidade máxima do centro de proliferação externo, mostrando os domínios de padronização espacial definidos pelos fatores de transcrição Vsx, Optix (Optix-GAL4>GFP) e Rx no lobo óptico em desenvolvimento. (N-O) Imagem representativa de axônios de fotorreceptores na orientação lateral de montagem, mostrando suas projeções e alvo dentro da lâmina e medula em desenvolvimento. Barra de escala = 50 µm. Abreviações: La = Lâmina. Clique aqui para visualizar uma versão maior desta figura.
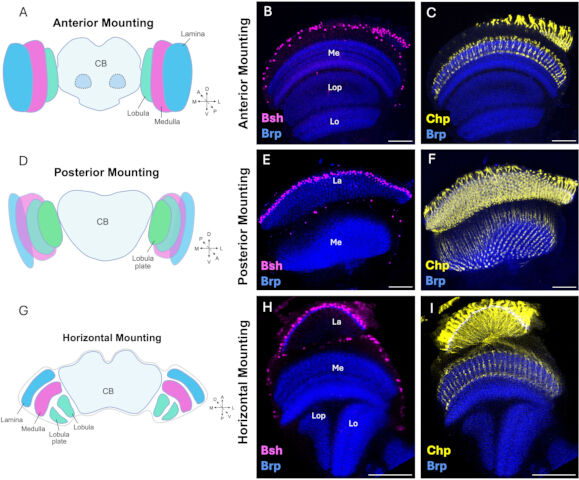
Figura 4: Orientações para montagem no imageamento do sistema visual de Drosophila adulta. (A) Esquema ilustrando a orientação de montagem anterior do cérebro adulto, com a superfície anterior voltada para a lamínula. (B) Imagem confocal representativa de um cérebro adulto montado anteriormente, mostrando neurônios Mi1 positivos para homeobox específico do cérebro (Bsh) (magenta) no córtex e neuropilas da medula, marcados com anticorpo anti-Bruchpilot (Brp, azul). Esta orientação fornece uma visão anterior da lâmina periférica, medala, lobula e placa da lobula. (C) Imagem representativa de axônios de fotorreceptores marcados com anticorpo anti-Chaoptin (Chp, amarelo) projetando-se nas neuropilas da lâmina e medala. (D) Esquema ilustrando a orientação de montagem posterior do cérebro adulto, com a superfície posterior voltada para a lamínula. (E) Imagem confocal representativa do sistema visual adulto montado posteriormente, destacando as camadas mais profundas da neuropila da medala marcada com anti-Brp. (F) Visão posterior de axônios de fotorreceptores marcados com anti-Chaoptin (Chp, amarelo), mostrando seu direcionamento dentro da neuropila da medala. (G) Esquema ilustrando a orientação de montagem lateral do cérebro adulto, com um lobo óptico posicionado paralelamente à lamínula para visualizar a organização geral do sistema visual. (H) Visão lateral representativa do lobo óptico adulto mostrando neurônios laminares positivos para Bsh (L4 e L5) e neurônios Mi1 da medala (magenta), juntamente com neuropilas marcadas com anti-Brp (azul), revelando a organização espacial da lâmina, medala, lobula e placa da lobula. (I) Imagem representativa de axônios de fotorreceptores marcados com anti-Chaoptin (Chp, amarelo) projetando-se nas neuropilas da lâmina e medala marcadas com anti-Brp (azul). Barra de escala = 50 µm. Abreviações: Me = Medala; La = Lâmina; Lo = Lobula; Lop = Placa da lobula. Clique aqui para visualizar uma versão maior desta figura.
Discussão
Este protocolo fornece um método confiável para dissecar, imunomarcar e montar sistemas visuais de Drosophila larvais e adultos para imageamento confocal de alta resolução. O procedimento preserva a integridade estrutural e a morfologia dos lobos ópticos em desenvolvimento e maduros, ao mesmo tempo que oferece orientações de montagem que permitem a visualização ideal de processos-chave do desenvolvimento, populações neuronais e estruturas de neuropila. Exemplos representativos descritos incluem a transição do neuroepitélio para neuroblasto (NE-para-NB), o padrão espaço-temporal no lobo medular, o direcionamento dos axônios dos fotorreceptores no lobo óptico e a organização das neuropilas do sistema visual adulto9,10,13,14,23. Este protocolo oferece, portanto, uma estrutura flexível que pode ser facilmente adaptada para visualizar outros processos ou tipos celulares em qualquer estágio de desenvolvimento.
Em comparação com métodos previamente publicados, este protocolo combina procedimentos otimizados para os sistemas visuais de larvas e adultos de Drosophila e oferece múltiplas orientações de montagem adaptadas a diferentes questões experimentais. Embora diversos protocolos publicados descrevam a dissecação e imunomarcação do cérebro de Drosophila28,29,30,31,32, poucos abordam especificamente o sistema visual no contexto de processos de desenvolvimento27. O protocolo descreve um método alternativo de dissecação de larvas que utiliza seringas de 1 mL de fácil acesso em vez de pinças finas especializadas. Embora esta abordagem exija uma curva de aprendizado mais acentuada, oferece uma alternativa limpa, econômica e rápida, que pode ser particularmente valiosa para laboratórios de ensino e grupos de pesquisa com acesso limitado a equipamentos especializados de dissecação. Na nossa avaliação, este método de dissecação é menos agressivo ao cérebro do que o método com pinças, que puxa o cérebro durante a dissecação e frequentemente resulta em lesões. Além disso, nosso protocolo de imunomarcação utiliza com parcimônia coquetéis de anticorpos em volumes reduzidos, sem comprometer a qualidade da marcação, conservando assim anticorpos comerciais que muitas vezes são caros. Em conjunto, essas características oferecem vantagens práticas em termos de acessibilidade, dissecação e montagem, ao mesmo tempo que permitem que o protocolo seja facilmente adaptado a diferentes requisitos experimentais.
A implementação bem-sucedida do protocolo depende da atenção cuidadosa a várias etapas fundamentais. Os desafios comuns geralmente podem ser resolvidos com ajustes nos procedimentos de dissecação, fixação, coloração ou montagem. O estresse mecânico excessivo durante a dissecação, agitação ou pipetagem pode causar danos teciduais ou fragmentação. Portanto, realize as dissecações rapidamente em PBS gelado, utilizando movimentos suaves ao remover os tecidos circundantes e durante as etapas subsequentes de agitação e pipetagem. A fixação inadequada, indicada por distorção tecidual, perda de morfologia ou coloração inconsistente, pode resultar de tempo insuficiente de fixação ou de uma solução fixadora inadequada. O uso de solução recém-preparada de formaldeído e a imersão completa do tecido durante a fixação ajudam a manter a morfologia tecidual e a consistência da coloração. A coloração fraca ou irregular pode resultar de permeabilização insuficiente, penetração inadequada do anticorpo ou incubação subótima do anticorpo. O aumento do tempo de permeabilização ou de incubação do anticorpo, e quando apropriado, a extensão da incubação do anticorpo primário a 4 °C, podem melhorar a penetração do anticorpo e a coloração. A coloração de fundo elevada pode resultar de bloqueio ou lavagem inadequados, ou de concentração excessiva de anticorpo. Um bloqueio e lavagem adequados, juntamente com o ajuste apropriado da concentração do anticorpo, podem ajudar a reduzir a coloração inespecífica. A orientação incorreta na montagem pode obscurecer a região de interesse ou posicioná-la muito distante do coverslip. A reorientação do cérebro de acordo com os marcos anatômicos descritos no Protocolo e o posicionamento da região de interesse próxima ao coverslip podem facilitar a obtenção de imagens da estrutura anatômica correta.
Apesar de sua versatilidade, o protocolo pode precisar de ajustes para tecidos específicos, estágios de desenvolvimento, anticorpos e requisitos de imagem. Por exemplo, alguns tecidos podem se beneficiar de uma fixação mais curta em gelo, enquanto certos anticorpos podem exigir uma incubação prolongada a 4 °C por até uma semana, ou, inversamente, uma incubação mais curta a 22–25 °C. A qualidade da fixação pode ser avaliada pela preservação da morfologia geral do cérebro e do lobo óptico, limites teciduais bem definidos e mínima distorção, fragmentação ou descolamento. Da mesma forma, uma permeabilização adequada pode ser avaliada por uma coloração relativamente uniforme com o anticorpo em todo o tecido, indicando uma penetração suficiente do anticorpo. Essas considerações permitem flexibilidade para ajustar as condições de fixação, permeabilização, coloração e montagem de acordo com a aplicação experimental específica, preservando ao mesmo tempo o sistema visual de Drosophila.
Divulgações
Os autores declaram não haver conflitos de interesse. Os autores revisaram e aprovaram todas as edições finais.
A ferramenta de edição de idioma (Grammarly) foi utilizada para corrigir a ortografia e reestruturar as frases.
Agradecimentos
Os anticorpos monoclonais Brp, Dac, DE-Cad e Chp foram obtidos do Developmental Studies Hybridoma Bank, criado pelo NICHD dos NIH e mantido no Departamento de Biologia da Universidade de Iowa, Iowa City, IA 52242. A.B., A.R. e C.S. receberam apoio da Tamkeen por meio do Prêmio do Instituto de Pesquisa da NYU Abu Dhabi concedido ao Centro de Genômica e Biologia de Sistemas da NYU Abu Dhabi (ADHPG-CGSB) e do financiamento NIH RO1 EY017916 concedido a C.D.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Austerlitz Pinos de Estabilização para Insetos, 0,15 mm | Fine Science Tools | 26002-15 | |
| Anticorpo: Rato anti-Brp | Banco de Híbridos para Estudos do Desenvolvimento | nc82 | Diluição 1:50 |
| Anticorpo: Anti-Chp de camundongo | Banco de Híbridos para Estudos do Desenvolvimento | 24B10 | Diluição 1:50 |
| Anticorpo: Rato anti-DE-CAD | Banco de Híbridos para Estudos do Desenvolvimento | DCAD2 | Diluição 1:20 |
| Anticorpo: Anti-Dac de camundongo | Banco de Hibridomas para Estudos do Desenvolvimento | mAbdac1-1 | Diluição 1:100 |
| Anticorpo: Ovelha anti-GFP | BioRad | 4745-1051 | Diluição 1:200 |
| Anticorpo: Anti-Bsh coelho | Desplan lab | - | Diluição 1:1000 |
| Anticorpo: anti-Hth de porquinho-da-índia | Desplan lab | - | Diluição 1:100 |
| Anticorpo: anti-TfAP-2 de origem em porquinho-da-índia | laboratório Desplan | - | Diluição 1:500 |
| Anticorpo: coelho anti-Ey | Desplan lab | - | Diluição 1:200 |
| Anticorpo: Rato anti-Erm | Desplan lab | - | Diluição 1:100 |
| Anticorpo: anti-Rx de porquinho-da-índia | Desplan lab | - | Diluição 1:300 |
| Anticorpo: coelho anti-Vsx | Desplan lab | - | Diluição 1:100 |
| Anticorpo: IgG de burro anti-mouse conjugada ao Alexa Fluor 405 | Abcam | ab175658 | Diluição 1:250 |
| Anticorpo: Donkey anti-mouse IgG conjugado com Alexa Fluor 488 | Jackson ImunoResearch | 715-547-003 | Diluição 1:400 |
| Anticorpo: Anti-IgG de burro anti-mouse conjugado com Alexa Fluor 555 | ThermoFisher Scientific | A31570 | Diluição 1:500 |
| Anticorpo: IgG de jumento anti-mouse conjugada com Alexa Fluor 647 | Jackson ImmunoResearch | 715-605-151 | Diluição 1:250 |
| Anticorpo: IgG de jumento anti-iguana-porquinho conjugada ao Alexa Fluor 405 | Jackson ImmunoResearch | 706-475-148 | Diluição 1:250 |
| Anticorpo: IgG de jumento anti-cobaia conjugada com Alexa Fluor 555 | Sigma-Aldrich | SAB4600297-5OUL | Diluição 1:500 |
| Anticorpo: IgG de jumento anti-IgG de porquinho-da-índia conjugada com Alexa Fluor 647 | Jackson ImunoResearch | 706-605-148 | Diluição 1:250 |
| Anticorpo: IgG de jumento anti-coelho conjugada ao Alexa Fluor 405 | Abcam | ab175651 | Diluição 1:250 |
| Anticorpo: Anti-IgG de jumento contra coelho conjugado com Alexa Fluor 555 | Invitrogen | A31572 | Diluição 1:500 |
| Anticorpo: IgG de jumento anti-rato conjugada ao Alexa Fluor 555 | Abcam | Ab150154 | Diluição 1:500 |
| Anticorpo: IgG de jumento anti-ovelha conjugada ao Alexa Fluor 488 | Jackson ImunoResearch | 713-545-147 | Diluição 1:400 |
| Seringa BD de 1 ml completa com agulha de 25 g x 16 mm x 120 | BD | 303175 | |
| Bovino Albumina Sérica (BSA), 30% | Sigma-Aldrich | A7284-50ML | |
| Lâmina de vidro 18 x 18 mm | VWR | 631-0120 | |
| Lâmina de vidro 24 x 24 mm | VWR | 631-0126 | |
| Fita Dupla Face 19 mm x 33 m | Scotch | AMS12354 | |
| Mosca: Canton S | BDSC | 64349 | |
| Mosca: Optix-GAL4 | Quioto | 104266 | |
| Mosca: nls-GFP/CyO-YFP | BDSC/ laboratório Desplan | 4775 | |
| Flystuff Drosophila Flypads Ultimativas | Genesee Scientific Corporation | 59-172B | |
| Balde para Gelo com Tampa, Redondo, 4 L, Azul | Corning | 432123 | |
| Imagem (FIJI) | (Institutos Nacionais de Saúde, Bethesda, MD, EUA) | Fiji/ImageJ2 versão 2.16.0/1.54p | |
| Kimtech Science Precision Wipes | Kimberly-Clark Professional | 05511 | |
| Filme de vedação de laboratório | Parafilm M | PM-996 | |
| Lâminas de microscópio | VWR | 8037/1 | |
| Mini centrífugo | VWR | 521-2848 | |
| Esmalte de unha | Mumuso | 2023/11/05 | |
| Soro de Cabra Normal | Sigma-Aldrich | G9023 | |
| Pincel | Camlin | S-66 | |
| Paraformaldeído (PFA) | Sigma | P6148 | |
| Placas de Petri 100 mm x 15 mm | Falcon | 351029 | |
| Solução Salina Tamponada com Fosfato (PBS) | Sigma | P5493 | |
| PYREX® 9 Placas de teste de vidro com 9 depressões | Corning | 7220-85 | |
| Agitador (de bancada) | Fisherbrand | 8861025 | |
| Tubos safelock 1,5 mL | Eppendorf | O219706H | |
| Meio de Insetos de Schneider | Sigma | S0146 | |
| Slowfade gold antifade | Invitrogen | S36936 | |
| Elastômero de Silicone Sylgard 184 | Dow | 4019862 | |
| TritonX-100 | Sigma | 93426 | |
| Aguilhas de Tungstênio 0,25 mm | Fine Science Tools | 10130-10 | |
| Aguilhas de Tungstênio 0,5 mm | Fine Science Tools | 10130-20 | |
| UHU Adesivo Multiuso | UHU | 40815 | |
| Pinça ultrafina | WPI | 500235 | |
| meios de montagem com antifadente Vectashield | Vetor | H-1000 | |
| Misturador Vórtex | VWR | VM-3000 |
Referências
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve