É descrito um método detalhado para avaliar fenótipos mutantes de genes de interesse e determinar seus papéis na fusão de mioblastos utilizando embriões de Drosophila. Essa abordagem permite a caracterização sistemática da função gênica durante o desenvolvimento muscular embrionário.
Artigo de método
Análise Genética, Fenotípica e Quantitativa da Fusão de Mioblastos em Embriões de Drosophila
Neste artigo
Resumo
Resumo
A fusão de mioblastos mononucleados em sincícios multinucleados é um processo fundamental no desenvolvimento do músculo esquelético. Drosophila melanogaster é um modelo genético poderoso e manipulável para avaliar rapidamente e com eficiência a função de genes candidatos envolvidos neste processo. Aqui, descrevemos um protocolo abrangente com instruções passo a passo para analisar o fenótipo de fusão de mioblastos em Drosophila embriões. Este método inclui seleção de linhagem mutante para o gene candidato, coleta e fixação de embriões, imunomarcação em preparação inteira, estadiamento do desenvolvimento, obtenção de imagens por microscopia confocal e análise fenotípica. A coloração para cadeia pesada de miosina (MHC) é utilizada para visualizar a morfologia geral do músculo e identificar mioblastos mononucleados não fusionados. Paralelamente, a coloração para Even-skipped (Eve) marca os núcleos dentro de uma fibra muscular específica, permitindo análise quantitativa do grau de fusão por meio da contagem dos núcleos incorporados nessa fibra. Em conjunto, este protocolo permite aos leitores avaliar os fenótipos mutantes de quaisquer genes de interesse e determinar seus papéis na fusão de mioblastos. Esta abordagem fornece uma base sólida para identificar e caracterizar novos reguladores da fusão de mioblastos.
Introdução
O músculo esquelético é o tecido mais abundante no corpo humano, representando mais de 30% do peso corporal total. Durante o desenvolvimento embrionário, as fibras musculares esqueléticas são geradas pela fusão de células musculares mononucleadas, conhecidas como mioblastos, em miófilos sinciciais multinucleados1,2. Esse processo é essencial para a formação, o crescimento e o funcionamento adequados dos músculos, e sua interrupção está associada a diversas doenças musculares3,4. Semelhante ao músculo esquelético de vertebrados, os miófilos multinucleados que compõem a musculatura da parede corporal em embriões e larvas de Drosophila melanogaster também se formam pela fusão de mioblastos mononucleados5,6,7,8. Em Drosophila, a fusão ocorre entre dois tipos de células musculares, as células fundadoras musculares e os mioblastos com capacidade de fusão (FCMs), no sinapse fusogênico assimétrico9,10,11,12,13. Importante ressaltar que os eventos celulares e os mecanismos moleculares que regulam a fusão de mioblastos são altamente conservados entre Drosophila e vertebrados14,15,16, tornando Drosophila um organismo modelo poderoso para investigar a base genética e celular da fusão de mioblastos.
O modelo Drosophila também oferece diversas vantagens experimentais. Primeiro, o ciclo de vida curto da Drosophila (~10 dias a 25 °C) permite cruzamentos genéticos rápidos e a geração eficiente de linhagens mutantes. Segundo, os embriões de Drosophila são pequenos e facilmente permeáveis a anticorpos após fixação, permitindo a imunomarcação em preparações inteiras e o imageamento de alta resolução do desenvolvimento muscular sem a necessidade de dissecação tecidual. Terceiro, o desenvolvimento muscular embrionário da Drosophila segue um padrão altamente estereotipado, com 30 fibras musculares presentes na maioria dos hemissegmentos abdominais. Cada fibra muscular é especificada por uma única célula fundadora que se funde com um número definido de CMMs (variando de 3 a 30)17, possibilitando análises reprodutíveis e quantitativas da fusão de mioblastos. Por fim, coleções publicamente disponíveis de mutantes gênicos e linhagens com deficiências que carregam deleções cromossômicas permitem análises rápidas de perda de função de quase todos os genes, sem a necessidade de gerar mutantes de novo, o que é demorado.
Apresenta-se um protocolo detalhado para avaliar fenótipos de fusão de mioblastos em embriões de Drosophila (Figura 1). O protocolo inclui estratégias para selecionar alelos mutantes apropriados, coleta e fixação de embriões, imunomarcação em preparação inteira, obtenção de imagens de embriões e análise quantitativa de fenótipos de fusão. Em conjunto, esses procedimentos fornecem um fluxo de trabalho rápido e eficiente para a análise genética de genes candidatos envolvidos na fusão de mioblastos.
Protocolo
1. Selecionar linhagens mutantes para análise genética da fusão de mioblastos
- Procure linhagens mutantes do gene de interesse no FlyBase. Abra a página do relatório do gene correspondente e revise os alelos mutantes listados em “Alelos, Inserções, Construtos e Aberrações”.
- Selecione alelos nulos ou com perda forte de função ao examinar as lesões moleculares relatadas para cada alelo. Dê prioridade a alelos que contenham mutações sem sentido, mutações por mudança do quadro de leitura, deleções ou inserções que interrompam a função gênica.
- Posicione o alelo mutante selecionado sobre um cromossomo balanceador que carregue um marcador fluorescente para distinguir embriões mutantes homozigotos dos irmãos que carregam o balanceador. Selecione um balanceador fluorescente apropriado de acordo com o cromossomo que carrega o alelo mutante (Table 1).
2. Coletar e fixar embriões de Drosophila
- Prepare os copos para coleta de embriões criando múltiplos orifícios de ventilação nas laterais e fundos de béqueres plásticos de 100 mL usando uma agulha 25 G (Figura 1).
- Prepare o ágar suco de uva combinando 15 g de ágar com 400 mL de água destilada (dH₂O) e autoclavando a 121 °C por 21 min. Deixe o ágar fundido esfriar até ficar morno ao toque.
- Aqueça 100 mL de suco de uva 100% até ficar morno ao toque e misture bem com o ágar fundido. Distribua aproximadamente 10 mL em cada placa de cultura de 60 mm, deixe as placas solidificarem à temperatura ambiente e armazene a 4 °C.
- Prepare uma pasta fresca de levedura misturando 10 g de levedura seca em 15 mL de dH₂O até obter uma consistência lisa e espalhável. Aplique a pasta no centro de uma placa de ágar suco de uva e pré-aqueça a placa a 25 °C (Figura 1).
NOTA: Armazene a pasta de levedura preparada a 4 °C por até 2 semanas. - Transfira moscas adultas com idade entre 3 e 7 dias, heterozigotas para o alelo mutante e com um marcador fluorescente apropriado, para os copos de coleta.
NOTA: Use moscas selvagens, como w1118, como controles. Aproximadamente 50−80 fêmeas e 40−50 machos são suficientes para um copo de coleta. - Coloque uma placa de ágar suco de uva pré-aquecida sobre o copo de coleta e fixe-a com elásticos (Figura 1). Incube o copo de coleta a 25 °C por 12 h.
- Bata suavemente no copo de coleta para desprender as moscas e substitua a placa por uma nova, pré-aquecida. Repita a substituição da placa a cada 12 h durante 2 dias para aclimatar as moscas.
NOTA: Pré-aqueça cada placa a 25 °C antes do uso, pois a postura de ovos é reduzida em placas frias. - Substitua a placa por uma nova, pré-aquecida, após o período de aclimatação de 2 dias. Deixe as moscas depositarem ovos durante a noite por 14−15 h.
- Encha um tubo microcentrífugo de 1,5 mL com 0,1% (v/v) de Triton X-100 em água destilada. Colete os embriões da placa usando um pincel previamente imerso em 0,1% de Triton X-100 e, em seguida, transfira-os para o tubo.
- Agite vigorosamente o tubo para ressuspender os embriões e remover a pasta residual de levedura. Deixe os embriões sedimentarem e lave-os com 0,1% de Triton X-100 pelo menos 3 vezes, ou até que a solução fique límpida (Figura 1).
- Adicione 1,5 mL de água sanitária doméstica ~50% para obter uma concentração final de hipoclorito de sódio de 2,85%. Agite suavemente por 3 min para descorionizar os embriões.
NOTA: Evite exposição prolongada à água sanitária, pois a descamisação excessiva pode danificar os embriões e comprometer a imunomarcação subsequente. - Deixe os embriões sedimentarem, remova a água sanitária e lave três vezes com 0,1% de Triton X-100.
- Remova a solução residual de lavagem e adicione 700 µL de formaldeído a 3,7% em solução salina tamponada com fosfato (PBS) e 700 µL de heptano.
ADVERTÊNCIA: Manipule o formaldeído e o heptano em capela e descarte-os de acordo com os procedimentos adequados de segurança química. - Feche bem o tubo e agite vigorosamente por 30 s. Agite suavemente os embriões por 30 min para completar a fixação.
- Deixe os embriões acumularem na interface entre a fase superior de heptano e a fase aquosa inferior (Figura 1). Remova cuidadosamente a fase aquosa sem perturbar os embriões.
- Adicione aproximadamente 700 µL de metanol e agite vigorosamente por 30 s para desvitelinizar os embriões.
NOTA: Os embriões corretamente desvitelinizados afundam ao fundo do tubo, enquanto as membranas vitelinas destacadas permanecem na interface (Figura 1).
ADVERTÊNCIA: Manipule o metanol em capela e descarte-o de acordo com os procedimentos adequados de segurança química. - Remova o heptano e o metanol, mantendo os embriões cobertos com um pequeno volume de metanol. Lave os embriões duas vezes com metanol.
- Reidrate os embriões lavando três vezes com PBST (0,1% de Triton X-100 em PBS) por 5 min por lavagem em agitador rotativo. Proteja os embriões da luz durante esta e todas as etapas subsequentes.
NOTA: Mantenha os embriões cobertos com solução após a desvitelinização para evitar desidratação e preservar a morfologia dos embriões. Minimize a exposição à luz ambiente para preservar as proteínas fluorescentes e os anticorpos conjugados a fluoróforos.
3. Realizar a imunomarcação em montagem inteira
- Remova o PBST e incube os embriões em 1,5 mL de PBSBT (0,5% de BSA (p/v) e 5 mM de NaN3 em PBST) por pelo menos 1 h à temperatura ambiente em um agitador rotativo.
- Corte a extremidade de uma ponteira de pipeta para criar uma abertura mais larga e minimizar danos mecânicos durante a transferência dos embriões.
- Transfira os embriões bloqueados para um tubo microcentrífugo de 0,5 mL e remova a solução de bloqueio. Adicione 200−300 µL de PBSBT fresco contendo anticorpo anti-MHC (1:500)18 e/ou anticorpo anti-Eve (0,5 µg/mL).
- Incube os embriões com os anticorpos primários durante a noite a 4 °C em um agitador rotativo.
NOTA: Realize a contra-coloração com anti-Eve para análise quantitativa após identificar um fenótipo de fusão de mioblastos. Pode-se usar anticorpo anti-MHC de coelho ou de rato para visualizar a musculatura embrionária de Drosophila. - Remova a solução de anticorpo primário e lave os embriões três vezes com PBST por 10 min por lavagem em um agitador rotativo.
NOTA: Armazene a solução de anticorpo primário a 4 °C para reutilização, quando apropriado. A solução geralmente pode ser reutilizada até três vezes dentro de 1 mês. - Incube os embriões em 300 µL de PBSBT contendo anticorpos secundários fluorescentes apropriados na diluição de 1:500 por 2 h à temperatura ambiente em um agitador rotativo.
- Remova a solução de anticorpo secundário e lave os embriões três vezes com PBST por 10 min por lavagem.
- Remova a lavagem final com PBST e adicione aproximadamente 80 µL de meio de montagem. Transfira os embriões para uma lâmina de microscopia, coloque suavemente uma lamínula sobre a amostra e selar as bordas (Figura 1).
NOTA: Armazene as lâminas preparadas a 4 °C, protegidas da luz, e realize a imagem o mais rápido possível para obter um sinal de fluorescência ideal.
4. Estágio e imagem de embriões
- Identifique embriões em estágio avançado 15 pela morfologia em forma de coração do intestino médio19 sob iluminação de campo claro.
NOTA: A expressão da proteína MHC é indetectável em embriões do estágio 14 ou anteriores. Em embriões do estágio 16, o intestino médio em forma de coração sofre constrição e é subdividido em quatro câmaras19. - Identifique embriões mutantes homozigotos pela ausência do marcador fluorescente.
NOTA: Embriões mutantes homozigotos não carregam o marcador equilibrador fluorescente; portanto, não expressam a proteína fluorescente. Omita este passo para embriões controle do tipo selvagem. - Selecione embriões orientados lateralmente para visualizar toda a musculatura somática marcada com anticorpo anti-MHC.
NOTA: Embriões orientados dorsal ou ventralmente revelam principalmente a porção correspondente da musculatura. Utilize embriões orientados lateralmente para avaliar de forma abrangente defeitos na fusão de mioblastos. - Ajuste a potência do laser e o ganho do detector para obter fluorescência clara de MHC sem saturação do sinal, e mantenha essas configurações para todas as amostras dentro de cada experimento. Defina os limites superior e inferior da pilha z para abranger toda a profundidade da musculatura somática.
- Defina a resolução da imagem como 1024 × 1024 pixels, o pinhole como 1 unidade Airy, a média de linha/quadro como 1 e o fator de zoom como 1, e mantenha essas configurações para todas as amostras dentro de cada experimento. Adquira imagens de pilha z confocal em intervalos de 1,0 µm utilizando um objetivo de imersão em óleo de 40×.
- Image aproximadamente 6−10 embriões por genótipo para avaliar a reprodutibilidade do fenótipo.
NOTA: Adquira simultaneamente o canal do marcador equilibrador fluorescente com o canal de MHC quando for necessário confirmar o genótipo de mutante homozigoto.
5. Imagem do músculo DA1 para quantificação da fusão
- Realize a dupla marcação de MHC e Eve após identificar um defeito na fusão de mioblastos em embriões com orientação lateral.
- Selecione embriões mutantes e controles na fase 15 com orientação dorsal para imagem.
OBSERVAÇÃO: Even-skipped (Eve) é expresso especificamente nos núcleos do músculo dorsal agudo 1 (DA1)20. Quantifique a fusão de mioblastos determinando o número de núcleos positivos para Eve incorporados no músculo DA1. - Ajuste os parâmetros de imagem para obter fluorescência clara de MHC e Eve sem saturação do sinal. Defina uma pilha z que abranja toda a profundidade do músculo DA1 com base no sinal de Eve.
- Adquira imagens de pilha z confocal usando os parâmetros de imagem descritos acima. Imagem de aproximadamente 6−10 embriões por genótipo para quantificação da fusão.
6. Quantificar núcleos e realizar análise estatística
- Identifique os hemissegmentos abdominais A1−A7 de acordo com seus padrões musculares estereotipados e repetitivos.
- Identifique núcleos positivos para Eve dentro do músculo DA1 marcado com MHC. Examine toda a pilha z e conte todos os núcleos positivos para Eve localizados em diferentes planos focais dentro de cada músculo DA1.
NOTA: Cada hemissegmento abdominal contém um único músculo DA1. Portanto, todos os núcleos positivos para Eve dentro de um determinado hemissegmento são contados em relação ao seu músculo DA1 correspondente. - Quantifique os núcleos do DA1 no mesmo conjunto de hemissegmentos abdominais, como A2−A5, para cada embrião.
NOTA: Embora os músculos DA1 dos hemissegmentos abdominais A1−A7 sejam adequados para quantificação, analisar todos os sete hemissegmentos não é necessário. Em vez disso, quantifique vários hemissegmentos por embrião, como A2−A5, e analise o mesmo conjunto de hemissegmentos em todos os embriões para manter a consistência. - Calcule o número médio de núcleos por músculo DA1 para cada embrião e utilize o valor médio como um ponto de dados independente. Insira os pontos de dados individuais dos embriões no software de análise estatística para análise e representação gráfica.
- Utilize o teste t de Student bicaudal para comparar duas condições. Utilize ANOVA de um fator seguida pelo teste de Dunnett para comparar três ou mais condições, e considere p < 0,05 estatisticamente significativo.
Resultados
A página de relatório gênico do FlyBase para spook (spo) é apresentada como exemplo para ilustrar a seleção de um alelo mutante apropriado. spo é um dos genes "Halloween" que codificam enzimas envolvidas na biossíntese de hormônios esteroides21,22 e demonstrou-se promover a fusão de mioblastos23. A seção "Alelos" da página de relatório gênico do spo no FlyBase lista 12 alelos mutantes de spo descritos na literatura, dos quais quatro foram depositados no BDSC (Figura 2A) e estão prontamente disponíveis. Caso um alelo desejado não esteja disponível por meio do BDSC, ele pode ser solicitado diretamente ao grupo de pesquisa que originalmente descreveu a linhagem mutante.
Entre os quatro alelos mutantes disponíveis do BDSC, spo1 carrega uma mutação de troca de aminoácido (G481E), enquanto spoMI06810 contém uma inserção MiMIC dentro da sequência codificadora que resulta em uma mudança na estrutura da proteína a partir do aminoácido Y341 (Figura 2B,C). Como a proteína Spo é composta por 543 aminoácidos, prevê-se que spoMI06810 (Y341fs) produza uma proteína truncada, faltando aproximadamente 40% de seu comprimento total, sendo, portanto, provável que represente um alelo com perda acentuada de função. Assim, spoMI06810 é preferido em relação a spo1 para a análise fenotípica da fusão de mioblastos.
A fusão de mioblastos começa no estágio embrionário 12 (7,3−9,3 h após a postura do ovo [AEL]) e é amplamente concluída ao final do estágio 15 (11,3−13,3 h AEL)24. Os fenótipos de fusão são, portanto, geralmente avaliados em embriões do estágio 15 tardio, quando o padrão muscular somático já se formou e a maioria dos eventos de fusão foi concluída.
Embriões do estágio 15 podem ser identificados por duas características morfológicas proeminentes: a conclusão do fechamento dorsal e a aquisição da morfologia característica em forma de coração do intestino médio (Figura 3A–C)19. Embriões do estágio 14 podem ser diferenciados pela invaginação cefálica em andamento (Figura 3A), enquanto embriões do estágio 15 exibem o intestino médio característico em forma de coração (Figura 3B). Embriões do estágio 16 podem ser identificados pela constrição do intestino médio e pela formação de quatro câmaras (cécas gástricas; Figura 3C)19. Além disso, a expressão da proteína MHC é indetectável em estágios anteriores, incluindo o estágio 14, mas torna-se acentuada no estágio 15 e em estágios posteriores (Figura 3A–C).
No estágio embrionário tardio 15, a musculatura da parede corporal está completamente padronizada em embriões selvagens (w1118), e a maioria dos hemissegmentos abdominais exibe um padrão muscular idêntico e estereotipado na vista lateral (Figura 3B). Esse padrão muscular estereotipado pode ser visualizado utilizando anticorpos anti-MHC de coelho ou de rato (Figura 3B,D). Em contraste, menos fibras musculares são visíveis quando os embriões são observados nas orientações dorsal ou ventral (Figura 3E,F). Portanto, a observação dos embriões na orientação lateral permite a visualização completa da musculatura da parede corporal e facilita a avaliação de defeitos na fusão de mioblastos.
Para examinar defeitos na fusão de mioblastos, a musculatura da parede corporal de embriões mutantes homozigóticos é imageada na orientação lateral. Mutantes homozigóticos são identificados pela ausência de um marcador fluorescente equilibrador, como GFP ou YFP. Por exemplo, embriões mutantes homozigóticos para spo, derivados de pais spoMI06810/TM3, twi>UAS-GFP, são negativos para GFP, enquanto embriões irmãos que carregam o cromossomo equilibrador expressam GFP no mesoderma (Figura 4B,C). Em comparação com embriões selvagens e embriões irmãos positivos para GFP, os embriões mutantes spo exibem um defeito de fusão de mioblastos caracterizado pela presença de numerosos mioblastos competentes para fusão não fundidos (MCFs; Figura 4A–C).
Notavelmente, são observadas mais MCFs não fundidas em seções ópticas mais profundas (Z3 e Z4) do que na seção superficial (Z1) de embriões mutantes de spo (Figura 4B). Essa distribuição reflete a organização espacial das células fundadoras e das MCFs durante a fusão de mioblastos no embrião. As células fundadoras e os miótubos em crescimento estão localizadas principalmente na camada superficial do mesoderma, enquanto as MCFs residem em camadas mais profundas antes de migrarem em direção aos miótubos em crescimento e se fundirem com eles25. Consequentemente, mioblastos não fundidos são mais abundantes em seções confocais mais profundas, particularmente em embriões com defeitos parciais de fusão. A aquisição de pilhas z que abranjam toda a profundidade da musculatura da parede corporal é, portanto, necessária para evitar subestimar a gravidade do fenótipo de fusão.
Embora a visualização da musculatura da parede corporal geral na orientação lateral permita a avaliação fenotípica de defeitos na fusão de mioblastos, a análise quantitativa pode ser realizada ao se visualizar o músculo DA1 na orientação dorsal. Em embriões selvagens, o músculo DA1 está completamente formado e contém 13,03 ± 0,60 núcleos positivos para Eve (Figura 5A,C). Em embriões mutantes de spo, o número de núcleos positivos para Eve no músculo DA1 é reduzido para 8,16 ± 0,54 (Figura 5B,C), indicando um defeito de fusão no qual menos MCFs se fundem com a célula fundadora do DA1. Para quantificação consistente e reprodutível, contam-se e faz-se a média dos núcleos positivos para Eve nos músculos DA1 dos mesmos hemissegmentos abdominais (A2−A5) por embrião, utilizando-se a média de cada embrião como um único ponto de dado para análise estatística (Figura 5C).
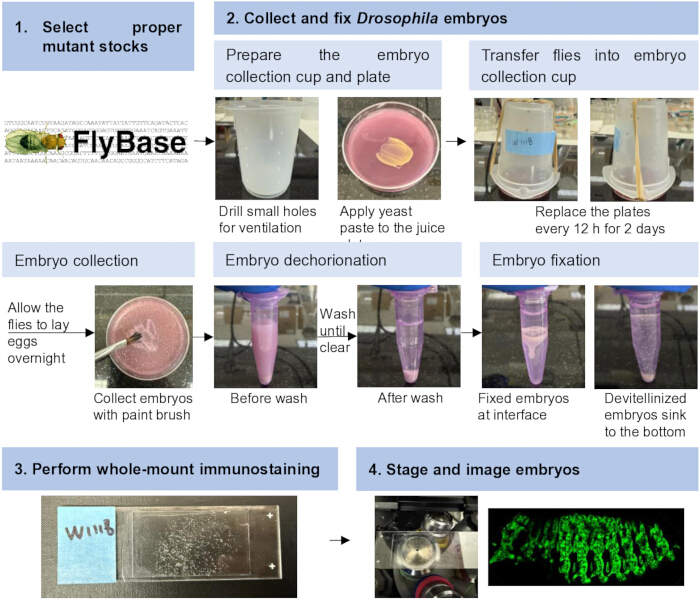
Figura 1: Fluxo de trabalho para análise genética, fenotípica e quantitativa da fusão de mioblastos em embriões de Drosophila. O fluxo de trabalho inclui a seleção de linhagens mutantes apropriadas, coleta e fixação de embriões, imunomarcação em preparações inteiras e montagem, bem como estadiamento e obtenção de imagens dos embriões. Clique aqui para visualizar uma versão maior desta figura.
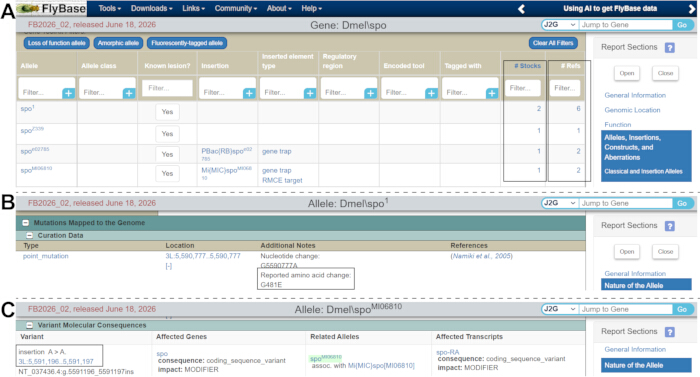
Figura 2: Seleção de alelos mutantes utilizando o FlyBase. (A) Captura de tela da página de relatório gênico do FlyBase para spo. Os alelos mutantes estão listados na seção “Alleles”. A coluna Stocks (destacada) indica o número de linhagens disponíveis, enquanto a coluna Refs (destacada) indica o número de referências associadas. (B,C) Lesões moleculares de dois alelos mutantes representativos de spo, spo1 (B) e spoMI06810 (C). Clique aqui para visualizar uma versão maior desta figura.
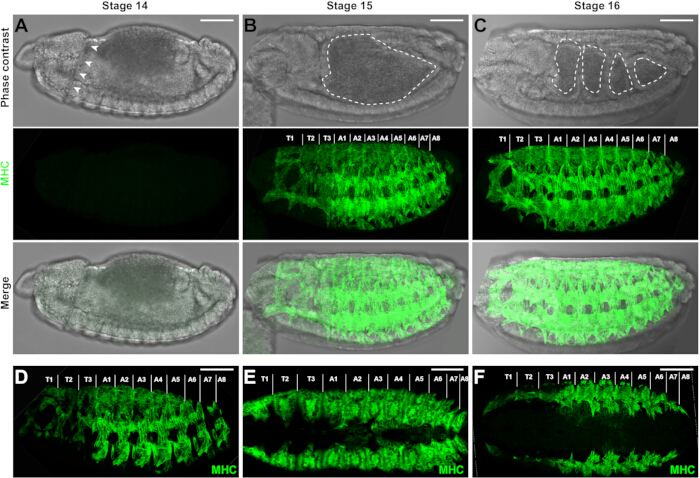
Figura 3: Musculatura embrionária de Drosophila. (A–C) Imagens de contraste de fase, projeções z confocais coradas para MHC e imagens fusionadas de embriões selvagens (WT) nas fases 14, 15 e 16. A involução da cabeça é evidente (setas) no embrião da fase 14 (A). Uma região média do intestino em formato característico de coração (linha tracejada) é observada no embrião da fase 15 (B), enquanto o intestino médio está subdividido em quatro câmaras distintas (linhas tracejadas) no embrião da fase 16 (C). A expressão da proteína MHC é indetectável na fase 14 (A), mas torna-se acentuada nas fases 15 (B) e 16 (C). Os embriões são mostrados em vista lateral, com a região anterior à esquerda, a posterior à direita, o lado dorsal para cima e o ventral para baixo. Hemissegmentos torácicos (T1–T3) e abdominais (A1–A8) estão indicados. (D) Imagem confocal da vista lateral da musculatura em um embrião WT na fase 15, visualizada usando um anticorpo de rato anti-MHC. Um anticorpo de coelho anti-MHC foi utilizado nas imagens dos demais painéis. (E,F) Imagens confocais de projeção z das vistas dorsal (E) e ventral (F) da musculatura em embriões WT na fase 15. Menos fibras musculares são visíveis nas orientações dorsal e ventral do que na orientação lateral. Barra de escala = 50 µm. Clique aqui para visualizar uma versão maior desta figura.
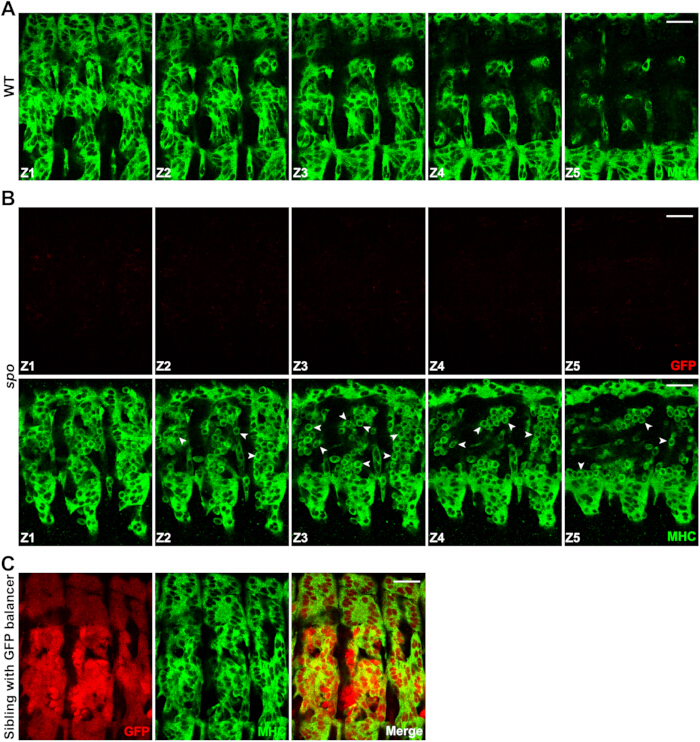
Figura 4: Comparação da musculatura entre embriões selvagens e mutantes spo. (A) Imagens representativas de z-stacks confocais da musculatura da parede corporal em vista lateral de um embrião WT em estágio tardio 15. A fusão de mioblastos está completa, e não são observados mioblastos não fundidos. A MHC é mostrada em verde. (B) Imagens representativas de z-stacks confocais da musculatura da parede corporal em vista lateral de um embrião mutante spo negativo para GFP obtido de pais spoMI06810/TM3, twi>UAS-GFP. A ausência de fluorescência GFP (vermelho) indica que o embrião é homozigoto para spoMI06810. Setas indicam mioblastos não fundidos representativos. Mais mioblastos não fundidos são observados nas seções ópticas mais profundas (Z3 e Z4) do que próximos à superfície do embrião (Z1). A MHC é mostrada em verde. (C) Imagens confocais da vista lateral de um embrião irmão positivo para GFP obtido dos mesmos pais spoMI06810/TM3, twi>UAS-GFP. A expressão mesodérmica de GFP (vermelho), induzida pelo transgene twi>UAS-GFP no marcador TM3, distingue embriões irmãos positivos para GFP de embriões mutantes spo homozigotos negativos para GFP. A MHC é mostrada em verde. Barra de escala = 20 µm. Clique aqui para visualizar uma versão maior desta figura.
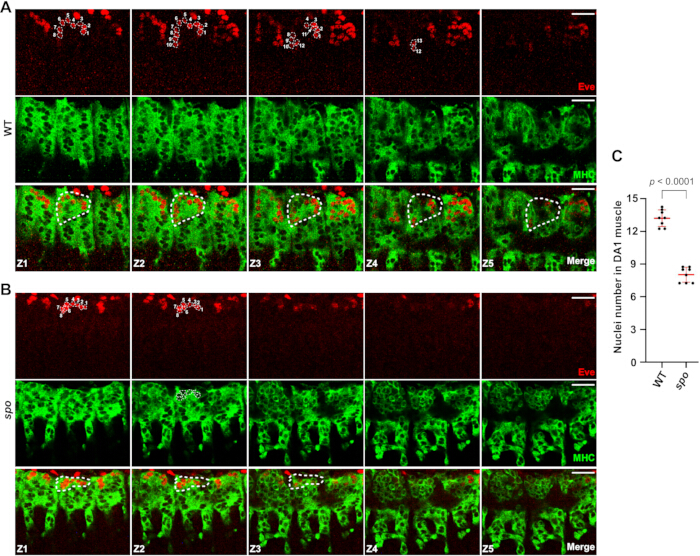
Figura 5: Imagens representativas de z-stacks confocais e quantificação dos músculos DA1. (A,B) Imagens de z-stacks confocais de vistas dorsais de embriões de estágio tardio 15 do tipo selvagem (A) e mutante spo (B) marcados com anti-MHC (verde) e anti-Eve (vermelho). Os z-stacks confocais foram adquiridos ao longo de toda a profundidade do músculo DA1 positivo para Eve para capturar todos os núcleos dentro do músculo. Os núcleos positivos para Eve aparecem como regiões não coradas dentro do sinal de MHC. Um músculo DA1 representativo é delimitado por uma linha tracejada, e os núcleos positivos para Eve dentro do músculo DA1 são numerados. (C) Quantificação dos núcleos positivos para Eve nos músculos DA1 de embriões do tipo selvagem e mutante spo. Oito embriões foram quantificados para cada genótipo. Cada ponto de dados representa o número médio de núcleos nos músculos DA1 dos hemissegmentos A2–A5 de um embrião. Os dados são apresentados como média ± DP (barras vermelhas). A significância estatística foi determinada utilizando um teste t de Student bicaudal; p < 0,0001. Barra de escala = 20 µm. Clique aqui para visualizar uma versão maior desta figura.
| Número de estoque BDSC | Genótipo | Finalidade |
| 6873 | N1/FM7c, twi>UAS-GFP | A expressão mesodérmica de GFP permite a identificação de embriões mutantes homozigotos negativos para GFP. |
| 6662 | wgGla-1/CyO, twi>UAS-GFP | |
| 6663 | DrMio/TM3, twi>UAS-GFP | |
| 23229 | baz4/FM7c, Dfd-YFP | A expressão específica de YFP na cabeça permite a identificação de embriões mutantes homozigotos negativos para YFP. |
| 23230 | snaSco/ CyO, Dfd-YFP | |
| 23232 | Dr1/TM6B, Dfd-YFP |
Tabela 1: Linhagens de Drosophila portadoras de um gene marcador fluorescente em cromossomos balanceadores.
Discussão
O protocolo descrito aqui fornece um fluxo de trabalho abrangente para a análise genética, fenotípica e quantitativa da fusão de mioblastos em embriões de Drosophila. É importante destacar que a observação de um defeito de fusão em uma linhagem mutante exige análises genéticas adicionais para validar que o gene de interesse é responsável pelo fenótipo observado. Mutações espontâneas de fundo podem se acumular durante a manutenção das linhagens e contribuir para os fenótipos mutantes26. Uma abordagem consiste em examinar embriões trans-heterozigotos gerados pelo cruzamento do alelo mutante com uma deficiência cromossômica que delete o gene de interesse. A observação do mesmo defeito de fusão nesses embriões apoiaria a conclusão de que o fenótipo resulta da interrupção do gene candidato, e não de mutações de fundo não relacionadas. Experimentos de resgate genético, como os que utilizam o sistema GAL4/UAS27, podem fornecer validação adicional ao determinar se a expressão do gene de interesse restaura a fusão normal de mioblastos em embriões mutantes.
Embora o Projeto de Interferência Gênica em Drosophila tenha gerado uma coleção publicamente disponível de linhagens mutantes que cobrem aproximadamente 75% dos genes de Drosophila28, alelos mutantes adequados, especialmente alelos com forte perda de função, podem não estar disponíveis para todos os genes de interesse. Nesses casos, linhagens com deficiência cromossômica podem servir como um recurso alternativo para avaliar se um gene candidato está envolvido na fusão de mioblastos. Atualmente, as coleções disponíveis de linhagens com deficiência cobrem mais de 98% do genoma euchromático de Drosophila29, permitindo a análise de perda de função de quase todos os genes. Deficiências cromossômicas podem ser identificadas na seção “Aberrations” do relatório gênico no FlyBase. No entanto, como cada linhagem com deficiência remove múltiplos genes, um defeito na fusão de mioblastos observado em embriões homozigotos para a deficiência não pode ser atribuído a um gene específico dentro da região cromossômica deletada sem uma validação adicional. Portanto, quando um defeito de fusão é identificado utilizando uma linhagem com deficiência, um mutante nocaute de gene único deve ser gerado e analisado para determinar o papel específico do gene candidato na fusão de mioblastos.
Embora este protocolo enfatize a análise fenotípica de mutantes para genes individuais de interesse, o fluxo de trabalho também pode ser aplicado a triagens em larga escala com deficiências para identificar novos reguladores da fusão de mioblastos, utilizando coleções de deficiências disponíveis29. Além disso, substituir o anticorpo anti-MHC por anticorpos contra reguladores específicos da fusão de mioblastos permite que o fluxo de trabalho geral, incluindo coleta de embriões, fixação e imunomarcação, seja adaptado para examinar a localização proteica em relação à sinapse fusogênica. Por fim, os métodos descritos aqui podem ser adaptados para análise fenotípica de outros processos de desenvolvimento embrionário além da fusão de mioblastos, ampliando assim a utilidade do protocolo para uma gama mais ampla de estudos do desenvolvimento.
Divulgações
Os autores declaram que não têm interesses concorrentes. O ChatGPT 5 (OpenAI) foi utilizado exclusivamente para revisão gramatical e linguística. Ele não foi usado para gerar conteúdo científico, dados, análises ou figuras.
Agradecimentos
Agradecemos ao centro de estirpes Bloomington pelas linhagens de moscas. Este trabalho foi apoiado por concessões do NIH R01AR085116 e R35GM136316 concedidas a E.H.C.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Ágar | Fisher | BP1423-500 | Pó de ágar; utilizado para preparar meio de cultura sólido. |
| Albumina sérica bovina (BSA) | Sigma | A7906 | Albumina sérica bovina; utilizada para preparação de soluções bloqueadoras durante imunomarcação. |
| Microscópio confocal | Leica | SP8 | Microscópio confocal a laser utilizado para imagens de fluorescência de espécimes corados. |
| Microscópio confocal | Nikon | A1R | Microscópio confocal a laser utilizado para imagens de fluorescência de espécimes corados. |
| Lâmina de cobertura | Fisher | 12-545-CP | Lâmina de cobertura de vidro, 40 mm × 22 mm; utilizada para montagem de espécimes para microscopia. |
| Placa de cultura | Corning | 430166 | Placa de cultura de 60 mm; utilizada para manipulação, cultivo ou processamento de espécimes biológicos. |
| Levedura seca | Sigma | YSC2 | Levedura seca utilizada como fonte nutricional para cultivo de organismos. |
| Formaldeído, 37% | Fisher | BP531-500 | Solução concentrada de formaldeído utilizada para preparação de fixador. CUIDADO: Tóxico e volátil; manipular com equipamento de proteção individual apropriado e em capela de exaustão química. |
| Anticorpo secundário de cabra anti-IgG de camundongo 647 | ThermoFisher | A-21236 | Anticorpo secundário conjugado a fluoróforo, de cabra anti-IgG de camundongo, para detecção por fluorescência de anticorpos primários de camundongo. |
| Anticorpo secundário de cabra anti-IgG de coelho 568 | ThermoFisher | A-11036 | Anticorpo secundário conjugado a fluoróforo, de cabra anti-IgG de coelho, para detecção por fluorescência de anticorpos primários de coelho. |
| Heptano | Fisher | H350 | Solvente orgânico utilizado durante fixação e permeabilização de espécimes. CUIDADO: Inflamável e nocivo; manipular em capela de exaustão química com equipamento de proteção individual apropriado. |
| Incubadora | Percival | I36LL | Incubadora com controle de temperatura utilizada para manter culturas ou organismos experimentais sob condições ambientais definidas. |
| Metanol | Pharmco | 339000ACSBK01 | Metanol utilizado durante fixação, desidratação ou permeabilização de espécimes. CUIDADO: Inflamável e tóxico; manipular em capela de exaustão química com equipamento de proteção individual apropriado. |
| Lâminas de microscópio | Fisher | 12-550-15 | Lâminas de vidro para microscopia utilizadas para montagem de espécimes para imagem. |
| Meio de montagem | ThermoFisher | P36980 | Meio de montagem antidesvanecimento utilizado para preservar a fluorescência e montar espécimes corados para microscopia. |
| Anticorpo primário monoclonal de camundongo anti-Even skipped (Eve) | DSHB | 2B8 | Anticorpo primário monoclonal de camundongo que reconhece a proteína Even skipped; utilizado para coloração por imunofluorescência. |
| Nutador | Corning | 6720 | Misturador nutacional de bancada utilizado para agitação suave e contínua de amostras durante etapas de lavagem, bloqueio ou incubação com anticorpos. |
| Béquer de plástico | Sigma | Z245380 | O béquer de plástico de 100 mL é utilizado para criar copo de coleta de moscas. |
| Anticorpo primário de coelho anti-cadeia pesada da miosina (MHC) | — | — | Anticorpo primário de coelho que reconhece a cadeia pesada da miosina de Drosophila; fonte do anticorpo descrita por Kiehart e Feghali (1986), Journal of Cell Biology 103, 1517–1525. |
| Anticorpo primário monoclonal de rato anti-cadeia pesada da miosina (MHC) | DSHB | BB7/21.14 | Anticorpo primário monoclonal de rato que reconhece a cadeia pesada da miosina; utilizado para coloração por imunofluorescência. |
| Azida de sódio (NaN3) | Sigma | S8032 | Azida de sódio utilizada como conservante em soluções de anticorpos ou tampões. CUIDADO: Altamente tóxica; evitar ingestão, inalação, contato com a pele e contato com metais. |
| Triton X-100 | Fisher | AAA16046AP | Detergente não iônico utilizado para permeabilização da membrana e preparação de tampões de lavagem ou bloqueio. |
| Solução salina tamponada com fosfato 10× (PBS) | Fisher | BP3994 | Solução concentrada de PBS utilizada para preparar PBS 1× para lavagem, diluição e preparação de tampões. |
Referências
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve