A eletroacupuntura atenua a insuficiência cardíaca crônica e o remodelamento cardíaco patológico ao restaurar a atividade neuronal dentro do núcleo do trato solitário. Essa neuromodulação terapêutica central está associada à superexpressão do fator de transcrição YY1, alvo biológico candidato.
Artigo de investigação
Mecanismos Centrais da Eletroacupuntura na Insuficiência Cardíaca Crônica: Perspectivas da Proteômica Quantitativa do Núcleo do Trato Solitário
* These authors contributed equally
Neste artigo
Resumo
Resumo
A insuficiência cardíaca crônica (ICC) é uma das principais causas mundiais de mortalidade cardiovascular, impulsionada por disfunção autonômica e ativação simpática excessiva. Embora a eletroacupuntura (EA) exerça efeitos cardioprotetores por meio da neuromodulação central, seus alvos moleculares específicos no núcleo do trato solitário (NTS), um centro-chave de integração autonômica, permanecem pouco claros. Para investigar isso, o modelo de rato com ICC foi estabelecido por meio da ligadura da artéria coronária descendente anterior esquerda. Os ratos receberam EA nos pontos acupunturais HT7 bilaterais durante sete dias consecutivos. A função cardíaca e a lesão miocárdica foram avaliadas por meio de ecocardiografia, ensaios imunoenzimáticos e coloração histológica. A atividade neural do NTS foi avaliada por imunofluorescência para c-Fos e eletrofisiologia in vivo. Os mecanismos moleculares foram investigados utilizando proteômica quantitativa e bioinformática, com os alvos centrais confirmados por meio de PCR quantitativa e Western blotting. A EA melhorou a fração de ejeção do ventrículo esquerdo, atenuou a fibrose miocárdica e reduziu os marcadores séricos de insuficiência cardíaca. Concomitantemente, a EA restaurou as taxas de disparo neuronal espontâneo, a energia do potencial de campo local e a expressão de c-Fos no NTS. O perfil proteômico identificou 85 proteínas expressas diferencialmente que foram moduladas pela EA. A estratificação funcional das 58 proteínas subexpressas e das 27 superexpressas revelou sua participação respectiva na organização da matriz extracelular e no remodelamento cromatínico dependente de ATP. A abordagem de triagem em etapas, integrando mapeamento topológico de redes, enriquecimento de vias e perfil de expressão tecidual, identificou o fator de transcrição YY1 como um alvo candidato altamente responsivo. A validação in vivo confirmou que a EA aumentou a expressão de YY1. No geral, a EA atenuou o remodelamento cardíaco patológico e restaurou a atividade neuronal do NTS. YY1 foi identificado como um alvo candidato associado a essa neuromodulação central, fornecendo subsídios moleculares para os mecanismos subjacentes aos efeitos da EA na ICC.
Introdução
A insuficiência cardíaca crônica (ICC) é amplamente reconhecida como a fase final de diversas patologias cardiovasculares e continua sendo uma das principais causas de mortalidade cardiovascular em todo o mundo, impondo um enorme ônus aos sistemas de saúde globais1. A progressão fisiopatológica da ICC é impulsionada principalmente pela disregulação do sistema nervoso autônomo, caracterizada pela superativação simpática sustentada e pela redução do tônus parassimpático2. Assim, a restauração da homeostase autonômica é considerada uma estratégia terapêutica crucial para mitigar o remodelamento cardíaco patológico e melhorar a função cardíaca global3.
A eletroacupuntura (EA) representa um avanço moderno da acupuntura tradicional e tem ganhado reconhecimento amplo por sua eficácia clínica no tratamento de condições cardiovasculares4. Pesquisas extensivas, incluindo nossos estudos anteriores, destacaram que essa terapia exerce efeitos cardioprotetores significativos principalmente pela modulação do sistema nervoso autônomo central. Especificamente, demonstramos que a EA no ponto acupuntural Shenmen (HT7) pode suprimir eficazmente o excesso de atividade simpática e restaurar o equilíbrio simpato-vagal por meio de mecanismos neurais centrais específicos, atenuando assim a progressão patológica da insuficiência cardíaca congestiva (ICC)5,6,7,8.
O núcleo do trato solitário (NTS), localizado na medula oblonga, é um centro de integração vital para a manutenção do equilíbrio autonômico central. Ele atua como a estação de retransmissão primária para reflexos cardiovasculares e entradas sensoriais periféricas, regulando o equilíbrio dinâmico entre o tônus simpático e vagal9. Apesar de sua importância anatômica e funcional, as alterações moleculares específicas dentro deste centro crítico do tronco encefálico durante o tratamento com EA para ICC permanecem amplamente desconhecidas. A proteômica avançada de alto rendimento combinada com análise bioinformática oferece uma ferramenta poderosa para mapear de forma imparcial as complexas redes proteicas e cascatas de sinalização envolvidas neste processo neurobiológico central10.
Portanto, este estudo teve como objetivo investigar os efeitos da AE no ponto de acupuntura HT7 sobre a função cardíaca e a atividade neuronal do NST em IC e caracterizar as alterações moleculares no interior do NST associadas ao tratamento com AE. Ao integrar eletrofisiologia in vivo com proteômica quantitativa, análise bioinformática e validação molecular, este estudo buscou identificar alvos moleculares candidatos associados à neuromodulação central mediada por AE na IC.
Protocolo
Todos os métodos envolvendo animais vertebrados foram realizados em conformidade com o Comitê de Cuidado e Uso de Animais da Universidade de Medicina Chinesa de Anhui, com o número de aprovação AHUCM-rats-2024145. Os reagentes e o equipamento utilizados estão listados na Tabela de Materiais.
Preparação e agrupamento dos animais
Ratos machos Sprague-Dawley de grau limpo, com 8 semanas de idade e pesando entre 200 e 250 g, foram utilizados em todos os experimentos. Os animais foram mantidos em um ambiente controlado, mantido a 24 ± 2 °C e umidade relativa de 50%–60%, sob um ciclo claro-escuro padrão de 12 h. Todos os ratos tiveram acesso livre a alimento e água e passaram por um período de aclimatação de 1 semana antes de qualquer procedimento experimental.
Para o Experimento I, que avaliou a atividade funcional e neural central, 24 ratos foram divididos aleatoriamente em quatro grupos de seis animais cada: grupos Sham, CHF, EA e Sham EA (Figura 1A). Para o Experimento II, que avaliou alvos moleculares e proteômica de alto rendimento, 36 ratos foram aleatoriamente distribuídos em três grupos de 12 cada: Sham, CHF e EA. Os tamanhos das amostras foram determinados com base no Método da Equação de Recursos, para respeitar a ética no bem-estar animal e o princípio da redução, ao mesmo tempo que garantem validade estatística (E = 20 para o Experimento I; E = 33 para o Experimento II)11. Essa estratégia de tamanho amostral foi compatível com protocolos utilizados em estudos anteriores sobre EA em doenças cardiovasculares8,12. Análises de poder pós-hoc indicaram que um poder estatístico superior a 0,90 sustentava a adequação dessa alocação. O grupo Sham EA foi excluído do Experimento II porque avaliações funcionais preliminares indicaram ausência de eficácia terapêutica.
Estabelecimento do modelo de insuficiência cardíaca crônica
Os ratos foram mantidos em jejum por 12 h antes da cirurgia e tiveram livre acesso à água. A anestesia foi induzida com 3% de isoflurano e mantida entre 1,5% e 2% de isoflurano durante o procedimento. Como o isoflurano é um anestésico volátil, foi utilizado um sistema de captura adequado, e o procedimento foi realizado em um ambiente bem ventilado para prevenir exposição ocupacional.
Os eletrocardiogramas (ECG) de membros padrão foram registrados continuamente. Realizou-se uma toracotomia lateral esquerda para expor o coração, e a artéria coronária descendente anterior esquerda (LAD) foi ligada permanentemente a 2 a 3 mm abaixo da aurícula esquerda, utilizando um fio não absorvível 7-013. A isquemia bem-sucedida foi confirmada pela identificação de elevação do segmento ST de pelo menos 0,2 mV no ECG (Figura 1B). Injeções intraperitoneais de penicilina (200.000 U/mL) e injeções subcutâneas de carprofeno (5 mg/kg) foram administradas diariamente durante três dias consecutivos após a cirurgia para prevenir infecção e aliviar a dor.
Para o grupo controle simulado, foi realizada uma cirurgia de toracotomia idêntica, seguida pela inserção superficial de agulha na localização anatômica correspondente, sem ligadura da artéria coronária descendente anterior (LAD). Foi fornecida assistência e monitorização pós-operatórias idênticas. A avaliação ecocardiográfica foi realizada 4 semanas após a cirurgia. O modelo foi considerado com sucesso quando a fração de ejeção do ventrículo esquerdo (FEVE) foi ≤45%8 (Figura 1C). Os animais que não atenderam a esses critérios, apresentaram anormalidades basais no ECG pré-operatório ou que tiveram morte prematura foram sistematicamente excluídos. Ratos suplementares foram submetidos aos mesmos protocolos cirúrgicos para substituir imediatamente os animais excluídos e manter um tamanho amostral uniforme.
Intervenção com eletroacupuntura
De acordo com protocolos anatômicos comparativos estabelecidos14, os pontos acupunturais bilaterais HT7 no meridiano do Coração da Mão-Shaoyin foram localizados na face palmar do sulco transverso do punho, próximo à borda ulnar, diretamente na depressão radial do tendão do flexor ulnar do carpo. A área local foi rotineiramente desinfetada. Duas agulhas descartáveis estéreis (0,25 x 25 mm) foram inseridas perpendicularmente em cada região do ponto acupuntural HT7 até uma profundidade-alvo de 2 a 3 mm, posicionadas aproximadamente a 1 mm de distância uma da outra, de modo a permanecerem estritamente dentro da mesma região do ponto acupuntural. Para documentação em vídeo, a profundidade de inserção foi verificada visualmente mediante marcação prévia do corpo da agulha na posição de 3 mm antes da inserção.
Uma agulha foi conectada ao terminal catódico do aparelho de AE, e a agulha adjacente foi conectada ao terminal anódico para estabelecer um circuito elétrico localizado (Figura 1D). Uma forma de onda elétrica contínua foi aplicada com frequência constante de 2 Hz e intensidade de 1 mA, calibrada para produzir contrações musculares visíveis, porém leves, nos membros correspondentes, durante 30 minutos diários ao longo de sete dias consecutivos sob anestesia com isoflurano.
Um protocolo mínimo de acupuntura foi aplicado à coorte de intervenção simulada para levar em consideração respostas somatossensoriais inespecíficas15,16. Agulhas estéreis foram inseridas superficialmente a uma profundidade de 0,5–1 mm em locais idênticos ao HT7 sem a conexão de eletrodos ou aplicação de corrente elétrica, correspondendo à duração anestésica de 30 min. Os grupos controle Sham e CHF foram submetidos à exposição diária idêntica ao isoflurano (1,5%–2% de isoflurano por 30 min diariamente durante sete dias consecutivos), sem inserção de agulhas ou estimulação elétrica. Este procedimento padronizou a linha de base anestésica em todas as coortes experimentais e controlou possíveis artefatos neurosupressores ou cardioprotetores induzidos pela anestesia volátil repetitiva.
Avaliação por ecocardiografia e eutanásia de animais
Após a intervenção, os ratos foram anestesiados com 3% de isoflurano para indução e 1% para manutenção, e fixados em posição supina sobre a plataforma para animais. Os pelos do tórax foram cuidadosamente removidos com um agente depilatório, e um agente acoplante acústico foi aplicado uniformemente sobre a pele exposta. A função cardíaca foi avaliada utilizando um sistema de ultrassom digital equipado com um transdutor de eco de 18 MHz. A ecocardiografia modo-M foi registrada para medir a fração de ejeção do ventrículo esquerdo (LVEF) e a fração de encurtamento do ventrículo esquerdo (LVFS), e o valor médio de 3 réplicas técnicas foi calculado para a análise final.
O sangue foi coletado da aorta abdominal enquanto os animais permaneciam sob anestesia, a fim de prevenir perda sanguínea subsequente e coagulação, e garantir a qualidade da amostra para o ensaio imunoenzimático (ELISA). As ratas foram eutanasiadas imediatamente por indução contínua com 5% de isoflurano até a cessação dos batimentos cardíacos e da respiração.
As amostras de tecido foram subsequentemente alocadas de acordo com o delineamento experimental. Para o Experimento I, 3 ratos por grupo foram utilizados para coletar o coração para coloração com hematoxilina e eosina (HE)/Masson e o cérebro para imunofluorescência de c-Fos. Os três ratos restantes foram alocados para eletrofisiologia in vivo. Para o Experimento II, tecidos do NTS bilateral foram extraídos de seis ratos por grupo para proteômica. Os tecidos dos seis ratos restantes foram coletados para verificação molecular: três foram utilizados para Western blot e qPCR, e três foram utilizados exclusivamente para qPCR.
Ensaio imunoenzimático
As amostras de sangue coletadas foram deixadas para coagular naturalmente a 4 °C por 10–20 min. As amostras foram centrifugadas a 1.000 x g durante 15 min a 4 °C para separar o soro, e os sobrenadantes foram coletados. Quando a análise não foi realizada imediatamente, as amostras de soro foram armazenadas a −80 °C até o momento necessário. As concentrações séricas de peptídeo natriurético cerebral N-terminal (NT-proBNP) e troponina T cardíaca (cTnT) foram quantificadas utilizando kits ELISA específicos, de acordo com as instruções padrão. Os valores de absorbância foram medidos, e os níveis dos biomarcadores foram calculados com base nas curvas-padrão.
Coloração histológica e de imunofluorescência
Os tecidos cardíacos colhidos foram lavados em solução pré-resfriada de cloreto de sódio a 0,9%, seccionados 5 mm acima do ápice e embutidos em parafina. Os cortes teciduais foram desparafinizados e reidratados. A coloração com HE foi realizada aplicando-se hematoxilina por 10 min, seguida de contracoloração com eosina por 2,5 min. A coloração de Masson foi realizada aplicando-se hematoxilina por 60 s e tricrômio de Masson por 30–60 s. Os cortes foram diferenciados em ácido fosfórico a 6%–8% e contracoloridos com verde claro por 5 min. A fração volumétrica de colágeno (CVF) foi quantificada para avaliar a fibrose miocárdica.
Os tecidos cerebrais colhidos foram fixados em paraformaldeído a 4%, desidratados em soluções de sacarose crescentes e seccionados com espessura de 30 µm. Como o paraformaldeído é tóxico e um possível carcinógeno, foi manipulado dentro de uma cabine de segurança química, utilizando equipamento de proteção individual apropriado. As seções foram bloqueadas com um tampão contendo 0,5% de Triton X-100 e 3% de albumina sérica bovina, seguido de incubação com anticorpo primário contra c-Fos durante a noite a 4 °C. Em seguida, as seções foram lavadas com solução salina tamponada com fosfato e incubadas com os anticorpos secundários correspondentes por 2 h à temperatura ambiente e no escuro. Os cortes foram montados com uma solução antifade contendo 4',6-diamidino-2-fenilindol (DAPI) e os neurônios positivos para c-Fos foram analisados por imagem.
Electrofisiologia in vivo
Ratos foram anestesiados com isoflurano a 3% para indução e 1% para manutenção e fixados em um aparelho estereotáxico cerebral. O couro cabeludo foi raspado e desinfetado. Foi feita uma incisão mediana para expor o bregma, e a dura-máter foi removida. Um orifício craniano foi perfurado com precisão acima da região do NST com base nas seguintes coordenadas estereotáxicas relativas ao bregma: ântero-posterior (AP) ±12,6 mm, médio-lateral (ML) ±0,9–2,1 mm e dorsoventral (DV) ±7,6–8,1 mm.
Após a conclusão dos registros eletrofisiológicos, a localização estereotáxica exata da ponta do eletrodo foi verificada. Uma corrente contínua de 1 mA foi aplicada brevemente ao eletrodo de registro por 10 s para criar uma pequena lesão eletrolítica. Após o experimento, o tronco encefálico foi seccionado e o trajeto da lesão foi confirmado histologicamente como estando anatomicamente localizado no NTS.
Um arranjo de microeletrodos com oito canais (2 x 4) foi implantado e avançado lentamente até a região cerebral-alvo a uma taxa de 5 µm/s usando um micromanipulador motorizado. Após a estabilização da atividade neural, as gravações foram adquiridas continuamente durante 400 s. Um sistema de aquisição multicanal foi utilizado para captar descargas de potenciais de ação neuronais (filtradas em 150–8.000 Hz, taxa de amostragem de 40 kHz) e potenciais de campo locais (PCL; filtrados em 0,7–400 Hz, taxa de amostragem de 1 kHz).
Utilizou-se software de separação de potenciais de ação para eliminar sinais de interferência e artefatos típicos de alta amplitude por meio de correlação cruzada de formas de onda. A análise subsequente dos sinais neurais foi realizada utilizando software de análise neural. Os neurônios foram classificados como ativos apenas quando exibiam uma taxa média de disparo espontânea >2 Hz e mantinham uma relação sinal-ruído estável >3:1. O limiar de 2 Hz foi escolhido com base nas características fisiológicas estabelecidas dos neurônios do NTS relacionados ao sistema autônomo; isso efetivamente excluiu células predominantemente silenciosas e rajadas rítmicas respiratórias de baixa frequência, assegurando que a análise se concentrasse em neurônios tonicamente ativos que medeiam a regulação cardiovascular basal17,18,19,20. A frequência média de disparo neuronal e os gráficos em raster da descarga de potenciais de ação foram gerados com base nesses critérios. Espectrogramas de energia do potencial de campo local (LFP) em 2D e topografias tridimensionais da densidade espectral de potência (PSD) foram construídos para avaliar as características energéticas das oscilações neurais.
Após a gravação, a incisão foi suturada e os ratos foram monitorados até que se recuperassem completamente da anestesia. A penicilina foi administrada por injeção intraperitoneal e o carprofeno (5 mg/kg, s.c.) foi administrado diariamente durante três dias consecutivos.
Análise de proteômica quantitativa com aquisição independente de dados
As proteínas totais foram extraídas com um tampão de lise e quantificadas pelo método do ácido bicinconínico. As proteínas foram desnaturadas, submetidas à alquilação redutiva e digeridas com tripsina a 37 °C por 2 h. Os peptídeos resultantes foram dessalinizados usando uma coluna C18, concentrados a 45 °C e ressuspendidos para análise subsequente por espectrometria de massas.
Os peptídeos foram carregados em uma coluna de retenção (C18 de 5 µm, 300 µm x 5 mm) equilibrada com 96% do tampão A (ácido fórmico 0,1% em água). Os peptídeos foram separados ao longo de uma coluna analítica de cromatografia líquida de ultra-alta performance de alto rendimento utilizando um gradiente rigorosamente otimizado de tampão A e tampão B (ácido fórmico 0,1% em acetonitrila 80%).
A espectrometria de massas foi realizada no modo de aquisição independente de dados (DIA) em íons positivos, com uma tensão de eletrospray de 1,9 kV. As varreduras completas do espectrômetro de massas foram adquiridas em uma faixa de massa de 380 a 980 m/z com resolução de 240.000, com um alvo de controle automático de ganho (AGC) de 500% e um tempo máximo de injeção de 3 ms. Os espectros MS/MS foram adquiridos com resolução de 80.000 (alvo AGC: 500%; tempo máximo de injeção: 3 ms; amplitude da lente RF: 40%). Os íons precursores foram fragmentados por dissociação por colisão de alta energia, utilizando uma janela de isolamento de 2 Th e uma energia de colisão normalizada de 25%, em um tempo de ciclo definido de 0,6 s.
Os dados brutos de espectrometria de massas foram processados usando o software DIA-NN. Uma biblioteca espectral foi gerada utilizando o algoritmo interno de aprendizado profundo, e a função de correspondência entre corridas foi aplicada para quantificação contra a base de dados do proteoma de referência de Rattus norvegicus, com digestão por tripsina e até 2 clivagens perdidas. A matriz final de proteínas quantitativas foi filtrada utilizando um limiar rigoroso de 1% de taxa de falsa descoberta tanto nos níveis de íons precursores quanto de proteínas.
Análise de bioinformática e identificação de genes centrais
As análises bioinformáticas e as visualizações de dados foram realizadas principalmente utilizando o ambiente de programação R juntamente com software especializado em visualização de redes. Para garantir transparência metodológica e reprodutibilidade, todos os scripts personalizados em R utilizados nesses processos analíticos foram fornecidos no Arquivo Suplementar 1. O controle inicial da qualidade dos dados e as avaliações da distribuição geral foram realizados usando o pacote ropls. Foram compiladas estatísticas gerais de identificação/quantificação de proteínas; análise de discriminantes por mínimos quadrados parciais (PLS-DA) foi realizada entre os três grupos; análise de discriminantes por mínimos quadrados parciais ortogonais (OPLS-DA) foi realizada para comparações pareadas; e mapas de calor de correlação entre amostras foram gerados utilizando o pacote pheatmap.
As proteínas expressas diferencialmente foram selecionadas utilizando limiares que compreendem valor de p <0,05, razão de variação >1,2 e pontuação de importância variável na projeção >1,0. Gráficos de vulcão duplos foram gerados utilizando o pacote ggplot2, as interseções foram identificadas usando o pacote ggVennDiagram e mapas de calor com agrupamento hierárquico foram construídos com o pacote pheatmap para visualizar as proteínas em interseção. As análises de enriquecimento de Gene Ontology (GO) e Kyoto Encyclopedia of Genes and Genomes (KEGG) foram realizadas separadamente para as proteínas reguladas positiva e negativamente, utilizando o pacote enrichR com base na base de dados Enrichr.
Todas as proteínas diferencialmente expressas foram mapeadas para o banco de dados STRING com um limiar de confiança de 0,4 para construir a rede de interação proteína-proteína. Os dados de interação foram importados para um software de visualização de redes. O plugin cytoHubba foi aplicado para calcular os escores topológicos, e os 18 principais genes com maior pontuação foram extraídos com base na intensidade da cor dos nós. Os 18 candidatos a proteínas centrais foram submetidos à análise de enriquecimento de vias, e as 10 proteínas mais proeminentes foram selecionadas para avaliar seus níveis de expressão em diferentes tecidos humanos utilizando o banco de dados Genotype-Tissue Expression (GTEx). O gene central mais crítico foi identificado com base nos níveis de expressão no cérebro humano e nos escores topológicos da rede. O Cistrome Data Browser foi utilizado para prever fatores de transcrição e modificações de histonas associados ao gene central específico.
Western blot e reação em cadeia da polimerase quantitativa
A proteína total foi extraída de tecidos do SNT usando uma mistura de lisado contendo tampão de lise com fluoreto de fenilmetanosulfonila, PMSF e inibidores de fosfatase. As amostras foram homogeneizadas utilizando um disruptor celular ultrassônico e centrifugadas a 13.800 x g durante 20 min a 4 °C para coletar os sobrenadantes. As concentrações de proteína foram determinadas utilizando o kit de ensaio de proteína com ácido bicinconínico. Um total de 20 µg de proteína de cada amostra foi separado por eletroforese em gel de poliacrilamida com dodecilsulfato de sódio a 10% e posteriormente transferido para membranas de fluoreto de polivinilideno.
As membranas foram bloqueadas com leite desnatado a 5% em Tween Tris-tampão salino (TBST) por 1 h à temperatura ambiente e incubadas durante a noite a 4 °C com anticorpos primários específicos direcionados contra Yin Yang 1 (YY1) e β-actina, utilizada como proteína de referência. As membranas foram lavadas com TBST por 5 min, três vezes, e incubadas com um anticorpo secundário conjugado à peroxidase do rábano-forrageiro por 1,5 h à temperatura ambiente. As bandas alvo foram visualizadas utilizando um kit de quimioluminescência aprimorada, capturadas por meio de um sistema de imagem e quantificadas em relação à β-actina.
O RNA total foi extraído de tecidos de NTS utilizando um reagente de extração de RNA. A concentração e pureza do RNA foram medidas usando um espectrofotômetro, e a síntese da fita complementar de cDNA foi realizada utilizando um kit de transcrição reversa. A reação de polimerase em tempo real quantitativa (PCR) foi realizada utilizando um kit de PCR com SYBR Green em um sistema de PCR em tempo real. As sequências específicas dos primers utilizadas para amplificação, juntamente com seus respectivos números de acesso da Sequência de Referência do NCBI, foram as seguintes: YY1 (NM_001002271.1), sentido 5'-AGCGTTCGTTGAGAGCTCAA-3' e antissentido 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_001014264.1), sentido 5'-TGTGATGACTGTGACCGTGG-3' e antissentido 5'-TCCAAACACAGGTGGCAACT-3'; DMAP1 (NM_001007705.1), sentido 5'-GGTGTGACATTACGGAGCCA-3' e antissentido 5'-TCCAGCAGCATCTGTTCCAG-3'; e gliceraldeído-3-fosfato desidrogenase (GAPDH) (NM_017008.4), sentido 5'-GGCACAGTCAAGGCTGAGAATG-3' e antissentido 5'-ATGGTGGTGAAGACGCCAGTA-3'. Os níveis relativos de expressão de mRNA foram calculados utilizando o método 2-ΔΔCt e normalizados em relação ao gene de referência interno GAPDH.
Análise estatística
Todos os dados experimentais foram analisados utilizando software estatístico e apresentados como média ± desvio padrão (DP). A normalidade foi avaliada pelo teste de Shapiro-Wilk, e a homogeneidade da variância foi verificada pelo teste de Brown-Forsythe.
Para comparações entre dois grupos independentes, o teste t de Student ou o teste t pareado foi utilizado para dados que atenderam aos critérios de normalidade. Os dados que não satisfizeram as suposições de normalidade foram analisados utilizando o teste U de Mann-Whitney ou o teste de postos com sinal de Wilcoxon. Para comparações entre múltiplos grupos, a análise de variância de um fator, seguida pelo teste post hoc de Holm-Sidak, foi usada quando as suposições de normalidade e homogeneidade foram atendidas. O teste H de Kruskal-Wallis, seguido pelo teste post hoc de Dunn, foi utilizado quando essas suposições não foram atendidas.
As correlações foram avaliadas utilizando o coeficiente de correlação de Pearson, calculado com o pacote Hmisc no R. Os valores de p correspondentes foram ajustados pelo método de taxa de descoberta falsa de Benjamini-Hochberg por meio do pacote stats, para controlar o aumento da taxa de erro tipo I devido a testes múltiplos. A significância estatística geral foi estabelecida em p <0,05.
Resultados
A eletroacupuntura melhora a função cardíaca e atenua a lesão miocárdica em ratos com insuficiência cardíaca crônica
Para avaliar os efeitos da AE na IC, o modelo de rato foi estabelecido por ligadura da artéria coronária DA, seguido de intervenções específicas de AE ou AE Simulada. Foram realizadas avaliações sistemáticas, incluindo ecocardiografia, ensaios bioquímicos e coloração histológica (Figura 2A). Funcionalmente, o grupo com IC apresentou dilatação ventricular e comprometimento da contratilidade. O tratamento com AE atenuou as reduções na FEVE e na DFSV observadas nos ratos com IC, enquanto o grupo com AE Simulada exibiu níveis de função cardíaca comparáveis aos do grupo com IC (Figura 2B e Figura 2C).
Além disso, a AE reduziu os níveis séricos de NT-proBNP e cTnT, indicando menor sobrecarga cardíaca e atenuação da lesão miocárdica. Em contraste, o grupo AE Simulado apresentou parâmetros bioquímicos semelhantes aos do grupo ICC (Figura 2E,F). A análise histológica mostrou que o grupo ICC exibia dano estrutural miocárdico e fibrose. O tratamento com AE melhorou a arquitetura miocárdica e reduziu a FVC, enquanto o grupo AE Simulado manteve alterações patológicas e níveis de FVC semelhantes aos do grupo ICC (Figura 2D). No geral, a AE exerceu efeitos cardioprotetores contra a ICC, enquanto a intervenção com AE Simulado não produziu resultados terapêuticos semelhantes.
A eletroacupuntura ativa neurônios no núcleo do trato solitário de ratos com insuficiência cardíaca crônica
Para determinar se o NST media a resposta central ao tratamento com EA, a ativação neuronal foi avaliada por meio da marcação para c-Fos, um marcador de excitação neural. A imagem de imunofluorescência (Figura 3A) e a contagem quantitativa de células (Figura 3B) revelaram que o número de neurônios positivos para c-Fos no NST foi menor no grupo CHF em comparação com o grupo Sham. No entanto, o tratamento com EA aumentou a expressão de c-Fos a níveis comparáveis à linha de base do grupo Sham. Paralelamente aos resultados funcionais periféricos, o grupo Sham EA exibiu níveis de expressão de c-Fos semelhantes aos do grupo CHF.
Para avaliar o estado funcional desses neurônios do NST, foram registrados sinais eletrofisiológicos in vivo. Os traçados da descarga de potenciais de ação (Figura 3C) e a taxa média de disparo quantitativa (Figura 3D) estavam alinhados com os achados histológicos. A frequência de disparo espontâneo dos neurônios do NST foi reduzida nas condições de ICC. Em contraste, a intervenção com AE aumentou a taxa de disparo neuronal, enquanto o procedimento de AE Simulado não produziu essas alterações eletrofisiológicas.
Esse padrão de ativação neural foi confirmado pela análise do potencial de campo local. Conforme ilustrado nos espectrogramas de escala de cores do PCL 2D e nos mapas tridimensionais de densidade espectral de potência (Figura 3E), a energia oscilatória neural dentro do NST foi atenuada durante o estado de ICC. Após o tratamento com AE, houve um aumento na intensidade da potência ao longo do espectro de frequência neural, indicando a ativação da rede, o que não foi observado no grupo controle de AE simulada.
Para examinar a relevância fisiológica dessa ativação central, foi realizada uma análise de correlação de Pearson, integrando métricas cardíacas periféricas com a atividade neuronal central no NTS (Figura 3F). A análise demonstrou que a frequência média de disparos e a expressão de c-Fos no NTS apresentaram correlação positiva com a FEVE. Por outro lado, esses indicadores de atividade neural central exibiram correlação negativa com o marcador sérico de insuficiência cardíaca NT-proBNP. Essas correlações indicam que a ativação neural do NTS modulada pela EA está associada à sua eficácia cardioprotetora periférica.
A eletroacupuntura altera o perfil proteômico global no núcleo do trato solitário
Devido à falta de eficácia terapêutica observada no grupo EA Sham durante as avaliações funcionais anteriores, a fase de proteômica incluiu apenas os grupos Sham, CHF e EA. Antes da coleta dos tecidos, 12 ratos por grupo foram submetidos à avaliação ecocardiográfica para avaliar os efeitos terapêuticos da EA, e esses resultados são apresentados na Figura Suplementar 1A. Após essa avaliação, 6 réplicas biológicas de cada grupo foram submetidas à análise proteômica quantitativa baseada em espectrometria de massas.
Foram realizadas análises de controle de qualidade e multivariadas para avaliar a confiabilidade e a distribuição geral dos dados proteômicos. O número total de proteínas identificadas foi de 5.914 no grupo Sham, 5.980 no grupo CHF e 5.836 no grupo EA, indicando detecção comparável de proteínas entre os três grupos experimentais (Figura 4A e Tabela Suplementar 1). A análise de discriminação por mínimos quadrados parciais demonstrou separação clara entre os grupos Sham, CHF e EA, indicando perfis proteômicos globais distintos associados ao estado da doença e à intervenção com EA (Figura 4B).
A análise discriminante de mínimos quadrados parciais por pares ortogonais demonstrou ainda mais a separação entre os grupos Sham e CHF (Figura 4C) e entre os grupos CHF e EA (Figura 4D). Os testes de permutação correspondentes apoiaram a confiabilidade dos modelos respectivos. Além disso, o mapa de calor da correlação de Pearson mostrou altas correlações intragrupo e padrões distintos entre grupos entre as amostras proteômicas, o que apoia a reprodutibilidade dos replicados biológicos (Figura 4E). Em conjunto, essas análises de controle de qualidade e multivariadas indicaram que o conjunto de dados proteômicos era suficientemente robusto para a identificação subsequente e análise bioinformática de proteínas diferencialmente expressas.
A eletroacupuntura modula proteínas diferencialmente expressas e vias de sinalização centrais no núcleo do trato solitário
Para explorar os alvos moleculares da AE, foram analisadas as alterações proteicas. Os gráficos de dispersão exibiram a distribuição das proteínas reguladas para cima e para baixo nas comparações Sham versus CHF e CHF versus AE (Figura 5A, Tabela Suplementar 2 e Tabela Suplementar 3). Para identificar os alvos terapêuticos, foi realizada uma análise de interseção. Conforme ilustrado nos diagramas de Venn, identificaram-se 58 proteínas reguladas para cima no grupo CHF, mas reguladas para baixo após o tratamento com AE, juntamente com 27 proteínas reguladas para baixo no grupo CHF e reguladas para cima pela intervenção com AE (Figura 5B e Tabela Suplementar 4). Esta triagem resultou em um total de 85 proteínas diferencialmente expressas centrais. O mapa térmico de agrupamento hierárquico demonstrou que a intervenção com AE modulou os padrões anormais de expressão dessas 85 proteínas, deslocando seus perfis em direção à linha de base Sham (Figura 5C).
Para determinar as funções biológicas desses alvos centrais, foram realizadas análises de enriquecimento GO e KEGG separadamente para os dois subconjuntos distintos de proteínas. Para o subconjunto de 58 proteínas reguladas negativamente pelo EA, o gráfico em bolhas GO demonstrou enriquecimento significativo em processos biológicos, incluindo organização da matriz extracelular e organização da estrutura extracelular, juntamente com componentes celulares como estrutura encapsulante externa e trímero de colágeno, e funções moleculares, incluindo ligação ao colágeno e ligação ao receptor de glutamato (Figura 5D e Tabela Suplementar 5). A análise subsequente de vias KEGG, visualizada por meio de diagramas de acordes e Sankey, revelou que essas 58 proteínas participam de cascatas incluindo digestão e absorção de proteínas, o citoesqueleto em células musculares e a via de sinalização TGF-β (Figura 5E e Tabela Suplementar 6). Essas visualizações topológicas destacaram proteínas específicas, incluindo COL3A1, COL14A1, MYH11, DCN e DPF2, como nós proeminentes que conectam múltiplas vias patológicas.
Por outro lado, foi realizada a anotação funcional para o subconjunto de 27 proteínas reguladas positivamente pela intervenção com EA. A análise de enriquecimento de GO indicou envolvimento em processos biológicos como a regulação do crescimento celular e a regulação positiva da alongamento da transcrição com molde de DNA, bem como funções moleculares incluindo ligação proteica dependente de cálcio e ligação de tetrapirrol (Figura 5F e Tabela Suplementar 7). Os diagramas de cordas e Sankey do KEGG correspondentes mapearam essas proteínas em vias críticas, incluindo remodelação da cromatina dependente de ATP e o complexo repressor policombo (Figura 5G e Tabela Suplementar 8). Notavelmente, esse mapeamento de rede isolou proteínas-chave como YY1, E2F2 e ENTPD5, conectando essas redes de sinalização centrais. Essa estratificação funcional abrangente estabeleceu a base estrutural para a validação subsequente dos alvos principais.
A topologia da rede e o perfil de expressão identificam YY1 como um alvo candidato associado aos efeitos da intervenção com eletroacupuntura
Para determinar o gene central entre as 85 proteínas diferencialmente expressas, foi construída uma rede de interação proteína-proteína. A análise topológica identificou 18 nós com altos escores de conectividade (Figura 6A e Tabela Suplementar 9). Posteriormente, foi realizada a análise de vias KEGG especificamente para essas 18 proteínas centrais. Os diagramas de cordas e de Sankey correspondentes mapearam as relações complexas entre esses centros e as cascatas de sinalização enriquecidas, incluindo remodelamento da cromatina dependente de ATP, o complexo repressor policombo e a via de sinalização TGF-β (Figura 6A e Tabela Suplementar 10). Com base nesse perfil funcional, as 10 proteínas mais proeminentemente enriquecidas foram selecionadas para triagem adicional. Como o alvo terapêutico do EA está localizado no sistema nervoso central, esses 10 candidatos foram avaliados utilizando a base de dados de expressão tecidual humana GTEx (Figura 6B e Figura Suplementar 1B–J). Os resultados indicaram que apenas YY1 (Figura 6B), DMAP1 (Figura Suplementar 1C) e DPF2 (Figura Suplementar 1D) foram expressos em tecidos cerebrais.
Para isolar o alvo candidato altamente responsivo da AE, foram realizados experimentos moleculares in vivo utilizando tecidos do SNT. A PCR quantitativa em tempo real foi utilizada para avaliar a resposta transcricional dos três candidatos enriquecidos no cérebro. A expressão de mRNA de YY1 foi reduzida nas condições de ICC e aumentada após o tratamento com AE, enquanto os níveis de expressão de mRNA de DPF2 e DMAP1 não apresentaram alterações estatisticamente significativas entre os grupos experimentais (Figura 6C). Esta triagem transcricional excluiu DPF2 e DMAP1 da validação adicional e indicou YY1 como o principal candidato responsivo. A análise subsequente por Western blot indicou que os níveis proteicos de YY1 foram reduzidos no grupo de ICC em relação à linha de base Sham, enquanto a intervenção com AE contrabalançou essa tendência, aumentando a expressão proteica de YY1 (Figura 6D e Figura 6E). Esses resultados experimentais indicam que a AE regula positivamente a expressão de YY1 dentro do SNT.
Para investigar os mecanismos regulatórios upstream que controlam a expressão de YY1, foram analisadas suas modificações histônicas relacionadas e fatores de transcrição. É importante observar que essas descobertas baseiam-se exclusivamente em previsões computacionais de bioinformática derivadas do Cistrome Data Browser e não representam validação experimental direta por ChIP-seq. A previsão epigenética destacou modificações histônicas, incluindo H3K27ac, H3K27me3 e H3K4me3, com altos escores de potencial regulatório para o locus YY1 (Figura 6F). Concomitantemente, a pontuação de potencial regulatório identificou fatores de transcrição como CDK9, PRDM1 e ELL2 como reguladores upstream de YY1 (Figura 6G). Essas previsões de bioinformática delineiam as possíveis redes epigenéticas e transcricionais que controlam a expressão de YY1 no SNT.
Em resumo, os dados apresentados demonstram que a intervenção com AE melhora efetivamente a função cardíaca sistêmica e atenua a lesão miocárdica em ratos com ICC. Esses efeitos cardioprotetores periféricos são acompanhados centralmente pela restauração da atividade de disparo neuronal e da energia oscilatória neural no SNT. Além disso, a triagem proteômica quantitativa identificou 85 proteínas diferencialmente expressas centrais e destacou o fator de transcrição YY1 como um alvo candidato altamente responsivo. Em conjunto, esses achados sugerem que a eficácia terapêutica da AE contra a ICC está estreitamente associada à restauração da função neural do SNT e que a superexpressão de YY1 pode estar envolvida nesse processo neurobiológico central.
Disponibilidade de Dados
Todos os dados gerados e analisados para apoiar as descobertas deste estudo estão incluídos no manuscrito e no seu Arquivo Suplementar 1. Para cumprir o requisito de acessibilidade pública dos dados, todos os dados brutos disponíveis que sustentam esta pesquisa foram depositados no repositório público Zenodo e são livremente acessíveis por meio do seguinte link: https://doi.org/10.5281/zenodo.22030720. Dados complementares de apoio estão disponíveis mediante solicitação razoável aos autores correspondentes.
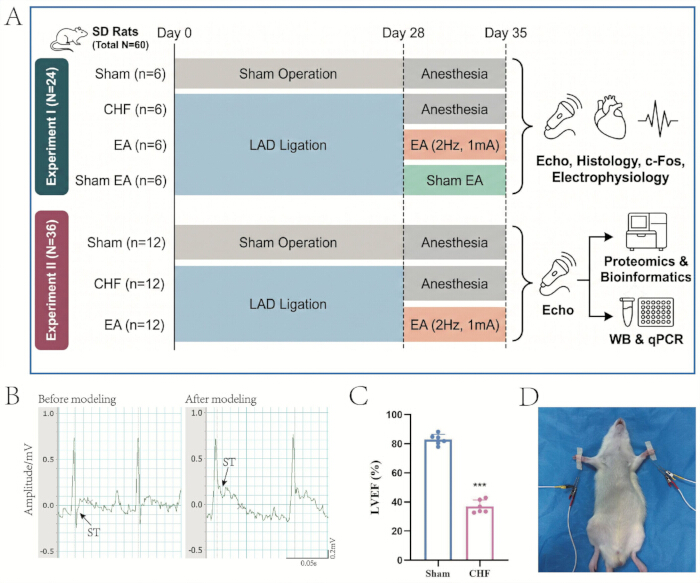
Figura 1: Desenho experimental, estabelecimento do modelo de rato com insuficiência cardíaca crônica e intervenção com eletroacupuntura. (A) Fluxograma geral do experimento, incluindo cronograma e alocação dos grupos para as duas séries experimentais independentes. (B) Registros representativos de eletrocardiograma antes e após a ligadura da artéria coronária descendente anterior (LAD), com setas indicando a elevação do segmento ST que confirma a isquemia miocárdica. (C) Análise quantitativa da FEVE 4 semanas após a cirurgia para confirmar o sucesso do modelo (réplicas biológicas n = 6, média ± DP). ***p < 0,001 em comparação com o grupo Sham. (D) Intervenção com EA nos pontos de acupuntura HT7 bilaterais. Clique aqui para visualizar uma versão maior desta figura.
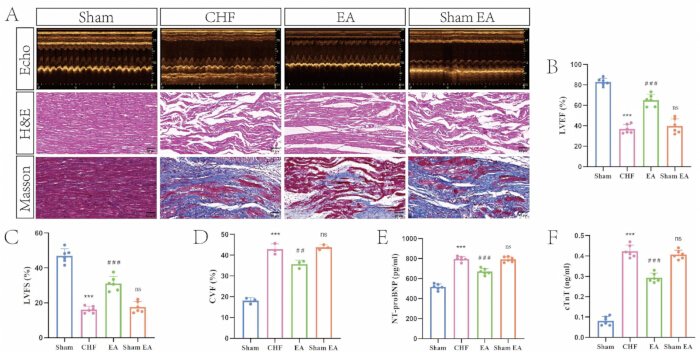
Figura 2: A eletroacupuntura melhora a função cardíaca e atenua a lesão miocárdica em ratos com insuficiência cardíaca crônica. (A) Ecocardiogramas representativos em modo M ao lado de imagens de coloração com hematoxilina e eosina e tricrômio de Masson de tecidos miocárdicos nas quatro grupos experimentais (barra de escala = 50 µm). (B) Análise quantitativa da FEVE entre os grupos (réplicas biológicas n = 6, média ± DP). ***p < 0,001 em comparação com o grupo Sham; ###p < 0,001 em comparação com o grupo CHF; ns, não significativo em comparação com o grupo CHF. (C) Análise quantitativa da FVVE entre os grupos (réplicas biológicas n = 6, média ± DP). ***p < 0,001 em comparação com o grupo Sham; ###p < 0,001 em comparação com o grupo CHF; ns, não significativo em comparação com o grupo CHF. (D) Análise quantitativa da FVC entre os grupos (réplicas biológicas n = 3, média ± DP). ***p < 0,001 em comparação com o grupo Sham; ##p < 0,01 em comparação com o grupo CHF; ns, não significativo em comparação com o grupo CHF. (E) Análise quantitativa dos níveis séricos de NT-proBNP entre os grupos (réplicas biológicas n = 6, média ± DP). ***p < 0,001 em comparação com o grupo Sham; ###p < 0,001 em comparação com o grupo CHF; ns, não significativo em comparação com o grupo CHF. (F) Análise quantitativa dos níveis séricos de cTnT entre os grupos (réplicas biológicas n = 6, média ± DP). ***p < 0,001 em comparação com o grupo Sham; ###p < 0,001 em comparação com o grupo CHF; ns, não significativo em comparação com o grupo CHF. Clique aqui para visualizar uma versão ampliada desta figura.
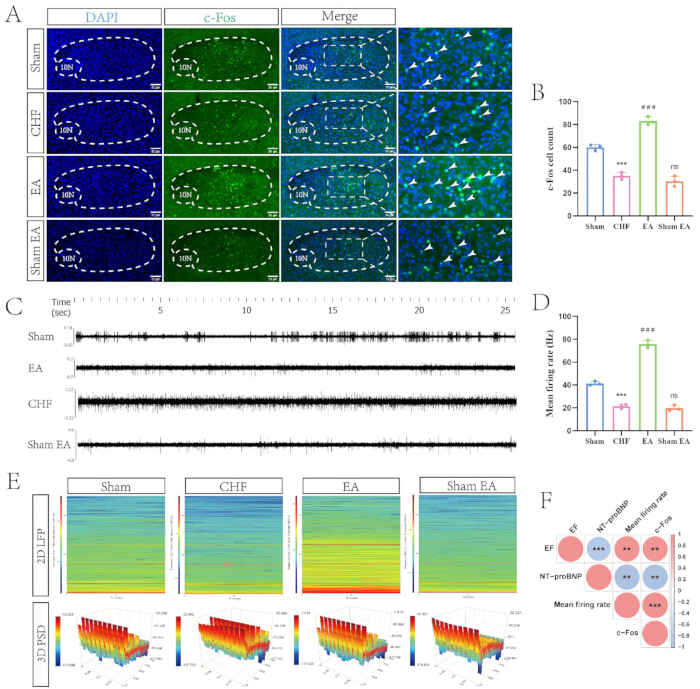
Figura 3: A eletroacupuntura restaura a atividade neuronal no núcleo do trato solitário em ratos com insuficiência cardíaca crônica. (A) Imagens representativas de imunofluorescência da expressão de c-Fos no NTS entre os grupos. Os núcleos foram contraestainados com DAPI, e as células positivas para c-Fos foram coradas em verde. As linhas tracejadas delimitam a região anatômica, e as setas brancas indicam neurônios representativos positivos para c-Fos (barra de escala = 30 µm). (B) Análise quantitativa do número de células positivas para c-Fos entre os grupos (réplicas biológicas n = 3, média ± DP). ***p < 0,001 em comparação com o grupo Sham; ###p < 0,001 em comparação com o grupo CHF; ns, não significativo em comparação com o grupo CHF. (C) Traçados representativos de descargas de potenciais de ação no NTS registrados por eletrofisiologia in vivo entre os grupos. (D) Análise quantitativa da taxa média de disparo neuronal entre os grupos (réplicas biológicas n = 3, média ± DP). ***p < 0,001 em comparação com o grupo Sham; ###p < 0,001 em comparação com o grupo CHF; ns, não significativo em comparação com o grupo CHF. (E) Espectrogramas locais representativos de campo potencial bidimensionais e topografias tridimensionais de densidade espectral de potência ilustrando a energia oscilatória neural no NTS. (F) Matriz de correlação que avalia as relações entre fenótipos cardiovasculares periféricos e parâmetros de atividade neural central. Círculos vermelhos e azuis indicam correlações positivas e negativas, respectivamente. **p < 0,01; ***p < 0,001. Clique aqui para visualizar uma versão maior desta figura.
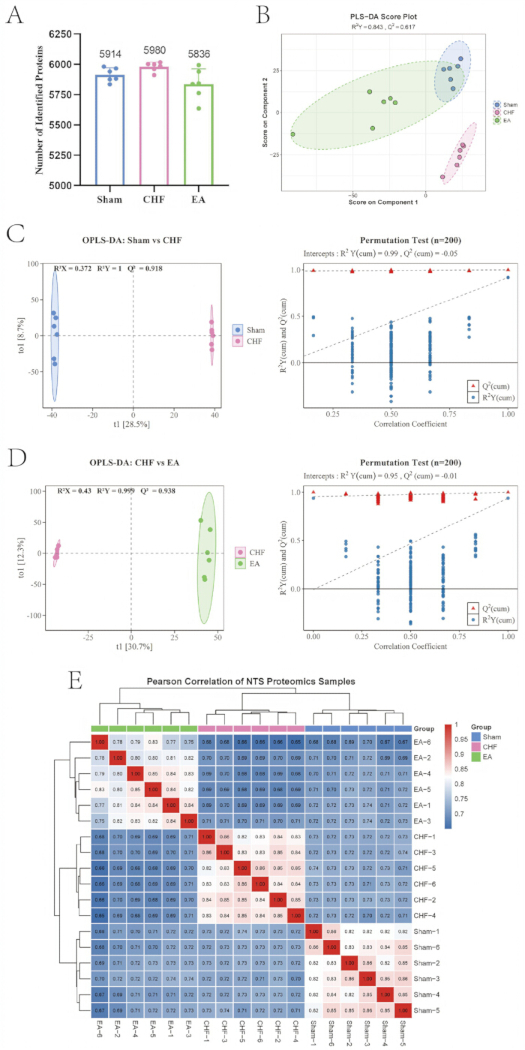
Figura 4: Controle de qualidade e avaliação estatística multivariada dos perfis proteômicos no núcleo do trato solitário. (A) Visão geral quantitativa das proteínas identificadas nos três grupos experimentais (réplicas biológicas n = 6). (B) Gráfico de escores da análise discriminante de mínimos quadrados parciais ilustrando a distribuição espacial geral e a separação entre os grupos. (C) Gráfico de escores da análise discriminante de mínimos quadrados parciais ortogonais e o teste de permutação correspondente validando a confiabilidade do modelo para a comparação entre Sham e CHF (200 permutações). (D) Gráfico de escores da análise discriminante de mínimos quadrados parciais ortogonais e o teste de permutação correspondente validando a confiabilidade do modelo para a comparação entre CHF e EA (200 permutações). (E) Mapa de calor da análise de agrupamento hierárquico dos coeficientes de correlação de Pearson avaliando a reprodutibilidade intra-grupo e a variância inter-grupos em todas as amostras proteômicas. Clique aqui para visualizar uma versão maior desta figura.
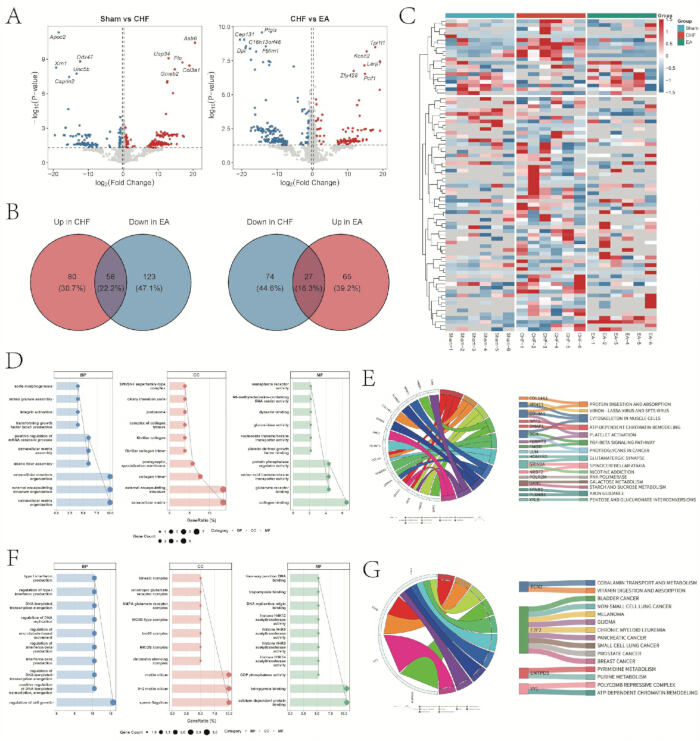
Figura 5: Identificação e análise de enriquecimento funcional das proteínas moduladas diferencialmente pela eletroacupuntura no núcleo do trato solitário. (A) Gráficos de vulcão ilustrando a distribuição de proteínas reguladas para cima e para baixo nas comparações Sham versus CHF e CHF versus EA. (B) Diagramas de Venn representando a análise de interseção para identificar as proteínas centrais reguladas para baixo e para cima após a intervenção com EA. (C) Mapa térmico de agrupamento hierárquico dos perfis de expressão das proteínas centralmente expressas de forma diferencial. (D) Gráficos de bolhas de GO detalhando os processos biológicos, componentes celulares e funções moleculares enriquecidos no subconjunto de proteínas reguladas para baixo. (E) Diagramas de acordes e de Sankey do KEGG representando as vias de sinalização enriquecidas pelas proteínas reguladas para baixo. (F) Gráficos de bolhas de GO detalhando os processos biológicos, componentes celulares e funções moleculares enriquecidos no subconjunto de proteínas reguladas para cima. (G) Diagramas de acordes e de Sankey do KEGG representando as vias de sinalização enriquecidas pelas proteínas reguladas para cima. Clique aqui para visualizar uma versão maior desta figura.
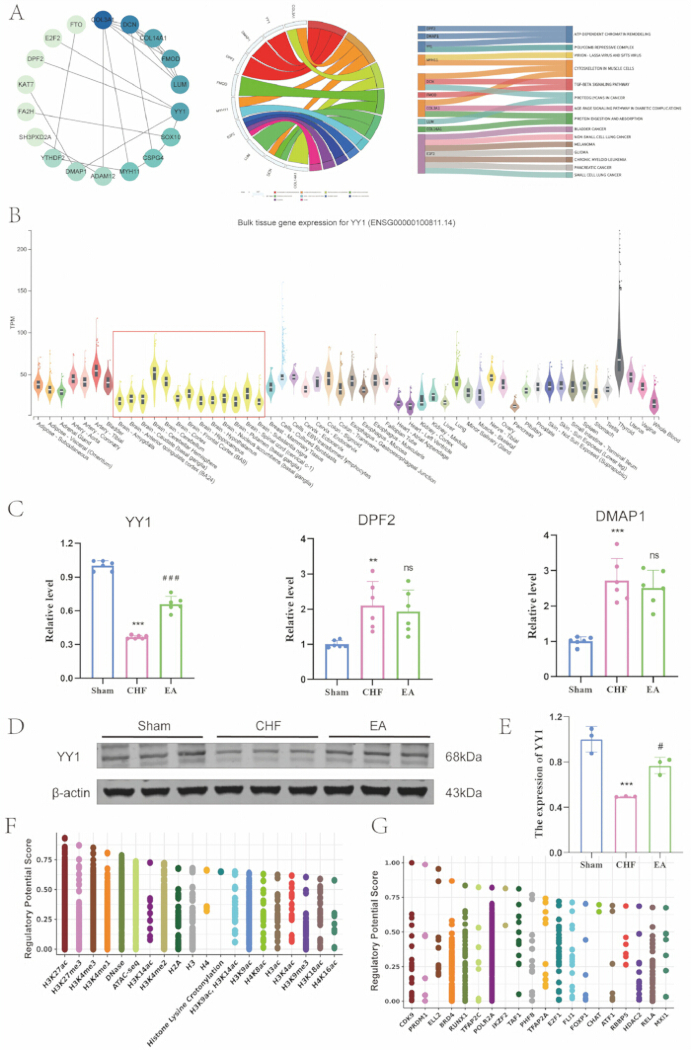
Figura 6: A topologia da rede, o perfil de expressão tecidual e a validação molecular identificam YY1 como um alvo candidato associado à eletroacupuntura. (A) Rede de interação proteína-proteína, diagrama de cordas e diagrama de Sankey das proteínas centrais identificadas. (B) Perfil de expressão tecidual humana de YY1 derivado do banco de dados GTEx, com a caixa vermelha destacando os tecidos cerebrais. (C) Análise quantitativa da expressão de mRNA de YY1, DPF2 e DMAP1 no NTS entre os grupos (réplicas biológicas n = 6, média ± DP). **p < 0,01, ***p < 0,001 em comparação com o grupo Sham; ###p < 0,001 em comparação com o grupo CHF; ns, não significativo em comparação com o grupo CHF. (D) Bandas representativas de Western blot de YY1 e β-actina no NTS entre os grupos. (E) Análise quantitativa da expressão proteica de YY1 entre os grupos (réplicas biológicas n = 3, média ± DP). ***p < 0,001 em comparação com o grupo Sham; #p < 0,05 em comparação com o grupo CHF. (F) Previsão bioinformática de modificações epigenéticas de histonas regulando o locus YY1 com base em escores de potencial regulatório. (G) Previsão bioinformática de fatores de transcrição upstream regulando o locus YY1 com base em escores de potencial regulatório. Clique aqui para visualizar uma versão ampliada desta figura.
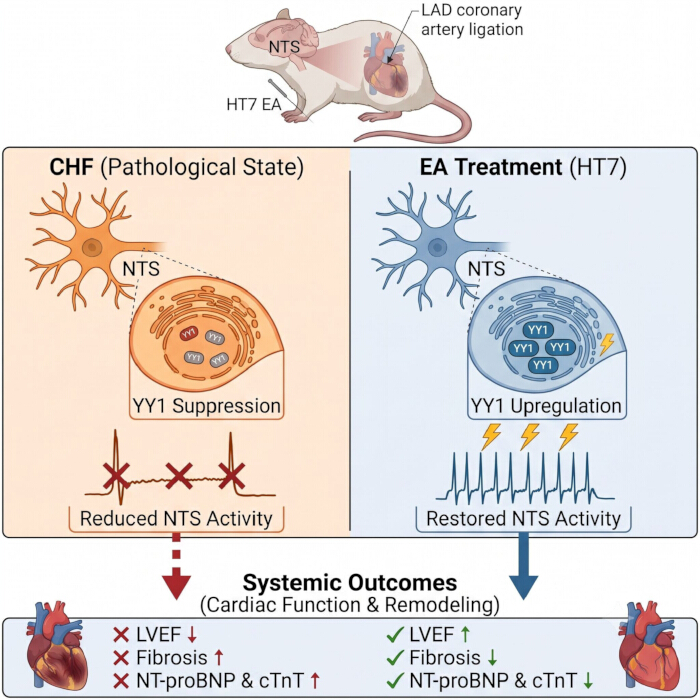
Figura 7: Modelo proposto da associação entre eletroacupuntura no ponto HT7, superexpressão de YY1, restauração da atividade neuronal no núcleo do trato solitário e melhora na insuficiência cardíaca crônica. (Esquerda) Estado Patológico: No modelo de ICC induzido pela ligadura da artéria coronária descendente anterior (LAD), a atividade neuronal dentro do NTS está reduzida, acompanhada pela supressão do fator de transcrição YY1. Essa inibição neural central está associada ao remodelamento cardíaco patológico, manifestado por diminuição da FEVE, aumento da fibrose miocárdica e elevação dos marcadores séricos de insuficiência cardíaca. (Direita) Tratamento com EA: A intervenção com EA no ponto de acupuntura HT7 aumenta a expressão de YY1 no NTS e restaura a atividade elétrica neuronal. Essa neuromodulação central exerce efeitos cardioprotetores, atenuando o remodelamento patológico e melhorando a função cardíaca sistêmica. Clique aqui para visualizar uma versão maior desta figura.
Figura Suplementar 1: Avaliação da função cardíaca da coorte proteômica e perfis de expressão tecidual humana de genes centrais candidatos. (A) Análise quantitativa da FEVE e da DFSV entre os grupos (réplicas biológicas n = 12, média ± DP). ***p < 0,001 em comparação com o grupo Sham; ###p < 0,001 em comparação com o grupo CHF. (B-J) Perfis de expressão tecidual humana de genes centrais candidatos derivados do banco de dados GTEx, incluindo COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH11 (F), E2F2 (G), LUM (H), DCN (I) e COL14A1 (J).Clique aqui para baixar este arquivo.
Tabela Suplementar 1: Matriz abrangente de identificação e quantificação do proteoma global no núcleo do trato solitário. Esta tabela apresenta o conjunto completo de dados de proteômica quantitativa em todos os grupos experimentais. Colunas importantes incluem ID da Proteína (número de acesso UniProt), Gene (símbolo do gene), Primeira.Descrição.Proteína (anotação funcional) e os valores normalizados de intensidade proteica para cada réplica biológica nos grupos Sham, CHF e EA (n = 6 por grupo).Clique aqui para baixar este arquivo.
Tabela Suplementar 2: Pontuações de importância da variável na projeção (OPLS-DA) para proteínas na comparação entre Sham e CHF. Esta tabela lista as características que distinguem os grupos Sham e CHF de acordo com o modelo OPLS-DA. As colunas principais incluem característica (representando o identificador da proteína/gene específica) e o valor VIP (Importância da Variável na Projeção), que indica a contribuição de cada característica para a separação dos grupos (limiar VIP > 1,0).Clique aqui para baixar este arquivo.
Tabela Suplementar 3: Escores de importância variável na projeção OPLS-DA para proteínas na comparação entre CHF e EA. Esta tabela lista as características que distinguem os grupos CHF e EA com base no modelo OPLS-DA. Semelhante à Tabela S2, inclui a coluna de características e o respectivo valor VIP, destacando as características mais responsivas à intervenção EA.Clique aqui para baixar este arquivo.
Tabela Suplementar 4: Lista detalhada dos 85 proteínas centrais diferencialmente expressas moduladas pela eletroacupuntura. Esta tabela fornece a interseção das proteínas que foram significativamente alteradas pela ICC e posteriormente revertidas pela intervenção com EA. Colunas importantes incluem Protein_ID, Gene, log2FC (log2 da variação da razão, indicando variação na expressão), P_value para significância estatística (limite p < 0,05) e VIP_value, que avalia a contribuição do modelo.Clique aqui para baixar este arquivo.
Tabela Suplementar 5: Análise de enriquecimento da Ontologia Genética do subconjunto de proteínas centrais subreguladas. Esta tabela exibe a anotação funcional da Ontologia Genética (GO) para as 58 proteínas subreguladas pelo EA. Colunas importantes incluem ONTOLOGIA (categorizada em Processo Biológico [BP], Componente Celular [CC] e Função Molecular [MF]), Descrição funcional, p.adjust (valor p ajustado para testes múltiplos) e geneID, que corresponde aos genes específicos enriquecidos em cada termo.Clique aqui para baixar este arquivo.
Tabela Suplementar 6: Análise de enriquecimento de vias da Enciclopédia de Kyoto de Genes e Genomas para o subconjunto de proteínas centrais subreguladas. Esta tabela ilustra as cascatas de sinalização enriquecidas para as 58 proteínas subreguladas. As colunas principais incluem o Termo da via, o valor de p ajustado que indica a significância estatística do enriquecimento e os genes específicos envolvidos em cada via.Clique aqui para baixar este arquivo.
Tabela Suplementar 7: Análise de enriquecimento da Ontologia Genética do subconjunto de proteínas centrais reguladas para cima. Esta tabela exibe a anotação funcional da Ontologia Genética (GO) para as 27 proteínas reguladas para cima por EA. O formato e as definições das colunas (ONTOLOGIA [BP, CC, MF], Descrição, p.adjust, geneID) são idênticos aos detalhados na Tabela S5.Clique aqui para baixar este arquivo.
Tabela Suplementar 8: Análise de enriquecimento de vias do Kyoto Encyclopedia of Genes and Genomes para o subconjunto de proteínas centrais superexpressas. Esta tabela ilustra as cascatas de sinalização enriquecidas para as 27 proteínas superexpressas. O formato e as definições das colunas (Termo, valor de p ajustado, Genes) são idênticos aos descritos na Tabela S6.Clique aqui para baixar este arquivo.
Tabela Suplementar 9: Pontuações de conectividade topológica das 18 proteínas centrais derivadas da rede de interação proteína-proteína. Esta tabela resume os parâmetros topológicos da rede utilizados para identificar os genes centrais. As colunas principais incluem o nome do gene e métricas centrais da rede, como Grau, Centralidade de Intermediação e Centralidade de Proximidade, que quantificam a importância relativa e a conectividade de cada nó dentro da rede biológica.Clique aqui para baixar este arquivo.
Tabela Suplementar 10: Análise de enriquecimento de vias do Kyoto Encyclopedia of Genes and Genomes para as 18 proteínas centrais da rede. Esta tabela apresenta as vias de sinalização específicas enriquecidas exclusivamente pelas 18 proteínas centrais identificadas. As colunas principais incluem o Termo da via, o valor de p ajustado para significância e os respectivos Genes responsáveis pelo enriquecimento funcional.Clique aqui para baixar este arquivo.
Arquivo Suplementar 1: Scripts R utilizados para análise e visualização de dados e imagens de Western blot sem recorte. O arquivo suplementar contém os scripts R utilizados para análise de correlação de Pearson, geração de gráficos de duplo vulcão e identificação de proteínas revertidas pelo EA, análise de enriquecimento de Ontologia Genética (GO), geração de mapa térmico de agrupamento hierárquico, visualização de enriquecimento na Enciclopédia de Kyoto de Genes e Genomas (KEGG), análise discriminante de mínimos quadrados parciais ortogonais (OPLS-DA) e teste de permutação, análise discriminante de mínimos quadrados parciais (PLS-DA), geração de mapa térmico de correlação de amostras proteômicas e análise de diagrama de Venn.Clique aqui para baixar este arquivo.
Discussão
The present study investigated the central mechanisms of EA at the HT7 acupoint in the rat model of CHF. Physiological and histological data indicated that EA improved LVEF and attenuated myocardial fibrosis. In parallel with these peripheral changes, in vivo electrophysiological recordings and neural mapping supported that EA restored neuronal firing rates within the NTS. Through mass spectrometry-based proteomics, the molecular landscape of the NTS was mapped, and 85 differentially expressed proteins whose abnormal expression patterns were modulated by the intervention were identified. Subsequent topological analysis and tissue expression profiling isolated the transcription factor YY1 as a candidate biological target. Molecular validation indicated that EA upregulates YY1 expression. These findings construct a central molecular network for EA and suggest YY1 as a potential neurobiological target linking central autonomic regulation with the amelioration of CHF. The comprehensive central mechanisms are summarized in Figure 7.
The NTS serves as the integration center for central cardiovascular reflexes and autonomic regulation21,22. In the context of cardiovascular diseases, CHF involves sustained autonomic imbalance characterized by sympathetic overactivation and vagal withdrawal23. During the pathophysiological progression of this condition, the sensitivity of peripheral baroreceptors decreases, which reduces excitatory afferent inputs to the NTS24. Consequently, this neural blunting leads to a diminished activation of the caudal ventrolateral medulla and a subsequent disinhibition of the rostral ventrolateral medulla, culminating in excessive central sympathetic outflow25. In parallel with these mechanisms, the electrophysiological and histological data indicated that the spontaneous firing frequency and c-Fos expression of NTS neurons were reduced in the CHF state. As a targeted neuromodulation approach, EA-generated somatosensory afferent signals are theoretically proposed to be transmitted through peripheral nerves to the dorsal horn of the spinal cord and to ascend to brainstem structures, including the NTS26. The results indicated that EA intervention at the HT7 acupoint increased neural oscillatory energy and restored neuronal firing rate in this brain region. Physiologically, the restored NTS neuronal activity facilitates activation of inhibitory interneurons in the medulla, thereby suppressing hyperactive sympathetic premotor neurons while concurrently enhancing parasympathetic efferent signals27. Linking these central neural mechanisms to peripheral cardiovascular phenotypes, the correlation analysis supported that this central neural activation was positively associated with LVEF and negatively associated with the peripheral heart failure marker NT-proBNP. These findings indicate that EA may exert its peripheral cardioprotective effects by alleviating the pathological inhibition of NTS neurons and promoting central autonomic homeostasis.
To elucidate the molecular pathways underlying this central neuromodulation, the proteomic landscape of the NTS was analyzed. Mass spectrometry-based proteomics identified 85 proteins whose expression patterns were modulated by the intervention. Functional stratification revealed that a subset of 58 proteins downregulated by EA is prominently involved in extracellular matrix organization and the transforming growth factor β-signaling pathway. The extracellular matrix in the central nervous system forms an organized lattice, including perineuronal nets that physically enwrap synaptic terminals and regulate local ion homeostasis28. Under chronic pathological stress, such as heart failure, aberrant extracellular matrix deposition creates a restrictive microenvironment within the brainstem29. This structural remodeling physically impedes synaptic structural plasticity and maintains neural circuits in a state of sympathetic hyperactivity30. By modulating the expression of structural proteins, such as COL3A1 and COL14A1 alongside DCN, EA remodels this pathological extracellular barrier. Concurrently, the enrichment of related signaling cascades—categorized under the "cytoskeleton in muscle cells" KEGG pathway, which indicates general structural and integrin-mediated alterations rather than implying the actual presence of myocytes within the NTS—suggests that extracellular changes are transmitted into the intracellular compartment31. This mechanotransduction signaling restores the dynamic turnover of dendritic spines and regulates synaptic transmission and efficacy in the autonomic reflex arc32.
Beyond extracellular structural reorganization, functional annotation of the 27 proteins upregulated by the intervention indicated the involvement of ATP-dependent chromatin remodeling. Sustained cardiovascular autonomic imbalance is maintained by epigenetic restrictions, where condensed chromatin limits the accessibility of promoter regions for genes regulating neural inhibition33. ATP-dependent chromatin remodeling complexes use energy from ATP hydrolysis to slide or evict nucleosomes, thereby opening genomic loci for active transcription34. The enrichment of this pathway, alongside the positive regulation of DNA-templated transcription elongation, indicates that EA acts at the epigenetic level to remodel disease-associated transcriptional memory35. The structural relaxation of the extracellular microenvironment translates into nuclear epigenetic modifications, facilitating the coordinated transcription of neuroprotective gene networks bridged by key proteins such as YY1 and E2F236,37. To systematically isolate the biological target mediating the therapeutic efficacy of EA, a stepwise screening strategy was applied. The 85 differentially expressed proteins were filtered through topological network mapping and pathway enrichment analysis to identify 10 prominent hub candidates. Subsequent tissue expression profiling verified that only YY1 and DPF2, alongside DMAP1, are expressed in human brain tissues. In vivo molecular validation further excluded DPF2 and DMAP1 due to a lack of transcriptional responsiveness, confirming YY1 as a highly responsive candidate target. YY1 is a zinc-finger transcription factor that exerts control over central nervous system development and neuronal plasticity38. In mature neural circuits, YY1 functions as a neuroprotective regulator by maintaining mitochondrial homeostasis and mitigating oxidative stress39. During the pathological progression of CHF, sustained hemodynamic stress and peripheral inflammation induce metabolic dysfunction and structural damage in brainstem neurons40. The experimental data indicated that YY1 expression is suppressed in the NTS under CHF conditions, whereas EA intervention counteracted this pathological suppression. Based strictly on computational bioinformatics predictions rather than empirical validation, YY1 is hypothesized to interact with active histone modifications, such as H3K27ac and H3K4me3, to orchestrate the transcription of downstream neuroprotective gene networks 41. The restoration of YY1 activity may facilitate repair of neuronal metabolic pathways and promote the structural integrity of synaptic connections. Consequently, the modulated NTS neurons improve their capacity to process peripheral baroreflex inputs and exert inhibitory control over descending sympathetic premotor pathways, which ameliorates the cardiovascular deterioration associated with CHF42.
Despite these discoveries, several methodological limitations warrant rigorous consideration. First, the current experimental design relied on correlational omics and expression profiling without direct functional evidence. Future investigations must incorporate targeted genetic manipulations, such as viral vector-mediated knockdown or overexpression within the NTS, alongside empirical ChIP-seq or CUT&Tag assays, to definitively establish the causal role of YY1 and validate its downstream epigenetic networks. Second, excluding the Sham EA cohort from the proteomics phase limits our ability to definitively rule out molecular signatures induced by nonspecific somatosensory stimulation. However, comparing the CHF and EA groups relative to the Sham baseline is considered sufficient to isolate EA-specific molecular changes in the current design. This is because all non-intervention cohorts, specifically the Sham and CHF groups, underwent strict baseline standardization of daily isoflurane anesthesia exposure, which effectively minimized the most profound non-specific neurological stress confounders. Furthermore, our initial functional data showed that Sham EA did not elicit significant cardiovascular or neural activation relative to the CHF group, suggesting that superficial somatosensory stimulation without electrical current does not reach the threshold required to drive substantial central molecular reprogramming. Third, the study lacks standard non-acupoint control groups, which prevents the definitive confirmation of HT7 acupoint specificity. Furthermore, the proposed HT7-to-NTS afferent neural pathways remain speculative without direct neural tracing or nerve-blockade validation. Finally, the in vivo electrophysiology evaluated global NTS activity at a single time point without distinguishing between specific excitatory and inhibitory neuronal subpopulations, nor did it assess long-term neural plasticity. Subsequent research must address these critical gaps to refine the central neurobiological mechanisms.
Ultimately, by integrating these findings while acknowledging their correlational nature, this research provides a valuable molecular framework indicating that EA mitigates pathological cardiac remodeling by restoring NTS neuronal function. These data highlight YY1 as a highly responsive candidate target for central cardiovascular neuromodulation, offering novel neurobiological insights for the clinical application of acupuncture therapy in heart failure management.
Divulgações
Todos os autores declaram que não possuem conflitos de interesse. Os autores também declaram que nenhuma ferramenta de inteligência artificial foi utilizada em qualquer parte do processo de preparação do manuscrito.
Agradecimentos
Gostaríamos de expressar nossa sincera gratidão a todos os pesquisadores que contribuíram para este estudo e reconhecer com respeito o sacrifício dos animais experimentais. Este trabalho foi apoiado pelo Programa Nacional de Pesquisa e Desenvolvimento da China (nº do contrato 2022YFC3500500 e 2022YFC3500502) e pelo Programa Universitário de Apoio a Talentos Xu Nenggui (nº do contrato DT2400000222). Os financiadores não tiveram papel no desenho do estudo, coleta e análise de dados, decisão de publicação ou preparação do manuscrito.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Ratos machos adultos Sprague-Dawley | Liaoning Changsheng Biotechnology Co., Ltd. | No. SCXK (LIAO) 2025-0001 | RGD_70508 |
| Agulhas de acupuntura | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| Meio de montagem com antifade e DAPI | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| anticorpo primário Anti-YY1 | Proteintech Group, Inc | 66281-1-Ig | AB_2881664 |
| anticorpo primário Anti-Beta Actin | 66009-1-Ig | AB_2687938 | |
| Albumina sérica bovina (BSA) | Sigma Odellie Trading Co., Ltd. | V900933 | — |
| Kit de ensaio de proteína BCA | Shanghai Biyuntian Biotechnology Co., Ltd. | P0012S | — |
| c-Fos (9F6) mAb coelho | Sai Xin Tong Biological Reagents Co., Ltd. | 2250S | AB_2247211 |
| Cytoscape | The Cytoscape Consortium | versão 3.2.1 | SCR_003032 |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q711-02 | — |
| Aparelho de eletroacupuntura | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-200A | — |
| Matriz de microeletrodos de oito canais (2 × 4) | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| Kit ELISA (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| Kit ELISA (cTnT) | MM-0795R2 | — | |
| Kit de quimioluminescência aprimorada | Proteintech Group, Inc | PK10001 | — |
| Goat anti-rabbit IgG | Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| anticorpo secundário HRP-conjugado Goat Anti-Mouse IgG | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | N/A |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| Software ImageJ | National Institutes of Health | versão 4.0 | SCR_003070 |
| Sistema de imagem | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| Máquina de anestesia para pequenos animais com múltiplos canais | RWD Life Science Co., Ltd | R510-22-10 | — |
| Micrôscópio | Olympus Optical Co., Ltd. | DP72 | — |
| Software NeuroExplorer | Beijing Plexon Technology Co., Ltd. | versão 5.0 | SCR_001818 |
| Software Offline Sorter | Beijing Plexon Technology Co., Ltd. | versão 4.7.2 | SCR_000012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| Sistema padrão Powerlab com derivação de membro II | AD Instruments International Trading Co., Ltd. | ML118 | — |
| Coluna PepMap Neo Trap | Thermo Fisher Scientific | — | — |
| Inibidores de fosfatase | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| Software R | — | versão 4.5.2 | SCR_001905 |
| Tampão de lise RIPA | Yeasen Biotechnology Co., Ltd. | 20115ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| Sistema de ultrassom digital para pequenos animais | Feiyino Technology Co., Ltd. | VINNO6 Lab | — |
| Software estatístico | GraphPad Software | versão 8.0 | SCR_002798 |
| Sistema de aquisição multicanal OmniPlex | Beijing Plexon Technology Co., Ltd. | versão 1.20.0 | — |
| Triton X-100 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| Sistema Vanquish Neo UHPLC | Thermo Fisher Scientific | — | — |
| Coluna de alto rendimento µPAC Neo | Thermo Fisher Scientific | — | — |
Referências
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.