Oito semanas de exercício em esteira foram associadas a alterações transcricionais cardíacas, da barreira intestinal e relacionadas ao Nlrp3, bem como a microbiota intestinal alterada, particularmente aumento de Akkermansia muciniphila, em camundongos diabéticos.
Artigo de investigação
Exercício em Esteira está Associado a Alterações na Barreira Intestinal e na Expressão Gênica Cardíaca de Nlrp3 em Camundongos Diabéticos
Neste artigo
Resumo
Resumo
Este estudo investigou as associações entre exercício físico, expressão gênica relacionada à barreira intestinal e expressão gênica cardíaca relacionada ao inflamassoma Nlrp3 em um modelo murino de diabetes. A desregulação metabólica foi induzida em camundongos machos C57BL/6J por meio de dieta rica em gordura combinada com estreptozotocina em baixa dose, seguida por 8 semanas de exercício em esteira (inclinação de 5°, 12 m/min, 20–50 min/dia, 5 dias/semana). Em comparação com camundongos diabéticos sedentários, os camundongos exercitados apresentaram menores níveis de glicose em jejum, resistência à insulina e lipídios séricos, além de maior expressão de mRNA de Occludin no cólon (expressão relativa: 0,38 ± 0,04 em camundongos diabéticos versus 0,79 ± 0,05 em camundongos exercitados, P < 0,001), menor expressão de mRNA cardíaco de Nlrp3, IL-1β, TNF-α, Col1a1 e Tgfb1, e menor razão entre mRNA de Bax/Bcl-2 (3,06 ± 0,19 versus 1,48 ± 0,10, P < 0,001). A análise por qPCR fecal de seis táxons selecionados mostrou que o exercício foi associado ao aumento das abundâncias relativas de Akkermansia muciniphila (0,31 ± 0,04 para 0,84 ± 0,07) e Lactobacillus (0,48 ± 0,05 para 1,01 ± 0,07) e à redução de Escherichia coli (3,84 ± 0,33 para 1,68 ± 0,13, P < 0,01). Em camundongos exercitados, a abundância de A. muciniphila apresentou correlação negativa com a expressão de mRNA cardíaco de Nlrp3 (R = −0,81, P = 0,0046). Esses achados correlacionais indicam associações entre exercício físico, alterações transcricionais cardíacas e intestinais e certos táxons microbianos intestinais em camundongos diabéticos, mas não estabelecem relações causais. Todos os achados moleculares estão limitados a alterações no nível de mRNA e não demonstram função da barreira intestinal, ativação do inflamassoma, fibrose miocárdica, apoptose ou outros efeitos funcionais ou ao nível proteico.
Introdução
O diabetes melito é uma ameaça crescente à saúde global, e as complicações cardíacas diabéticas continuam sendo condições graves com terapias específicas limitadas1,2,3,4. O treinamento físico pode melhorar a função cardíaca em modelos animais diabéticos5,6, mas os mecanismos subjacentes, especialmente aqueles envolvendo a microbiota intestinal e a barreira intestinal, permanecem parcialmente compreendidos.
A microbiota intestinal regula o metabolismo e a imunidade do hospedeiro7. No diabetes, a disbiose intestinal e a integridade comprometida da barreira podem aumentar a translocação de lipopolissacarídeo (LPS), promover a inflamação mediada por TLR4 e agravar a lesão miocárdica8,9. Esse ônus inflamatório de origem intestinal pode contribuir para a progressão das complicações diabéticas, incluindo a disfunção cardíaca. Bactérias benéficas, como Akkermansia e Faecalibacterium, podem estar reduzidas, enquanto bactérias como E. coli podem aumentar10,11. Tais alterações microbianas podem contribuir para a inflamação intestinal local e para a endotoxemia sistêmica, potencialmente afetando órgãos distantes, como o coração. O inflamassoma NLRP3 é um mediador importante da inflamação cardíaca na patologia cardíaca diabética, e sua ativação pode ser modulada por metabólitos microbianos intestinais12,13. Certos produtos microbianos, particularmente ácidos graxos de cadeia curta e LPS, têm efeitos opostos no condicionamento e na montagem do NLRP3, sugerindo uma possível associação entre o ambiente microbiano intestinal e o estado inflamatório miocárdico.
O exercício pode alterar a microbiota intestinal e melhorar a função da barreira intestinal14,15, mas as associações entre exercício, expressão gênica relacionada à barreira intestinal e expressão gênica cardíaca relacionada ao inflamassoma NLRP3 em modelos diabéticos ainda não são completamente compreendidas. O epitélio intestinal atua como uma interface entre microrganismos do lúmen e a circulação sistêmica e, portanto, pode contribuir para as associações entre alterações na microbiota intestinal e respostas inflamatórias cardíacas. No entanto, evidências experimentais diretas que estabeleçam uma relação causal entre as alterações induzidas pelo exercício na barreira intestinal, ativação do inflamassoma NLRP3 e proteção cardíaca em modelos diabéticos ainda são insuficientes.
Portanto, a hipótese era que o exercício em esteira estaria associado a alterações transcricionais cardíacas, modificações em determinados táxons microbianos intestinais, preservação da expressão gênica relacionada à barreira intestinal e redução da expressão gênica cardíaca relacionada ao inflamassoma NLRP3 em camundongos diabéticos. Um modelo de camundongo diabético foi estabelecido por meio de dieta rica em gordura combinada com estreptozotocina em baixa dose, seguida por uma intervenção de oito semanas de exercício em esteira. As avaliações incluíram parâmetros metabólicos, expressão de mRNA de ocludina no cólon, expressão gênica cardíaca relacionada ao inflamassoma NLRP3 e marcadores de expressão gênica inflamatórios, fibroticos e apoptóticos. Também foram quantificados determinados táxons microbianos intestinais para avaliar as alterações associadas ao exercício na microbiota intestinal. Análises de correlação foram utilizadas para examinar as associações entre determinados táxons microbianos intestinais, expressão gênica relacionada à barreira intestinal e marcadores transcricionais cardíacos. Essas análises foram planejadas para identificar associações, e não para estabelecer um mecanismo causal envolvendo barreira intestinal e NLRP3.
Protocolo
Todos os procedimentos com animais foram realizados em uma instalação animal credenciada por uma organização internacional de acreditação em cuidados com animais de laboratório. O protocolo foi revisado e aprovado pelo Comitê Institucional de Cuidado e Uso de Animais da instalação (IACUC; número de aprovação: VS212500103). Os experimentos foram conduzidos em uma instalação externa aprovada porque a instituição de origem não possuía uma instalação animal licenciada para este modelo específico.
Estabelecimento do modelo de camundongo diabético
Ratos machos C57BL/6J (8 semanas de idade, grau livre de patógenos específicos, peso corporal de 20–22 g) foram aclimatados por 1 semana em condições controladas (22 ± 2 °C, umidade relativa de 50 ± 10%, ciclo claro/escuro de 12 h) com acesso ad libitum a ração padrão e água.
Após a aclimatação, os camundongos foram alocados aleatoriamente, utilizando uma tabela de números aleatórios, em um grupo controle normal (Controle, n = 10) ou em um grupo de indução de diabetes. Os procedimentos experimentais e as medições dos resultados foram realizados com os pesquisadores cegos quanto à alocação dos grupos. Os animais foram mantidos quatro por gaiola em gaiolas padrão de policarbonato com cama enriquecida, sob condições livres de patógenos específicos. Apenas camundongos machos foram utilizados para minimizar a variabilidade potencial associada aos ciclos estrais e porque o modelo de dieta rica em gordura/STZ produziu fenótipos metabólicos mais consistentes em machos.
Camundongos submetidos à indução de diabetes receberam uma dieta rica em gordura (60% das kcal provenientes de gordura) durante 4 semanas, seguida por injeções intraperitoneais de estreptozotocina (STZ; 30 mg/kg de peso corporal) por 5 dias consecutivos. O STZ foi recém-dissolvido em tampão citrato 0,1 mol/L (pH 4,5), protegido da luz e administrado dentro de 15 minutos após o preparo. Camundongos controle receberam volumes equivalentes de tampão citrato. Uma semana após a última injeção, a glicemia em jejum (FBG) foi medida a partir de sangue da ponta da cauda após jejum de 6 h. Consideraram-se diabéticos os camundongos com FBG ≥ 11,1 mmol/L. Esses animais foram mantidos na dieta rica em gordura por mais 4 semanas para permitir o desenvolvimento de alterações relacionadas ao diabetes na expressão gênica.
Um total de 35 camundongos passaram pela indução do modelo, dos quais 28 atenderam ao critério de diabetes. O peso corporal e a ingestão de alimentos foram monitorados semanalmente, mas não foram utilizados como critérios de exclusão. Nenhum animal morreu ou foi excluído durante as fases de modelagem ou intervenção. Os camundongos com modelo bem-sucedido foram subdivididos aleatoriamente em um grupo de diabetes (DM, n = 10) e um grupo de intervenção com exercício (DM+Ex, n = 10). O tamanho final da amostra foi de n = 10 por grupo em todas as análises, com cada camundongo individual como unidade experimental.
Intervenção com exercício em esteira
Os camundongos do grupo DM+Ex realizaram exercício em esteira com uma inclinação de 5° e velocidade de 12 m/min, 5 dias por semana durante 8 semanas. Todas as sessões de exercício foram realizadas entre 9h00 e 11h00. Antes da intervenção, os camundongos foram aclimatados à corrida em esteira durante 3 dias a 6 m/min por 5 min/dia com inclinação de 0°. Cada sessão de exercício incluiu um aquecimento de 5 min a 6 m/min e uma desaceleração de 5 min a 6 m/min. Prodding suave foi utilizado para incentivar a corrida, e nenhuma estimulação elétrica foi empregada.
As durações diárias de corrida foram de 20 min na semana 1, 25 min na semana 2, 30 min na semana 3, 35 min na semana 4, 40 min na semana 5, 45 min na semana 6 e 50 min nas semanas 7–8. Os camundongos controle e DM foram colocados em esteiras paradas por durações equivalentes para controle do manuseio e da exposição ambiental. Um critério pré-definido de exclusão foi a falha em completar mais de 80% das sessões prescritas de exercício. Nenhum animal preencheu esse critério; todos os animais completaram as sessões prescritas de exercício, e nenhum evento adverso foi observado.
Coleta de amostras
Doze horas após a última sessão de exercício, os camundongos foram mantidos em jejum por 6 h e anestesiados por inalação de isoflurano (3% para indução e 1,5–2% para manutenção em O₂ a 100% a 1 L/min). Aproximadamente 500 µL de sangue foram coletados do plexo venoso retro-orbital, deixados coagular à temperatura ambiente por 30 min e centrifugados a 3.000 × g durante 15 min a 4 °C. O soro resultante foi armazenado a −80 °C.
Os camundongos foram subsequentemente eutanasiados por dislocação cervical sob anestesia profunda. Os corações foram rapidamente excisados e lavados com solução salina tamponada com fosfato (PBS) gelada. O tecido do ventrículo esquerdo foi isolado; uma porção foi congelada rapidamente em nitrogênio líquido e armazenada a −80 °C para extração de RNA, e o tecido restante foi fixado em paraformaldeído a 4%. Aproximadamente 1 cm de tecido colônico distal foi coletado, lavado com PBS, congelado rapidamente e armazenado a −80 °C. Amostras frescas de fezes foram coletadas diretamente do reto entre 9:00 e 10:00 da manhã para minimizar a contaminação da gaiola, transferidas para tubos estéreis e armazenadas a −80 °C dentro de 15 minutos após a coleta.
Medições bioquímicas em soro
A glicemia em jejum (FBG) foi medida utilizando um sistema de medição de glicose sanguínea. A insulina sérica foi determinada por ensaio imunoenzimático (ELISA), e o colesterol total e os triglicerídeos foram medidos utilizando um analisador bioquímico automatizado. A resistência à insulina foi calculada utilizando o modelo de avaliação da homeostase: HOMA-IR = FBG (mmol/L) × insulina (mIU/L)/22,5.
Extração de RNA e PCR quantitativa em tempo real a partir de tecido miocárdico
Aproximadamente 30 mg de tecido do ventrículo esquerdo foram homogeneizados em um reagente de extração de RNA à base de fenol-guanidínio, e o RNA total foi extraído conforme o protocolo do reagente. A concentração e pureza do RNA foram avaliadas espectrofotometricamente, considerando-se aceitável uma razão A260/A280 entre 1,8 e 2,0. O RNA total (1 µg) foi transcrito reversamente em DNA complementar (cDNA).
A PCR quantitativa (qPCR) foi realizada em uma mistura de reação de 20 µL contendo uma mistura mestra fluorescente de ligação ao DNA para qPCR, 0,4 µmol/L de cada iniciador (sentido e antissentido) e 2 µL de molde de cDNA. As condições de amplificação foram 95 °C por 30 s, seguidas por 40 ciclos de 95 °C por 5 s e 60 °C por 34 s. A análise da curva de dissociação foi realizada na faixa de 65–95 °C para verificar a especificidade da amplificação. Todas as reações foram realizadas em duplicata, e foram incluídos controles sem molde e sem transcriptase reversa. As eficiências de amplificação para todos os pares de iniciadores variaram de 90–105%. Os iniciadores para Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 e Gapdh estão listados na Tabela 1. A expressão gênica relativa foi calculada utilizando o método 2−ΔΔCt e expressa como variação em relação ao grupo Controle.
Extração de DNA da microbiota fecal e quantificação por qPCR
O DNA microbiano total foi extraído de amostras fecais utilizando um protocolo de extração de DNA de fezes. As abundâncias relativas de seis táxons bacterianos selecionados — Faecalibacterium prausnitzii, Akkermansia muciniphila, gênero Lactobacillus, gênero Bifidobacterium, Escherichia coli e gênero Desulfovibrio — foram determinadas por qPCR utilizando primers específicos para cada táxon listados na Tabela 1. Primers universais para o RNA ribossômico 16S bacteriano foram utilizados como referência para a abundância bacteriana total.
A abundância relativa foi calculada utilizando o método 2−ΔΔCt, com o RNA ribossômico 16S bacteriano total como referência, e foi normalizada para o grupo Controle. Curvas-padrão foram geradas para cada alvo utilizando diluições seriadas de DNA plasmidial em concentrações conhecidas para verificar a eficiência de amplificação. Todas as reações foram realizadas em duplicata com análise de curva de dissociação. Como os táxons bacterianos diferem no número de cópias do gene do RNA 16S, os resultados foram expressos como abundância relativa 2−ΔΔCt em vez de números absolutos de cópias.
Avaliação da expressão de Occludin no cólon
Aproximadamente 30 mg de tecido colônico foram processados para extração de RNA total e síntese de cDNA conforme descrito anteriormente. A expressão de mRNA de Occludin foi medida por qPCR utilizando os seguintes primers: sentido, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; antissentido, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Gapdh foi utilizado como referência interna, e a expressão relativa foi calculada pelo método 2−ΔΔCt.
Análise estatística
Os dados foram apresentados como média ± desvio padrão (SD). A normalidade foi avaliada utilizando o teste de Shapiro-Wilk, e a homogeneidade da variância foi avaliada utilizando o teste de Levene. Dados entre grupos que atenderam às premissas paramétricas foram analisados utilizando análise de variância unidirecional (ANOVA), seguida pelo teste de diferença significativa honesta de Tukey (HSD) para comparações pareadas pós-hoc. Comparações entre dois grupos foram realizadas utilizando um teste t de Student não pareado com duas caudas.
A correlação de postos de Spearman foi utilizada para avaliar as associações entre variáveis. Para o mapa de calor de correlação, foram calculadas correlações parciais de Spearman controlando para o grupo experimental. Os valores de P foram ajustados para comparações múltiplas utilizando o procedimento de taxa de falsa descoberta (FDR) de Benjamini-Hochberg, e um valor de P ajustado por FDR < 0,05 foi considerado estatisticamente significativo. Os tamanhos dos efeitos (Cohen's f para ANOVA e r para correlações) e os intervalos de confiança de 95% para as diferenças médias principais foram relatados quando aplicável. Todas as análises estatísticas foram realizadas utilizando software de computação estatística (versão 4.2.0).
Resultados
O exercício em esteira esteve associado à melhora de anormalidades metabólicas em camundongos diabéticos
Em comparação com o grupo Controle, os camundongos diabéticos apresentaram níveis significativamente mais altos de glicose sanguínea em jejum (18,23 ± 0,61 versus 6,03 ± 0,21 mmol/L, P < 0,001), insulina sérica (16,30 ± 1,04 versus 8,23 ± 0,38 mIU/L, P < 0,001), HOMA-IR (13,19 ± 1,18 versus 2,21 ± 0,17, P < 0,001), colesterol total (4,62 ± 0,23 versus 2,01 ± 0,09 mmol/L, P < 0,001) e triglicerídeos (2,12 ± 0,15 versus 0,80 ± 0,08 mmol/L, P < 0,001). Após a intervenção de oito semanas com exercício em esteira, esses parâmetros diminuíram para 12,03 ± 0,63 mmol/L, 10,61 ± 0,71 mIU/L, 5,69 ± 0,67, 3,09 ± 0,24 mmol/L e 1,20 ± 0,14 mmol/L, respectivamente, em comparação com os camundongos diabéticos (P < 0,01 ou P < 0,001); no entanto, a maioria dos valores permaneceu mais alta do que nos do grupo Controle (Figura 1A–E). A ANOVA unifatorial revelou efeitos significativos do grupo para todos os parâmetros (todos F(2,27) > 25,0, P < 0,001).
O treinamento físico foi associado à maior expressão de mRNA de Occludina no cólon e à menor expressão gênica relacionada ao inflamassoma no coração
Em camundongos diabéticos, a expressão de mRNA de Occludin no cólon foi aproximadamente 62% menor do que no grupo Controle (0,38 ± 0,04 vs. 1,00 ± 0,06, P < 0,001). Concomitantemente, a expressão de mRNA de Nlrp3, Il1b e Tnfa no coração aumentou para 5,6 vezes, 6,5 vezes e 5,1 vezes os valores do Controle, respectivamente (todos P < 0,001). Após a intervenção com exercício, a expressão de mRNA de Occludin aumentou para 0,79 ± 0,05 (P < 0,001 vs. camundongos diabéticos), enquanto a expressão de mRNA de Nlrp3, Il1b e Tnfa diminuiu para 2,30 ± 0,21, 2,66 ± 0,25 e 2,14 ± 0,17, respectivamente (todos P < 0,001 vs. camundongos diabéticos; Figura 2A–D).
O exercício esteve associado à menor expressão gênica relacionada à fibrose e apoptose miocárdicas
O grupo diabético apresentou aumento da expressão cardíaca dos genes relacionados à fibrose Col1a1 (4,46 ± 0,29 vezes, P < 0,001) e Tgfb1 (4,17 ± 0,24 vezes, P < 0,001), juntamente com uma maior razão de mRNA Bax/Bcl2 (3,06 ± 0,19, P < 0,001) em comparação com o grupo Controle. Após o treinamento físico, a expressão de mRNA de Col1a1 e Tgfb1 diminuiu para 2,02 ± 0,16 e 1,92 ± 0,16, respectivamente (ambos P < 0,001 versus camundongos diabéticos), e a razão de mRNA Bax/Bcl2 diminuiu para 1,48 ± 0,10 (P < 0,001 versus camundongos diabéticos; Figura 3A–C).
O exercício esteve associado a alterações em táxons microbianos intestinais selecionados em camundongos diabéticos
Em comparação com o grupo Controle, camundongos diabéticos exibiram abundâncias relativas significativamente menores de quatro táxons bacterianos selecionados: F. prausnitzii (0,25 ± 0,03 vs. 1,01 ± 0,07), A. muciniphila (0,31 ± 0,04 vs. 1,00 ± 0,06), Lactobacillus (0,48 ± 0,05 vs. 0,99 ± 0,04) e Bifidobacterium (0,56 ± 0,06 vs. 1,00 ± 0,06; todos P < 0,001). Em contraste, as abundâncias relativas de E. coli (3,84 ± 0,33 vs. 0,99 ± 0,08) e Desulfovibrio (3,07 ± 0,26 vs. 0,99 ± 0,07) foram significativamente maiores (ambos P < 0,001). A intervenção com exercício esteve associada a abundâncias relativas significativamente maiores de F. prausnitzii, A. muciniphila, Lactobacillus e Bifidobacterium (P < 0,01 ou P < 0,001), com A. muciniphila atingindo 0,84 ± 0,07. Concomitantemente, as abundâncias relativas de E. coli e Desulfovibrio diminuíram para 1,68 ± 0,13 e 1,52 ± 0,08, respectivamente (ambos P < 0,001 em comparação com camundongos diabéticos; Figura 4A–F).
Alterações microbianas selecionadas foram correlacionadas com a expressão gênica cardíaca e colônica
Foi realizada uma análise de correlação de Spearman para avaliar as associações entre as abundâncias relativas de táxons microbianos selecionados e marcadores de expressão gênica em tecidos cardíacos e colônicos (Figura 5A). A abundância relativa de A. muciniphila apresentou correlação negativa com o mRNA cardíaco de Nlrp3 (R = −0,81, P = 0,0046) e com o mRNA de Tnfa (R = −0,80, P = 0,0054). A abundância relativa de E. coli apresentou correlação positiva com a expressão de mRNA de Occludin no cólon (R = 0,66, P = 0,036; Figura 5B–D). Esses achados demonstraram associações entre táxons microbianos intestinais selecionados e marcadores transcricionais cardíacos e colônicos, mas não estabeleceram relações causais.
DISPONIBILIDADE DE DADOS:
Os conjuntos de dados gerados e/ou analisados durante o presente estudo estão disponíveis junto ao autor correspondente mediante solicitação razoável.
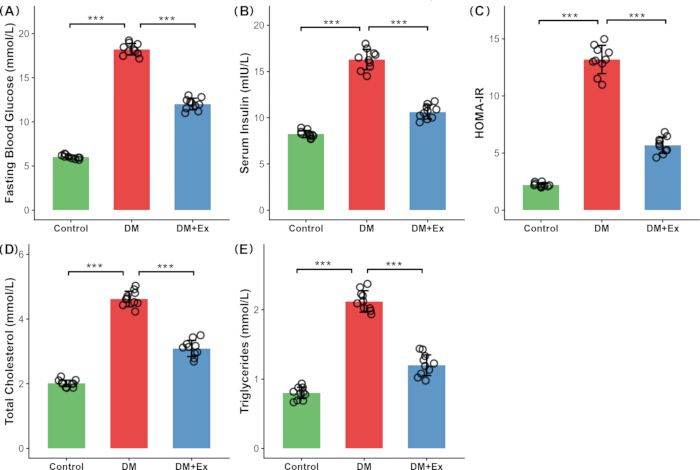
Figura 1: Efeitos do exercício em esteira sobre parâmetros metabólicos em camundongos diabéticos. (A) Glicemia em jejum. (B) Insulina sérica. (C) HOMA-IR. (D) Colesterol total. (E) Triglicerídeos nos grupos Controle, DM e DM+Ex. Os dados são apresentados como média ± DP (n = 10 por grupo), com os pontos de dados individuais sobrepostos a cada barra. As comparações entre os grupos foram realizadas utilizando ANOVA unidirecional seguida pelo teste post hoc de Tukey. *P < 0,05, **P < 0,01, ***P < 0,001; ns = não significativo. Abreviações: DM = modelo de diabetes; Ex = exercício; HOMA-IR = avaliação do modelo homeostático da resistência à insulina; DP = desvio padrão. Clique aqui para visualizar uma versão maior desta figura.
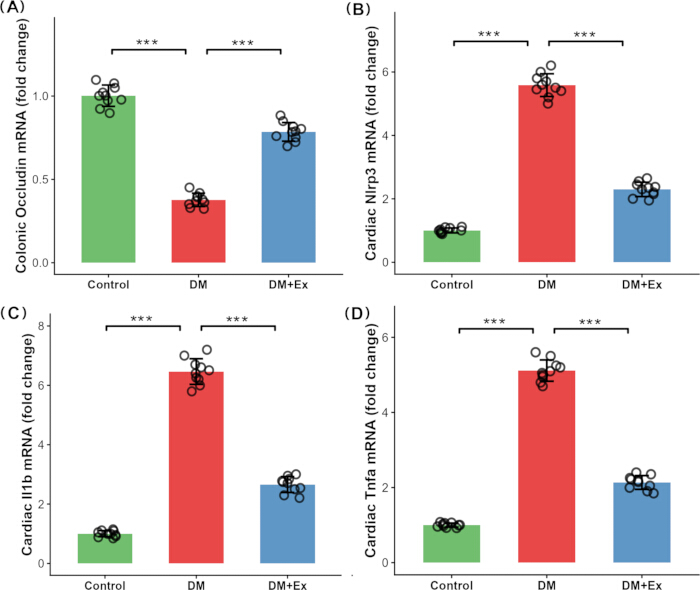
Figura 2: Efeitos do exercício em esteira na expressão gênica relacionada à barreira intestinal e ao inflamassoma cardíaco em camundongos diabéticos. (A) Expressão relativa de mRNA de Occludin no cólon. (B) Expressão relativa de mRNA de Nlrp3 no coração. (C) Expressão relativa de mRNA de Il1b no coração. (D) Expressão relativa de mRNA de Tnfa no coração. A expressão gênica foi normalizada em relação a Gapdh e expressa como variação em relação ao grupo Controle. Os dados são apresentados como média ± DP (n = 10 por grupo). *P < 0,05, **P < 0,01, ***P < 0,001. Abreviações: IL-1β = interleucina-1β; TNF-α = fator de necrose tumoral-α; DP = desvio padrão. Clique aqui para visualizar uma versão ampliada desta figura.
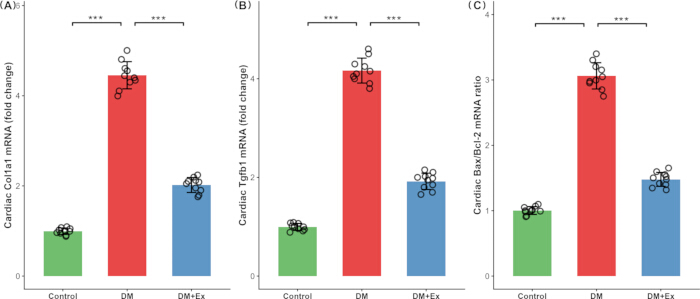
Figura 3: Efeitos do exercício em esteira na expressão gênica relacionada à fibrose miocárdica e à apoptose em camundongos diabéticos. (A) Expressão relativa de mRNA cardíaco de Col1a1. (B) Expressão relativa de mRNA cardíaco de Tgfb1. (C) Razão de mRNA Bax/Bcl2. A expressão gênica foi normalizada em relação a Gapdh e expressa como variação em relação ao grupo Controle. A razão Bax/Bcl2 foi calculada a partir dos valores de expressão relativa de mRNA. Os dados são apresentados como média ± DP (n = 10 por grupo), com os pontos de dados individuais sobrepostos a cada barra. *P < 0,05, **P < 0,01, ***P < 0,001. Abreviações: Col1a1 = colágeno tipo I alfa 1; Tgfb1 = fator de crescimento transformador-β1; Bax = proteína associada a BCL2-X; Bcl2 = linfoma de células B 2; DP = desvio padrão. Clique aqui para visualizar uma versão ampliada desta figura.
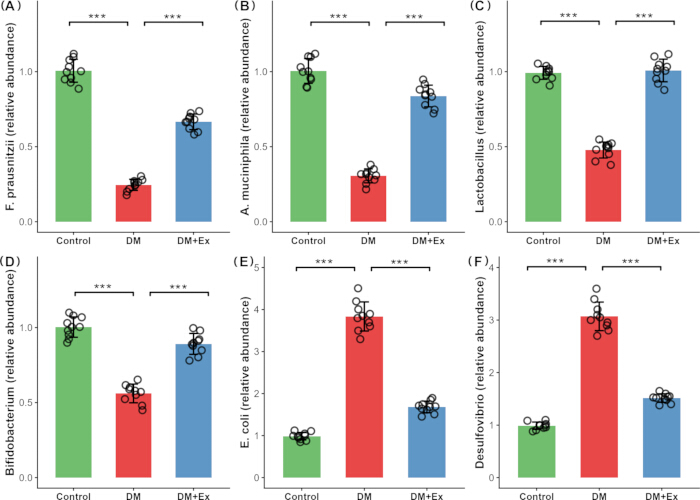
Figura 4: Efeitos do exercício em esteira sobre as abundâncias relativas de táxons microbianos intestinais selecionados em camundongos diabéticos. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. As abundâncias relativas foram determinadas por qPCR utilizando alvos específicos de rRNA 16S em relação ao rRNA bacteriano total 16S e normalizadas ao grupo Controle. Os dados são apresentados como média ± DP (n = 10 por grupo). *P < 0,05, **P < 0,01, ***P < 0,001. Abreviação: DP = desvio padrão. Clique aqui para visualizar uma versão ampliada desta figura.
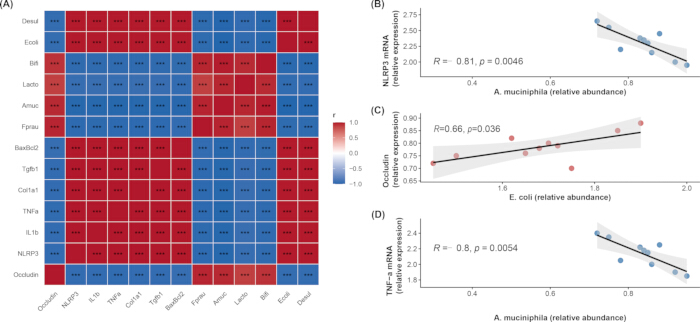
Figura 5: Análise de correlação entre táxons microbianos intestinais selecionados e parâmetros de expressão gênica cardíacos e colônicos. (A) Mapa de calor mostrando os coeficientes de correlação de Spearman entre táxons bacterianos selecionados e os RNAm colônicos de Occludin, os RNAm cardíacos de Nlrp3, Il1b e Tnfa, os RNAm de Col1a1 e Tgfb1 e a razão entre os RNAm Bax/Bcl2. As correlações foram calculadas utilizando dados dos três grupos (n = 30) como correlações parciais de Spearman, ajustadas para o grupo experimental. A escala de cores varia de azul, para correlações negativas, a vermelho, para correlações positivas. Asteriscos dentro do mapa de calor indicam significância após correção por FDR (*P < 0,05, **P < 0,01, ***P < 0,001). (B) Correlação entre a abundância relativa de A. muciniphila e a expressão de RNAm de Nlrp3 cardíaco no grupo DM+Ex. (C) Correlação entre a abundância relativa de E. coli e a expressão de RNAm de Occludin colônico no grupo DM+Ex. (D) Correlação entre a abundância relativa de A. muciniphila e a expressão de RNAm de Tnfa cardíaco no grupo DM+Ex. Cada ponto representa um camundongo individual. As linhas de regressão linear e os intervalos de confiança de 95% são mostrados para fins de visualização. Abreviações: DM = modelo de diabetes; Ex = exercício; FDR = taxa de falsa descoberta. Clique aqui para visualizar uma versão maior desta figura.
| Gene/Microbiano | Primer Direto | Primer Reverso |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Bactérias totais (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Tabela 1: Sequências de iniciadores utilizadas para PCR quantitativa em tempo real.
Discussão
No presente estudo, utilizou-se um modelo de camundongo diabético induzido por dieta rica em gordura combinada com baixa dose de STZ para avaliar alterações metabólicas, intestinais, cardíacas e microbianas associadas ao exercício. Oito semanas de exercício em esteira foram associadas à melhora dos parâmetros metabólicos, maior expressão gênica de Occludin no cólon, menor expressão gênica relacionada ao inflamassoma Nlrp3 no coração e menor expressão gênica relacionada à inflamação, fibrose e apoptose miocárdica. O exercício também foi associado a alterações nas abundâncias relativas de certos táxons microbianos intestinais. Em conjunto, esses achados sugerem que as alterações transcricionais cardíacas associadas ao exercício podem estar relacionadas a alterações na expressão gênica relacionada à barreira intestinal e a certos táxons microbianos intestinais, embora a causalidade não tenha sido estabelecida.
Como esperado para o modelo diabético, os camundongos desenvolveram distúrbios metabólicos acentuados, incluindo hiperglicemia, hiperinsulinemia, resistência à insulina e dislipidemia, consistentes com o paradigma patológico bem estabelecido16,17. O regime de exercícios de 8 semanas foi associado a reduções de aproximadamente 34% na glicemia de jejum e 57% no HOMA-IR, indicando melhora parcial da resistência à insulina. Ao nível miocárdico, o exercício foi associado a reduções de 40%–60% na expressão de marcadores de mRNA pró-inflamatórios (Tnfa, Il1b), pró-fibróticos (Tgfb1, Col1a1) e relacionados à apoptose (Bax/Bcl2), o que está de acordo com estudos anteriores que associam o exercício aeróbico à ativação da AMPK e à inibição do NF-κB18,19. No entanto, nenhum desses parâmetros retornou aos níveis do grupo Controle, indicando que a intervenção de 8 semanas foi insuficiente para normalizar o fenótipo transcripcional associado ao diabetes estabelecido, o que pode estar relacionado a efeitos persistentes de memória glicêmica20.
A expressão de mRNA de Occludin no cólon foi aproximadamente 62% menor em camundongos diabéticos, sugerindo uma redução na expressão gênica relacionada à barreira intestinal. Concomitantemente, a expressão de mRNA cardíaco de Nlrp3, Il1b e Tnfa aumentou 5,6 vezes, 6,5 vezes e 5,1 vezes, respectivamente. O inflamassoma NLRP3 é um importante sensor do sistema imunológico inato e tem sido implicado na patologia cardíaca diabética. A hiperglicemia pode aumentar a expressão gênica miocárdica de Nlrp3 por meio das vias de espécies reativas de oxigênio (ROS) e da proteína interativa da tioredoxina (TXNIP), com efeitos subsequentes na sinalização inflamatória relacionada a IL-1β e IL-1821,22. Também tem sido descrita como estímulo upstream para o "priming" do NLRP3 a translocação sistêmica aumentada de lipopolissacarídeo (LPS) secundária à ruptura da barreira intestinal23. O LPS pode aumentar a expressão de Nlrp3 e de pro-Il1b por meio do eixo de sinalização TLR4/MyD88/NF-κB, fornecendo o primeiro sinal necessário para o "priming" do inflamassoma24. No presente modelo diabético, observou-se um aumento na abundância relativa de E. coli, juntamente com redução na expressão de mRNA de Occludin no cólon e aumento na expressão gênica cardíaca relacionada ao inflamassoma. Essas alterações paralelas são compatíveis com uma possível via inflamatória de origem intestinal, mas não demonstram translocação aumentada de LPS ou um mecanismo causal intestino-corpo.
A intervenção por exercício esteve associada a um aumento na expressão de mRNA de Occludin no cólon até aproximadamente 79% do valor do Controle, enquanto a expressão de mRNA de Nlrp3, Il1b e Tnfa no coração diminuiu para cerca de 2,3, 2,7 e 2,1 vezes os valores do Controle, respectivamente. Esses achados indicam uma associação entre maior expressão gênica relacionada à barreira intestinal e menor expressão gênica inflamatória cardíaca após o exercício. Estudos anteriores propuseram que o exercício pode apoiar a função da barreira intestinal por meio do aumento da produção de muco, regulação das proteínas das junções apertadas e melhoria da perfusão intestinal25,26,27,28. No entanto, os dados atuais foram limitados a medições de mRNA e, portanto, não confirmaram esses mecanismos funcionais.
A análise direcionada da microbiota intestinal mostrou que o exercício esteve associado à reversão parcial das alterações relacionadas ao diabetes nas abundâncias relativas de táxons selecionados, particularmente um aumento em A. muciniphila e uma diminuição em E. coli. Essas alterações recíprocas são consistentes com associações previamente descritas entre esses táxons e os processos de manutenção da barreira e relacionados a endotoxinas29,30,31. No entanto, como apenas táxons selecionados foram quantificados, os resultados devem ser interpretados como alterações associadas ao exercício nas abundâncias relativas de bactérias específicas, e não como uma remodelação abrangente da microbiota intestinal.
A análise de correlação identificou ainda associações entre táxons microbianos selecionados e marcadores transcricionais. No grupo submetido à intervenção com exercício, a abundância de A. muciniphila apresentou correlação negativa com a expressão de mRNA cardíaco de Nlrp3 (R = −0,81, P = 0,0046) e Tnfa (R = −0,80, P = 0,0054). Em contraste, a abundância de E. coli mostrou correlação positiva com a expressão de mRNA de Occludin no cólon (R = 0,66, P = 0,036; Figura 5C). A associação positiva entre E. coli e mRNA de Occludin foi contrária à hipótese inicial e indica que a relação entre determinados táxons microbianos intestinais e a expressão gênica relacionada à barreira intestinal não é explicada por um modelo linear simples. Essas correlações são coerentes com as associações entre exercício, táxons microbianos selecionados e marcadores transcricionais do hospedeiro, mas não estabelecem causalidade. Evidências anteriores demonstrando que a redução de A. muciniphila pode aumentar a permeabilidade intestinal e a endotoxemia metabólica32, juntamente com evidências que implicam o NLRP3 na patologia cardíaca diabética33, fornecem um contexto biológico para essas associações. Contudo, o presente estudo não demonstrou diretamente que o aumento de A. muciniphila aprimorou a função da barreira de muco, reduziu a translocação de LPS ou atenuou a inflamação cardíaca mediada por TLR4/NLRP3.
Este estudo teve várias limitações. Primeiro, a qPCR direcionada ao rRNA 16S foi utilizada para quantificar seis táxons bacterianos representativos, em vez de sequenciamento de amplicons do 16S ou sequenciamento metagenômico. Consequentemente, não foi possível realizar uma avaliação abrangente da estrutura da comunidade microbiana intestinal e de sua capacidade funcional, e mudanças mais amplas na comunidade ou vias funcionais não puderam ser avaliadas. Os resultados foram, portanto, descritos como alterações nas abundâncias relativas de táxons selecionados, em vez de remodelação da microbiota intestinal. Segundo, os níveis circulantes de LPS, as concentrações plasmáticas de AGCC e a permeabilidade intestinal não foram medidos diretamente, limitando assim a interpretação mecanicista. Terceiro, o estudo baseou-se principalmente em dados de expressão de mRNA. Não foram realizadas validações ao nível proteico ou funcional da integridade da barreira, ativação do inflamassoma, fibrose e apoptose. Assim, as conclusões restringiram-se a alterações transcricionais e não estabeleceram efeitos funcionais ou ao nível proteico. Quarto, apenas um regime de intensidade e duração do exercício foi examinado, limitando as conclusões sobre uma prescrição ideal de exercício para alterações transcricionais cardíacas associadas ao diabetes. Quinto, apenas camundongos machos foram estudados, e os resultados podem não ser generalizáveis para fêmeas. Sexto, a ausência de um grupo controle saudável submetido ao exercício limitou a capacidade de distinguir respostas específicas do diabetes dos efeitos fisiológicos do exercício. Sétimo, ecocardiografia e histopatologia cardíaca não foram realizadas; portanto, o modelo foi descrito como um modelo de camundongo diabético, e não como um modelo confirmado de cardiomiopatia diabética, e todas as descobertas cardíacas foram limitadas a alterações transcricionais. Por fim, algumas correlações observadas podem ter refletido separação entre grupos, em vez de relações biológicas intragrupo, embora tenha sido utilizada análise de correlação parcial controlando para grupo, a fim de reduzir essa preocupação.
Em resumo, oito semanas de exercício em esteira estiveram associadas à melhora metabólica e a alterações transcricionais cardíacas e colônicas em camundongos diabéticos. Essas alterações ocorreram concomitantemente a mudanças nas abundâncias relativas de determinados táxons microbianos intestinais, particularmente aumentos em A. muciniphila e diminuições em E. coli. As associações observadas apoiam investigações adicionais sobre as relações entre exercício físico, certos táxons microbianos intestinais, expressão gênica relacionada à barreira intestinal e transcrição relacionada ao inflamassoma cardíaco. Estudos futuros que incluam perfis mais abrangentes do microbioma, quantificação de ácidos graxos de cadeia curta (SCFA), ensaios de permeabilidade intestinal e validação em nível proteico ou histológica serão necessários para testar os mecanismos propostos e estabelecer causalidade. Estudos adicionais de intervenção utilizando transplante de microbiota fecal, suplementação com A. muciniphila ou inibição de NLRP3 seriam necessários para determinar se as associações observadas refletem vias causais.
Divulgações
Os autores declaram não haver interesses financeiros concorrentes ou relações pessoais que poderiam ter parecido influenciar o trabalho relatado neste artigo. Nenhuma ferramenta de IA foi utilizada na preparação deste manuscrito ou das figuras.
CONTRIBUIÇÃO DOS AUTORES:
H.H. e G.Z. conceberam e planejaram o estudo. H.H., G.Z. e Y.X. realizaram os experimentos com animais e a coleta de amostras. H.H. e G.Z. conduziram os experimentos de biologia molecular e adquiriram os dados. H.H. e Y.X. realizaram a análise estatística. H.H. redigiu o manuscrito. H.W. revisou criticamente o manuscrito por conteúdo intelectual importante. Todos os autores leram e aprovaram o manuscrito final
Agradecimentos
Esta pesquisa não recebeu nenhuma bolsa específica de agências financiadoras dos setores público, comercial ou sem fins lucrativos.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Glicosímetro Accu-Chek e tiras reagentes | Roche | Accu-Chek Active | Utilizado para medição da glicose sanguínea em jejum |
| Analisador bioquímico automático | Hitachi | 7180 | Utilizado para medições bioquímicas em soro |
| Camundongos C57BL/6J (machos, 8 semanas) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Animais experimentais utilizados para estabelecer o modelo de camundongo diabético |
| Tampão de citrato (0,1 mol/L, pH 4,5) | Sigma-Aldrich | C8532 | Utilizado para preparação da solução de estreptozotocina |
| Kit de ensaio imunoenzimático (ELISA) para insulina de camundongo | Wuhan HuaMei Biotech | CSB-E05070m | Utilizado para medição da insulina sérica |
| Dieta rica em gordura (60% kcal provenientes de gordura) | Research Diets | D12492 | Utilizada para indução e manutenção do modelo diabético |
| Isóflurano | RWD Life Science | R510-22-10 | Utilizado para anestesia por inalação |
| Microcentrífuga | Eppendorf | 5424 R | Utilizada para centrifugação de amostras |
| Espectrofotômetro NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Utilizado para avaliação da concentração e pureza do RNA |
| Paraformaldeído (4%, em PBS) | Servicebio | G1101 | Utilizado para fixação de amostras de tecido |
| Solução salina tamponada com fosfato (PBS) | Servicebio | G0002 | Utilizada para lavagem e perfusão de amostras de tecido |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Utilizado para PCR quantitativa em tempo real |
| Kit PrimeScript RT Reagente (para qPCR) | TaKaRa (Takara Bio) | RR037A | Utilizado para transcrição reversa de RNA em cDNA |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | Utilizado para extração de DNA microbiano de amostras fecais |
| Software R | R Foundation | 4.2.0 | Utilizado para análise estatística |
| Sistema de PCR em tempo real (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Utilizado para amplificação e detecção por PCR quantitativa em tempo real |
| Estreptozotocina (STZ) | Sigma-Aldrich | S0130 | Utilizada em conjunto com dieta rica em gordura para induzir o modelo de camundongo diabético |
| Kit de ensaio de Colesterol Total (TC) | Nanjing Jiancheng Bioengineering Institute | A111-1 | Utilizado para medição do colesterol total sérico |
| Esteira rolante (motorizada, com controle de inclinação) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Utilizada para intervenção por exercício em esteira |
| Kit de ensaio de Triglicerídeos (TG) | Nanjing Jiancheng Bioengineering Institute | A110-1 | Utilizado para medição de triglicerídeos séricos |
| Reagente TRIzol | Invitrogen (Thermo Fisher) | 15596018 | Utilizado para extração de RNA total de amostras de tecido |
Referências
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.