Este estudo descreve um protocolo para quantificar aminas biogênicas em cérebros de Drosophila utilizando cromatografia líquida de alta eficiência acoplada à detecção eletroquímica (HPLC-ECD). Aproveitando a manipulabilidade genética de Drosophila e a HPLC-ECD, esta abordagem pode ajudar os pesquisadores a elucidar os mecanismos moleculares e genéticos subjacentes às alterações nas aminas biogênicas em distúrbios cerebrais.
Artigo de método
Usando Cromatografia Líquida de Alta Eficiência para Estudar Alterações em Aminas Biogênicas em Modelos de Drosophila de Transtornos Cerebrais
* These authors contributed equally
Neste artigo
Resumo
Resumo
Muitos transtornos neuropsiquiátricos e neurodegenerativos são caracterizados por interrupções nos neurotransmissores cerebrais, incluindo alterações nos níveis das aminas biogênicas (ABs) dopamina (DA) e serotonina (5-hidroxitriptamina; 5-HT), bem como em sua liberação ou recaptação. Essas alterações neuroquímicas correlacionam-se com fenótipos comportamentais-chave distintos, como déficits locomotores, fragmentação do sono e respostas ao estresse alteradas, entre outros. Como os principais sistemas de ABs interagem, modelos de doenças frequentemente apresentam mudanças coordenadas em múltiplas aminas, em vez de alterações isoladas em um único neurotransmissor. Portanto, a quantificação precisa e simultânea de várias ABs é essencial para interpretar achados comportamentais e genéticos. Drosophila melanogaster oferece um sistema geneticamente manipulável para modelar tais transtornos e alterações nos neurotransmissores, mas as ABs ocorrem no tecido cerebral da mosca em concentrações muito baixas, na faixa de nanomolar a femtomolar, e o pequeno tamanho do sistema nervoso central de Drosophila torna sua detecção tecnicamente desafiadora. Este estudo descreve um protocolo para detectar e quantificar DA, 5-HT e octopamina em cérebros de moscas utilizando cromatografia líquida de alta eficiência acoplada à detecção eletroquímica (CLAE-DQE). A CLAE-DQE foi aplicada para detectar alterações nos níveis cerebrais de DA e 5-HT em um modelo de doença de Parkinson baseado na superexpressão dopaminérgica da alfa-sinucleína humana. A aplicação deste protocolo ao modelo de doença de Parkinson com alfa-sinucleína revela dopamina significativamente elevada, mas serotonina inalterada, em relação aos controles, o que é consistente com mecanismos dopaminérgicos compensatórios precoces. Esta abordagem fornece um método sensível, de baixo custo e facilmente acessível para a quantificação multiplexada de ABs a partir de quantidades limitadas de tecido de Drosophila. Também permite a triagem sistemática de modificadores genéticos e terapêuticas candidatas que atuam em vias monoaminérgicas relevantes para transtornos cerebrais humanos.
Introdução
Neurotransmissores monoaminérgicos, também conhecidos como aminas biogênicas (AB), são conhecidos por regular diversas características neurológicas e comportamentais essenciais em diferentes táxons animais, incluindo, mas não se limitando a, estados motivacionais, sono, aprendizado, memória e regulação do humor1,2,3,4. A desregulação das AB, como a dopamina (DA) e a serotonina (5-hidroxitriptamina; 5-HT), é uma característica crítica de distúrbios neurodegenerativos, como a doença de Parkinson, bem como de transtornos psiquiátricos como a esquizofrenia3,5. No entanto, a relação entre a progressão da doença e as alterações neuroquímicas específicas em diferentes regiões cerebrais e subtipos neuronais ainda não foi completamente mapeada. Responder a essas questões exige um sistema modelo que não apenas seja geneticamente manipulável, mas também capaz de recapitular fenótipos fisiológicos e comportamentais relevantes para a doença. Drosophila melanogaster tem surgido como um sistema modelo poderoso para esse fim6,7. A mosca-das-frutas possui populações discretas e bem caracterizadas de neurônios dopaminérgicos e serotoninérgicos7,8, além de vias biossintéticas, transportadores e famílias de receptores que regulam esses sistemas e que são funcionalmente conservados em relação aos seus equivalentes em mamíferos9. Essa conservação fornece uma base mecanicista para a tradução de descobertas neuroquímicas na mosca para o contexto mais amplo das doenças humanas.
A utilidade das moscas para modelar distúrbios neurológicos e psiquiátricos vai muito além da homologia genética. Como um sistema geneticamente manipulável, as ferramentas disponíveis em moscas permitem a triagem específica de células para genes e vias, revelando fatores que agravam ou revertem sintomas relevantes para a doença, facilitando a descoberta de novos alvos terapêuticos10. Além disso, sistemas de expressão binária podem direcionar-se não apenas a subtipos específicos de neurônios monoaminérgicos, mas também a janelas temporais específicas de desenvolvimento11, proporcionando assim uma notável precisão espacial e temporal. O sistema modelo da mosca-da-fruta também oferece um repertório de comportamentos quantificáveis que podem ser usados para avaliar a recapitulação de sintomas relevantes para a doença, bem como para testar estratégias de intervenção com vistas à sua recuperação7. Por exemplo, modelos genéticos bem estabelecidos da doença de Parkinson em moscas incluem animais portadores de mutações de perda de função em Pink1 e parkin, bem como moscas que superexpressam versões selvagens ou com mutações pontuais da α-sinucleína humana (α-sin), SNCA12,13,14. Todos esses modelos em mosca exibem algumas das características mais importantes da doença, incluindo déficits locomotores, degeneração de neurônios dopaminérgicos, disfunção mitocondrial e agregação de α-sin em moscas que carregam a sequência humana15,16,17,18,19. Por outro lado, considera-se que interrupções no neurodesenvolvimento e sinalização dopaminérgica anômala também estão entre as causas subjacentes de transtornos como a esquizofrenia20. De acordo com isso, Drosophila tem sido usada para modelar sintomas semelhantes aos da esquizofrenia, incluindo hiperatividade, alterações na resposta sensorial e redução do estado de alerta em moscas adultas21,22,23,24,25. Em conjunto, esses modelos demonstram que Drosophila pode representar tanto a progressão de doenças neurodegenerativas quanto as origens desenvolvimentais de transtornos psiquiátricos.
Associar alterações comportamentais em modelos genéticos a mudanças neuroquímicas requer medidas quantitativas precisas e reprodutíveis de ABs. Além disso, em diversas doenças, a desregulação de monoaminas não se restringe a um único sistema de neurotransmissores. Em moscas mutantes Pink1B9, o conteúdo de serotonina é reduzido e a atividade do transportador de serotonina está prejudicada antes do surgimento da disfunção motora26. A recuperação farmacológica precoce do sinal serotoninérgico impede a posterior perda de neurônios dopaminérgicos afetados em moscas mutantes Pink1B9. Assim, as alterações serotoninérgicas podem preceder e contribuir causalmente para a patologia dopaminérgica, uma relação que seria invisível em leituras comportamentais ou em medições de analito único. Da mesma forma, alterações no sistema serotoninérgico são observadas em modelos de esquizofrenia22,27,28. Além disso, as principais aminas biogênicas em Drosophila interagem de maneira parcialmente redundante e parcialmente antagônica, de modo que o estado de um sistema é um pobre indicador dos demais29. Portanto, quantificar individualmente as ABs nesses modelos é fundamental.
As aminas biogênicas são monoaminas eletroquimicamente ativas (por exemplo, catecolaminas, indolaminas) presentes em concentrações de nanomolar a femtomolar em tecidos biológicos, o que torna sua detecção simultânea tecnicamente desafiadora30,31. Abordar questões sobre a base genética e molecular das alterações nas ABs em doenças exige, portanto, um método analítico capaz de separar múltiplas aminas estruturalmente semelhantes. Esse método também deve detectar concentrações biologicamente relevantes em pequenos volumes de tecido disponíveis em preparações do sistema nervoso central de Drosophila. A cromatografia líquida de alta eficiência (CLAE) acoplada à detecção eletroquímica (DEC) atende a essas exigências. A CLAE é uma técnica analítica que permite a separação de diferentes moléculas em uma amostra com base em suas características físico-químicas. O acoplamento do sistema cromatográfico a um detector eletroquímico permite uma análise rápida e de alta sensibilidade de analitos eletroquimicamente ativos, como as aminas biogênicas. Os detectores eletroquímicos funcionam induzindo oxidação quando os analitos emergem da coluna, convertendo as interações na superfície do eletrodo em um sinal elétrico quantificável. Outras técnicas, como espectrometria de massas, podem oferecer seletividade e sensibilidade comparáveis32,33. No entanto, o baixo custo por amostra e a confiabilidade da CLAE-DEC tornam esse método ideal para a detecção rotineira e acessível de aminas biogênicas em laboratórios de pesquisa biológica. A combinação dessa técnica com o poder da genética de Drosophila permite uma análise rápida e direta da base genética e molecular das alterações nos sistemas aminérgicos.
Este estudo utiliza um modelo genético de Parkinson baseado na superexpressão de α-sin para apresentar um protocolo para determinar diferenças no conteúdo de BA em amostras cerebrais de Drosophila. O artigo também descreve como essa abordagem pode ser usada para estudar a base molecular de distúrbios cerebrais.
Protocolo
Os dados brutos apresentados neste trabalho estão disponíveis em https://doi.org/10.6084/m9.figshare.33868519.
Os reagentes e o equipamento utilizados estão listados na Tabela de Materiais.
1. Entrainamento e coleta de moscas
- Submeta as moscas de interesse a ciclos constantes de 12 h de luz e 12 h de escuridão, a uma temperatura constante de 25 °C, por 3 dias antes da coleta. Para garantir um número suficiente de moscas preparadas por genótipo/condição, submeta 3–9 réplicas biológicas de 5 moscas cada.
- No dia da coleta, coloque tubos de 1,5 mL sobre gelo seco. Utilize um tubo por genótipo/condição de mosca. Com o auxílio de um funil, despeje as moscas diretamente nos tubos para congelá-las rapidamente.
NOTA: Coletar diretamente sobre gelo seco permite a coleta em diferentes momentos do dia sem os efeitos potencialmente nocivos da anestesia. Neste ponto, as amostras podem ser armazenadas indefinidamente a -80 °C ou processadas imediatamente. Colete os grupos experimentais e controles ao mesmo tempo para evitar quaisquer efeitos de confusão decorrentes de variações ao longo do dia. Nos resultados representativos atuais, as moscas foram coletadas 3 h após a transição de luz acesa.
2. Dissecção cerebral e preparação das amostras
- Para se preparar para a dissecação do tecido, utilize um recipiente de perfil baixo, como a tampa de uma caixa de ponteiras, e encha-o com gelo. Coloque um recipiente de Petri de 30 mm em cima para servir como plataforma de dissecação. Realizar a dissecação do tecido sobre gelo, especialmente ao usar um estereoscópio com iluminação quente, evita a degradação tecidual.
- Coloque uma gota de 200 µL de solução salina tamponada com fosfato (PBS) 1x gelada no recipiente e, sob um estereoscópio, dissecar cada mosca usando pinças finas e afiadas.
- Para dissecar o cérebro, segure uma mosca pelo abdômen usando um par de pinças e submerja-a na gota de PBS. Sem soltar a mosca, remova a cabeça agarrando a conexão entre a cabeça e o corpo.
- Tanto o corpo quanto a cabeça flutuarão no PBS. Remova o corpo da gota e descarte-o. Usando um par de pinças, segure a cabeça pelo probóscide para empurrá-la de volta para dentro da gota de PBS.
- Usando o outro par de pinças, segure a borda do olho para segurar a cabeça e remova o probóscide.
- Segure o tecido ao redor da abertura criada pela remoção do probóscide e puxe. O cérebro deve ser exposto.
- Limpe o cérebro suavemente para remover qualquer resíduo da cabeça, pois qualquer tecido remanescente pode afetar a quantificação. Além disso, retire uma mosca por vez do tubo sobre gelo seco para evitar a degradação da amostra.
- Usando uma ponteira de pipeta, transfira um pequeno volume contendo o cérebro dissecado diretamente para um tubo com PBS 1x gelado. Repita este passo até que um total de cinco cérebros por replicata biológica seja alcançado. Para evitar que o cérebro adere à ponteira da pipeta, condicione-a previamente com a solução da placa de dissecação, pipetando para cima e para baixo várias vezes.
- Após a conclusão da dissecação, realize uma breve centrifugação de 10 s a 2.000 x g para recolher os cérebros no fundo do tubo.
- Substitua cuidadosamente o PBS 1x por 50 µL de ácido perclórico (PCA) 0,2 N sobre gelo.
CAUTION: O PCA é altamente corrosivo. Prepare as alíquotas sob capela previamente e use Equipamento de Proteção Individual apropriado durante o manuseio. Isso inclui óculos resistentes a produtos químicos, luvas resistentes de neoprene e um avental de borracha.
OBSERVAÇÃO: Alternativamente, os cérebros também podem ser coletados imediatamente em 50 µL de PCA 0,2 N. Nesse caso, use uma agulha para transferir os cérebros, evitando a transferência indesejada de PBS. - Use um homogeneizador ultrassônico para homogeneizar o tecido. Controle a amplitude para evitar a geração de calor. Aqui, utilizamos 10 kHz com ciclos de pulsos curtos de 3 s seguidos por 3 s sobre gelo.
- Centrifugue a amostra por 15 min a 15.000 x g e 4 °C. Colete 40 µL do sobrenadante em um novo tubo mantido sobre gelo. Manter as amostras em PCA evita a oxidação de BA. Evite coletar tecido nesta etapa, pois isso provavelmente entupirá o sistema. Se algum tecido for coletado, filtros de seringa podem ser usados, mas a recuperação da amostra será negativamente afetada.
- Imediatamente antes de analisar as amostras, adicione 8 µL de acetato de sódio 1 M. Isso aproxima o pH da amostra do pH da fase móvel (3,5), preservando a forma do pico enquanto a amostra passa pelo detector. As amostras estão prontas para serem injetadas.
3. Preparação da fase móvel
- Prepare 1 L de fase móvel de citrato-acetato adicionando 870 mL de água ultrapura em um frasco de vidro.
- Adicione 5,61 g de acetato de sódio triidratado e 8,79 g de ácido cítrico anidro ao recipiente de vidro e misture até dissolução completa. Certifique-se de que o pH seja 3,5; caso contrário, ajuste conforme necessário.
- Em uma cabine de exaustão, adicione 130 mL de metanol grau HPLC.
- Adicione 130 mg de octanossulfonato de sódio monoidratado e misture bem.
- Filtre a solução sob vácuo utilizando um filtro de 0,2 µm, agitando-a durante 1 h. A agitação permite que os gases aprisionados escapem da solução, e o vácuo auxilia nesse processo e na filtração.
- Sonique a solução em um banho ultrassônico (42 kHz) por 30 min para remover bolhas de ar.
- Envolva o recipiente com folha de alumínio e rotule adequadamente.
NOTA: A qualidade dos reagentes afeta significativamente os tempos de retenção. O uso de reagentes grau HPLC ajuda a manter a consistência entre corridas. Utilizar os mesmos reagentes ao repreparar a fase móvel também garante consistência nos resultados.
4. Preparação dos padrões
- Para preparar os padrões, pese individualmente 10 mg de OA, DA e 5-HT em papel de pesagem.
- Coloque a quantidade pesada em frascos de vidro separados de 125 mL para preparar soluções estoque individuais. Pese novamente o papel vazio para calcular a quantidade exata de OA, DA ou 5-HT que foi transferida para os frascos.
- Calcule a quantidade de solvente a ser adicionada para atingir uma concentração de 100 ng/µL do analito. Se os 10 mg completos forem adicionados, utilize 100 mL de solvente. Para OA e DA, utilize ácido clorídrico 0,1 M como solvente. Para 5-HT, utilize ácido acético 0,1 M.
- Suplemente os padrões com 2Na-EDTA até uma concentração final de 1 mg/mL. Misture bem até dissolução completa. Envolva o frasco com papel alumínio para proteger da luz e armazene a 4 °C.
NOTA: Os padrões podem ser armazenados por até 3 meses nessas condições.
5. Preparação das soluções de calibração
OBSERVAÇÃO: Para criar uma curva de calibração, prepare três padrões com BAs misturados em diferentes concentrações. Neste exemplo, utilizamos soluções de trabalho com 0,03 ng/µL, 0,01 ng/µL e 0,001 ng/µL. A injeção de 10 µL resultará em quantidades padrão de 0,3 ng, 0,1 ng e 0,01 ng, respectivamente.
- Prepare inicialmente uma mistura estoque de 1 ng/µL adicionando 1 µL de cada estoque de BA a 100 ng/µL em 97 µL de Ácido Acético 0,02 M – 1 mg/mL 2Na-EDTA. Misture bem.
- Retire 2 µL da solução estoque de 1 ng/µL e adicione a 64,6 µL de Ácido Acético 0,02 M – 1 mg/mL 2Na-EDTA. Misture bem. Esta é a solução de trabalho de 0,03 ng/µL.
- Retire 2 µL da solução estoque de 1 ng/µL e adicione a 18 µL de Ácido Acético 0,02 M – 1 mg/mL 2Na-EDTA. Misture bem. Esta é a solução de trabalho de 0,1 ng/µL. Esta solução não é injetada neste protocolo. Em vez disso, é utilizada apenas para diluições seriadas.
- Retire 4 µL da solução de trabalho de 0,1 ng/µL e adicione a 36 µL de Ácido Acético 0,02 M – 1 mg/mL 2Na-EDTA. Misture bem. Esta é a solução de trabalho de 0,01 ng/µL.
- Finalmente, retire 4 µL da solução de trabalho de 0,01 ng/µL e adicione a 36 µL de Ácido Acético 0,02 M – 1 mg/mL 2Na-EDTA. Misture bem. Esta é a solução de trabalho de 0,001 ng/µL.
NOTA: Guarde esses padrões em uma caixa protegida da luz. Todas as soluções padrão de trabalho devem ser preparadas frescas.
6. Configuração e execução da injeção
OBSERVAÇÃO: Todos os sistemas de CLAE operam com base nos mesmos princípios. No entanto, diferenças no hardware podem causar grande variação no tempo de retenção e na duração da corrida. Além disso, a sensibilidade do detector eletroquímico (ECD) resultará em diferentes limites de detecção. Estes precisarão ser definidos empiricamente. Este estudo utilizou um sistema de cromatografia líquida de alta eficiência (CLAE) equipado com uma coluna de fase reversa C18.
- Ligue o equipamento de CLAE, incluindo a bomba e o detector eletroquímico. Ajuste a vazão para 100 µL/min e aguarde o detector eletroquímico atingir uma linha de base estável. Isso deve levar de 10 a 30 minutos.
- Quando as amostras estiverem prontas para serem injetadas, ajuste a vazão para 500 µL/min. Deixe o sistema se estabilizar por 5 minutos. Enquanto isso, enxágue três vezes uma seringa Hamilton de 20 µL com água ultrapura.
- Aspire de 10 a 20 µL da amostra para dentro da seringa. O volume dependerá da capacidade do loop de amostragem. Consulte o manual do loop de amostragem para obter mais informações.
- Verifique se não há bolhas presentes na seringa durante a injeção. Qualquer gás aprisionado interferirá no bombeamento adequado da fase móvel ou nas medições do detector eletroquímico (ECD). Se houver bolhas, devolva a amostra e tente carregar a seringa novamente.
- Insira completamente a agulha na porta de injeção. Coloque a alavanca na posição de carga e injete a amostra empurrando o êmbolo da seringa até que todo o líquido tenha saído da seringa. Abaixe a alavanca do injetor para a posição “injetar”. A corrida foi iniciada e, nessas condições, deverá ser concluída em 30 a 35 minutos.
- Se houver mais amostras para analisar, deixe o sistema funcionar por 10 a 15 minutos a 500 µL/min antes de injetar a próxima.
NOTA: Se houver flutuações constantes no sinal do ECD, verifique alterações na pressão do sistema. Gás aprisionado no sistema pode causar fluxo irregular e um fundo mais alto que o normal. Purgue o sistema com uma solução fresca em alta velocidade, desviando o ECD, para resolver esse problema.
7. Recuperação e análise de dados
OBSERVAÇÃO: Existem vários conversores analógico-digitais e softwares disponíveis para coletar e analisar este tipo de dado. Eles podem diferir na forma como processam os dados; no entanto, compartilham princípios gerais. Este estudo utilizou, respectivamente, software de conversão de dados e software de aquisição e análise de dados cromatográficos.
- As alterações na corrente/tensão derivadas da oxidação das BAs, capturadas pelo ECD, serão convertidas pelo conversor analógico-digital. A concentração de BAs é proporcional à alteração na corrente/tensão.
- Utilize a área sob a curva obtida dos gráficos de corrente versus tempo provenientes das corridas padrão das BAs para estimar uma curva de calibração. Os valores serão representados por uma regressão linear em um gráfico de Corrente/Tensão (nA ou mV) versus Quantidade (ng).
- Usando a equação linear, calcule a concentração de BAs na sua amostra.
Resultados
Compostos biológicos são oxidados em diferentes voltagens. Em uma matriz complexa, como tecidos cerebrais, a escolha do potencial apropriado para detecção eletroquímica (ECD) permitirá uma quantificação mais limpa e precisa. Aqui, escolhemos duas voltagens diferentes para demonstrar o impacto desse fator na identificação e quantificação de OA, DA e 5-HT em amostras cerebrais de Drosophila. Utilizando 950 mV, podemos detectar facilmente essas três aminas em uma mistura (Figura 1A), enquanto apenas dopamina e serotonina são observadas em 650 mV (Figura 1B). Isso está de acordo com as voltagens de oxidação para esses compostos: 900–1000 mV para OA, 600–700 mV para DA e 5-HT. Os tempos de retenção para OA, DA e 5-HT são 6 min, 11 min e 29 min, respectivamente. A quantificação de três quantidades diferentes — 0,01 ng, 0,1 ng e 0,3 ng — produz curvas de calibração comparáveis para 950 mV ou 650 mV (Figura 1C,D, respectivamente). Essas curvas demonstram a linearidade e sensibilidade do ensaio para cada analito ao longo da faixa de concentração testada em cada potencial de detecção.
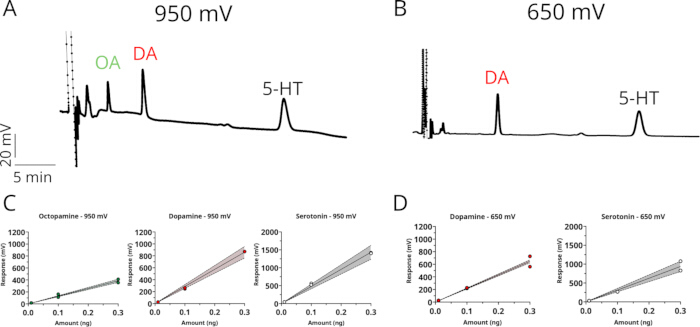
Figura 1: Detecção e quantificação de aminas biogênicas por CLAE-DEC em dois potenciais de oxidação. (A,B) Cromatogramas representativos mostrando a separação dos padrões de octopamina (OA), dopamina (DA) e serotonina (5-HT) detectados em um potencial aplicado de (A) 950 mV ou (B) 650 mV. Eixo vertical: resposta (mV); eixo horizontal: tempo de retenção (5 min por marcação, indicado pela barra de escala). (C,D) Curvas de calibração para cada analito em (C) 950 mV e (D) 650 mV, representando a resposta do pico (mV) em função das quantidades padrão (ng; 0,01–0,3 ng). As linhas sólidas representam os ajustes de regressão linear, as faixas sombreadas indicam os intervalos de confiança de 95% e os círculos preenchidos/abertos representam duas injeções individuais de padrão por concentração. Clique aqui para visualizar uma versão maior desta figura.
Amostras complexas, como aquelas provenientes de extratos cerebrais, geralmente são responsáveis por um fundo biológico significativo. Seguindo o protocolo descrito aqui, propusemo-nos a determinar o efeito da tensão do eletrodo na detecção e quantificação de BA em amostras cerebrais. Moscas adultas machos foram coletadas quando as luzes foram acesas após 2 dias completos de aclimatação, e os cérebros foram dissecados em PBS gelado e então colocados em PCA 0,2 N sobre gelo. Após a dissociação tecidual e centrifugação, o sobrenadante foi equilibrado com acetato de sódio 1 M, e 10 µL foram injetados. Ajustar o potencial do eletrodo para 950 mV produz picos para octopamina, dopamina e serotonina nos respectivos tempos de retenção (Figura 2A, traço preto). Suas identidades foram confirmadas adicionalmente mediante análise de uma amostra enriquecida com quantidades conhecidas (0,01 ng cada) de cada BA (Figura 2A, traço vermelho). No entanto, vários picos adicionais são observados próximos aos analitos de interesse, o que pode complicar a quantificação. Ajustar o potencial do eletrodo para 650 mV resolve esse problema, mas com prejuízo para a detecção de octopamina (Figura 2B). Como na Figura 1, a OA não é resolvida a 650 mV, o que está de acordo com seu potencial de oxidação mais elevado.
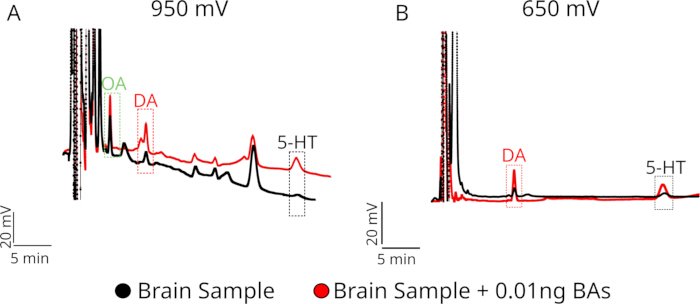
Figura 2: Identificação de aminas biogênicas endógenas em amostras de cérebro por aumento de pico (adição de padrão) em dois potenciais de oxidação. (A,B) Cromatogramas representativos de um extrato de tecido cerebral analisado por CLAE-EDC em um potencial aplicado de (A) 950 mV ou (B) 650 mV, mostrados antes (linha preta, "Amostra de Cérebro") e após (linha vermelha, "Amostra de Cérebro + 0,01 ng ABs") a adição de uma quantidade conhecida (0,01 ng) dos padrões de octopamina (OA), dopamina (DA) e serotonina (5-HT). As caixas tracejadas indicam as janelas de tempo de retenção para cada analito. Eixo vertical: resposta (20 mV, indicado pela escala); eixo horizontal: tempo de retenção (5 min, indicado pela barra de escala). Clique aqui para visualizar uma versão ampliada desta figura.
Seguindo o mesmo protocolo, utilizamos CLAE-ECD para detectar diferenças no teor de aminas biogênicas no cérebro de moscas que expressam α-sinucleína em neurônios dopaminérgicos (TH-T2A-GAL4 > UAS-SNCA.J34), um modelo de Drosophila da doença de Parkinson. Estudos anteriores utilizando um modelo de DP baseado em mutações no gene Pink1 demonstraram alterações nos níveis de dopamina em moscas com apenas 0–3 dias de idade35. Neste estudo, moscas com 3–6 dias de idade foram utilizadas para comparar os níveis de dopamina e serotonina. Os níveis de dopamina estavam significativamente elevados nas moscas com DP, em comparação com as moscas controle (Figura 3A), enquanto os níveis de serotonina permaneceram inalterados (Figura 3B). O aumento nos níveis de dopamina nas fases iniciais pode refletir mecanismos compensatórios antes do início dos sintomas da DP neste modelo (revisado por Blesa J et al.36).
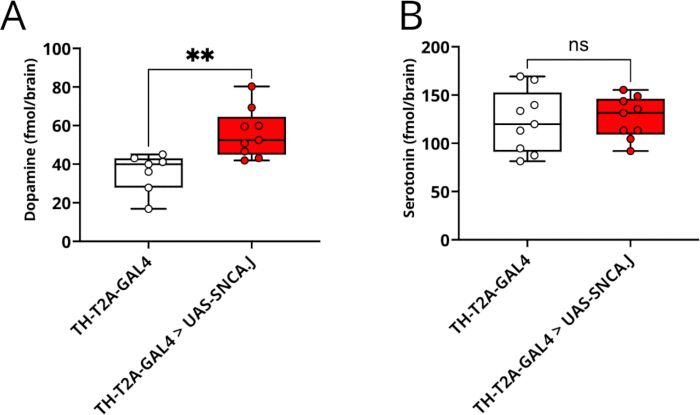
Figura 3: Quantificação dos níveis de dopamina e serotonina em um modelo de Drosophila da doença de Parkinson por CLAE-DEC. Níveis teciduais de dopamina (A) e serotonina (B) no cérebro inteiro, expressos como fmol/cérebro, em moscas controle (TH-T2A-GAL4, n = 7 em A e n = 9 em B) e em moscas modelo da doença de Parkinson (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). Neste modelo, a sequência humana de α-sinucleína otimizada para códons (SNCA.J) é superexpressa seletivamente em neurônios dopaminérgicos sob controle do promotor TH-T2A-GAL4. Os dados são apresentados em gráficos do tipo box-and-whisker (mediana, intervalo interquartil e mínimo–máximo), sobrepostos aos pontos de dados individuais, cada um representando uma réplica biológica (n) composta por 5 cérebros agrupados. A significância estatística foi determinada pelo teste t não pareado (**p < 0,01, ns, não significativo). Clique aqui para visualizar uma versão maior desta figura.
Discussão
A cromatografia líquida de alta eficiência (CLAE) é uma técnica de separação altamente personalizável. Assim sendo, muitas etapas deste protocolo podem ser modificadas. Resultados confiáveis dependem de atenção cuidadosa e consistência nessas modificações. A polaridade relativa das fases estacionária e móvel define o modo de separação: a fase normal combina uma fase estacionária polar com uma fase móvel apolar, enquanto a fase reversa combina uma fase estacionária apolar com uma fase móvel polar. A análise de aminas biogênicas em tecidos biológicos geralmente utiliza condições de fase reversa. Este estudo utilizou uma fase móvel de citrato-acetato com metanol como solvente principal; no entanto, medições semelhantes foram realizadas com sucesso utilizando tampão fosfato com acetonitrila como solvente22,26,35. Assim, a composição do tampão pode ser alterada conforme a resolução e o formato desejados para os picos. Alterar a composição da fase móvel provavelmente mudará os tempos de eluição37. Isso pode causar sobreposição de picos, dificultando ou impossibilitando a quantificação. Para resolver esse problema, mudanças no pH são a solução mais eficaz, pois a interação do analito com a coluna depende fortemente de seu pKa38.
As aminas podem sofrer degradação oxidativa, a coleta e o tratamento dos tecidos são pontos importantes no protocolo. Coletar as amostras em gelo seco e mantê-las a -80 °C até o processamento é uma etapa essencial. Após a dissecação, as amostras devem ser rapidamente homogeneizadas em condições ácidas, o que impede a decomposição das ABs30,39,40. Nesse contexto, outros ácidos podem ser úteis se o acesso ao PCA for limitado. Uma combinação de ácido fórmico, um oxidante não explosivo alternativo ao PCA, e metanol também pode ser usada para extração; entretanto, não testamos isso em amostras de cérebro de Drosophila41.
A escolha do detector determina o que pode ser medido e com qual sensibilidade; opções comuns incluem detectores de UV/visível, fluorescência e espectrometria de massas, cada um adequado a diferentes propriedades dos analitos e requisitos de sensibilidade. A detecção eletroquímica é particularmente adequada para catecolaminas e indolaminas, como DA e 5-HT, que são oxidadas diretamente no eletrodo de trabalho, gerando uma corrente proporcional à sua concentração. A DEE tem sido citada como uma técnica mais simples e precisa em comparação com métodos alternativos de detecção, como a detecção por fluorescência e a detecção por ultravioleta, ambos os quais frequentemente exigem mais etapas antes da análise das amostras, tornando-os mais complexos ou demorados42,43. A CLAE-DEE oferece sensibilidade excepcional, pois pode detectar analitos em amostras biológicas em concentrações da ordem de femtomolar44. Considerando que um único cérebro de Drosophila fornece apenas uma quantidade muito pequena de tecido, esse nível de sensibilidade é essencial. Criticamente, a CLAE-DEE também permite a quantificação simultânea de múltiplas aminas biogênicas a partir de uma única amostra, o que significa que o perfil completo de monoaminas de uma preparação do sistema nervoso central de Drosophila pode ser obtido em uma única corrida analítica.
O método possui limitações inerentes que definem seu escopo. Embora este método seja altamente sensível, a quantificação de BA em amostras de Drosophila exige o agrupamento de cérebros. Assim, nenhuma detecção individual de cérebro único foi relatada, como ocorre com outras abordagens45. Outra desvantagem é o envelhecimento do eletrodo. O envelhecimento do eletrodo pode ocorrer ao longo do tempo, à medida que subprodutos oxidativos formam uma camada isolante fina sobre a superfície, afetando a sensibilidade e causando deriva do sinal46. Isso é particularmente evidente em nossos resultados ao se utilizar uma voltagem de oxidação mais alta (Figura 2). Para compensar essas alterações, a repetição de injeções-padrão após algumas análises pode ser útil. As injeções-padrão também precisariam ser repetidas cada vez que uma alteração for feita na fase móvel ou no potencial de detecção, a fim de considerar quaisquer deslocamentos nos picos observados. A limpeza periódica do eletrodo pode ajudar a resolver esse problema. Outra desvantagem é que a CLAE-ED fornece uma medida volumétrica e estática do conteúdo de aminas integrada ao longo do tecido submetido à análise. Ela não fornece informações sobre onde no cérebro essas aminas estão localizadas, nem sobre as contribuições relativas de populações neuronais específicas. Compostos não eletroativos, como GABA e glutamato, não são detectáveis sob condições padrão de ED e requerem ensaios separados. Talvez o mais importante seja que a CLAE-ED é um método direcionado. Ela não pode ser usada para identificar moléculas desconhecidas que possam estar correlacionadas com um fenótipo comportamental, pois depende inteiramente da comparação de tempos de retenção com padrões conhecidos e bem caracterizados. Para a descoberta não direcionada de correlatos neuroquímicos do comportamento, técnicas como LC-EM/EM seriam mais adequadas, embora com custo mais elevado.
Dentro desses limites, a CLAE-ECD aborda um conjunto bem definido e biologicamente relevante de questões em Drosophila modelos de distúrbios. Pode determinar se um genótipo ou tratamento altera os níveis de aminas em estado estacionário e se tais alterações são seletivas para um determinado sistema de neurotransmissores ou afetam o perfil mais amplo de monoaminas. Pode acompanhar mudanças neuroquímicas ao longo dos estágios de desenvolvimento ou da progressão da doença, fornecendo evidências de estados bioquímicos pré-sintomáticos que precedem fenótipos comportamentais detectáveis47É igualmente adequado para avaliar se uma intervenção farmacológica ou genética normaliza, supercompensa ou falha em reverter os déficits de aminas em um determinado modelo.26. Abordar questões como em que estágio cada amina muda, se fixar um sistema perturba outro e se uma perturbação no desenvolvimento deixa um traço neuroquímico duradouro é exatamente para o que um método multi-aminas em massa e sensível foi concebido. Utilizado em conjunto com ensaios comportamentais e ferramentas genéticas disponíveis em DrosophilaA HPLC-ECD fornece uma camada bioquímica quantitativa que amplia substancialmente o alcance interpretativo desses modelos de transtornos.
Divulgações
Os autores declaram não haver conflitos de interesses.
Agradecimentos
Este trabalho foi apoiado pela concessão R00NS133470 dos National Institutes of Health (S.H.). O conteúdo é de responsabilidade exclusiva dos autores e não representa necessariamente as opiniões oficiais dos National Institutes of Health. R.V.Z. recebe apoio da Subvenção à Instalação na Academia (SIA) n°85250142 e J.M.C. recebe apoio do FONDECYT 1231556, Agência Nacional de Investigação e Desenvolvimento, Chile.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| (±) Octopamina Cloridrato | Sigma Aldrich | 770-05-8 | |
| Unidade de Filtragem de 500 mL | Thermo Scientific | FB12566504 | Membrana aPES de 0,2 µm, diâmetro de 75 mm |
| Ácido Acético Glacial | Fisher Scientific | 64-19-7 | |
| Ácido Cítrico Anidro | USB | 77-92-9 | |
| Software Clarity Chromatography | Data Apex | Versão 10.1 | |
| Conversor de Dados Colibrick | Data Apex | Conversor A/D | |
| Dopamina Cloridrato | Sigma Aldrich | 62-31-7 | |
| Pinça Dumont nº 5 (Dumoxel Biology) | Fine Science Tools | 11252-30 | Pinça de dissecação |
| EDTA, Sal de Sódio, Dihidratado, Cristal (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| Coluna de Separação EICOMPAK-5ODS | Eicom | 680.060.00 | Coluna de fase reversa |
| Água Ultrapura (Tipo 1) EMD Milipore Synergy UV-R | Milipore | ||
| Seringa Hamilton de 25 µL (22s/2"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | Equipamento de CLAE | |
| Ácido Clorídrico | Sigma Aldrich | 7647-01-0 | |
| Papel de Limpeza Leve | VWR | 82003-820 | |
| Metanol Grau CLAE | Fisher Scientific | 67-56-1 | Filtrado em 0,2 mícron |
| Ácido Perclórico, 70% em água | Fisher Scientific | AC424032500 | Uso para PCA 0,2 N |
| Serotonina Cloridrato 98% | Fisher Scientific | 153-98-0 | |
| Octanossulfonato de Sódio Hidratado, Grau CLAE, 99+% | Thermo Scientific | 5324-84-5 | |
| Acetato de Sódio, Triidratado, Cristal | J.T Baker | 6131-90-4 | |
| Limpeza Ultrassônica Bransonic 1510 | Branson | Nº do Modelo: 1510R-MT | Sonicador |
| Processador Ultrassônico Sonicador | Fisherbrand | Modelo FB50 | Com sonda CL18 |
Referências
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve