Este protocolo fornece um guia para a imagem confocal em tempo real da dinâmica dos microtúbulos utilizando marcadores fluorescentes de microtúbulos em neurônios sensoriais de larvas de Drosophila.
Artigo de método
Imagem da Dinâmica de Microtúbulos In Vivo em Dendritos Sensoriais de Drosophila
* These authors contributed equally
Neste artigo
Resumo
Resumo
Os neurônios sensoriais larvais da classe IV de Drosophila estão localizados logo abaixo da cutícula e são caracterizados por arborizações dendríticas altamente ramificadas que se expandem isotropicamente em duas dimensões conforme as larvas se desenvolvem. O crescimento dessas arborizações é impulsionado por processos estocásticos que envolvem crescimento, retração e pausas nas extremidades terminais dos dendritos. Para testar a hipótese de que a dinâmica das pontas é impulsionada pela dinâmica dos microtúbulos, foram desenvolvidos protocolos para a obtenção de imagens de microtúbulos fluorescentemente marcados dentro dos dendritos. O método permite a visualização da dinâmica dos microtúbulos em dendritos terminais finos dos neurônios sensoriais da classe IV utilizando microscopia confocal. Ele foi projetado para preservar a morfologia da arborização dendrítica durante a aquisição de imagens, ao mesmo tempo que permite a visualização dos microtúbulos juntamente com um marcador de membrana. Este manuscrito descreve os procedimentos utilizados para preparar larvas de Drosophila para imagens vivas e para visualizar microtúbulos marcados com fluorescência nos dendritos. Portanto, o protocolo fornece uma abordagem para examinar o comportamento dos microtúbulos em dendritos terminais finos, mantendo-se compatível com a marcação simultânea da membrana.
Introdução
Neurônios são células altamente polarizadas cujo citoesqueleto define sua arquitetura. Os microtúbulos, um componente do citoesqueleto neuronal, fornecem suporte estrutural e atuam como trilhos para o transporte de carga de longa distância1,2. O citoesqueleto de microtúbulos é essencial para o desenvolvimento dos dendritos3. Os dendritos crescem de forma estocástica por meio de um processo de ramificação, alongamento e contração4. Os neurônios sensoriais de arborização dendrítica (da) na larva de Drosophila constituem um poderoso sistema modelo in vivo para o estudo da morfogênese dendrítica. Esses neurônios sensoriais são agrupados em quatro classes (I–IV), com base no aumento da complexidade dendrítica3,5. Os neurônios da classe IV possuem dendritos complexos e altamente ramificados e funcionam como nociceptores multissensoriais6,7,8. Os dendritos desses neurônios formam campos receptivos padronizados ao longo dos segmentos abdominais e situam-se logo abaixo da cutícula transparente9,10. Essa anatomia, juntamente com a facilidade genética de manipulação da Drosophila, torna os neurônios da classe IV adequados para a visualização do desenvolvimento dendrítico in vivo com alta resolução espacial e temporal. À medida que os dendritos crescem durante o desenvolvimento, suas pontas transitam estocasticamente entre estados de crescimento, retração e pausa11. O crescimento e a retração das pontas compartilham muitas semelhanças cinéticas com o crescimento e a retração dos microtúbulos12. Portanto, visualizar a dinâmica dos microtúbulos nessas células é de grande interesse.
Uma abordagem comum para visualizar a dinâmica de microtúbulos em células vivas, incluindo aquelas em larvas de Drosophila, é a obtenção de imagens de proteínas ligantes de extremidades marcadas com fluorescência, como EB1 e EB313,14,15,16,17,18. No entanto, a interpretação dos sinais de EB-GFP pode ser ambígua. Por exemplo, um ponto de EB-GFP em movimento distal, afastando-se do corpo celular, pode representar a extremidade positiva de um microtúbulo em crescimento para fora ou a extremidade positiva em crescimento de um microtúbulo que está deslizando na direção distal. Embora o EB-GFP predominantemente marque as extremidades positivas de microtúbulos em crescimento, ele também pode marcar extremidades negativas em crescimento19, o que gera ambiguidade adicional. A visualização direta dos microtúbulos pode reduzir essas ambiguidades.
Uma abordagem alternativa ao EB-GFP é a marcação direta de microtúbulos utilizando GFP-tubulina20,21. No entanto, a tubulina fluorescente marca robustamente os dendritos proximais22, mas não consegue marcar os dendritos distais23. Outra dificuldade com a tubulina fluorescente é que a alta concentração de tubulina solúvel torna difícil distinguir microtúbulos individuais em processos estreitos, como os dendritos terminais. Portanto, a obtenção de imagens da dinâmica dos microtúbulos em neurônios intactos sob condições fisiológicas normais permanece desafiadora.
A proteína associada a microtúbulos (MAP) Drosophila Jupiter, um homólogo estrutural das proteínas mamíferas Tau, MAP2 e MAP4, tem sido utilizada para rotular microtúbulos em tecidos de Drosophila, incluindo o ovário e embriões24. Em dendritos da classe IV, mCherry-Jupiter e sfGFP-Jupiter têm sido usados para quantificar microtúbulos em ramos proximais22,25,26. Este protocolo descreve um método de imagem em tempo real que permite a observação com alta resolução, por meio de intervalos de tempo, do comportamento de microtúbulos neuronais em dendritos distais de neurônios da classe IV de Drosophila, utilizando linhagens de moscas que expressam o domínio ligante de tubulina marcado fluorescentemente de Jupiter.
Protocolo
Este estudo utilizou Drosophila melanogaster, um modelo invertebrado para o qual não era necessária a aprovação institucional de ética em animais. As ferramentas utilizadas no protocolo estão listadas na Tabela de Materiais.
1. Geração de linhagens experimentais de moscas
- Monte um cruzamento para obter a linhagem parental desejada. Utilize o sistema binário GAL4/UAS para induzir a expressão de mNeonGreen (mNG)-Jupiter em neurônios de arborização dendrítica (da) da classe IV que expressam GAL4 sob o promotor ppk.
- Cruze fêmeas virgens de uma linhagem homozigótica UAS-mNG-Jupiter com machos de uma linhagem homozigótica ppk-GAL4; CD4tdTomato. Obtenha prole F1 portadora de ambos ppk-GAL4; CD4tdTomato e UAS-mNG-Jupiter.
NOTA: A prole F1 portadora de ambos ppk-GAL4; CD4tdTomato e UAS-mNG-Jupiter expressa fortemente mNG e CD4tdTomato nos neurônios da classe IV da. Realize a aquisição de imagens usando larvas derivadas de pelo menos três cruzamentos genéticos independentes, com um mínimo de seis larvas analisadas por cruzamento. - Mantenha o cruzamento em um frasco de manutenção para acasalamento, com uma pequena quantidade de pasta de levedura aplicada na parede. Incube a 25 °C por 2–3 dias.
NOTA: A alimentação com levedura estimula a postura e a oviposição. - Prepare a pasta de levedura colocando uma colherada de levedura em um béquer pequeno e adicionando algumas gotas de água. Misture bem com uma espátula até que a pasta atinja uma consistência semissólida, adicionando água gota a gota conforme necessário.
- Transfira as moscas para um novo frasco de manutenção contendo pasta de levedura fresca todos os dias.
NOTA: Certifique-se de que a pasta de levedura não esteja nem muito mole nem muito aquosa. Se ficar muito mole, as moscas podem ficar presas. Para maiores detalhes metodológicos, consulte Hales et al.27 e Roote e Prokop28.
2. Postura em placas de ágar-uva, coleta de ovos e estadiamento larval
- Prepare aproximadamente 0,5 L de meio ágar-uva combinando 376 mL de água destilada, 126 mL de suco de uva, 15 g de ágar e 6 g de sacarose em um béquer de 1 L resistente ao micro-ondas.
- Coloque no micro-ondas por 3–5 min, agitando a cada 1 min até que o ágar esteja completamente dissolvido. Deixe a mistura esfriar ligeiramente e, em seguida, adicione 10 mL de etanol e 5 mL de ácido acético.
- Misture bem e despeje o meio em placas de Petri de 60 mm para preparar as placas de ágar-uva. Prepare as placas com antecedência, armazene-as a 4 °C empilhadas de cabeça para baixo e envolvidas em capas para placas de Petri, e utilize-as dentro de 2 semanas. Pré-aqueça as placas à temperatura ambiente antes do uso.
- Transfira aproximadamente 150 moscas, compostas por 50 machos e 100 fêmeas, do frasco de manutenção para uma gaiola de postura de ovos.
- Cubra a gaiola de postura com uma placa de ágar-uva de 60 mm contendo uma pequena quantidade de pasta de levedura.
- Permita que as moscas depositem ovos a 25 °C por 2 h na placa de ágar-uva contendo a pasta de levedura. Substitua a placa por uma placa de ágar-uva nova contendo pasta de levedura e permita a postura por mais 2 h.
- Forneça uma terceira placa de ágar-uva de 60 mm contendo pasta de levedura e permita que as moscas depositem ovos por 2 h.
- Utilize a terceira placa como placa experimental e descarte as duas primeiras placas para minimizar a heterogeneidade na idade dos embriões.
NOTA: A coleta inicial de ovos frequentemente contém embriões em diferentes estágios de desenvolvimento porque fêmeas de Drosophila podem reter ovos fertilizados no trato reprodutivo por várias horas antes de depositá-los. Descartar as placas iniciais ajuda a obter ovos mais sincronizados. - Para imagens em estágios após a postura dos ovos (AEL), permita que os embriões nas placas experimentais envelheçam a 25 °C até atingirem o estágio desejado: Estágio 1, 24 h; Estágio 2, 48 h; Estágio 3, 72 h; e Estágio 4, 96–120 h.
3. Limpeza das larvas
- Lave as larvas com 5 mL de solução de sacarose a 5%, seguido por 5 mL de H₂O dH, para remover resíduos de levedura da superfície e prevenir dessecação.
- Transfira as larvas, normalmente três ou quatro, para a tampa de uma placa de cultura celular de 35 mm usando um pincel nº 3/0. Seque as larvas com um lenço de laboratório para remover o excesso de água.
4. Anestesia
- Limpe e seque as larvas antes da anestesia.
- Prepare previamente o equipamento para anestesia (Figura 1). Coloque o recipiente de cultura celular dentro do compartimento de caixa de papelão para reduzir o movimento de ar sobre o recipiente e minimizar a interrupção da anestesia com isoflurano.
ATENÇÃO: O isoflurano é um anestésico volátil. Manipule e utilize o isoflurano com ventilação laboratorial adequada e de acordo com os procedimentos institucionais de segurança química. Imobilize as larvas adicionando o volume medido de isoflurano à haste anestésica fixada com fita adesiva dentro de um recipiente de cultura celular de 35 mm, que serve como reservatório de evaporação. - Coloque a tampa do recipiente de cultura celular contendo as larvas limpas e secas sobre o recipiente de cultura celular.
- Anestesie as larvas por 2–3 min.
OBSERVAÇÃO: O volume de isoflurano e a duração da anestesia dependem do estágio larval e do número de larvas. Determine a quantidade empiricamente. Por exemplo, utilize 10–20 µL de isoflurano por 2 min para anestesiar três larvas de 72 h por aproximadamente 30 min. Utilize 5 µL de isoflurano por larva por min como dose inicial para imobilização, independentemente do estágio larval.
5. Montagem
- Faça um recinto retangular ou circular com vaselina em uma lâmina de microscópio de vidro limpa, deixando uma pequena abertura em um dos cantos (Figura 1C). Use um aplicador de hena para desenhar o recinto sobre a lâmina.
- Transfira as larvas anestesiadas para o recinto usando um pincel. Monte as larvas com o lado dorsal voltado para cima em uma gota de Óleo de Halocarbono 700.
- Coloque uma lamínula No. 1.5 sobre a larva. Aplique pressão suave até que a vaselina selar o espaço entre a lamínula e a lâmina e a larva fique levemente achatada contra a lâmina do microscópio.
- Imagem a amostra imediatamente por até 30–45 min a partir da etapa de transferência descrita na etapa 5.2. Interrompa a aquisição de imagens se houver formação de bolhas ou danos neuronais, incluindo ruptura dendrítica, no canal da membrana; nesse caso, utilize uma dose menor de anestésico.
NOTA: Certifique-se de que não haja bolhas no Óleo de Halocarbono após a colocação da lamínula. A ausência de bolhas é essencial para obter vídeos dinâmicos de alta qualidade e minimizar a deriva. Para minimizar a formação de bolhas de ar, deixe uma pequena abertura em um dos cantos do recinto de vaselina, permitindo que o ar escape durante a colocação da lamínula. Feche a abertura com um pincel fino, se necessário.
6. Microscopia e aquisição de imagens
- Realize a imagem viva das amostras de larvas utilizando um microscópio confocal de disco giratório equipado com um pinhole de 50 µm e um sistema de foco perfeito.
- Defina as linhas a laser de 488 nm e 561 nm em 30% da potência máxima, considerando lasers de 100 mW, para visualizar o marcador de microtúbulos, como mNG-Jupiter, e o marcador de membrana, CD4tdTomato.
- Defina o tempo de exposição para 200 ms. Capture as imagens utilizando uma câmera sCMOS com sensores de 6,5 µm e o software associado de aquisição de imagens.
- Adquira todas as imagens utilizando uma objetiva de imersão em água de 40× com uma abertura numérica de 1,25 e um tamanho de pixel de 0,1614 µm.
- Foque manualmente a amostra para localizar os segundos, terceiros e quartos hemissegmentos abdominais da superfície dorsal, onde os neurônios da classe IV são facilmente acessíveis através da cutícula transparente.
- Para cada registro, adquira um conjunto de z-stacks abrangendo até 10 µm de profundidade com passos de 1 µm. Adquira as pilhas em intervalos de 10 s durante 10 ou 15 min.
NOTA: A menos que especificado em contrário, utilize larvas com 72 h APF para a imagem.
7. Processamento e análise de imagens
- Importe os filmes com lapso de tempo adquiridos no formato .ND2 para o FIJI (Fiji Is Just ImageJ) utilizando o importador Bio-Formats. Converta os filmes para o formato TIFF para análises posteriores.
- Estabilize os filmes para corrigir a deriva da amostra usando o plugin de estabilização de imagem com configurações de transformação afim no FIJI.
- Exclua filmes da análise se o movimento for excessivo. Considere movimento maior que 1 µm/min como excessivo e exclua esses filmes da análise. Também exclua filmes se houver borbulhamento observado no canal do marcador de membrana (CD4tdTomato).
- Reduza as pilhas z em séries temporais bidimensionais gerando projeções de intensidade máxima ao longo do eixo z no FIJI.
- Desenhe regiões de interesse lineares (ROIs) no FIJI ao longo da estrutura de interesse para quantificar as propriedades dinâmicas das pontas e microtúbulos. Use o plugin Multi Kymograph no FIJI para gerar quimógrafos. Gere o quimógrafo usando uma varredura de linha com largura de 3 pixels ao longo da ROI e processe-o usando o plugin Multi Kymograph no FIJI.
- Extraia perfis de intensidade usando a ferramenta Plot Profile com largura de linha de 3 pixels. Gere um arquivo CSV multicolumna em que colunas alternadas codifiquem posição e intensidade ao longo de cada varredura de linha.
- Estime a intensidade de fundo a partir de uma ROI correspondente em uma região vazia do campo. Subtraia a intensidade de fundo de cada quadro.
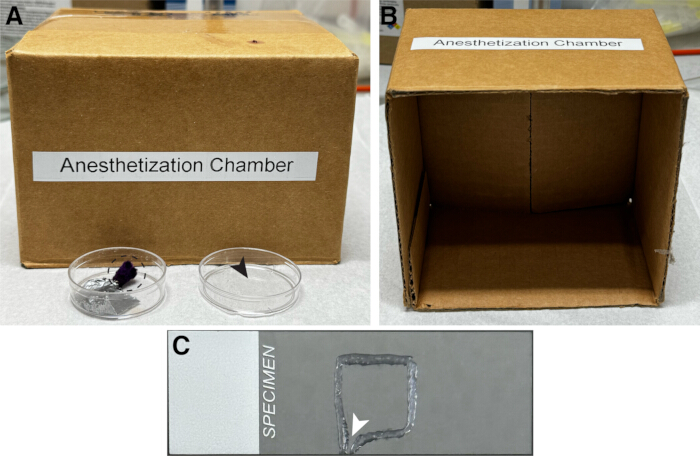
Figura 1: Componentes do equipamento de anestesia. (A) Uma pequena caixa de papelão cobrindo um prato de cultura celular de 35 mm contendo um bastão de anestésico por evaporação fixado com fita adesiva (círculo tracejado preto). A tampa do prato de cultura celular foi utilizada para manter larvas limpas e secas antes e durante a anestesia (seta preta). (B) Vista interna da caixa. (C) Uma lâmina de microscópio com uma barreira quadrada de vaselina preparada usando um aplicador de hena para conter a amostra de larvas durante a aquisição de imagens. Uma pequena abertura (seta branca) facilita a remoção de ar durante a colocação da lamínula. Clique aqui para visualizar uma versão maior desta figura.
Resultados
Seguindo o protocolo descrito acima, os microtúbulos foram visualizados com sucesso em neurônios da arborização dendrítica (da) da classe IV utilizando mNG-Jupiter em combinação com o marcador de membrana CD4tdTomato (Figura 2A–C). O marcador de membrana delimitou a morfologia geral da arborização dendrítica, enquanto mNG-Jupiter marcou as regiões contendo microtúbulos dentro dos dendritos. Nas extremidades distais dos dendritos terminais, a fluorescência de mNG-Jupiter era fraca ou ausente próximo às pontas dendríticas, enquanto a fluorescência de CD4tdTomato permanecia intensa nos terminais correspondentes (Figura 2D–F).
Os arbóritos dendríticos não apresentaram diferenças morfológicas evidentes em comparação com larvas imagiadas com o marcador de membrana isolado em estudos anteriores11. Para avaliar quantitativamente se a expressão de mNG-Jupiter causou anormalidades morfológicas, contou-se o número de terminações dendríticas em arbóritos que expressavam mNG-Jupiter e em arbóritos controle aos 72 h AEL. Em oito células de oito larvas com expressão de mNG-Jupiter, o número de terminações em um quarto do arborito foi de 153 ± 25 (média ± DP), comparado a 144 ± 27 (média ± DP) em larvas controle (Figura 2G). Nenhuma diferença significativa foi detectada utilizando o teste t de Welch (ver legenda da Figura 2). Portanto, a expressão de mNG-Jupiter não alterou detectavelmente o número de ramificações dendríticas.
A imagem em lapso de tempo demonstrou o comportamento dinâmico do sinal mNG-Jupiter dentro das dendrites terminais. Na sequência representativa mostrada na Figura 3A, a posição da extremidade do microtúbulo marcada com mNG-Jupiter brilhante mudou ao longo do tempo. Varreduras lineares sucessivas do sinal mNG-Jupiter foram organizadas ao longo do tempo para visualizar as alterações na posição e no comprimento do microtúbulo. O quimógrafo resultante na Figura 3B mostra fases alternadas de extensão e retração do sinal fluorescente, compatíveis com o crescimento e encolhimento observados do microtúbulo marcado nas dendrites terminais (Vídeos 1 e 2). Em dendrites mais espessas, próximas ao corpo celular, o maior número de microtúbulos impediu a visualização da dinâmica de microtúbulos individuais.
Juntas, as imagens representativas e as gravações em lapso de tempo mostram que o protocolo permite a visualização da morfologia dendrítica e das mudanças dinâmicas na fluorescência associada aos microtúbulos em neurônios sensoriais de larvas de Drosophila intactos. O marcador de membrana fornece uma referência para a estrutura dendrítica, enquanto o mNG-Jupiter permite acompanhar ao longo do tempo o comportamento dos microtúbulos dentro do dendrito (Figuras 2 e 3).
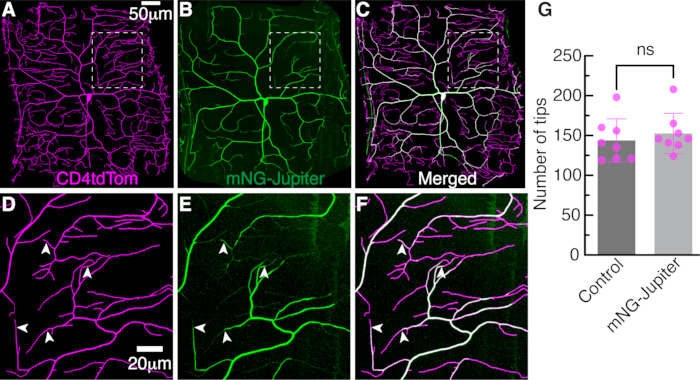
Figura 2: Dendritos em neurônios da classe IV. A arborização dendrítica de um neurônio da classe IV de arborização dendrítica (da) obtida por microscopia confocal de disco giratório às 72 h após a postura do ovo (AEL). Microtúbulos são visualizados utilizando o sistema binário de expressão GAL4/UAS. O promotor específico para células da classe IV ppk-GAL4 (pickpocket) facilita a expressão de Jupiter marcado com mNG (UAS-mNG-Jupiter). As membranas dendríticas são marcadas diretamente ppk expressão mediada por promotor de tdTomato fundido ao marcador de membrana CD4 (ppk-CD4tdTomato (A) Marcador de membrana, CD4tdTomato. (B) Marcador de microtúbulos, mNG-Jupiter. (C) Imagem mesclada. (D–F) Ampliações das regiões delimitadas pelas caixas tracejadas brancas em A–C, respectivamente, ilustram a distribuição dos marcadores de microtúbulos e de membrana. As setas brancas indicam a distribuição de mNG-Jupiter em dendritos terminais. (G) Quantificação do número de pontas dendríticas em neurônios controle e em neurônios que expressam mNG-Jupiter em 72 h AEL. Cada ponto representa o número de pontas contadas em um quarto de um único neurônio de uma larva distinta. Um total de oito neurônios provenientes de oito larvas independentes foi analisado por grupo. As barras de erro representam a média ± SD. Os grupos foram comparados utilizando um teste t de Welch não pareado bicaudal t-teste; ns, não significativoP > 0.05). Clique aqui para visualizar uma versão maior desta figura.
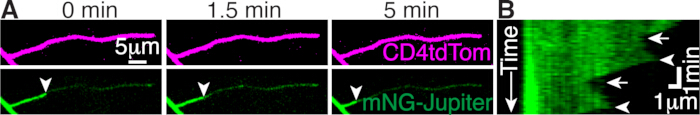
Figura 3: Dinâmica dos microtúbulos em uma dendrite terminal. (A) Três imagens de uma dendrite terminal expressando CD4tdTomato (superior) e mNG-Jupiter (inferior) nos pontos de tempo indicados. As setas indicam a extremidade do microtúbulo. Um sinal fraco de mNG é visível além do sinal brilhante do microtúbulo. (B) Quimógrafo mostrando crescimento e encolhimento dos microtúbulos. As setas indicam fases de crescimento e as setas cheias indicam fases de encolhimento. Escaneamentos sucessivos de linha com largura de 3 pixels do sinal mNG são organizados um abaixo do outro, com o tempo aumentando na direção descendente. Clique aqui para visualizar uma versão maior desta figura.
Vídeo 1: Imagem de lapso de tempo de mNG-Jupiter em neurônios de arborização dendrítica da classe IV. Sequência de lapso de tempo mostrando a fluorescência de mNG-Jupiter nos dendritos larvais da classe IV de Drosophila. A sequência ilustra as alterações na fluorescência associada aos microtúbulos ao longo do tempo dentro da arborização dendrítica. As imagens foram adquiridas utilizando as condições de imagem em tempo real descritas no Protocolo. Barra de escala, 20 µm. Clique aqui para baixar este arquivo.
Vídeo 2: Imagem em lapso de tempo do marcador de membrana CD4tdTomato em neurônios de arborização dendrítica da classe IV. Sequência em lapso de tempo mostrando a fluorescência de CD4tdTomato no arborizado dendrítico da classe IV de larva de Drosophila correspondente. O marcador de membrana fornece uma referência para a morfologia dendrítica durante o período de aquisição de imagens. As imagens foram obtidas utilizando as condições de imagem em tempo real descritas no Protocolo. Barra de escala, 20 µm. Clique aqui para baixar este arquivo.
Discussão
Este protocolo demonstra o uso de linhagens transgênicas de moscas Jupiter para a imagem em tempo real da dinâmica de microtúbulos em neurônios sensoriais de Drosophila utilizando microscopia confocal. O método permite a visualização da fluorescência associada a microtúbulos em larvas intactas, mantendo a morfologia dendrítica, conforme avaliado com o uso de um marcador de membrana11,29. Uma abordagem semelhante também foi utilizada para imagens da dinâmica de actina usando GFP-actina e LifeAct-GFP em neurônios da classe IV22,30,31,32. Em princípio, a mesma abordagem geral também pode ser aplicada à imagem de outras proteínas ligadoras de microtúbulos em células da classe IV e em outras classes de neurônios de arborização dendrítica (classes I, II e III). Em particular, combinar a marcação fluorescente de microtúbulos com a marcação de EB pode reduzir ambiguidades na interpretação do crescimento de microtúbulos. Por exemplo, a ausência de um cometa EB pode indicar tanto a ausência de microtúbulos quanto a presença de microtúbulos que não estão em crescimento ativo; a visualização direta de microtúbulos pode ajudar a distinguir essas possibilidades. Assim, a marcação simultânea de mNG-Jupiter com EB1 fluorescente pode permitir a interpretação da dinâmica de crescimento de microtúbulos no contexto local da organização, abundância e orientação inferida dos microtúbulos.
Várias etapas são fundamentais para obter dados adequados de imagem em tempo real. O protocolo utiliza o anestésico volátil isoflurano para um regime definido e breve de imobilização. A dose de isoflurano deve ser cuidadosamente controlada durante a imobilização, pois uma anestesia insuficiente permite o movimento da larva, enquanto uma anestesia excessiva pode levar à degradação neuronal. Bolhas de ar também devem ser evitadas durante a montagem, pois podem interferir na qualidade da imagem e contribuir para a deriva da amostra. Além disso, deve-se evitar pressão excessiva do lamínula, pois pode causar bolhas dendríticas e danos neuronais subsequentes. Essas etapas são importantes para manter a estabilidade da amostra e a morfologia dendrítica durante todo o processo de aquisição de imagens.
Uma limitação importante deste protocolo é que o método de imobilização e visualização, que envolve a combinação de exposição a anestésicos e restrição física pelo lamínula, pode influenciar a dinâmica dos microtúbulos. Para determinar se os microtúbulos são perturbados sob essas condições, podem-se usar métodos alternativos de imobilização separadamente ou em combinação com este protocolo. Tais abordagens incluem a obtenção de imagens de embriões e o uso de mutantes sensíveis à temperatura, como Shibirets 33, seguidos pela comparação de parâmetros cinéticos, tais como taxas de crescimento e frequência de catástrofe.
Com esta limitação, o protocolo atual permite que larvas sejam observadas por aproximadamente 30 minutos após o montagem, sem bolhas dendríticas, deterioração da morfologia ou perda de dinâmica microtubular e dos extremos detectáveis. O método possibilita a obtenção de dados com alta resolução e em intervalos de tempo de larvas intactas, além da visualização do comportamento dinâmico dos microtúbulos nas dendrites terminais.
Divulgações
Os autores não têm conflitos de interesse a declarar.
Agradecimentos
Os autores agradecem a todos os membros do laboratório Howard, especialmente ao ex-membro do laboratório Dra. Maijia Liao, por iniciar o projeto de marcação de microtúbulos, e ao Dr. Sonal Shree por desenvolver o protocolo para visualizar a dinâmica dendrítica em Drosophila dentro do laboratório Howard. A pesquisa relatada nesta publicação foi apoiada pelos National Institutes of Health sob o número de concessão R35 GM161634 (National Institute of General Medical Sciences) e o número de concessão R01 NS118884 (National Institute of Neurological Disorders and Stroke) concedidos a J.H. O conteúdo é de responsabilidade exclusiva dos autores e não representa necessariamente as opiniões oficiais dos National Institutes of Health. Este trabalho também foi apoiado pela concessão da NSF PHY-2210464 e pelo prêmio da PEW Charitable Trusts 38044 concedidos a J.H.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| Ácido acético (glacial, reagente ACS, ≥99,7%) | Sigma-Aldrich | 695092 | Utilizado para preparar o meio de ágar-uva; 5 mL por preparação de aproximadamente 0,5 L |
| Ágar (bactoágar) | Becton Dickinson | 214010 | Utilizado para preparar o meio de ágar-uva; 15 g por preparação de aproximadamente 0,5 L |
| Dispositivo anestésico | Carolina Biological Supply Co. | 173010 | Utilizado para segurar o isoflurano dentro do reservatório de evaporação durante a anestesia das larvas |
| Béquer, 1 L, resistente a micro-ondas | Corning Inc. | 1000-1L | Utilizado para preparar aproximadamente 0,5 L de meio de ágar-uva |
| Béquer, 100 mL | Corning Inc. | 1000-100 | Utilizado para preparar pasta de levedura |
| Importador Bio-Formats | Projeto Open Microscopy Environment | Não aplicável | Plugin do FIJI utilizado para importar arquivos de lapso de tempo no formato .ND2 |
| Câmera (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | Sensor de 6,5 µm; utilizado para aquisição de imagens |
| Caixa de papelão (5 × 5 × 3 pol) | Uline | S-4579 | Utilizada para cobrir o equipamento de anestesia e reduzir o movimento de ar sobre a placa de cultura celular |
| Placa de cultura celular | Corning Incorporated | 430165 | 35 × 10 mm; utilizada para manuseio de larvas e como reservatório de evaporação de isoflurano |
| Lâmina de cobertura | Globe Scientific Inc. | 1404-15 | 22 × 22 mm, No. 1,5; colocada sobre a larva montada |
| Câmara Darwin | Darwin Chambers | IN030-AA-LT-DA-MP | Utilizada para manter cruzamentos de moscas, postura de ovos e estagiamento larval a 25 °C |
| Água destilada, grau reagente de laboratório | Research Products International (RPI) | Não aplicável | Utilizada para preparação do meio de ágar-uva, preparação da pasta de levedura e lavagem de larvas |
| Fita adesiva | Uline | S-6519 | Utilizada para fixar o dispositivo anestésico dentro da placa de cultura celular |
| Gaiola de postura de ovos/coleta de embriões | Genesee Scientific | 59-100 | Tamanho pequeno; acomoda uma placa de Petri de 60 × 15 mm; utilizada para coleta controlada de ovos |
| Etanol (anidro, 200 provas) | Decon Labs Inc. | V1001G | Utilizado para preparar o meio de ágar-uva; 10 mL por preparação de aproximadamente 0,5 L |
| FIJI (Fiji Is Just ImageJ) | NIH | Versão 2.16.0/1.54p | Utilizado para importação de imagens, estabilização, projeção de intensidade máxima, análise de ROI, geração de ciquografias e extração de perfis de intensidade |
| Linhas de mosca: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington Drosophila Stock Center(1); Howard Lab (2) | BDSC# 32078, BDSC# 35845 | Utilizadas para expressar CD4tdTomato e mNG-Jupiter em neurônios da classe IV de arborização dendrítica |
| Suco de uva, 100% uva Concord | Welch's | Não aplicável | Utilizado para preparar o meio de ágar-uva; 126 mL por preparação de aproximadamente 0,5 L |
| Óleo Halocarbon 700 | Sigma-Aldrich | H8898 | Utilizado para montar larvas para imagem em tempo real |
| Aplicador de hena | ZEYER | ZEYER-1005 | Utilizado para formar o compartimento de vaselina na lâmina do microscópio |
| Estabilizador de imagem | Desenvolvido por Kang Li | Não aplicável | Plugin do FIJI utilizado com configurações de transformação afim para corrigir deriva da amostra |
| Isoflurano | Santa Cruz Biotechnology, Inc. | sc-470926 | Utilizado para imobilizar larvas antes do montagem e da imagem |
| Tecido de laboratório (Kimwipes) | Kimberly-Clark Professional | 34120 | Utilizado para remover excesso de água de larvas lavadas antes da anestesia |
| Frasco de manutenção | Lab Express Inc. | 7001-PBT | Frasco de polipropileno com fundo quadrado, 6 oz; contém alimento para moscas B (receita Bloomington) e é utilizado para manter linhagens e cruzamentos de moscas |
| Micro-ondas | Panasonic | NN-SN686S | Utilizado para dissolver o ágar durante a preparação do meio de ágar-uva |
| Microscópio invertido | Nikon Instruments Inc. | 736228 | Microscópio invertido Ti Eclipse equipado com sistema de foco perfeito para imagem em tempo real |
| Lâmina de microscópio | Fisherbrand | 12550143 | Lâmina Superfrost; utilizada para montar larvas para imagem |
| Multi Kymograph | Desenvolvido por Jens Rietdorf, Arne Seitz e Johannes Schindelin | Não aplicável | Plugin do FIJI utilizado para gerar ciquografias da dinâmica de microtúbulos |
| Software Nikon Elements | Nikon Instruments Inc. | Versão 5.21.03 | Utilizado para aquisição de imagens de microscopia de lapso de tempo e geração de arquivos .ND2 |
| Objetiva, imersão em água | Nikon Instruments Inc. | MRD77400 | 40×, 1,25 NA; utilizada para imagem em tempo real |
| Pincel | Dynasty | 2157r | Tamanhos 0 e 3/0; utilizado para transferir larvas e selar o compartimento de vaselina |
| Placa de Petri | Falcon | 351007 | 60 × 15 mm; utilizada para placas de ágar-uva |
| Esptula | VWR | 82027-532 | 22,9 cm (9 pol); utilizada para misturar levedura e água durante a preparação da pasta de levedura |
| Unidade confocal de disco rotativo | Yokogawa CSU-W1 | SBW001 | Orifício de 50 µm; utilizada para imagem confocal em tempo real |
| Sacarose | Sigma-Aldrich | 57-50-1 | Utilizada no meio de ágar-uva e como solução a 5% para lavagem de larvas |
| Vaselina | Unilever | Não aplicável | Utilizada para formar o compartimento entre a lâmina e a lâmina de cobertura do microscópio |
| Levedura (Levedura Seca Ativa Red Star) | Lesaffre Corporation | Não aplicável | Utilizada para preparar pasta de levedura e apoiar a postura de ovos |
Referências
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve