Este protocolo permite o isolamento confiável de cardiomiócitos ventriculares viáveis do peixe-killifish anual de vida curta, Nothobranchius furzeri, em diferentes grupos etários, obtendo células adequadas para estudos de microeletrodo de patch em modo célula inteira sobre o remodelamento cardíaco associado à idade.
Artigo de método
Isolamento de Cardiomiócitos Ventriculares do Peixe Anual Nothobranchius furzeri para Gravações por Patch Clamp em Célula Inteira
Neste artigo
Resumo
Resumo
Os cardiomiócitos isolados em trabalho permanecem como a abordagem padrão para o estudo da eletrofisiologia cardíaca. Preparações de células únicas permitem a investigação direta e a medição precisa de correntes iônicas e potenciais de ação, sem a complexidade estrutural do tecido cardíaco intacto. Nothobranchius furzeri (peixe-azul africano) emergiu rapidamente como um organismo modelo proeminente para pesquisas gerontológicas devido à sua vida extremamente curta e às semelhanças nos mecanismos de envelhecimento com os mamíferos, incluindo os humanos. Esta espécie combina vantagens práticas, como tamanho pequeno, criação de baixo custo e ciclo de vida rápido, com relevância translacional. N. furzeri exibe declínios dependentes da idade na atividade locomotora, cognição e função orgânica, acúmulo de marcadores moleculares do envelhecimento e sensibilidade a tratamentos farmacológicos que modulam a longevidade e o período saudável de vida. No entanto, investigar o declínio funcional do coração envelhecido exige um método confiável para obter células viáveis de alta qualidade, adequadas para técnicas exigentes em nível de célula única. Este estudo otimizou um protocolo previamente descrito para o isolamento de cardiomiócitos de Danio rerio, assegurando a recuperação consistente de miócitos saudáveis tanto de N. furzeri jovens quanto senescentes. Este protocolo descreve o isolamento de cardiomiócitos ventriculares de N. furzeri, especificamente otimizado para a técnica de grampo de corrente em célula inteira. O artigo demonstra como remover eficientemente o coração, realizar a dissociação enzimática do miocárdio por perfusão retrógrada e armazenar os cardiomiócitos isolados. Discutimos a seleção de enzimas necessárias para digerir a matriz extracelular e as junções intercelulares sem comprometer a estrutura dos canais iônicos. Cardiomiócitos recém-isolados são adequados para ensaios eletrofisiológicos de alta resolução, incluindo gravações de potenciais de ação e medições das principais correntes iônicas entrantes e saídas entre diferentes grupos etários. O artigo também aborda as particularidades do isolamento de cardiomiócitos em peixes, que diferem dos procedimentos padrão de isolamento em mamíferos.
Introdução
A diminuição funcional dependente da idade no coração é impulsionada por remodelamento estrutural, molecular e eletrofisiológico, que conjuntamente prejudica a reserva cardíaca e aumenta a suscetibilidade à arritmogênese1. Para compreender os mecanismos que conduzem ao envelhecimento cardíaco no nível celular, a técnica de patch clamp de célula inteira serve como uma ferramenta experimental indispensável. Ela permite a avaliação direta e quantitativa de correntes iônicas transmembranares individuais e suas cinéticas, bem como dos potenciais de ação (PA), fornecendo informações sobre as alterações específicas nas correntes iônicas que subjazem à disfunção miocárdica associada à idade. O estudo desses mecanismos exige modelos vertebrados confiáveis de senescência cardíaca. Nos últimos anos, o peixe-azul-africano (Nothobranchius furzeri) emergiu como um modelo promissor para o estudo do envelhecimento cardíaco, devido à sua vida naturalmente curta2,3. Estudos moleculares e histológicos preliminares revelaram semelhanças nos processos de envelhecimento entre Nothobranchius e mamíferos. Investigações realizadas por outros grupos estabeleceram que N. furzeri apresenta características essenciais do envelhecimento cardíaco em mamíferos, incluindo encurtamento dos telômeros, redução no conteúdo de DNA mitocondrial e na expressão de enzimas antioxidantes, alterações estruturais e eletrofisiológicas no miocárdio e o acúmulo de marcadores de envelhecimento, como lipofuscina e atividade elevada de β-galactosidase4,5,6.
No entanto, apesar da crescente relevância de N. furzeri na pesquisa cardiovascular, a caracterização eletrofisiológica detalhada ao nível celular é limitada por desafios técnicos persistentes. A obtenção de gravações de patch clamp de alta qualidade depende estritamente do isolamento de cardiomiócitos funcionais que mantenham integridade estrutural, canais iônicos intactos e morfologia não hipercontrátil. Embora os protocolos de dissociação enzimática para cardiomiócitos de mamíferos sejam bem estabelecidos, o isolamento de miócitos cardíacos viáveis de corações de peixes permanece difícil devido à arquitetura tecidual não mamífera, rendimento celular relativamente baixo e tamanho reduzido do coração7,8. As principais limitações desse procedimento são a dificuldade técnica de canular corretamente o coração e a sensibilidade da preparação a pequenas variações no tratamento enzimático. Qualquer interrupção no fluxo de perfusão leva a uma deterioração acentuada na qualidade e no rendimento celular. Além disso, desvios mesmo leves na concentração da enzima ou no tempo de digestão podem afetar substancialmente a viabilidade celular e a qualidade dos registros eletrofisiológicos subsequentes. A idade do animal também deve ser considerada. Embora corações de peixes mais velhos exijam concentrações ligeiramente mais altas de enzima e tempos prolongados de digestão devido ao maior conteúdo de fibras colágenas e fibroblastos2, os princípios gerais de isolamento permanecem constantes, com concentrações de enzima e tempos de exposição variando em até 10% para alcançar resultados ótimos.
Consequentemente, um protocolo detalhado e altamente reprodutível de isolamento enzimático é um pré-requisito para o avanço da pesquisa eletrofisiológica sobre o envelhecimento cardíaco em modelos de peixes. Apesar de certas semelhanças morfológicas nas dimensões lineares, o isolamento de cardiomiócitos de N. furzeri exige várias modificações substanciais em comparação com o protocolo para Danio rerio. O procedimento clássico para o isolamento de células do coração de peixe-zebra envolve imergir o coração intacto em uma solução enzimática por um período relativamente prolongado7,8,9. Embora essa abordagem produza células viáveis, ela pode ser excessivamente agressiva para o coração de Nothobranchius e pode levar a uma digestão enzimática excessiva. Este método garante um fluxo estável de soluções diretamente nas câmaras cardíacas, proporcionando assim uma lavagem mais eficiente do sangue do coração e permitindo um tratamento enzimático mais preciso e suave. Este artigo descreve uma metodologia aprimorada para o isolamento de miócitos cardíacos viáveis, adequados para o método de patch clamp, a partir de N. furzeri, abordando os ajustes principais necessários para assegurar gravações eletrofisiológicas de alta qualidade.
Protocolo
O estudo foi realizado com N. furzeri da linhagem GRZ. Foram utilizados peixes jovens sexualmente maduros de ambos os sexos com idade entre 1,5 e 2 meses (N = 19, massa corporal = 0,71 g ± 0,36 g) para registrar potenciais de ação e correntes iônicas em cardiomiócitos ventriculares isolados. Os peixes foram criados e fornecidos pelo Instituto A.N. Severtsov de Ecologia e Evolução da Academia Russa de Ciências. Os animais foram mantidos em aquários a 24 °C ± 1 °C sob um ciclo claro/escuro de 12 horas em tanques com capacidade de 60–100 L. A densidade animal foi de 10–20 animais por tanque, conforme recomendações previamente publicadas10.
O princípio do isolamento de cardiomiócitos a partir de N. furzeri baseia-se no método clássico de isolamento de peixes descrito anteriormente e adaptado para peixes pequenos11,12. Todos os experimentos foram realizados de acordo com o Guia para o Cuidado e Uso de Animais de Laboratório (Institutos Nacionais de Saúde dos EUA) e com a Diretiva da UE 2010/63/UE. O protocolo experimental foi aprovado pelo Comitê de Bioética da Universidade Estadual de Moscou Lomonosov (Requerimento №202-a, aprovado durante a reunião da Comissão de Bioética №169-d realizado em 27.02.2025). Os reagentes e o equipamento utilizados estão listados no Tabela de Materiais.
1. Preparação das soluções
- Prepare a solução de isolamento livre de Ca2+ contendo (em mmol L-1): 100 NaCl, 10 KCl, 1,2 KH2PO4, 4 MgSO4, 50 taurina, 20 glicose e 10 HEPES. Ajuste o pH para 6,9 com NaOH à temperatura ambiente (24 °C). Realize o isolamento usando uma solução salina à temperatura ambiente. A oxigenação da solução não é necessária para o isolamento.
NOTA: A solução de isolamento pode ser armazenada a 4 °C por 3–4 dias em um frasco de vidro. - Prepare 3 mL de solução enzimática com base na solução livre de Ca2+, contendo 0,8 mg mL-1 de colagenase tipo 1A, 0,5 mg mL-1 de tripsina e 0,8 mg mL-1 de albumina sérica bovina (BSA). Adicione as enzimas imediatamente antes do procedimento de isolamento para preservar a atividade enzimática.
NOTA: As concentrações de enzimas podem precisar de ajuste, pois a atividade enzimática varia entre lotes. - Resfrie previamente 50–100 mL de água da torneira em uma geladeira até +4 °C. A água gelada é necessária para analgesia dos peixes.
2. Preparação do sistema de isolamento
- Fixe dois cilindros de seringa de 10 mL em um suporte a uma altura de aproximadamente 35 cm.
- Conecte tubos de silicone (d = 8 mm) aos cilindros e una suas extremidades livres usando uma torneira de infusão de três vias.
- Encha um tubo com a solução de isolamento livre de Ca2+ e o outro com a solução enzimática. Certifique-se de que não haja bolhas de ar nos tubos, pois elas impedem o fluxo e reduzem a qualidade do isolamento. Interrompa o fluxo.
- Encha uma agulha dispensadora de 32 G com solução livre de Ca2+ usando uma seringa de insulina de 1 mL para evitar bolhas de ar na ponta da agulha.
- Conecte a agulha cheia à extremidade livre da torneira de três vias.
- Usando massa adesiva, fixe a agulha a uma placa de Petri de 100 mm paralelamente ao plano inferior.
- Posicione a placa de Petri conectada ao sistema de perfusão sob o microscópio estereoscópico e fixe-a com grampos da platina e massa adesiva (Figura 1A).
3. Dissecação e isolamento do coração
- Prepare os instrumentos cirúrgicos: duas pares de tesouras e pinças microcirúrgicas oftálmicas e uma bandeja de dissecação com quatro agulhas médicas.
- Retire a água da torneira pré-resfriada da geladeira e mergulhe rapidamente o peixe. Aguarde até que as coberturas das brânquias parem de se mover.
CAUTION: Confirme a cessação do movimento opercular para assegurar analgesia adequada antes de prosseguir. - Remova o peixe da água, coloque-o na bandeja de dissecação com o lado dorsal voltado para cima e seccione a medula espinhal com a tesoura oftálmica.
- Coloque o peixe de costas e fixe-o à bandeja com agulhas. Fixe a cabeça, a cauda e os opérculos, mantendo os opérculos presos para trás em posição totalmente aberta para proporcionar mais espaço.
- Realize uma incisão transversal no peritônio. Estenda a incisão longitudinalmente até o eixo principal do corpo, elevando suavemente a pele longe dos órgãos viscerais com a pinça. Continue até a margem da mandíbula inferior e fixe as bordas da pele à esquerda e à direita (Figura 1B).
- Localize o ventrículo e o bulbo arterial. Segure o bulbo arterial com a pinça o mais distante possível do ventrículo e levante-o suavemente para fora do corpo. Sem soltar a pinça, corte caudalmente ao ventrículo para mantê-lo intacto.
- Transfira o coração isolado para a placa de Petri sob o microscópio estereoscópico. Fixe a ponta da cânula no ventrículo, inserindo-a primeiro no bulbo arterial e, em seguida, passando-a cuidadosamente pela válvula aórtica sem danificar o tecido circundante. A cânula pode ser posicionada com sucesso em > 90% dos corações.
- Fixe o bulbo arterial à cânula com uma ligadura (Figura 1C).
NOTA: Um fio de cabelo humano (d = 50–70 µm) é adequado como ligadura, pois o fio cirúrgico padrão é muito grosso para o pequeno coração.
4. Isolamento de cardiomiócitos
- Abra a válvula de três vias para permitir o fluxo a partir do cilindro contendo a solução livre de Ca2+. Quando realizado corretamente, o ventrículo enche com a solução e se expande. A taxa de fluxo foi ajustada para 43 µL min-1.
- Remova os remanescentes do átrio e do seio venoso com tesoura microcirúrgica sem danificar as paredes ventriculares.
- Perfunda o coração por 10–12 min enquanto monitora o fluxo uniforme. Comprima suavemente o tubo de silicone para fornecer um pulso transitório de solução que expande as trabéculas ventriculares e remove o sangue remanescente. A lavagem bem-sucedida é indicada por parada cardíaca e cessação do fluxo de eritrócitos sob o microscópio estereoscópico.
- Alterne a válvula para direcionar a solução enzimática ao ventrículo. Perfunda por 4–6 min. Confirme visualmente o tratamento enzimático pela perda da integridade da parede ventricular e pela liberação de pequenos fragmentos miocárdicos.
CAUTION: Evite a coleta ou transferência do perfusato para um microscópio invertido para exame, pois isso pode levar à perda ou dano mecânico do material celular e interromper o monitoramento contínuo da qualidade da perfusão. É preferível confiar nos sinais de isolamento bem-sucedido descritos acima, que são claramente visíveis sob um microscópio binocular. - Adicione uma pequena alíquota (300–400 µL) de solução livre de Ca2+ a uma placa de cultura de tecidos de 35 mm. Corte o ventrículo separando-o do bulbo arterial e transfira-o para a placa.
- Minifique o ventrículo com tesoura fina e, em seguida, triture suavemente o tecido pipetando repetidamente com uma micropipeta de 100 µL equipada com ponteira cortada.
- Transfira a suspensão celular para um tubo de 1500 µL. Examine uma alíquota sob microscópio invertido em baixa ampliação (10×). Estime visualmente a densidade de cardiomiócitos com formato alongado e estriados no campo de visão. Se o campo estiver muito denso, com muitas células alongadas sobrepostas (>50 por campo 10×), adicione solução livre de Ca2⁺ para reduzir a densidade celular e evitar excesso de aglomeração na câmara de gravação. Deixe as células sedimentarem a 4 °C por 40–50 min antes da gravação.
NOTE: As células podem ser mantidas a 4 °C durante o período de sedimentação; utilize-as para gravações dentro de 8 h após o isolamento.
5. Registros por grampo de célula inteira
- Prepare as soluções extracelular e intracelular para as diferentes correntes iônicas e gravações de potenciais de ação listadas na Tabela 1.
- Puxe pipetas de patch a partir de capilares de vidro borossilicato de parede fina (sem filamento) em um puxador vertical e preencha-as com solução intracelular. A resistência da pipeta preenchida deve ser de 2,0–3,0 MΩ para todas as configurações de gravação.
- Encha o reservatório de perfusão com a solução extracelular do banho e purgue as linhas para remover todas as bolhas de ar antes de colocar as células na câmara de gravação.
- Adicione um pequeno volume (30–40 µL) da suspensão de cardiomiócitos isolados à câmara de gravação com fundo de vidro e deixe as células sedimentarem por 5–10 min.
- Conecte a pipeta ao estágio da cabeça do amplificador. Com orientação microscópica, posicione a pipeta em direção ao cardiomiócito-alvo usando o micromanipulador até que a ponta entre em contato com a membrana, observado como uma leve reentrância e um aumento na resistência da pipeta.
- Aplicar sucção negativa suave para estabelecer um selo de alta resistência (GΩ), que normalmente se forma em alguns segundos.
- Defina o potencial de retenção em -80 mV. Rupture a membrana com uma série de pulsos breves de sucção. Após estabelecer a configuração de célula inteira, minimize os transitórios capacitivos e compense a capacitância celular e a resistência em série (de acesso) utilizando os circuitos de compensação do amplificador.
- Compense essas correntes capacitivas utilizando os controles de capacitância celular e resistência em série no amplificador. Ajuste o controle de capacitância celular para minimizar o transitório capacitivo principal, depois ajuste o controle de resistência em série para reduzir o sobressinal remanescente até que seja amplamente cancelado, e a corrente de base fique plana.
- Utilize apenas células com resistência de acesso estimada após compensação de ≤10–12 MΩ para gravação de potenciais de ação e correntes iônicas. Prossiga com a gravação de potenciais de ação ou correntes iônicas, adicionando os bloqueadores específicos listados na Tabela 2 antes da gravação, quando necessário.
- Realize as gravações com software de aquisição de patch clamp que permita configurar protocolos personalizados de estimulação para cada corrente-alvo. Os protocolos de potencial em clamp utilizados neste estudo estão apresentados na Figura 2.
Resultados
Este protocolo produz cardiomiócitos ventriculares individuais, com formato de bastonete, provenientes de N. furzeri, adequados para gravações de patch clamp de célula inteira com alta resolução. Um isolamento bem-sucedido é avaliado primeiramente pela morfologia celular e pela qualidade do selamento, e posteriormente confirmado funcionalmente pela capacidade de registrar potenciais de ação estáveis e cada uma das principais correntes iônicas com a dependência e amplitude esperadas em relação à voltagem. Os registros representativos abaixo foram obtidos de espécimes jovens de N. furzeri e definem os valores de referência que indicam uma célula saudável e adequadamente selada. Desvios em relação a esses parâmetros geralmente indicam um isolamento subótimo e são descritos junto a cada critério.
Morfologia celular e formação de selo
Os cardiomiócitos ventriculares viáveis de N. furzeri apresentam-se alongados e em forma de bastão, com um sarcolema liso e morfologicamente intacto (Figura 3). Em algumas células, era possível discernir uma tênue estriação transversal ao microscópio óptico, embora essa característica não fosse consistentemente observada em todas as células; portanto, a membrana lisa e intacta e a morfologia alongada e em forma de bastão foram utilizadas como critérios principais para seleção das células destinadas ao registro. Tais células formam prontamente um selo de alta resistência (>1 GΩ) e toleram a ruptura da membrana. Em contraste, células arredondadas, contraídas, granulosas ou inchadas são sinais de superdigestão ou dano mecânico: essas células selam mal, apresentam rápida deterioração e devem ser descartadas. Uma célula saudável mantém um potencial de repouso estável e exibe vazamento mínimo no potencial de retenção de -80 mV.
Características da gravação por patch clamp
Registros em modo de célula inteira pela técnica de patch-clamp foram realizados a 22–24 °C utilizando um amplificador para patch-clamp. Os sinais foram amostrados a 10 kHz e filtrados por passagem baixa em 1–2 kHz. O ganho de saída (α) foi ajustado para ×0,5 para otimizar a resolução do sinal no conversor digital. A resistência em série foi compensada em 70%–80%; atraso de 10 µs. Os registros foram descartados se a resistência de acesso estimada excedesse 10–12 MΩ ou mudasse em mais de ~10% durante o registro. Para os registros de potencial de ação e correntes iônicas, não foi aplicada subtração linear de vazamento.
As células foram excluídas da análise se atendessem a qualquer um dos seguintes critérios: potencial de membrana de repouso menos negativo que −70 mV no modo de fixação de corrente; incapacidade de formar um selamento estável de gigaseal (>1 GΩ); resistência de acesso >10–12 MΩ após compensação; rápida diminuição das correntes iônicas durante o registro; dano morfológico (aspecto arredondado, granular ou hipercontráctil).
potenciais de ação (controle positivo da viabilidade)
Os potenciais de ação registrados no modo de fixação de corrente fornecem a avaliação mais direta da viabilidade elétrica de um cardiomiócito isolado. Elicite os PA com pulsos de corrente despolarizantes de 1 ms (0,4–1 nA, ~30% acima do limiar). Ajuste a frequência de estimulação para 0,3 Hz. Registre os PA após ~5 min, assim que a forma de onda atingir um estado estável e constante. Em um cardiomiócito bem isolado de N. furzeri jovem, o potencial de repouso da membrana (PRM) é estável e próximo a -85 mV (Figura 4B). O potencial de ação ultrapassa aproximadamente +30 mV, apresentando um sinal claro de subida tudo-ou-nada (Figura 4A). As características representativas do PA incluem um APD90 de ~530 ms, um APD50 de ~460 ms e uma velocidade máxima de subida (dV/dtmax) de ~50 V s-1. Um PRM despolarizado (menos negativo que cerca de -70 mV), sobretensão reduzida ou ausente, velocidade de subida diminuída ou a incapacidade de sustentar disparos repetitivos com amplitude e duração estáveis na maioria dos casos indica uma célula danificada ou mal selada, a qual não pode ser utilizada para avaliar as características do potencial de ação.
Corrente rápida de sódio (INa)
A corrente rápida de sódio é responsável pela fase de despolarização do potencial de ação e é um marcador sensível da integridade da membrana e da qualidade do clamp. Utilizando as soluções baseadas em Cs+ da Tabela 1, INa é registrada como uma corrente interna de grande amplitude, com ativação e inativação rápidas (Figura 5A). Em miócitos jovens saudáveis, INa torna-se detectável próximo a -60 mV, atinge uma densidade de pico de aproximadamente -13 pA pF−1 em torno de -30 mV e reverte próximo a +20 mV (Figura 5B). A constante de tempo de inativação diminui de ~8 ms em -50 mV para ~2 ms em -10 mV, e a voltagem de meia-inativação situa-se próximo a -70 mV13 (Figura 5C,D). Uma amplitude substancialmente reduzida da corrente de pico, um potencial de reversão deslocado ou mal definido, ou cinéticas de ativação/inativação mais lentas e distorcidas indicam controle inadequado da voltagem (erro de resistência em série) ou integridade comprometida da membrana, e não o próprio processo de isolamento.
Correntes de cálcio (ICaL e ICaT)
Gravado com as soluções para corrente de cálcio (Tabela 1), os cardiomiócitos de N. furzeri exibem uma corrente de cálcio interna líquida com dois componentes. A corrente começa a se ativar em aproximadamente -60 mV, indicando um componente do tipo T (ICaT), além da corrente dominante do tipo L (ICaL), e atinge uma densidade de pico de cerca de -7 pA pF−1 entre -10 mV e 0 mV (Figura 6B). A identidade dos componentes é confirmada por abordagem farmacológica: 10 µM de nifedipina bloqueiam parcialmente a corrente, enquanto 100 µM provocam inibição quase completa (Figura 6A). É importante destacar que a concentração de 100 µM de nifedipina foi utilizada apenas em experimentos controle específicos para verificar se a corrente residual após 10 µM de nifedipina é totalmente sensível a concentrações mais elevadas e, portanto, pode ser identificada como ICaT. Para gravações de rotina padrão, 50 µM são suficientes para bloquear completamente a corrente líquida ICa. O componente ICaL é definido como a corrente evocada a partir de um potencial de retenção de -50 mV, e o ICaT é obtido pela diferença entre a corrente registrada a partir de -90 mV e o ICaL isolado (Figura 6C,D). Uma corrente interna nitidamente resolvida, sensível à nifedipina, com tensões de ativação e de pico descritas, indica canais de cálcio bem preservados.
Correntes de potássio retificadoras tardias (IKr e IKs)
A presença de correntes de potássio para fora confirma que a maquinaria de repolarização permanece funcionalmente intacta após o isolamento. Nas condições farmacológicas (Tabela 2), a despolarização para -40 mV e acima desencadeia uma corrente para fora em todas as células saudáveis. Duas componentes são distinguidas com bloqueadores seletivos: o retificador tardio lento (IKs), sensível ao cromanol 293B (20 µM), e o retificador tardio rápido (IKr), sensível ao E4031 (1 µM) (Figura 7A,B). Em miócitos de peixes jovens, IKs, bem como IKr, atinge uma densidade de aproximadamente 1 pA pF−1 em potenciais fortemente despolarizados (Figura 7C,D). A presença de ambas as componentes do retificador tardio, que desempenham um papel importante na repolarização ventricular humana, mas contribuem menos em modelos padrão de roedores14, serve como uma validação fundamental de que a célula registrada é um miócito ventricular de N. furzeri com correntes de repolarização intactas.
Corrente retificadora interna de fundo (IK1)
A corrente de retificação interna de base define o potencial de repouso da membrana e pode ser convenientemente avaliada com um protocolo de rampa de tensão de +60 a -120 mV (Figura 7E). Em uma célula saudável, IK1 inverte perto de -80 mV, o que é consistente com o PMR medido no modo de fixação de corrente. Em potenciais positivos em relação ao potencial de inversão, IK1 exibe uma saliência característica para fora, atingindo um pico de algumas pA pF−1 (Figura 7F). Um potencial de inversão distante de -80 mV ou uma fuga de base elevada indica selamento inadequado ou membrana danificada.
Em conjunto, um preparo é considerado bem-sucedido quando resulta em células alongadas, com formato de bastão, que apresentam membranas lisas e intactas, formam selos de gigaohm e demonstram o padrão de potencial de ação de referência e as assinaturas de corrente descritas acima. A obtenção de várias dessas células a partir de um único coração confirma que a dissociação enzimática preservou tanto a integridade da membrana quanto o conjunto completo de canais iônicos cardíacos necessários para estudos eletrofisiológicos posteriores.
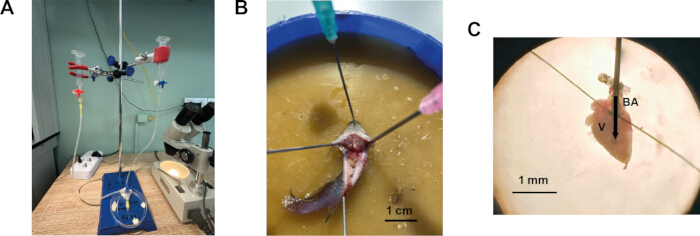
Figura 1: Procedimento para o isolamento de cardiomiócitos ventriculares do coração de N. furzeri. (A) Sistema de isolamento de cardiomiócitos modificado para peixes pequenos. (B) Peixe fixado em uma bandeja de dissecação, com a face ventral voltada para cima, e o peritônio incisado transversal e longitudinalmente. (C) Coração de N. furzeri canulado e fixado para perfusão. BA – bulbo arterioso, V – ventrículo. A seta indica a direção do fluxo da solução para dentro do ventrículo. Clique aqui para visualizar uma versão maior desta figura.
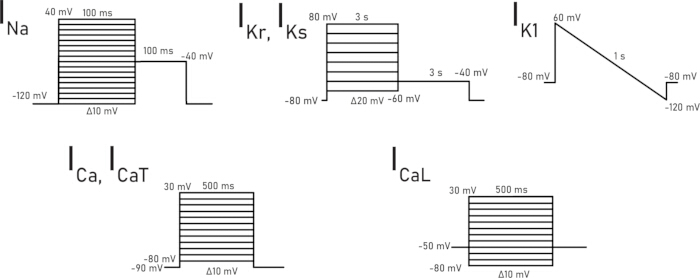
Figura 2: Protocolos de grampo de voltagem utilizados para registrar cada corrente iônica específica. Clique aqui para visualizar uma versão maior desta figura.
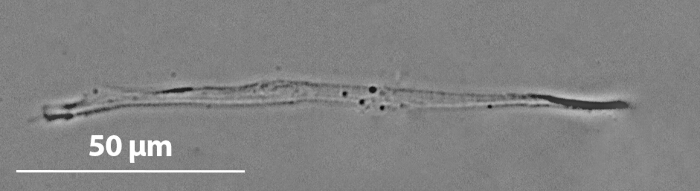
Figura 3: Microfotografia representativa de um cardiomiócito ventricular de N. furzeri jovem. Clique aqui para visualizar uma versão maior desta figura.
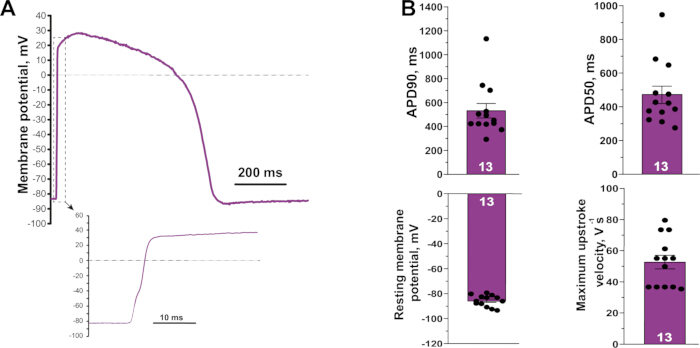
Figura 4: Potencial de ação representativo registrado em um cardiomiócito ventricular de um N. furzeri jovem. (A) Forma de onda do potencial de ação. O quadro interno mostra a fase de despolarização rápida em uma escala de tempo expandida. (B) Características do potencial de ação medidas em miócitos isolados jovens (potencial de membrana de repouso, APD50, APD90 e velocidade máxima de despolarização). (N = 7, n = 13). Os valores são representados como média ± E.P.M. Clique aqui para visualizar uma versão maior desta figura.
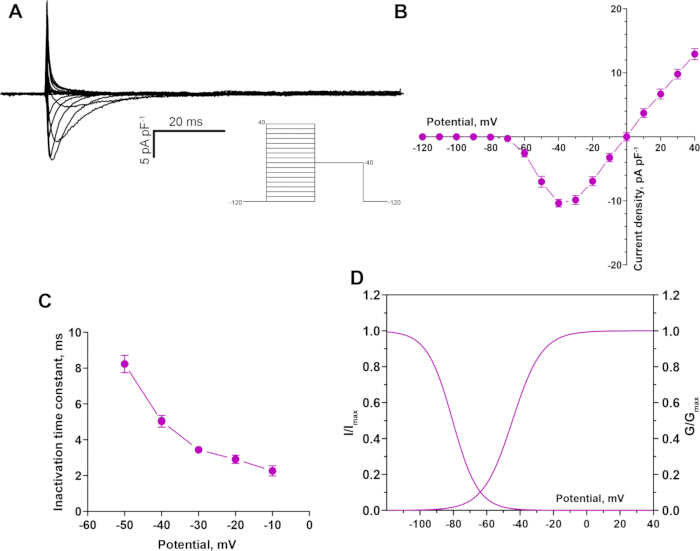
Figura 5: Corrente de sódio rápida (INa) registrada de um cardiomiócito ventricular jovem de N. furzeri. (A) Registro representativo da INa. (B) Relação corrente-tensão para a INa, ativando próximo a -60 mV com um pico próximo a -30 mV. (C) Dependência de tensão da constante de tempo de inativação. (D) Curvas de ativação e inativação no estado estacionário. (N = 5, n = 11). Os valores são representados como média ± E.P.M. Clique aqui para visualizar uma versão maior desta figura.
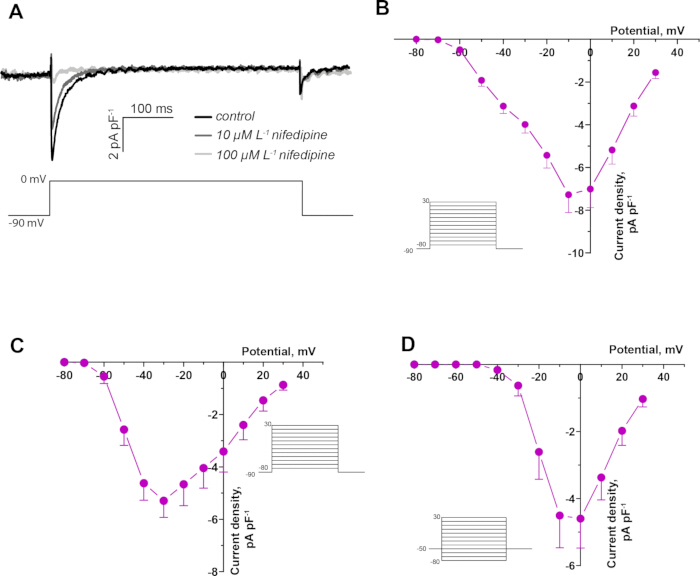
Figura 6: Correntes de cálcio em um cardiomiócito ventricular jovem de N. furzeri. (A) Registro representativo da corrente de cálcio total no controle e na presença de 10 µM e 100 µM de nifedipina em um cardiomiócito ventricular jovem de N. furzeri. (B) Relação corrente-tensão para a corrente de cálcio total, ativando-se próximo a -60 mV com um pico próximo a -10 mV (N = 5, n = 11). (C) Relação corrente-tensão para o componente do tipo T (ICaT) (N = 3, n = 6). (D) Relação corrente-tensão para o componente do tipo L (ICaL) (N = 5, n = 7). Os valores são representados como média ± E.P.M. Clique aqui para visualizar uma versão ampliada desta figura.
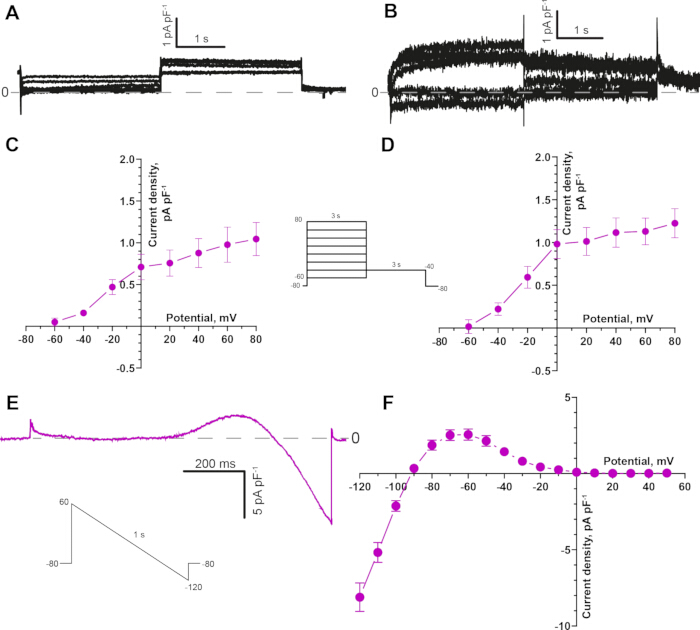
Figura 7: Correntes de potássio em jovens N. furzeri cardiomiócitos ventriculares. (A) Gravação representativa da corrente retardada retificadora lenta (IKs), isolado na presença de E4031 (1 µM) para bloquear IKr. (B) Gravação representativa da corrente retificadora tardia rápida (IKr), isolada na presença de cromanol 293B (20 µM) para bloquear IKs. (C) Relação corrente-tensão para IKs atual (N = 5, n = 9). (D) Relação corrente-tensão para IKr atual (N = 5, n = 10). (E) Representante IK1 registrado com um protocolo de rampa descendente de tensão de +60 mV a -120 mV. (F) Relação corrente-tensão para IK1, revertendo próximo a -80 mV (N = 5, n = 18). Os valores são representados como média ± M.E.V. Clique aqui para visualizar uma versão maior desta figura.
| Nome da Solução | Reagente e concentração (mM) |
| Solução extracelular para potencial de ação e correntes de potássio | 150 NaCl, 3 KCl, 1,2 MgCl2, 1,8 CaCl2, 10 glucose, 10 HEPES; pH 7,4 ajustado com NaOH |
| Solução intracelular para potencial de ação e correntes de potássio | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0,03 Na2GTP e 10 HEPES; pH 7,2 ajustado com KOH |
| Solução extracelular para corrente de sódio | 20 NaCl, 123 CsCl, 1 MgCl2, 1,8 CaCl2, 10 glucose e 10 HEPES; pH 7,2 ajustado com CsOH |
| Solução intracelular para corrente de sódio | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP e 15 TEA; pH 7,2 ajustado com CsOH |
| Solução extracelular para corrente de cálcio | 150 NaCl, 3 CsCl, 1 MgCl2, 1,8 CaCl2, 10 glucose e 10 HEPES; pH ajustado para 7,2 com NaOH |
| Solução intracelular para corrente de cálcio | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP e 15 TEA; pH 7,2 ajustado com CsOH. |
Tabela 1: Composição das soluções extracelular e intracelular para gravação com microeletrodo de patch de potenciais de ação e correntes iônicas.
| Corrente de gravação | Concentração do bloqueador (μM) | |
| 1. | Potencial de ação | Nenhum bloqueador necessário |
| 2. | IKr | 50 Nifedipina, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipina, 1 E4031 |
| 4. | IK1 | 50 Nifedipina, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipina |
| 6. | ICaT | 1 Tetrodotoxina |
| 7. | ICaL | 1 Tetrodotoxina |
Tabela 2: Bloqueadores farmacológicos adicionados às soluções extracelulares para gravação seletiva de uma determinada corrente iônica.
Discussão
Um isolamento bem-sucedido de cardiomiócitos ventriculares viáveis de N. furzeri representa um avanço metodológico que permite a caracterização eletrofisiológica direta do remodelamento cardíaco relacionado à idade no nível celular. Essa resolução é essencial para identificar os mecanismos iônicos específicos subjacentes à disfunção cardíaca relacionada à idade, os quais não podem ser distinguidos apenas com preparações de órgão ou coração inteiro. O estudo de cardiomiócitos nativos fornece uma compreensão direta de como o envelhecimento altera propriedades eletrofisiológicas fundamentais, incluindo correntes iônicas e características do potencial de ação.
Várias etapas do presente protocolo são críticas para obter cardiomiócitos de alta qualidade, adequados para o registro por patch clamp, a partir de N. furzeri. Em primeiro lugar, a atividade enzimática varia entre lotes, portanto, as concentrações de colagenase e tripsina devem ser ajustadas para cada preparação. A superdigestão causa danos à membrana e perda da função dos canais iônicos, enquanto a subdigestão resulta em poucas células e impede o contato estável entre a pipeta e a membrana. As células isoladas mantêm uma morfologia alongada, em forma de bastão, com sarcolema liso e intacto, indicando preservação da integridade celular durante o isolamento; em algumas células, pode-se observar também uma tênue estriação sarcomérica ao microscópio óptico. Essa preservação é fundamental para dados eletrofisiológicos confiáveis, pois células danificadas frequentemente apresentam alterações na função dos canais iônicos e propriedades comprometidas da membrana. Em segundo lugar, o pequeno tamanho do coração de N. furzeri representa um desafio técnico que exige uma otimização cuidadosa do isolamento enzimático e uma dissecação manual precisa, e o rendimento celular por coração é menor do que em preparações de mamíferos. Além disso, a perfusão inconsistente ou vazamentos do coração canulado são também alguns dos desafios mais comuns que podem ocorrer durante o procedimento. Pratique a canulação em vários corações para desenvolver um ângulo e profundidade de abordagem consistentes. Certifique-se de que a ponta da agulha esteja livre de bolhas de ar e de que o bulbo seja amarrado com segurança sem cortar o tecido. Além disso, antes de prosseguir com o registro, confirme que as células tenham formato de bastão, com membrana lisa e intacta (pode ser visível uma leve estriação em algumas células). Células arredondadas ou granulares devem ser descartadas. Verifique se todas as soluções foram recém-preparadas e corretamente ajustadas em pH. Certifique-se de que a resistência da pipeta esteja na faixa recomendada (2,0–3,0 MΩ). Durante o registro, verifique os parâmetros do amplificador descritos acima; a resistência de acesso após compensação não deve exceder 10–12 MΩ; o potencial de repouso da membrana é menos negativo que −70 mV no modo de fixação de corrente, e a célula forma um selo gigaseal estável.
No entanto, o protocolo produz com confiabilidade células de alta qualidade adequadas para gravações de patch clamp e potencialmente outras aplicações, estabelecendo N. furzeri como um modelo prático de envelhecimento cardíaco celular. Como N. furzeri oferece vantagens claras em relação aos modelos mamíferos tradicionais para estudos de envelhecimento cardíaco. Sendo o vertebrado de vida mais curta que pode ser criado em cativeiro, permite estudos longitudinais de envelhecimento cardíaco em períodos de tempo práticos, em comparação com modelos de camundongo que requerem 18–24 meses para atingir idades biológicas semelhantes15. Apesar de sua vida curta, apresenta características-chave do envelhecimento cardíaco em vertebrados, incluindo remodelamento eletrofisiológico, duração do potencial de ação preservada com velocidade de despolarização reduzida e subregulação de correntes iônicas importantes6.
Comparação com abordagens existentes de isolamento de cardiomiócitos.
O isolamento enzimático de cardiomiócitos ventriculares viáveis é um pré-requisito bem estabelecido para a eletrofisiologia em nível de célula única em uma ampla gama de espécies. Em mamíferos, a abordagem padrão-ouro baseia-se na perfusão retrógrada da aorta do coração intacto com tampão livre de cálcio, seguida por solução contendo enzimas, tipicamente colagenase e proteases, sob pressão e temperatura controladas. Essa estratégia proporciona distribuição uniforme das enzimas pela vasculatura coronária, lavagem eficiente do sangue e dissociação relativamente suave do miocárdio, resultando em grande número de miócitos com formato alongado, adequados para gravações de alta resolução por método de patch-clamp16,17.
Em peixes teleósteos, no entanto, a organização anatômica do coração e a ausência de um sistema arterial coronariano comparável ao dos mamíferos exigem modificações importantes. Em peixes-zebra, um dos modelos de peixes pequenos mais amplamente utilizados na pesquisa cardiovascular, o isolamento bem-sucedido de cardiomiócitos ventriculares baseia-se na digestão do coração intacto em uma solução enzimática por um período relativamente prolongado8,9. Nesses protocolos, o coração removido é transferido diretamente para uma gota ou pequeno volume de solução enzimática, onde é incubado à temperatura ambiente ou à temperatura apropriada para a espécie, seguido por trituração mecânica para liberar células individuais. Demonstra-se que essa abordagem produz cardiomiócitos viáveis e estriados, capazes de suportar gravações das principais correntes iônicas11.
Apesar de sua utilidade, a estratégia de digestão em lote apresenta várias limitações quando aplicada a corações muito pequenos ou particularmente frágeis. Primeiro, a exposição enzimática é menos controlada: as camadas externas do ventrículo são expostas a uma concentração efetiva mais alta da enzima por um tempo mais longo do que as camadas internas, o que pode levar a uma digestão heterogênea e a uma mistura de células subdigestas e superdigestas. Segundo, a imersão prolongada na solução enzimática aumenta o risco de superdigestão, especialmente quando os lotes de enzima variam em atividade ou quando o coração é excepcionalmente pequeno. Terceiro, a remoção do sangue depende principalmente da difusão passiva e de lavagens manuais suaves, o que pode ser insuficiente para limpar completamente os espaços luminas estreitos de um pequeno ventrículo de teleósteo.
Mantivemos os princípios gerais do tratamento sem cálcio, digestão enzimática e trituração suave. No entanto, o estudo modificou a forma de administração das soluções por meio da cânula no bulbo arterioso e perfusão direta do lúmen ventricular. Essa abordagem permite ao pesquisador lavar o sangue dos espaços ventriculares antes da digestão, alternar entre soluções sem precisar transferir o coração e interromper o tratamento enzimático quando a parede ventricular começar a se soltar. Essas modificações são particularmente importantes para o coração pequeno e delicado de N. furzeri, no qual a imersão prolongada em solução enzimática pode resultar em digestão excessiva e redução da qualidade celular.
Aplicações futuras
O método de isolamento aqui apresentado abre diversas possibilidades para pesquisas futuras. Primeiramente, permite a caracterização sistemática de alterações dependentes da idade na morfologia do potencial de ação e na densidade, cinética e dependência de voltagem das correntes iônicas em cardiomiócitos de N. furzeri, complementando as recentes descrições moleculares e histológicas do envelhecimento cardíaco nesta espécie2,3,4,5. Em segundo lugar, o protocolo pode ser combinado com ferramentas farmacológicas para testar como intervenções que modulam a longevidade ou o período de boa saúde afetam a eletrofisiologia cardíaca no nível de célula única. Em terceiro lugar, os cardiomiócitos isolados de N. furzeri podem ser utilizados em aplicações além dos registros por patch-clamp, incluindo análises moleculares (qPCR, RNA-seq, proteômica) de alterações relacionadas à idade na expressão dos canais iônicos e em modificações pós-traducionais, imunocitoquímica e imagens de alta resolução da organização sarcomérica. Por fim, a estrutura metodológica descrita aqui pode ser adaptada a outros modelos de teleósteos pequenos com tamanho e anatomia cardíaca semelhantes, ampliando assim a utilidade de N. furzeri como modelo translacional na pesquisa sobre envelhecimento cardíaco.
Divulgações
Os autores declaram que não possuem interesses financeiros concorrentes.
Agradecimentos
Este trabalho foi financiado pelo Fundo Russo para a Ciência (Grant No. 22-14-00075). Os autores agradecem a Andrei Nikiforov pela assistência na criação e manutenção da população de Nothobranchius furzeri utilizada neste estudo.
Materiais
| Nome | Empresa | Número de catálogo | Comentários |
|---|---|---|---|
| seringa de insulina de 1 mL | Med Aim | 939863 | |
| seringas de 10 mL | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| placa de Petri de 100 mm | SARSTEDT | 83.3902 | |
| micropipeta de 100 μL | Thermo Scientific | 4640040 | |
| placa de cultura de tecidos de 35 mm | SPL LIFE SCIENCES | 11035 | |
| torneira de infusão de 3 vias | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| tubo de 500 μL | Eppendorf | EP0030124537-500EA | |
| ponta de 5-200 μL | Deltalab | 200009 | |
| amplificador | Molecular devices | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| capilares de vidro borossilicato | Sutter Instrument | B150-110-10 | |
| albumina sérica bovina | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| colagenase tipo 1A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| agulha de dispensação (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| glicose | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| microscópio invertido | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| micromanipulador | RWD | MM-500 | |
| pinça oftálmica microcirúrgica | CILITA | F-111T | |
| tesoura oftálmica microcirúrgica | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| nifedipino | Sigma-Aldrich | N7634 | |
| sistema de perfusão | Biotechnologies | Bio_4_p | |
| puxador de pipetas | Narishige Group | PC-10 | |
| tubos de silicone (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| suporte | NV-lab | 00000034085 | |
| microscópio estereoscópico | Labkompleks LCC | 10557 | |
| taurina | Acros Organics | 166545000 | |
| cloreto de tetraetilamônio (TEA) | Merck | 822148 | |
| tetrodotoxina | Tocris Bioscience | 1078 | |
| tripsina | Sigma-Aldrich | T0303 | |
| software WinWCP | University of Strathclyde | - | V5.7.5 |
Referências
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Reimpressões e permissões
Este artigo foi publicado
Vídeo em breve