Новый метод с участием количественный анализ FRET (Ферстер резонансный перенос энергии) сигналов описано для изучения кинетики ферментов. K M И К Кот Были получены для гидролиза каталитический домен SENP1 (SUMO / Sentrin специфической протеазы 1) предварительно SUMO1 (Small Убиквитин-как модификатор). Общие принципы количественного лада на основе исследования кинетической протеазы могут быть применены в других протеаз.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Количественные FRET (Ферстер резонансный перенос энергии) анализ для определения протеазы SENP1 кинетики
В этой статье
Краткое содержание
Аннотация
Обратимые посттрансляционные модификации белков убиквитином или убиквитин-подобными белками (Ubl) широко используются для динамической регуляции активности белков и играют разнообразные роли во многих биологических процессах. Например, SUMO ковалентно модифицирует большое количество белков, имеющих важные функции во многих клеточных процессах, включая регуляцию клеточного цикла, выживание и гибель клеток, ответ на повреждение ДНК и стрессовый ответ 1-5. SENP, являясь SUMO-специфической протеазой, функционирует как эндопептидаза при созревании предшественников SUMO или как изопептидаза для удаления SUMO из белков-мишеней и обновления цикла SUMOилирования 1,3,6,7.
Каталитическая эффективность или специфичность фермента лучше всего характеризуется отношением кинетических констант, kcat/KM. В ряде исследований кинетические параметры пар SUMO-SENP определялись различными методами, включая вестерн-блоттинг с использованием полиакриламидного геля, применение радиоактивно меченных субстратов, флуоресцентных соединений или меченных белков-субстратов 8-13. Однако методы на основе полиакриламидного геля, в которых используются «нативные» белки, трудоемки, технически сложны и не вполне пригодны для детального количественного анализа. Значения kcat/KM, полученные в исследованиях с использованием тетрапептидов или белков с флуорофорами ACC (7-амино-4-карбонилметилкумарин) или AMC (7-амино-4-метилкумарин), были либо на два порядка ниже, чем для природных субстратов, либо не позволяли четко разграничить изо- и эндопептидазную активность SENP.
В последнее время для изучения деубиквитинирующих ферментов (DUBs) или SENPs использовали протеазные анализы на основе FRET с использованием FRET-пары из цианового флуоресцентного белка (CFP) и желтого флуоресцентного белка (YFP) 9,10,14,15. В качестве количественного параметра для мониторинга FRET-сигнала при определении активности протеаз использовали отношение эмиссии акцептора к эмиссии донора. Однако этот метод не учитывал перекрестное загрязнение сигналов на длинах волн эмиссии акцептора и донора за счет собственной флуоресценции акцептора и донора, и поэтому не был точным.
Нами был разработан новый высокочувствительный и количественный анализ протеаз на основе FRET для определения кинетических параметров созревания pre-SUMO1 под действием SENP1. Для создания субстрата CyPet-(pre-SUMO1)-YPet была использована модифицированная FRET-пара CyPet и YPet со значительно улучшенной эффективностью FRET и квантовым выходом флуоресценции 16. Мы дифференцировали и количественно определили абсолютные сигналы флуоресценции донора и акцептора, а также FRET на длинах волн возбуждения акцептора и эмиссии соответственно. Значение kcat/KM для SENP1 по отношению к pre-SUMO1 составило (3.2 ± 0.55) x107 M-1s-1, что согласуется с общими кинетическими параметрами ферментов. Таким образом, данная методика является обоснованной и может быть использована в качестве общего подхода для характеристики других протеаз.
Протокол
1. Конструкции плазмид
- Усиление открытые рамки считывания генов с помощью ПЦР и клонирование ПЦР-продуктов в PCRII-TOPO вектор.
- Подтвердите продукции путем секвенирования и клонирование кДНК, кодирующей CyPet-(предварительно SUMO1)-YPet, CyPet-SUMO1, YPet и каталитических областей SENP1 в pET28 (б) вектор с N-концевых hexahistidine тегов.
2. Выражение и очистки белков
- Преобразование кишечная палочка клеток штамма BL21 (DE3) с pET28 (б) векторов, кодирующих CyPet-(предварительно SUMO1)-YPet, CyPet-SUMO1, YPet и каталитические области SENP1.
- Взрослые превращаются бактериями в 2xYT среде в течение 3 часов при 37 ° C (встряхиванием при 250 оборотов в минуту) для достижения оптической плотности 0,5 при 600 нм.
- Добавить 100 мкМ изопропил-β-D-тиогалактозида (IPTG) (конечная концентрация), чтобы вызвать экспрессию белка и встряхивают в течение 16 часов при 25 ° C при 200 оборотах в минуту.
- Урожай бактерий centrifugATION на 10.000 мин при 4 ° С в течение 5 мин и ресуспендируют их в буфере 20 мМ Трис-HCl (рН 7,4), 50 мМ NaCl, 5 мМ имидазола.
- Разрушать ультразвуком клетки в течение 10 мин в 5-сек интервалом в установленной мощности 25 Вт использованием MiSonics 4000 ультразвуком и собрать их с помощью центрифугирования при 35000 х г при 4 ° С в течение 30 мин.
- Установите колонку с 500 мл Ni-NTA бисером на 1 л культуры и передать супернатанта в колонну.
- Вымойте смолы с буфером 20 мМ Трис-HCl (рН 7,4), 500 мМ NaCl, 10 мМ имидазола в два раза.
- Elute белка с буфером 20 мМ Трис-HCl (рН 7,4), 500 мМ NaCl и 500 мМ имидазола и диализа в буфере 20 мМ Трис-HCl (рН 7,4), 50 мМ NaCl и 1 мМ ДТТ (DTT) в 4 ° C в течение ночи.
- Определить концентрацию очищенных белков с помощью анализа Брэдфорда. Альтернативный метод для измерения концентрации белка будет SDS-PAGE гель-электрофореза, а затем окрашивали кумасси синим следуют с изображениямиколичественные.
3. Количественный спектральный анализ FRET
- Общей стратегии для анализа был основан на FRET сигнализации (рис. 1). FRET пар, CyPet и YPet, был привязан к N-и С-концы, соответственно, предварительно SUMO1. SENP1 расщепляет белок слияния CyPet-(предварительно SUMO1)-YPet на Gly-Gly сайт в SUMO1 C-конца и, таким образом, освобождает SUMO хвост с YPet. FRET сигнала нарушается, что приводит к увеличению выбросов от CyPet и резкое снижение выбросов YPet по адресу CyPet длины волны возбуждения.
- При возбуждении светом с длиной волны 414 нм, общее флуоресценции из CyPet-(предварительно SUMO1)-YPet при 530 нм могут быть получены из трех источников: излучение абсолютного FRET-индуцированной YPet, в CyPet прямых выбросов и YPet прямого излучения (рис. 2).
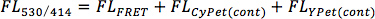
где FL 530/414 </ SUB> является общей флуоресценции при 530 нм при возбуждении на 414 нм, FL FRET является абсолютным FRET сигнал, FL CyPet (продолжение) является CyPet прямого излучения при возбуждении на 414 нм, и FL YPet (продолжение) является YPet направить излучение при возбуждении на 414 нм. Индексе (продолжение) выступает за вклад.
- Прямое излучение CyPet при 530 нм пропорциональна его излучение на 475 нм при возбуждении при 414 нм с постоянным отношением α. CyPet-SUMO1 был подготовлен в концентрациях 50, 100, 200, 500 и 750 нм и 1 мМ , а выбросы на 475 и 530 нм измеряли после возбуждения при 414 нм для определения α (рис. 3-1).
- Прямое излучение YPet при 530 нм при возбуждении на 414 нм была пропорциональна его излучение на длине волны 530 нм при возбуждении на 475 нм с постоянным отношением β. YPet был подготовлен в концентрациях 50, 100, 200, 500, 750м 1000 нм, а излучение на длине волны 530 нм измеряли, когда образцы были возбуждены длинах волн 414 и 475 нм для определения β (рис. 3-2).
- Когда CyPet-(предварительно SUMO1)-YPet был усваивается SENP1, расщепление выпустила CyPet-SUMO1 и SUMO1 хвост с YPet. Когда соединение была возбуждена при 414 нм, флуоресценции при 530 нм (Флорида »530/414) был снижен, но все еще может быть разделена на три части, как:
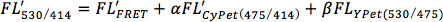
где FL '530/414 является общей флуоресценции при 530 нм после переваривания при возбуждении при 414 нм, FL' FRET является абсолютным оставшиеся FRET сигнал, CyPet FL »(475/414) является CyPet излучения на 475 нм после переваривания, когда возбуждаются при 414 нм (здесь CyPet излучения из двух частей: непереваренные CyPet-(предварительно SUMO1)-YPet и переваривается CyPet-SUMO1) и FL YPet(530/475) является YPet излучения при возбуждении на 475 нм, которая является постоянным ли CyPet-(предварительно SUMO1)-YPet переваривается или нет.
- После переваривания SENP1, оставшиеся FRET выбросов (FL 'FRET) составляет:
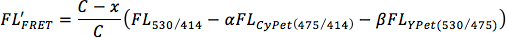
где С полной концентрации CyPet-(предварительно SUMO1)-YPet и х концентрация переваривается CyPet-(предварительно SUMO1)-YPet.
- Объединив все элементы, обнаруженные флуоресценции при 530 нм при возбуждении 414 нм (Флорида »530/414) составляет:

4. FRET на основе протеазы для анализа ферментов Кинетические исследования
- CyPet-(предварительно SUMO1)-YPet инкубировали с каталитический домен SENP1 при 37 ° C в буфере 20 мМ Трис-HCl (рН 7,4), 50 мМ NaCl, 0,1% (V /V), твин-20 и 1 мМ DTT до общего объема 80 мл и переносят в 384-луночный планшет.
- Опыты проводили путем измерения флуоресценции при 475 и 530 нм после возбуждения при 414 нм в флуоресценции многоямного ридер в течение 5 мин с 15-сек интервалами.
- Скорость реакции (V) коррелировало с изменением количества субстрата (S), как:
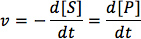
- Концентрация продуктов возросло от 0, [S] 0 (исходная концентрация субстрата) при Т = 0:
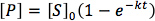
- При Т = 0, оригинальные скорости (V 0) является:
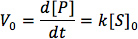
- Концentration из SENP1 был зафиксирован, и концентрация CyPet-(предварительно SUMO1)-YPet была увеличена с 100 раз больше, чем концентрация фермента, который требуется Михаэлиса-Ментен.
- Все флуоресцентные показания были проанализированы количественные FRET метод анализа и построены в GraphPad Software Prism V в соответствии с Михаэлиса-Ментен. Нелинейной регрессии также может быть выполнена с помощью наиболее распространенных программных пакетов, как электронные таблицы (например, Microsoft Excel).
5. Представитель Результаты
Созревание предварительно SUMO1 по SENP1 может быть определена путем наблюдения за изменениями сигнала флуоресценции при 475 и 530 нм в ходе процесса. Результат показал, что скорость предварительного SUMO1 пищеварения SENP1 в субстрат-зависимым от дозы образом (рис. 4). Это говорит о том, что каталитический домен SENP1 обладает отличной деятельности для созревания предварительно SUMO1 автора. Первоначальная реакцияния скорости были рассчитаны выше анализ с различными концентрациями субстрата (табл. 1).
А кошка / K M соотношение, как правило, используются для сравнения эффективности различных ферментов с одной подложке или конкретного фермента с различными субстратами. K M и V макс может быть получено из уравнения Михаэлиса-Ментен путем построения различных начальных скоростях, соответствующих в различных концентрациях CyPet-(предварительно SUMO1)-YPet (рис. 5) к кот был получен в.:

По данным проведенного анализа, рассчитанные K M был 0,21 ± 0,04 мкм, кот был к 6,90 ± 0,28 с -1, а к кошке / K M составило (3,2 ± 0,55) x10 7 М -1 > С -1.
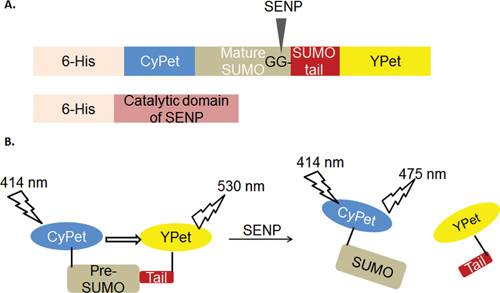
Рисунок 1. График FRET на основе анализа протеазы для предварительного созревания SUMOs SENP автора.
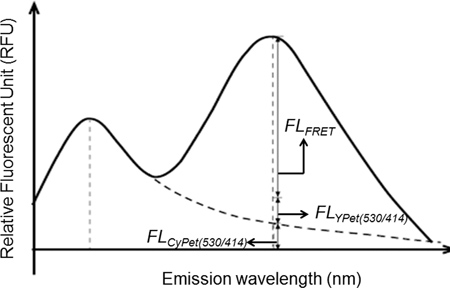
Рисунок 2. Количественный анализ флуоресцентного сигнала в качестве взносов от донора, акцептора и FRET. Препарирование спектры излучения от CyPet-(предварительно SUMO1)-YPet при возбуждении на 414 нм. FL CyPet (530/414) в выбросах CyPet по адресу 530 нм при возбуждении 414 нм, FL FRET является FRET-индуцированной YPet излучения на длине волны 530 нм при возбуждении 414 нм и FL YPet (530/414) является эмиссия YPet по адресу 530 нм при возбуждении 414 нм.
load/4430/4430fig3.jpg "/>
Рисунок 3. Расчет выбросов направлении α и β фактор.
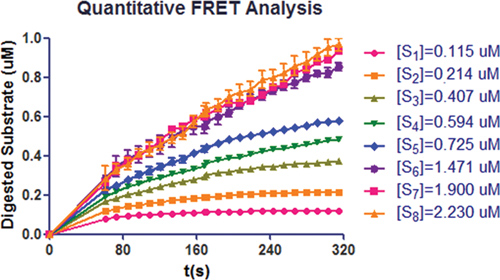
Рисунок 4. Количественный анализ CyPet-(предварительно SUMO1)-YPet усваивается различных соотношениях каталитический домен SENP1. Реакция наблюдали в течение первых 5 мин.
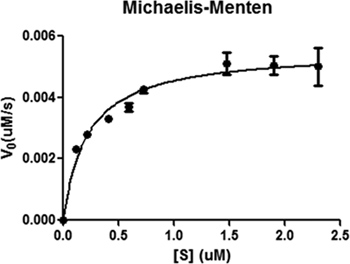
Рисунок 5. Михаэлиса-Ментен графический анализ пищеварения CyPet-(предварительно SUMO1)-YPet путем SENP1. Данные были построены и проанализированы GraphPad Prism V и нелинейной регрессии.
| [S] (мкм) | V 0 (мкм / с) |
| 0,115 | 0,0023 ± 0,00005 |
| 0,214 | 0,0028 ± 0,00004 |
| 0,407 | 0,0033 ± 0,00007 |
| 0,594 | 0,0037 ± 0,00013 |
| 0,725 | 0,0043 ± 0,00012 |
| 1,471 | 0,0051 ± 0,00036 |
| 1,899 | 0,0050 ± 0,00031 |
| 2,300 | 0,0050 ± 0,00062 |
Таблица 1. Первоначальное определение скорости созревания предварительно SUMO1 путем SENP1. В каждой концентрации субстрата, четыре образца были использованы для измерения пищеварения. Стандартное отклонение пришли из вариаций этих четырех образцов.
| K M (мкм) | А кот (с-1) | А кошка / к M (M -1 • с-1) |
| 0,21 ± 0,04 | 6,90 ± 0,28 | 3,2 ± 0,55 × 10 7 |
Таблица 2. Кинетические параметры созревания предварительно SUMO1 путем SENP1 количественного FRET анализа. Стандартное отклонение пришли из четырех образцов в каждой концентрации субстрата.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
FRET технология была использована для изучения созревания предварительно SUMO1 путем SENP1 9. CFP-YFP был использован в качестве FRET пар и радиометрический анализ, который представляет собой отношение акцепторных доноров выбросов, был использован для характеристики кинетические свойства. Тем не менее, нет никаких рассмотрение доноров и акцепторов самостоятельно флуоресценции в традиционном логометрические FRET анализа. Соотношение напрямую не коррелирует с количеством переваривается подложки.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Нет конфликта интересов объявлены.
Благодарности
Мы очень благодарны Виктору GJ Rodgers за ценные советы. Мы благодарим всех членов группы Ляо очень близко совместную работу и помощь в этом исследовании. Это исследование было поддержано Национальным институтом здравоохранения (грант AI076504 для JL).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Название реагента | Компания | Номер в каталоге | |
| PCR II TOPO Kit | Invitrogen | K466040 | |
| 2xYT | Исследования продуктов корпорации Internationa.l | X15600 | |
| Ni-NTA Agrose | Thermo Scientific | 88222 | |
| Кумасси плюс (Bradford) Анализ Regent | Thermo Scientific | 23238 | |
| 384-луночный планшет (со стеклянным дном) | Greiner | 781892 | |
| FlexStation II 384 ридер | Молекулярные устройства |
Ссылки
- Johnson, E. S. Protein modification By SUMO. Annual Review of Biochemistry. 73, 355-382 (2004).
- Gill, G. SUMO and ubiquitin in the nucleus: different functions, similar mechanisms. Genes & Development. 18, 2046-2059 (2004).
- Hay, R. T. SUMO: a history of modification. Molecular Cell. 18, 1-12 (2005).
- Müller, S., Hoege, C., Pyrowolakis, G., Jentsch, S. SUMO, ubiquitin's mysterious cousin. Nature. , 202-210 (2001).
- Hochstrasser, M. SP-RING for SUMO: new functions bloom for a ubiquitin-like protein. Cell. , 5-8 (2001).
- Drag, M., Salvesen, G. S. DeSUMOylating enzymes-SENPs. IUBMB Life. 60, 734-742 (2008).
- Mukhopadhyay, D., Dasso, M. Modification in reverse: the SUMO proteases. Trends in Biochemical Sciences. 32, 286-295 (2007).
- Reverter, D., Lima, C. D. Structural basis for SENP2 protease interactions with SUMO precursors and conjugated substrates. Nature Structural & Molecular Biology. 13, 1060-1068 (2006).
- Shen, L., et al. SUMO protease SENP1 induces isomerization of the scissile peptide bond. Nature Structural & Molecular Biology. 13, 1069-1077 (2006).
- Horton, R., Strachan, E., Vogel, K., Riddle, S. A substrate for deubiquitinating enzymes based on time-resolved fluorescence resonance energy transfer between terbium and yellow fluorescent protein. Analytical Biochemistry. 360, 138-143 (2007).
- Mikolajczyk, J., et al. Small Ubiquitin-related Modifier (SUMO)-specific Proteases: PROFILING THE SPECIFICITIES AND ACTIVITIES OF HUMAN SENPs. Journal of Biological Chemistry. 282, 26217-26224 (2007).
- Kolli, N., Mikolajczyk, J., Drag, M., Mukhopadhyay, D., Moffatt, N., Dasso, M., Salvesen, G., Wilkinson, K. D. Distrubition and paralogue specificity of mammalian deSUMOylating enzymes. Biochem. J. , 335-344 (2010).
- Drag, M., Mikolajczyk, J., Krishnakumar, I. M., Huang, Z., Salvesen, G. S. Activity profiling of human deSUMOylating enzymes (SENPs) with synthetic substrates suggests an unexpected specificity of two newly characterized members of the family. Biochemical Journal. 409, 461(2008).
- Engels, I. H., et al. A time-resolved fluorescence resonance energy transfer-based assay for DEN1 peptidase activity. Analytical Biochemistry. 390, 85-87 (2009).
- Martin, S., Hattersley, N., Samuel, I., Hay, R., Tatham, M. A fluorescence-resonance-energy-transfer-based protease activity assay and its use to monitor paralog-specific small ubiquitin-like modifier processing. Analytical Biochemistry. 363, 83-90 (2007).
- Nguyen, A. W., Daugherty, P. S. Evolutionary optimization of fluorescent proteins for intracellular FRET. Nature Biotechnology. 23, 355-360 (2005).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
