Уровни воспалительной клеточной сигнальной молекулы оксида азота (NO) обычно измеряются с помощью реагента Грисса. В рамках этого протокола мы создали модифицированный анализ Грисса с использованием живой ткани мозга дрозофилы с целью обнаружения секреции NO простым, количественно поддающимся и легко воспроизводимым методом.
Методическая статья
Роман Всего тканей количественного анализа уровень оксида азота в
В этой статье
Краткое содержание
Аннотация
Нейровоспаление - это сложный врожденный иммунный ответ, жизненно важный для здорового функционирования центральной нервной системы (ЦНС). В нормальных условиях сложная сеть индукторов, детекторов и активаторов быстро реагирует на повреждение нейронов, инфекцию или другие иммунные нарушения. Это воспаление иммунных клеток тесно связано с патологией нейродегенеративных заболеваний, таких как болезнь Паркинсона (БП), болезнь Альцгеймера и БАС. При ослабленных состояниях заболевания хроническое воспаление, направленное на минимизацию повреждения нейронов, может привести к чрезмерному возбуждению иммунных клеток, что в конечном итоге приводит к усугублению прогрессирования заболевания. Например, потеря дофаминергических нейронов в среднем мозге, являющаяся отличительным признаком БП, ускоряется из-за чрезмерной активации воспалительной реакции. Хотя причина БП в значительной степени неизвестна, воздействие токсинов окружающей среды было связано с возникновением спорадических случаев. Например, было показано, что гербицид паракват вызывает паркинсоническую патологию у нескольких животных моделей, включая Drosophila melanogaster. В данной работе мы использовали консервативный врожденный иммунный ответ у дрозофил для разработки анализа, способного обнаруживать различные уровни оксида азота, клеточной сигнальной молекулы, критически важной для активации каскада воспалительных реакций и целевой гибели нейронов. Используя повреждение нейронов, вызванное паракватом, мы оцениваем влияние этих иммунных повреждений на нейровоспалительную стимуляцию с помощью нового количественного анализа. Цельный мозг полностью извлекается из мух, подвергшихся воздействию нейротоксинов или генотипов, повышающих восприимчивость к нейродегенерации, а затем инкубируется в средах для клеточных культур. Затем, используя принципы реагентной реакции Грисса, мы можем обнаруживать незначительные изменения в секреции оксида азота в клеточные культуры, по сути, создавая первичную модель живой ткани с помощью простой процедуры. Полезность этой модели усиливается надежной генетической и молекулярной сложностью Drosophila melanogaster, и этот анализ может быть модифицирован для применения к другим тканям дрозофилы или даже к другим небольшим моделям воспаления всего организма.
Введение
Нейровоспаление - это сложный иммунный ответ, который, как было показано, тесно связан с патологией широкого спектра заболеваний, большинство из которых являются нейродегенеративными расстройствами. В базальных условиях эта многогранная сеть перипатетических иммунных клеток поддерживает здоровье тканей за счет быстрой реакции на инфекцию, бляшки или травму1,2. Нейровоспалительная реакция центральной нервной системы млекопитающих может быть вызвана незначительными повреждениями, такими как клеточный окислительный стресс, связанный с нормальным старением, или серьезными атаками, такими как повреждение нейронов, происходящее в результате острого воздействия химического токсина. Когда происходит эта индукция, фагоцитарные клетки, известные как микроглия, активируются и мигрируют к месту повреждения нейрональных клеток. Эти иммунные клетки, подобные падальщикам, которые похожи на макрофагальные клетки, существующие на периферии, затем начинают сложный сигнальный каскад с поврежденным нейроном, а также с астроцитами, поддерживая глиальные клетки, которые действуют вместе с микроглией для типично сильного микроглиального ответа3-7. После активации микроглия начинает процесс воспаления, стимулирующий иммунную систему и способствующий восстановлению тканей1,8.
В условиях продолжительного инсульта, как при нейродегенеративных заболеваниях, таких как болезнь Паркинсона (БП), болезнь Альцгеймера и боковой амиотрофический склероз, хроническое воспаление также наносит значительный ущерб здоровым тканям. Недавние исследования показали, что эта устойчивая, агрессивная реакция иммунной системы может на самом деле приводить к чрезмерно возбуждающей реакции, которая усугубляет состояние болезни, а не улучшает состояние9-11.
У Drosophila melanogaster врожденный иммунный ответ генетически хорошо сохраняется. Несмотря на отсутствие настоящей адаптивной иммунной сети, дрозофила поддерживает сложную врожденную иммунную систему, содержащую класс фагоцитов, известных как гемоциты. Эти иммунные клетки были ранее идентифицированы как макрофагоподобные клетки, которые мигрируют к месту повреждения12,13 и подвергаются фагоцитозу во время септического шока14, внедрения паразита15 или вирусной инфекции16.
Важно, что, как и макрофаги млекопитающих, фагоцитарные гемоциты экспрессируют синтазу оксида азота (NOS) и производят оксид азота (NO), критический сигнальный компонент иммунитета дрозофил 15,16. Все эти исследования, однако, смогли продемонстрировать реакцию гемоцитов только во время эмбрионального развития и у личинок.
Наша лаборатория наблюдала сильное, опосредованное гемоцитами нейровоспаление в мозге взрослых дрозофил, ранее неизвестное явление17. Эта реакция была вызвана воздействием токсиканта параквата. Эпидемиологические исследования, проведенные Национальными институтами здравоохранения, определили широко используемый гербицид как потенциальный фактор риска возникновения болезни Паркинсона у людей18. Исследования, изучающие лечение паракватом на моделях млекопитающих, уже подтвердили его нейротоксические свойства и показали, что гербицид приводит к симптомам болезни Паркинсона, таким как двигательные аномалии и избирательнаяпотеря нейронов. У дрозофил лечение паракватом приводит к широкому спектру поведенческих фенотипов Паркинсона, а также к гибели дофаминергических нейронов в соответствии с патологией БП22. Хотя механизмы и генетические факторы, связанные с этой нейровоспалительной реакцией, еще не полностью выяснены у дрозофил, мы наблюдали консервативную индукцию NOS во время нейродегенерации.
Используя этот метод, мы дополнительно обнаружили аналогичную, хотя и менее драматичную, нейровоспалительную реакцию с использованием мутантных генотипов с известной нейротоксической чувствительностью. Кодируемая геном Punch, циклогидролаза GTP является первым и ограничивающим скорость белком в биосинтезе BH4, который затем выступает в качестве необходимого кофактора для NOS23,24. Мутация PuZ22, приводящая к потере функции, вызывает снижение воспалительной реакции и повышенную восприимчивость к параквату25. С помощью этого протокола мы смогли количественно оценить относительно тонкие модификации уровней оксида азота, вызванные этой генетической вариацией.
Для обнаружения NO в наших образцах мы используем реагент Грисса, широко распространенный колориметрический метод измерения уровня NO. Этот реагент косвенно измеряет относительное содержание оксида азота, обнаруживая присутствие нитритов, одного из двух конечных продуктов производства оксида азота. Существующие протоколы обнаружения нитритов с использованием реагента Грисса применялись в основном для анализа in vitro или в культурах клеток, где NO диффундирует в питательную среду. Первоначально мы разработали метод на основе реагента Грисса для обнаружения NOS в гомогенатах головки сырой дрозофилы 25. Тем не менее, мы обнаружили, что этот метод несколько варьируется в зависимости от измененных условий, предположительно из-за нестабильности, высокой реактивности и низкой относительной концентрации NO во всех тканях головы. Поэтому мы стремились разработать метод, основанный на протоколах клеточных культур, который позволил бы повысить чувствительность и надежность количественной оценки активности NOS. Здесь мы описываем метод, концептуально схожий с тем, который ранее использовался для обнаружения NOS в мальпигиевых канальцах26 личинок дрозофилы. В этой процедуре мы используем целый мозг, который был расчленен сразу после лечения токсинами, чтобы вызвать воспалительную реакцию. Затем мы инкубировали эти образцы в среде для культивирования насекомых, чтобы сохранить целостность ткани и повысить чувствительность и надежность анализа на основе реагентов Грисса.
Мы ожидаем, что с использованием сложных генетических инструментов эта модель может служить многообещающей утилитой для исследования динамической сети воспаления/нейродегенерации. Обладая способностью точно количественно оценивать активацию и относительную интенсивность нейровоспалительной реакции, этот новый анализ создает первичную культуру тканей, способную обнаруживать секретируемые нейровоспалительные маркеры. Этот метод предлагает модели воспаления на малых организмах недорогой, высокочувствительный метод для быстрого анализа образцов всего организма или живых тканей там, где ранее их не хватало.
Протокол
1. Воздействие параквата
- Поддерживайте культуры подопытных мух на стандартной питательной среде для дрозофил при температуре 25 °C при эквивалентной плотности культуры, состоящей примерно из 35 самок и 15 самцов.
- Чтобы подготовить камеры для кормления, положите небольшое количество абсорбирующей ваты на дно пустого флакона с фильтровальной бумагой прямо над ватой.
- Обезболите взрослого самца мухи через 3-5 дней после эксклозии с помощью холодной комы илиСО2. Для описанных здесь экспериментов используйте самцов генотипа y w1118.
- Для отделения холодной комы постучите по флаконам с кормушками, содержащими мух, а затем быстро снимите пробку и переложите мух прямо в чистую пустую пробирку, убедившись, что она правильно промаркирована.
- После того, как мухи успешно пересадятся в пустые флаконы с едой, опустите флаконы, затем немедленно поместите в ведро со льдом на 5 минут или пока мухи не будут выбиты><.
заметка: Не погружайте флакон полностью в лед. Это может привести к попаданию воды или влаги в флакон и утопить мух. В качестве еще одной меры предосторожности используйте свежий лед, а не растаявший лед в ведрах со льдом.
заметка: Обратите пристальное внимание на количество мух, необходимое для каждого анализа, и, по возможности, добавьте дополнительные мухи в каждую группу в качестве меры предосторожности в случае человеческой ошибки, например, побега мух во время кормления или переноса. Например, для определения оксида азота требуется 20 мозгов мух на каждый набор образцов, поэтому учитывайте уровень мастерства и эффективность препарирования при кормлении (т.е. новички должны установить более 20 мух в случае ошибок переноса или препарирования).
- После того, как мухи будут обезболены, переложите каждую группу в соответствующую пробирку для кормления, как приготовлено выше.
- После того как мухи полностью проснутся в флаконах для кормления, уморите их голодом в течение 1,5 часов и тем временем приготовьте растворы, описанные ниже:
- Приготовьте стоковый раствор из 5% сахарозы (контрольный раствор), добавив 5 г сахарозы в 100 мл дважды дистиллированной воды. Перемешайте до полного растворения и храните при температуре 4 °C.
заметка: Используйте 5% раствор сахарозы в качестве растворителя для всех последующих питательных растворов. - Приготовьте исходный раствор параквата 10 мМ, используя 5% сахарозу в качестве разбавителя и храните при температуре 4 °C. Приготовьте все остальные концентрации, используя последовательные разведения по мере необходимости.
ВНИМАНИЕ: ПАРАКВАТ ЧРЕЗВЫЧАЙНО ТОКСИЧЕН. ОБРАТИТЕСЬ К ПАСПОРТУ БЕЗОПАСНОСТИ ДЛЯ ПОЛУЧЕНИЯ РЕКОМЕНДАЦИЙ ПО БЕЗОПАСНОСТИ И НАДЛЕЖАЩЕМУ ОБРАЩЕНИЮ/УТИЛИЗАЦИИ. - Приготовьте 10 мМ стоковых растворов N-Nitro-L-аргинина метилового эфира гидрохлорида (L-NAME), N-нитро-D-аргинина метилового эфира (D-NAME) с использованием 5% сахарозы в качестве разбавителя и храните при 4 °C. Для коинкубации L-NAME или D-NAME с паракватом вводите каждое соединение в соотношении 1:1 с концентрацией параквата. При необходимости приготовьте все остальные концентрации, используя последовательные разведения.
заметка: Процедите все растворы сразу после приготовления. Запасы параквата, D-NAME и L-NAME следует использовать в течение одной недели после подготовки, чтобы обеспечить согласованность эксперимента. - Пипетку 150 μл в день (или меньше, в зависимости от продолжительности кормления) питательного раствора на фильтровальную бумагу, стараясь не утопить мух и не дать им убежать.
- Приготовьте стоковый раствор из 5% сахарозы (контрольный раствор), добавив 5 г сахарозы в 100 мл дважды дистиллированной воды. Перемешайте до полного растворения и храните при температуре 4 °C.
2. Анализ выживаемости/смертности
- Настройте камеры кормления, как описано выше.
заметка: Используйте не менее 3 слоев фильтровальной бумаги на флакон, чтобы предотвратить высыхание. - Поместите 10 самцов мухи через 3-5 дней после посева в каждую пробирку и кормите, как указано выше, стараясь не дать фильтровальной бумаге высохнуть в течение ночи><. заметка: Храните флаконы при комнатной температуре, вдали от прямых солнечных лучей, чтобы избежать ускорения испарения растворов.
- Начиная со следующего дня (обозначенного как «День 1»), рекордное количество мертвых мух во флаконе два раза в день в течение 10 дней подряд.
заметка: Регулируйте подсчет очков и кормление в определенные часы каждый день, чтобы уменьшить вариации и обеспечить более высокую стабильность. - Рассчитайте среднюю выживаемость, используя как минимум три независимые репликации всех групп.
3. Препарирование мозга взрослой мухи и инкубация
- Перед вскрытием нанесите пипетку объемом 50 мкл среды Grace's Insect Medium в соответствующее количество лунок (по одной лунке для каждого набора образцов + одна для «заготовки»/контроля) в 96-луночный микротитровальный планшет и соответствующим образом пометьте. Накрыть крышкой тарелки до использования.
заметка: В качестве альтернативы при желании также могут быть использованы стерильные центрифужные пробирки. - Обезболите мух одним набором проб с помощью холодной комы, как описано в пунктах 1.3.1-1.3.2.
- После того, как мухи будут полностью обезболены, поместите несколько мух на предметное стекло микроскопа
заметка: Начните с небольшой группы мух, если у вас нет опыта вскрытия. - Обезглавьте головы мух под микроскопом для вскрытия с помощью щипцов и хирургического лезвия или двух щипцов, отбрасывая тела мух, когда это будет сделано.
- Используйте небольшое количество PBS в качестве буфера для рассечения; необходимо избегать высыхания.
- Извлеките весь мозг по методу Williamson & Hiesinger (2010)27, тщательно удаляя частицы кутикулы и любые ткани, не относящиеся к мозгу (например, пигментную ткань глаза) (см. рисунок 1).
- Перенесите расчлененный мозг в лунку с соответствующей маркировкой и повторяйте до тех пор, пока в лунке не останется минимум 20 мозгов.
- В период вскрытия планшеты следует держать на льду и не превышать 20-30 минут общего времени между началом вскрытия и началом анализа.
заметка: Можно использовать более 20 мозгов при условии, что каждая группа имеет одинаковое количество в каждой скважине. Минимальное количество мозгов для достижения точного чтения может варьироваться (подробнее см. раздел «Обсуждение»). - После того, как рабочий набор будет завершен, дайте мозгу инкубироваться в течение 6 часов при температуре 25 °C с легким встряхиванием.
- Выполните шаги 1.2-1.6 для всех остальных групп.
заметка: Записывайте и корректируйте время окончания инкубации в зависимости от разницы между моментами завершения каждого набора образцов.
4. Подготовка в период инкубации
- Приготовьте реагент Modified Griess в соответствии с указаниями производителя (см. таблицу) и храните в темноте до использования. Количество необходимого реагента зависит от количества образцов. Например, реагент Грисса будет добавлен в соотношении 1:1 к среде Грейс (шаг 5.5). Поэтому следует приготовить 50 мкл на набор образцов + 50 мкл для контроля бланка.
- Постройте стандартную кривую нитритов с использованием нитрита натрия в последовательном разведении в диапазоне от 0,78125 до 100 мМ нитрита в общей сложности 8 концентраций.
заметка: Это следует делать для каждого эксперимента, чтобы обеспечить постоянство и точность концентрации образца и активности реагента Грисса. - Кроме того, подготовьте и промаркируйте стерильные центрифужные пробирки объемом 0,5 мл, по две пробирки для каждой группы лечения и две для контрольной.
5. Определение уровня нитритов
- По окончании инкубационного периода перенесите среду Grace's Medium (не менее 45 мкл) из лунок микротитров в первый набор центрифужных пробирок, соответствующих каждой группе><. заметка: Как уже отмечалось ранее, обязательно учитывайте различия в инкубационных периодах из-за времени, прошедшего между каждым набором вскрытий.
- Необязательный шаг: Добавьте нитратредуктазу и NADPH на этом этапе, чтобы превратить нитраты в нитриты. (Этот шаг не был выполнен на показанных результатах)
заметка: При желании может быть проведен анализ нитратов/нитритов с использованием аликвоты надосадочной жидкости образца, как описано в наборах для анализа. - Осторожно центрифугируйте (около 8,175 x g) в течение 2 минут, чтобы удалить любые частицы мозга или тканей, которые могли быть аспирированы из лунок.
- Пипетируйте 30 мкл надосадочной жидкости из первого комплекта пробирок центрифуги во второй комплект соответствующих пробирок, следя за тем, чтобы не нарушить гранулу после отжима образцов.
- Добавить реагент Грисса в соотношении 1:1, инкубировать 5-10 мин и провести анализ с помощью спектрофотометра NanoDrop при поглощении 548 нм в течение 30 мин.<бр/> Примечание: Образцы также могут быть проанализированы с помощью считывателя микропланшетов на длине волны поглощения 540 нм и опорной длине волны 620 нм.
- Повторяйте каждое показание не менее трех раз и усредняйте показания.
заметка: Обязательно «заглушайте» машину между каждыми 6-10 показаниями, а перед завершением запустите контроль холостого (Grace's Medium плюс реагент Грисса без мозгов) в качестве образца для использования в качестве стандартного отклонения. - Используйте стандартную кривую нитритов, созданную на шаге 4.2, для расчета относительных уровней нитритов в каждом образце.
- Чтобы рассчитать неизвестные концентрации, сначала построите график значений известных концентраций из стандартной кривой, используя поглощение (т.е. оптическую плотность) по оси y и концентрацию по оси x.
- После того, как все стандартные значения кривой будут построены на графике, найдите наклон линии наилучшего вписывания и решите уравнение для x.
заметка: Если серийное разведение выполнено правильно, линия наилучшего прилегания должна быть линейной или очень близкой к ней. Если это не так, восстановите стандартную кривую. Если проблема не устранена, проверьте все растворы, среды и реагенты на предмет истечения срока годности и убедитесь, что оборудование работает должным образом и находится в пределах зоны обнаружения. - Затем просто подставьте значения поглощения для y и решите для x, который представляет концентрацию.
Для получения дополнительной информации об использовании оборудования NanoDrop обратитесь к Desjardins et al. 2009 и Desjardins & Conklin, 201028,29.
6. Западный блот
- Накормите 30 мух в каждом состоянии, как описано выше, и обезглавьте головы, желательно с помощью жидкого азота и вортексирования.
- Гомогенизируйте целые головы на льду в буфере RIPA объемом 60 мкл с 2 мМ дитиотреитолом (DTT) и 1x коктейлем ингибитора протеазы, добавленным непосредственно перед использованием.
- Отверняйте образцы в течение 5 минут при 8,175 x g при 4 °C.
- Перенесите надосадочную жидкость в новые центрифужные пробирки.
- Аккуратно перемешайте образцы и пипетируйте 17 мкл надосадочной жидкости в центрифужные пробирки, содержащие 6,5 мкл 4x LDS буфера для проб и 2,5 мкл 500 мМ DTT.
заметка: Оставшийся образец мгновенно замораживают в жидком азоте и хранят при температуре -20 °C до использования. - Хорошо перемешайте образцы и нагревайте при температуре 70 °C в течение 10 минут, перемешав один раз в середине инкубации.
- Во время нагрева соберите полиакриламидный гель-электрофорез (PAGE) беговой аппарат с использованием сборного 4-12% минигеля NuPage Bis-Tris, рабочего буфера MOPS SDS с антиоксидантом 500 мкл во внутренней камере.
- Быстро отжимаем образцы и даем остыть.
- Загрузите по 25 μл в каждую дорожку.
- Запустите гель-электрофорез при напряжении 200 В на льду или при 4 °C в течение 45 минут или до полного образования геля.
- После завершения электрофореза перенесите разделенные белки из геля на мембраны из нитроцеллюлозы с помощью iBlot Transfer Stacks и детектируйте сигнал с помощью Western Blot Detection Kit.
заметка: Используемые антитела: первичные антитела мыши α-nNOS (1:250), мышиный α-синтаксин (1:200); вторичные антитела (1:250) поставляются в наборе Western Blot Detection Kit (мышь). - Обнаружение хемилюминесцентного сигнала с помощью системы визуализации вестерн-блоттинга или рентгеновской пленки.
Примечание: Для блот-анализа можно использовать любые стандартные методы обнаружения и количественной оценки иммуноблота.
Результаты
Было показано на многочисленных моделях животных, таких как мыши19, крысы20 и плодовые мушки22, что паракват вызывает нейродегенерацию, соответствующую патологии, характерной для болезни Паркинсона. Ранее мы сообщали, что противовоспалительный антибиотик миноциклин при совместном введении с паракватом приводит к увеличению выживаемости, снижению продукции активных форм кислорода и предотвращению гибели дофаминергических нейронов25. Поскольку миноциклин подавляет воспаление, мы начали изучать NOS — ключевой белок в активации воспалительного ответа — и его роль в модуляции токсичности параквата.
Для определения эффективной летальной дозы и диапазона токсического воздействия была построена кривая токсичности параквата с использованием концентраций параквата от 1,25 до 10 mM (Рисунок 2A). Мы также исследовали воздействие концентраций параквата 20 mM и 40 mM, однако обнаружили, что при таких высоких концентрациях токсичность была слишком острой для точной оценки клеточных ответов на этот окислительный стрессор, поэтому результаты для данных концентраций не были включены в настоящий отчет. С помощью L-NAME, конкурентного ингибитора NOS, и D-NAME, неактивного изомера NAME, мы проводили совместную обработку взрослых самцов мух паракватом и одним из изомеров NAME. Совместная обработка мух паракватом и L-NAME привела к значительному восстановлению продолжительности жизни, сокращенной вследствие приема параквата, в то время как у мух, подвергнутых совместному воздействию параквата и D-NAME, улучшений выживаемости не наблюдалось (Рисунок 2B), что подтверждает гипотезу о том, что подавление воспаления посредством ингибирования NOS повышает выживаемость мух, обработанных паракватом.
Для дальнейшего подтверждения паракват-ответа, опосредованного NOS, мы определили изменения уровней белка NOS непосредственно после воздействия параквата. Уровни белка NOS повышались в зависимости от концентрации параквата (Рисунок 3A). При воздействии на мух 10 мM параквата в течение времени от 6 до 30 ч мы наблюдали первоначальный рост, а затем снижение уровня белка по мере увеличения времени воздействия (Рисунок 3B), что согласуется с динамикой уровней нитритов, наблюдавшейся в нашем варианте анализа по Гриссу (Рисунок 5B). Эти результаты согласуются с нашими данными о том, что обработка паракватом вызывает индукцию NOS, а ингибирование NOS или обработка L-NAME или миноциклином обеспечивает частичную защиту17,25.
Рисунок 4A демонстрирует линейную зависимость между увеличением концентрации параквата и величиной воспалительного ответа, определяемой по секреции и детекции NO. При базовых уровнях гетерозиготные мутанты Punch секретировали NO в чуть меньших количествах, и эта разница была слишком незначительной, чтобы ее можно было определить с помощью предыдущих методов детекции. При скармливании параквата у мутантов Punch наблюдалось выраженное повышение уровней NO, однако оно было значительно ниже, чем у обработанных мух дикого типа (Рисунок 4B). Относительные значения для мух дикого типа и мутантов Punch могут быть точно и воспроизводимо количественно определены, хотя различия при необработанных уровнях были крайне незначительными.
При работе с токсинами или химическими веществами крайне важно построить как кривую зависимости от времени воздействия, так и кривую токсичности в зависимости от концентрации, поскольку эти условия могут существенно изменить чувствительность анализа. Например, обработка 5 mM параквата приводит к максимальному обнаружению NO через 24 ч воздействия (Рисунок 5A), в то время как воздействие 10 mM параквата привело к более быстрой индукции (максимальные уровни через 12 ч), но также и к более быстрому снижению активности при длительном воздействии (Рисунок 5B). Хотя более высокая концентрация с быстрой индукцией может показаться предпочтительной, максимальный ответ ускоряет гибель как нейронов, так и, возможно, гемоцитов до такой степени, что воспроизводимость результатов может затрудниться.
Молекулы NO нестабильны и обладают высокой реакционной способностью. Таким образом, успешный анализ должен включать условия инкубации, обеспечивающие оптимальный баланс между непрерывной индукцией NOS и быстрым оборотом NO. Чтобы определить оптимальные условия инкубации, мы оценили влияние времени инкубации вырезанных головного мозга в культурной среде перед добавлением реагента Грисса. Мы обнаружили, что 6-часовая инкубация при комнатной температуре обеспечивала максимальные уровни нитритов в последующей реакции Грисса (Рисунок 5C). Мы полагаем, что для оптимизации детекции в различных моделях воспаления может потребоваться варьирование периода инкубации. Поскольку данный процесс весьма динамичен, для получения надежных и точных результатов крайне важно тщательно установить все оптимальные параметры для конкретного организма, генотипа и исследуемой ткани. В частности, ожидается, что генетические варианты и модели экспрессии трансгенов потребуют значительной оптимизации, особенно в отношении стадии развития или возраста взрослых особей.
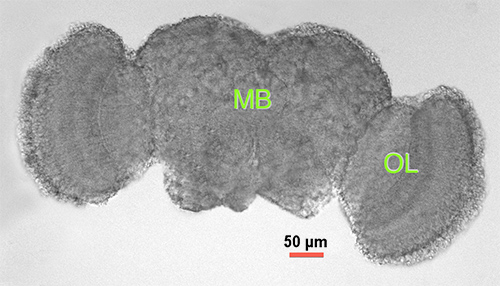
Рисунок 1. Мозг взрослой особи Drosophila. Световая микроскопия препарированного мозга взрослого самца через 2-3 дня после выхода из куколки. MB = средний мозг (центральная кора), OL = зрительная доля.
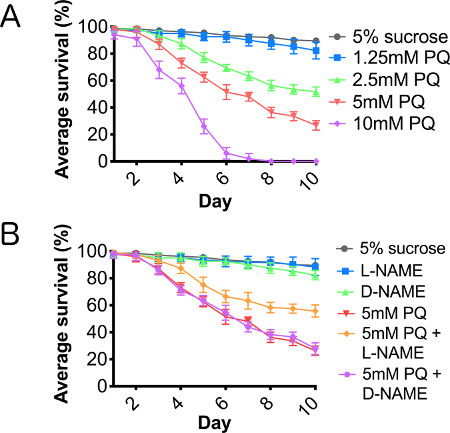
Рисунок 2. Паракват вызывает дозозависимое сокращение продолжительности жизни, опосредованное синтазой оксида азота. Самцы мух дикого типа, получавшие (A) 5% сахарозу (контроль) и последовательные разведения параквата в концентрации от 1,25 до 10 mM в 5% сахарозе, а также (B) сочетание параквата с L-NAME или D-NAME в течение 10 последовательных дней. N = 3 группы по 10 особей. Планки погрешностей = SEM.
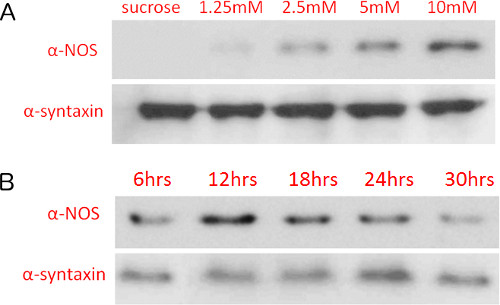
Рисунок 3. Уровни белка синтазы оксида азота увеличиваются с ростом концентрации параквата и продолжительности воздействия. Иммуноблот-детектирование уровней синтазы оксида азота у мух, подвергнутых воздействию различных (A) концентраций параквата (12 ч воздействия) и (B) 10 mM параквата при различной продолжительности воздействия. Уровни белка определяли на нитроцеллюлозных мембранах с помощью хемилюминесценции и экспозиции на рентгеновской пленке.
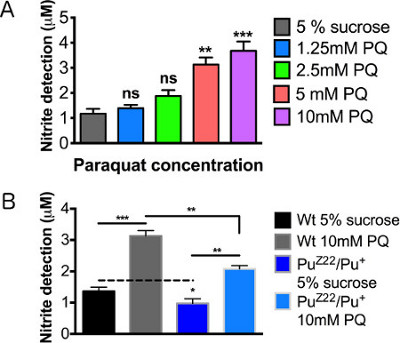
Рисунок 4. Уровни содержания оксида азота после воздействия параквата. Анализ проводили с самцами мух дикого типа (WT) через 2-3 дня после вылета из куколки после 12 ч кормления. (A) Кривая зависимости от концентрации параквата. (B) Самцы гетерозиготных мутантов Punch, получавшие контрольную сахарозу и 10mM параквата. N = 20 мозгов/группа. Результаты представляют 3 повторности для каждой группы. Планки погрешностей = SEM. Статистический анализ проводили с помощью однофакторного ANOVA с последующим апостериорным тестом Даннетта (*, p < 0.05, **, p < 0.01, ***, p < 0.001).

Рисунок 5. Оптимизация определения продукции оксида азота путем изменения продолжительности воздействия параквата и времени инкубации тканей. Относительные уровни оксида азота в головном мозге самцов через 2-3 дня после выхода из куколки после 12-часового воздействия (A) 5 mM параквата и (B) 10 mM параквата. (C) Кривая NO при различных периодах инкубации тканей после 12-часового кормления 10 mM паракватом. Значения значимости рассчитывались относительно следующих групп: (A, B) контрольных групп с 5% сахарозой для каждого времени воздействия (не показано на графике), (C) контрольных групп с 5% сахарозой для каждого времени инкубации (не показано на графике). N = 20 мозгов/группа. Результаты представляют 3 повторности на группу. Планки погрешностей = SEM. Статистический анализ проводился с использованием однофакторного ANOVA с последующим тестом Даннетта для множественных сравнений (*, p<0.05, **, p<0.01, ***, p<0.001).
Обсуждение
Этот метод, хотя и простой в подходе, обеспечивает экономически эффективный, высоковоспроизводимый и чрезвычайно чувствительный метод количественной оценки уровней NOS-опосредованного нейровоспаления. Как показано в разделе «Результаты», существует множество переменных, которые можно настроить для усиления или оптимизации реакции в различных моделях индукции или организмах. Однако, поскольку это очень чувствительная система, эти переменные также могут привести к сильно изменчивым результатам, если не будут тщательно обработаны все аспекты протокола. При первом тестировании с использованием любой модели мы рекомендуем настроить параметры путем тестирования переменных, которые включают концентрацию химических веществ (рисунок 4A), продолжительность воздействия (рисунки 5A и 5B) и продолжительность инкубации (рисунок 5C). Помните о других переменных, таких как количество образцов мозга/тканей, необходимых для достижения порога обнаружения и согласованности, даже при применении этого метода к аналогичным моделям дрозофил. Кроме того, в возрастно-зависимых генетических моделях воспаления потребуется расширенная временная оптимизация.
Как уже упоминалось выше, из-за чувствительного характера анализа несоответствия в протоколе могут привести к недостоверным результатам. Учитывая это, все оборудование и материалы были стерилизованы перед использованием. Из-за короткого времени инкубации в этих экспериментах в питательные среды не добавляли антибиотики. Однако, если протокол адаптирован для более длительного времени инкубации или если в культурах или средах наблюдается рост бактерий, следует добавить типичные питательные антибиотики, такие как пенициллин-стрептомицин, и повторно стерилизовать оборудование. Как и в любых экспериментах по химической обработке, следует проявлять осторожность, чтобы убедиться, что все группы выращиваются в хорошо контролируемых условиях, соответствуют полу и возрасту, и все группы получают абсолютно одинаковые условия кормления. Некоторые примеры условий кормления, которые следует учитывать, включают изменения концентраций, наличия и доступа к источнику кормления, продолжительности кормления и времени суток кормления. Подробные записи для всех экспериментальных условий и пристальное внимание к естественным моделям питания вашей модели помогут свести к минимуму изменчивость. Если используются мутантные или трансгенные штаммы, которые влияют на нейронные схемы или поведенческие паттерны, важным контролем будет мониторинг пищевого поведения.
Опять же, несмотря на то, что аналогичные протоколы доступны в клеточных культурах и лизатах, одним из основных преимуществ этого метода является то, что целостность ткани сохраняется, что позволяет практически всем клеточным отношениям в мозге оставаться нетронутыми. Эта система представляет собой относительно естественное, in vivo состояние нейровоспалительной сигнализации и клеточной секреции. Этот метод, установленный у дрозофил, может быть легко адаптирован к другим малым модельным организмам и не ограничивается центральной нервной системой, как показано в аналогичном применении для передачи сигналов NO в модели мальпигиевых канальцевдля функции почек. Наиболее значительным преимуществом этого протокола на сегодняшний день является возможность манипулировать этим анализом и адаптировать его в соответствии с потребностями и интересами исследователя или модельной системы.
Благодаря использованию комбинированных химико-генетических подходов, этот анализ может значительно расширить возможности малых модельных систем по исследованию механизмов, генетических компонентов и химических модуляторов воспаления.
Раскрытие информации
Авторы заявляют об отсутствии конкурирующих финансовых интересов.
Благодарности
Мы благодарим доктора Гая и доктора Кима Колдуэлла за использование их спектрофотометра NanoDrop во время разработки этого анализа, а также Дж. Разработка этого метода финансировалась за счет гранта Национального института здравоохранения (NS-078728) компании J.M.O.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Feeding Chambers | |||
| Empty Drosophila флакон | Genesee Scientific | #32-116 | |
| Впитывающий хлопок | Можно использовать любой стандартный продукт. | ||
| Фильтровальная бумага | Fisher | #09-802-1B | |
| Paraquat exposure | |||
| Sucrose | Sigma-Aldrich | #S0389 | |
| Паракват (метилвиологен дихлоргидрат) | Sigma-Aldrich | #856177 | Токсичный. Обращайтесь с осторожностью и в соответствии с рекомендациями MSDS |
| L-NAME (N-Nitro-L-аргинина метиловый эфир гидрохлорид | Sigma-Aldrich | #N5751 | |
| D-NAME (N-Nitro-D-аргинин метиловый эфир гидрохлорид | Sigma-Aldrich | #N4770 | |
| Препарирование мозга взрослых мух и инкубация | |||
| Grace's Insect Medium | Invitrogen | #11605-094 | Grace's Medium также может быть заменен на Sf-900 II SFM или Sf-900 III SFM Medium для более высокой однородности от партии к партии. |
| 96-луночный планшет | Corning | #3596 | Можно использовать любой стандартный продукт. |
| стекло для микроскопа | Можно использовать любое стандартное изделие. | ||
| Хирургическое лезвие | Feather | #0197 | Можно использовать любое стандартное изделие. |
| Медицинский пинцет 5 | Dumont | EMS #72877-D | Можно использовать любое стандартное изделие. |
| 10x PBS буфер | OmniPur | #6508 | |
| Определение уровня нитритов | |||
| Модифицированный реактив Грисса | Sigma-Aldrich | #4410 | |
| Нитрит натрия | Sigma-Aldrich | #S2252 или #237213 | |
| Набор для анализа белка | Bio-Rad | 500-0001 | |
| Cuvettes | Можно использовать любое стандартное изделие. | ||
| Нитратредуктаза | опционально | ||
| NADPH | опционально | ||
| Western Blot AnalysisRIPA | |||
| буфер для лизиса | Amresco | 97063-270 | |
| дитиотреитол (DTT) - восстановитель | Novex | B0009 | |
| коктейль ингибиторов протеазы | Amresco | 97063-082 | |
| 4x LDS буфер для образцов | Novex | B0007 | |
| Сборный 4-12% Bis-Tris minigel | Novex | BG04125BOX | |
| MOPS SDS беговой буфер | Novex | B0001 | |
| Антиоксидант | NuPage | NP0005 | |
| iBlot Transfer Stacks (нитроцеллюлоза) | Invitrogen | IB301002 | |
| вестерн-блоттинг набор для детектирования | Invitrogen | IB711002 | |
| мыши α-nNOS | BD Biosciences | 611853 | |
| мыши α-синтаксин | DSHB | 8C3 |
Ссылки
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
Перепечатки и разрешения
