Определенные генетические нарушения или воздействие токсинов могут нарушить нормальные процессы развития, приводящие к гибели определенных типов клеток. Анализ активированной каспазы 3 методом полной иммунофлюоресценции у эмбрионов рыбок данио выявляет стадийную и тканеспецифическую локализацию клеток, специфически подвергающихся апоптозу.
Методическая статья
Анализ апоптоза у эмбрионов данио рерио по целом монтажа иммунофлуоресценции для обнаружения активированного каспазы 3
В этой статье
Краткое содержание
Аннотация
Полная иммунофлуоресценция для обнаружения активированной каспазы 3 (анализ Casp3) полезна для идентификации клеток, претерпевающих либо внутренний, либо внешний апоптоз у эмбрионов рыбок данио. Анализ полного монтирования предоставляет пространственную информацию в отношении тканевой специфичности апоптозирующих клеток, хотя в конечном итоге требуется секционирование и/или совместное мечение для точного определения типов клеток, подвергающихся апоптозу. Анализ Casp3 в целом, оптимизирован для анализа фиксированных эмбрионов между 4-клеточной стадией и 32 часами после оплодотворения и полезен для ряда применений, включая анализ мутантов и морфантов рыбок данио, сверхэкспрессию мутантных и диких мРНК, а также воздействие химических веществ. По сравнению с окрашиванием акридином в оранжевый цвет, которое может идентифицировать апоптотические клетки у живых эмбрионов в течение нескольких часов, анализы Casp3 и TUNEL занимают значительно больше времени (2-4 дня). Тем не менее, из-за динамической природы формирования и клиренса апоптотических клеток, анализ фиксированных эмбрионов обеспечивает точное сравнение апоптотических клеток в нескольких образцах в определенные моменты времени. Мы также обнаружили, что анализ Casp3 превосходит анализ апоптотических клеток с помощью анализа TUNEL с точки зрения стоимости и надежности. В целом, анализ Casp3 представляет собой надежный, высоковоспроизводимый анализ, в котором можно анализировать апоптотические клетки ранних эмбрионов рыбок данио.
Введение
Здесь мы описываем, как провести полную иммунофлуоресценцию у ранних эмбрионов данио-рерио для обнаружения клеток с активированной каспазой 3 (далее - анализ Casp3). Общая цель этого метода заключается в выявлении относительной численности и расположения апоптотических клеток у рыбок данио-рерио от 4-клеточной стадии до 32-часового после оплодотворения (HPF).
Как внутренние (митохондриально-опосредованные), так и внешние (опосредованные рецепторами смерти) апоптотические пути опосредуют гибель клеток через активацию каскада каспаз1-2. Инициирующие каспазы обычно существуют в виде мономеров внутри клетки, и как только они рекрутируются на специфичные для пути платформы в ответ на проапоптотический сигнал, они становятся активированными димерами. Активированные инициирующие каспазы (Каспазы 9; внутренний путь и Каспаза 8; внешний путь) затем нацелены на преддимеризованные, неактивные эффекторные каспазы (Каспазы 3, 6, 7) для расщепления с образованием активных гетеротрамеров. Затем активные эффекторные каспазы расщепляют клеточные мишени специфическими остатками тетрапептида, чтобы инициировать специфическое протеолитическое разрушение, которое достигает кульминации в ультраструктурных признаках апоптоза, таких как конденсация хроматина и мембранный блеббинг, а также сигналы клеточной поверхности, которые опосредуют упаковку клетки для поглощения фагоцитами иммунным бесшумным образом. Считается, что в клетках млекопитающих активные эффекторные каспазы выполняют большинство событий клеточного расщепления, которые опосредуют апоптоз как по внутреннему, так и по внешнему путям1-2. В описанном здесь протоколе используется антитело, которое специфически связывается с расщепленной гетеротетрамерной формой каспазы 3, но не с неактивным димером каспазы 3.
Одним из преимуществ анализа Casp3 является возможность визуализации пространственного распределения апоптотических клеток в контексте всего эмбриона. Таким образом, представляющие интерес ткани могут быть исследованы на наличие апоптотических клеток, и если существуют антитела или флуоресцентные трансгенные штаммы, которые маркируют определенные типы клеток, то можно точно определить идентичность клеток, подвергающихся апоптозу, с помощью экспериментов по совместному мечению. Несколько групп успешно использовали активированную каспазу 3 в качестве маркера апоптоза у эмбрионов рыбок данио (например, 3-7). Дополнительные методы идентификации апоптотических клеток у эмбрионов рыбок данио-рерио включают анализ TUNEL8 и окрашивание акридином оранжевым (AO)9. Мы использовали все три метода для идентификации апоптотических клеток у эмбрионов рыбок данио4,6,10.
ОкрашиваниеTUNEL (терминальная дезоксинуклеотидилтрансфераза dUTP nick end labeling) использует фермент терминальную дезоксинуклеотидилтрансферазу (TdT), который используется для добавления нуклеотидов к 3'-гидроксильным концам ДНК во время рекомбинации VDJ в лимфоцитах11. TdT добавляет dUTP-биотин к свободным 3'-гидроксильным группам в ДНК, которые в изобилии присутствуют в основном в апоптотических клетках. Затем ткани подвергают воздействию авидин-пероксидазы, а апоптотические клетки окрашивают при добавлении субстрата 3-амино-9-этилкарбазола. Анализ TUNEL был использован для проведения обширного анализа апоптотических клеток во время эмбрионального развития в тканях рыбок данио дикого типа12. Как и анализ Casp3, анализ TUNEL проводится только на фиксированных эмбрионах. Мы обнаружили, что анализ Casp3 является более последовательным и менее дорогостоящим, чем анализ TUNEL.
AO окрашивание впервые было описано как механизм специфической идентификации апоптотических клеток у дрозофилы13. АО окрашивает как цитоплазму, так и ядро апоптотических, но не некротических клеток. Хорошо известно, что АО связывает нуклеиновые кислоты14, и считается, что это объясняет окрашивание ядер. Однако АО не окрашивает хроматин живых клеток; Скорее, по-видимому, специфические изменения, происходящие во время апоптоза, позволяют интеркаляцию и окрашивание конденсированных ядер апоптоза15. Преимущество окрашивания АО заключается в быстром апоптотическом анализе живых эмбрионов. Тем не менее, документирование образцов должно быть выполнено быстро из-за динамического характера образования и клиренса апоптотических клеток. С другой стороны, одновременная фиксация всех образцов обеспечивает моментальный снимок апоптоза в данный момент времени по всем образцам и не подвержена влиянию этой временной переменной. Таким образом, поскольку анализ апоптотических клеток с помощью окрашивания АО не совместим с неподвижными эмбрионами, анализ Casp3 является предпочтительным для экспериментов, в которых требуется фотографическое документирование и/или количественное определение нескольких образцов.
Протокол
1. Приготовление растворов
- Приготовьте 500 мл 1x PBST (1x PBS, 0,1% Tween-20) и простерилизуйте фильтром. 1x PBST можно хранить при комнатной температуре (RT) неограниченное время, пока нет признаков роста бактерий.
- ВНИМАНИЕ: Приготовьте 50 мл 4% параформальдегида (PFA) в химическом колпаке, растворив порошкообразный PFA в 1x PBS при 60 °C в течение 1 часа и накрыв алюминиевой фольгой для защиты от света. Хранить при температуре 4 °C в течение 1 месяца, или при -20 °C в течение 2 лет.
- Приготовьте 500 мл свежего 1x PDT (1x PBST, 0,3% Triton-X, 1% DMSO). 1x PDT можно хранить при 4 °C до одного месяца.
- Приготовьте 50 мл блокирующего буфера (1x PBST, 10% термоинактивированная фетальная фетальная бычья сыворотка, 2% бычий сывороточный альбумин). Создайте 10 мл аликвот и храните при температуре -20 °C до 1 года. После размораживания блокирующий буфер может храниться при температуре 4 °C до 48 часов.
- Приготовьте 100 мл 4% метилцеллюлозы, нагрев 30 мл воды до 80 °C. Добавьте 4 г метилцеллюлозы в горячую воду и перемешайте с помощью мешалки на тарелке комнатной температуры. Тщательное перемешивание обычно занимает от 4 часов до ночи. Добавьте оставшуюся (неподогревированную) воду и перемешивайте при температуре 4 °C в течение 1 часа. Храните в RT.
- При использовании эмбрионов между стадией хвостового зачатка и 32 hpf приготовьте 50 мл проназы в дозе 10 мг/мл и храните до 1 недели при температуре 4 °C. В противном случае храните в 10 мл аликвот при температуре -20 °C до 1 года.
- Поместите 50 мл 100% метанола при температуре -20 °C.
- Приготовьте 60x яичную воду, растворив 280 г растворимой морской соли быстрого приготовления в 2 л дистиллированной воды (как в Westerfield16). Приготовьте 1x яичную воду, разбавив 60x бульон в деионизированной воде.
2. Подготовка эмбрионов
- Соберите эмбрионы рыбок данио в чашке Петри в 1x яичной воде между 4-клеточной стадией и 32 hpf.
- Для эмбрионов между стадиями 4-клеточной и хвостовой почки, перейдите к шагу 2.2.
- Для эмбрионов между стадией хвостового зачатка и 32 HPF удалите хорионы, добавив 100 мкл 10 мг/мл проназы к эмбрионам в 10 мл 1x яичной воды.
- Примечание: Активность проназы может варьироваться между партиями. Таким образом, конечная концентрация проназы должна быть оптимизирована для дехорионации при получении новых партий.
- Дайте понервироваться при комнатной температуре в течение 30 минут.
- Слейте яичную воду / раствор проназы в отходы и медленно добавьте обратно свежую 1x яичную воду.
- Промойте 2 раза, слив имеющуюся яичную воду (и свободно плавающие хорионы), и аккуратно добавьте новую яичную воду.
- Примечание: Большинство хорионов следует удалить на этом этапе. С помощью передаточной пипетки осторожно всасывайте эмбрионы вверх и вниз, пока не будут удалены оставшиеся хорионы.
- Перенесите до 40 эмбрионов в пробирку объемом 1,5 мл. Смойте 2 раза 1 мл 1x PBST.
- Удалите PBST, оставив жидкость чуть выше эмбрионов (в пробирке должно остаться примерно 100 мкл объема). Добавьте 1 мл 4% PFA. Положите пробирки на бок (так, чтобы эмбрионы были распределены по длине пробирки) в контейнер подходящего размера для удобства транспортировки (например, чашку Петри или крышку от пипетки) и поместите на мягкую качалку при температуре 4 °C на ночь или на неделю.
- Для эмбрионов между стадиями 4-клеточного зачатка и хвостового зачатка вручную дехорионизируйте неподвижные эмбрионы с помощью щипцов.
3. Процедура иммунофлуоресценции
- Поместите пробирки в штатив для пробирок так, чтобы все эмбрионы опустились на дно пробирки. Удалите PFA (в соответствующий контейнер для отходов), оставив жидкость чуть выше уровня эмбрионов. После фиксации (шаг 2.3) эмбрионы никогда не должны подвергаться воздействию воздуха, чтобы предотвратить фоновое окрашивание антител.
- Добавьте 1 мл ледяного 100% метанола (для проникновения) по каплям. Эмбрионы теперь хрупкие после фиксации, и необходимо соблюдать особую осторожность, чтобы предотвратить их кувыркание внутри пробирки во время последующего удаления/добавления жидкости. Положите трубки на бок и поставьте при температуре -20 °C на 2 часа. В качестве альтернативы эмбрионы можно оставить при температуре -20 °C на срок до 24 часов.
- Поместите пробирки в штатив для сбора эмбрионов на дно пробирки. Удалите метанол, оставив жидкость чуть выше уровня эмбрионов.
- Осторожно добавьте 1 мл 1x PDT. Удалите ФДТ и добавьте 1 мл свежего 1х ФДТ. Положите трубки на бок и осторожно покачивайте при температуре RT в течение 30 минут. Удалите ФДТ и повторите 30-минутную стирку со свежим ФДТ.
- Удалите ФДТ до тех пор, пока жидкость не станет чуть выше уровня эмбрионов, и добавьте 500 мкл блокирующего буфера.
- Положите эмбрионы на бок в транспортировочный контейнер и убедитесь, что эмбрионы не перемещаются более чем на 2/3 вверх по длине трубы. В противном случае эмбрионы попадают в крышку пробирки и выходят за пределы жидкости.
- Осторожно поместите транспортировочный контейнер с трубками на очень мягкое качалку в режим RT на 1 час.
- Поставьте пробирки вертикально в штативе для пробирок и откройте все пробирки, чтобы проверить, нет ли эмбрионов застрявших на крышке. Для любых пробирок с эмбрионами на крышке закройте крышку и осторожно покачивайте пробирку вручную, чтобы вернуть все эмбрионы обратно в жидкость.
- Добавьте 1 мкл кроличьего антиактивированного антитела к каспазе 3 (разведение 1:500).
- При проведении эксперимента по совместному мечению просто добавьте соответствующее разведение второго антитела, полученного не из кроликов, в дополнение к антиактивированному антителу к каспазе 3.
- Осторожно положите эмбрионы на бок и осторожно покачивайте при комнатной температуре в течение 2 часов. В качестве альтернативы эмбрионы можно инкубировать при температуре 4 °C в течение ночи.
- Подставьте пробирки в штатив для труб. Удалите раствор блока/антитела. Добавьте 1 мл 1x PDT. Обязательно переверните трубку вручную, чтобы собрать все эмбрионы, застрявшие на крышке трубки. Затем откройте все пробирки, чтобы убедиться, что все эмбрионы были извлечены из крышки.
- Повторите шаг 3.4.
- Повторите шаги 3.5-3.10, но замените антиактивированное антитело к каспазе 3 соответствующим разведением антикроличьего флуорофор-конъюгированного антитела, которое поглощает синий свет и излучает зеленый. Тем не менее, здесь можно использовать любое флуорофор-конъюгированное антитело с предпочтительным для пользователя спектром поглощения/излучения. После добавления вторичного антитела важно держать эмбрионы в темноте до конца анализа. Накрывайте транспортировочный контейнер алюминиевой фольгой на этапах инкубации, но не беспокойтесь о воздействии света при смене буферов.
- При проведении эксперимента по совместному мечению просто добавьте соответствующее разведение комплементарного флуорофор-конъюгированного вторичного антитела на этом этапе.
- Примечание: Если пользователь желает совместно маркировать активную каспазу 3 с Gfp-экспрессирующими клетками, то за кроличьим антиактивным антителом к каспазе 3 следует следовать незеленым флуоресцентным вторичным антителом против кролика, а за антителом против GFP следует следовать зеленым флуоресцентным вторичным антителом, не являющимся кроликом. Это устранит путаницу, если после фиксации эмбрионов остается видимой некоторая флуоресценция Gfp.
4. Анализ апоптотических клеток методом флуоресцентной микроскопии
- Проанализируйте эмбрионы в 1x PDT в небольшой чашке Петри или стеклянной точечной пластине под флуоресцентным микроскопом с использованием соответствующего светофильтра. Если положительные элементы управления имеют яркую флуоресценцию с минимальным фоном, то переходим к пункту 4.2. (Если нет, обратитесь к разделу «Устранение неполадок» в разделе «Обсуждение» и повторите протокол с новыми эмбрионами.) Эмбрионы могут храниться при температуре 4 °C в 1x PDT до 48 часов.
- Насыпьте 4% метилцеллюлозу в чашку Петри 3,5 см, ровно столько, чтобы покрыть дно посуды. В качестве альтернативы можно использовать стеклянную точечную пластину или предметное стекло с большой каплей метилцеллюлозы в углублении. Осторожно отсосите эмбрионы со дна пробирки в чистую передаточную пипетку и перенесите в пластину Петри для визуализации.
- Ориентируйте интересующий эмбрион для документирования с помощью наклонного зонда. Вероятно, будет наблюдаться некоторая вариабельность между эмбрионами из одного и того же образца, поэтому важно делать изображения, которые отражают интенсивность и характер флуоресценции, наблюдаемые у большинства эмбрионов из этого образца. Документирование должно быть выполнено в течение 48 часов после завершения анализа, чтобы предотвратить накопление неспецифической фоновой флуоресценции. Остаточные 4% метилцеллюлозы не будут мешать последующим реакциям ПЦР, необходимым для генотипирования эмбрионов.
- Примечание: Чтобы помочь обездвижить эмбрион под определенным углом, полезно осторожно прижать эмбрион к дну формы так, чтобы желток или какая-либо другая часть эмбриона (в зависимости от желаемого вида) лежала на дне чашки. Затем с помощью зонда переместите либо эмбрион, либо непосредственно окружающую метилцеллюлозу (одновременно визуализируя под микроскопом), чтобы получить желаемый угол для документирования.
Результаты
Анализ Casp3 дает четкие доказательства наличия апоптотических клеток в период от 4-клеточной стадии до 32 часов после оплодотворения (hpf). Рисунок 2A показывает, что инъекция в эмбрионы высоких концентраций мРНК, кодирующих мощные проапоптотические белки семейства bh3-only, такие как Bim или Noxa, приводит к быстрому появлению активной каспазы 3 к стадии 4 клеток развития. После этого гибель эмбриона наступает в течение 1 часа.4. Обратите внимание, что интенсивность флуоресценции умеренная, однако результаты являются убедительными. На более поздних стадиях интенсивность флуоресценции становится более выраженной. Например, Рисунок 2B демонстрирует яркие активные Caspase 3-положительные клетки в эмбрионах на стадии сферы, в которые были введены умеренно токсические уровни мРНК, кодирующей проапоптотический BH3-only ген пумаМатричная РНК, кодирующая антиапоптотический bcl-2 ген вводили совместно, чтобы доказать, что введение пума мРНК индуцирует апоптоз через внутренний митохондриально-опосредованный путь.
Апоптоз, индуцированный ионизирующим излучением (ИИ) у данио-рерио, требует p53-опосредованной транскрипции генов семейства bh3-only, таких как puma5-6. Задержка апоптоза, индуцированного ИИ, показанная на Рисунке 3, согласуется с необходимостью p53-опосредованной транскрипции.
Протокол Casp3 должен обеспечивать высокое соотношение сигнал/шум. На рисунке 4 приводится сравнение оптимального результата анализа Casp3 с двумя распространенными субоптимальными результатами, которые возникают при нарушении критических этапов (см. раздел «Обсуждение»): низкое соотношение сигнал/шум из-за фоновой флуоресценции тканей животного и флуоресценции желтка, которая перекрывает интересующий сигнал.
Эксперименты по совместному мечению с использованием трансгенных линий, экспрессирующих GFP, позволяют выявить ткани, подвергающиеся апоптозу (Рисунок 5).
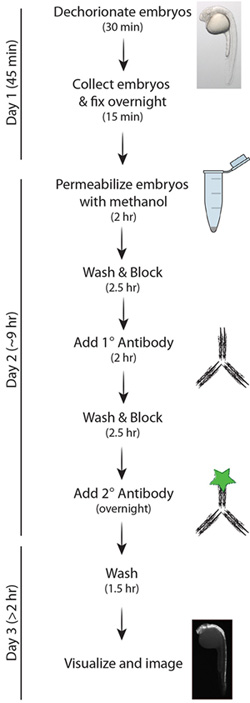
Рисунок 1. Упрощенная схема протокола Casp3.

Рисунок 2. (A) Анализ апоптоза в эмбрионах на стадии 4 клеток. На стадии одной клетки эмбрионы были инъецированы 50 pg мРНК, кодирующей egfp (контроль), или проапоптотическими bh3-only генами bim и noxa. На стадии 4 клеток (примерно через один час после инъекции, hpi) эмбрионы анализировали методом иммунофлуоресценции для обнаружения активированной Caspase 3. мРНК Bim и noxa индуцируют быстрый апоптоз в эмбрионах данио-рерио сразу после инъекции, что при дальнейшем развитии приводит к гибели к 2 hpi4. Для сравнения представлено светлопольное изображение эмбриона дикого типа на стадии 4 клеток. (B) Анализ апоптоза в эмбрионах данио-рерио на стадии сферы. На стадии одной клетки эмбрионы были инъецированы мРНК, кодирующей либо 50 pg egfp (контроль), 5 pg puma плюс 45 pg egfp (puma), либо 5 pg puma плюс 45 pg bcl-2 (bcl-2). На стадии сферы (примерно 4 hpi) эмбрионы анализировали с помощью анализа Casp3. Представлены изображения как сбоку, так и со стороны анимального полюса для визуализации апоптотических клеток. Спасение от индуцированного puma апоптоза с помощью bcl-2 указывает на то, что инъекция мРНК puma индуцирует апоптоз специфически через внутренний, митохондриально-опосредованный путь. Для сравнения представлено светлопольное изображение эмбриона дикого типа на стадии сферы.

Рисунок 3. Временной ход апоптоза, индуцированного ионизирующим излучением (IR), в период между 17-20 hpf. Эмбрионы zebrafish облучали дозой 8 Gy IR на стадии 17 hpf, затем анализировали с помощью анализа Casp3 через 0, 1,5, 2 и 3 часа после облучения (hpIR). Стрелки на стадии 20 hpf указывают на накопление апоптотических клеток в спинном мозге через 3 hpIR. Для сравнения приведено изображение эмбриона на стадии 17 hpf, полученное при светлопольном микроскопическом исследовании.
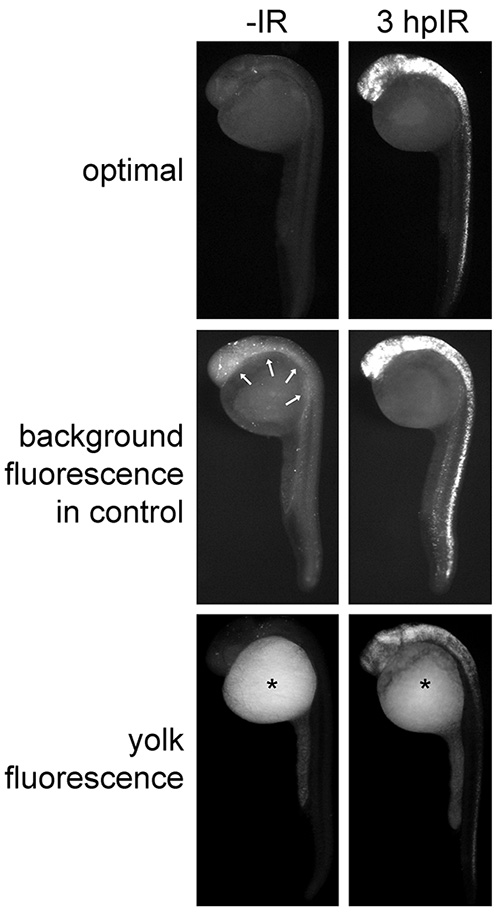
Рисунок 4. Оптимальные и субоптимальные результаты иммунофлуоресцентного окрашивания на Casp3 в эмбрионах в возрасте 27 hpf. Эмбрионы Danio rerio подвергали облучению (или нет) дозой 15 Gy на стадии 24 hpf с последующим анализом с помощью теста на Casp3. В группе с «оптимальным» результатом наблюдается идеальная картина, при которой апоптотические клетки ярко флуоресцируют, а неапоптотические клетки и желток демонстрируют минимальную фоновую флуоресценцию. Стрелками в группе «фоновая флуоресценция в контроле» отмечена избыточная фоновая флуоресценция в тканях контрольных эмбрионов. Звездочками в группе «флуоресценция желтка» показана избыточная неспецифическая флуоресценция в желтке.
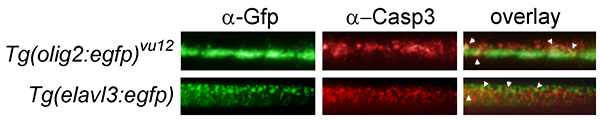
Рисунок 5. Эксперименты по совместному мечению позволяют определить тканеспецифичность апоптоза, индуцированного ионизирующим излучением (ИИ). Трансгенная линия Tg(olig2:egfp)vu12 маркирует мотонейроны и олигодендроциты17, а линия Tg(elavl3:egfp) маркирует все дифференцирующиеся нейроны18. Каждую трансгенную линию облучали дозой 15 Gy на стадии 24 hpf, после чего через 3 часа проводили анализ с использованием первичных антител: мышиных анти-GFP и кроличьих анти-активной-Caspase 3, с последующим применением вторичных антител с зеленым и красным флуоресцентными метками соответственно. Показано увеличение области спинного мозга (расположенного дорсально от конца желточного придатка эмбрионов на стадии 27 hpf, 3 hpIR). Апоптотические клетки, по-видимому, частично локализованы в популяциях как Tg(elavl3:egfp), так и Tg(olig2:egfp)vu12 (см. наконечники стрелок на совмещенном изображении), что указывает на чувствительность нейронов и олигодендроцитов к апоптозу, индуцированному ИИ.
Обсуждение
Анализ Casp3, представленный в данном протоколе, должен быть простым, и если его проводить в соответствии с инструкциями, то он должен обеспечить надежное отношение сигнал/шум. Важнейшие этапы этого протокола включают использование свежего 1x буфера PDT для всех промывок, достаточную продолжительность этапов промывки в буфере PDT после инкубации эмбрионов в первичном антителе, бережное обращение с эмбрионами и тщательный учет всех эмбрионов в пробирках или переносных пипетках на всех этапах протокола.
По нашему опыту, наиболее распространенными причинами отсутствия сигнала на положительном контроле являются: 1) 1x PBST заменяется на 1x PDT во время промывочных стадий, 2) 1x буфер PDT старше одного месяца, 3) было использовано неправильное вторичное антитело, 4) эмбрионы старше 32 hpf и/или 5) в одной пробирке было проанализировано более 40 эмбрионов. Когда в образцах возникают противоречивые результаты или вариабельность, это обычно происходит потому, что 1) не были приняты меры для обеспечения того, чтобы все эмбрионы оставались в жидкости все время процедуры, и/или 2) эмбрионы не инкубировались при достаточном качании. Высокий уровень фонового шума часто визуализируется как общая флуоресцентная дымка, возникающая по всей животной ткани эмбриона (см. рисунок 4, «фоновая флуоресценция»). Плохое соотношение сигнал/шум может возникнуть, когда 1) эмбрионы не были промыты в течение достаточного времени после первичного антитела и/или 2) эмбрионы были оставлены в PFA или метаноле дольше рекомендованного времени. Если эмбрионы не остаются интактными к концу анализа: 1) растворы не добавлялись по каплям после фиксации PFA, и/или 2) скорость качалки на этапах инкубации была установлена слишком высокой.
Визуализация целого монтирования, присущая анализу Casp3, полезна для пространственной локализации апоптотических клеток. Тем не менее, тканеспецифичность является приблизительной и, вероятно, будет зависеть от методов совместного мечения (см. рисунок 5) и/или секционирования эмбрионов для точного определения идентичности клеток, подвергающихся апоптозу. В описанном здесь протоколе совместное мечение ограничено требованием к специфическому антителу, полученному из кролика, используемому в нашем анализе. Мы не идентифицировали коммерчески доступное антиактивированное антитело к каспазе 3, полученное не из кроликов, которое специфически помечает апоптотические клетки с помощью иммунофлуоресценции полного массива у эмбрионов рыбок данио. Таким образом, специфические антитела клеточного типа, которые выращиваются у кроликов, не будут совместимы с анализом Casp3 для экспериментов по совместному мечению. Одной из альтернатив является проведение анализа TUNEL, для которого требуется антитело, полученное от мыши, для мечения апоптотических клеток6. Тем не менее, мы обнаружили, что цельный анализ TUNEL, проведенный на эмбрионах данио-рерио, очень чувствителен к ряду переменных в реакции, включая концентрацию фермента TdT, продолжительность инкубации эмбриона в ферменте TdT и количество эмбрионов, присутствующих в пробирке (наши неопубликованные наблюдения). Таким образом, сложно найти баланс ферментов, который дает последовательную интерпретацию результатов. Таким образом, предпочтительной альтернативой является анализ апоптотических клеток в трансгенных эмбрионах данио-рерио, которые экспрессируют флуорофор (с коммерчески доступными надежными антителами), такой как GFP, в определенном типе клеток. Затем можно провести эксперименты по совместному мечению с использованием первичного мышиного антитела против Gfp, за которым следует зеленое флуоресцентное антитело против мыши. Пример приведен на рисунке 5 .
В то время как протокол Casp3 обеспечивает надежное и надежное окрашивание апоптотических клеток у эмбрионов от 4-клеточной стадии до 32 hpf, его применение ограничено за пределами 32 hpf из-за неспособности антител проникать через кожу более старых эмбрионов. Дополнительные методы пермеабилизации эмбрионов, включая лечение коллагеназой, трипсином, ацетоном или этанолом, потенциально могут быть оптимизированы для адаптации этого анализа к анализу более старых эмбрионов. Окрашивание AO, однако, можно проводить на живых рыбках данио в возрасте от5 до 9 дней. Таким образом, анализ АО позволяет обойти ограничение эмбриональной стадии и представляет собой быстрый анализ апоптотических клеток (1-2 часа). В отличие от этого, анализ Casp3 требует ночной фиксации эмбрионов и занимает 2-4 дня для завершения. Недостатки анализа АО заключаются в том, что эффективное фотографическое документирование эмбрионов может быть затруднено при использовании нескольких образцов, поскольку эмбрионы живы, а апоптотические клетки быстро формируются и очищаются. Это может быть особенно проблематично, если эмбрионы необходимо монтировать для получения определенной ориентации для документации. Кроме того, мы обнаружили, что окрашивание АО уменьшается после фиксации с PFA, поэтому оно несовместимо с экспериментами по совместному мечению с использованием иммунофлуоресценции.
Количественный анализ активированной каспазы 3 может быть выполнен с использованием программного обеспечения, которое измеряет интенсивность флуоресценции документированных изображений. Мы количественно оценили ИК-индуцированный апоптоз в нервной ткани, метод, который мы подробно описали в другом месте10. В зависимости от эксперимента, количественный анализ активированной каспазы 3 может потребовать дальнейших манипуляций с эмбрионами, таких как плоская установка, для получения правильной ориентации для оптимального анализа тканей. Кроме того, линейность анализа будет зависеть от толщины анализируемой ткани. Например, мы проанализировали ИК-индуцированный апоптоз в нервной ткани, измерив иммунофлуоресценцию активной каспазы 3 в неглубокой нервной ткани спинного мозга, а не в плотной нейронной ткани мозга4,10.
По нашему опыту, анализ Casp3 является наиболее надежным и надежным анализом для анализа апоптоза у эмбрионов данио-рерио между 4-клеточной стадией и 32 hpf, когда анализ требует достаточно времени для документирования. Когда доступны соответствующие антитела или трансгенные линии для идентификации конкретных клеток, этот анализ также хорошо поддается совместному мечению для идентификации конкретных типов клеток, подвергающихся апоптозу.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Финансирование предоставлено Фондом Хантсмана по борьбе с раком (CJ, CT), грантом Американского онкологического общества #RSG-13-025-01-CSM (RS) и NIH T32 GM007464-36 (SS).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Тубы 1,5 мл | Denville Scientific | c2170 | Неопасен. Достаточно будет любых подобных пластиковых трубок длиной 1,5 м. |
| 10x Фосфатно-солевой буфер (PBS) | Sigma Aldrich | P5493 | Безопасный. |
| a-activated-human-caspase-3 | антитела Fisher Scientific | BDB559565 | может быть вредным при вдыхании или проглатывании. |
| Моноклональное антитело a-GFP (мышь) | Life Technologies | 33-2600 | Может быть вредным при вдыхании или проглатывании. |
| a-HuC/HuD человеческий нейронный белок, мышиный IgG2b, моноклональный 16A11 - UNCONJ | Life Technologies | A21271 | Может быть вреден при вдыхании или проглатывании. |
| Альбумин, бычий БСА Изоляция от теплового шока | Amresco | CAS 9048-46-8 | Неопасен. Также можно приобрести через Bioexpress: 0332-1006 |
| Alexa Fluor 488 Donkey anti-mouse IgG | Life Technologies | A11029 | Используйте при разведении 1:200. Может быть вреден при вдыхании или проглатывании. |
| Alexa Fluor 488 Donkey anti-Rabbit IgG | Life Technologies | A21206 | Использование при разведении 1:200. Может быть вреден при вдыхании или проглатывании. |
| Alexa Fluor 568 Donkey anti-Rabbit IgG | Life Technologies | A10042 | Использование при разведении 1:200. Может быть вреден при вдыхании или проглатывании. |
| Диметилсульфоксид (ДМСО) | Sigma Aldrich | D8418 | легковоспламеняющийся. |
| Щипцы Dumont #5 Inox (стандартные наконечники/прямые) | Fine Science Tools | 11251-20 | Sharp! |
| FBS HyClone Фетальная бычья сыворотка | Термофишер | SH3091003 | безопасен. |
| Ротатор Fisher Scientific Ocelot Ротатор | Fisher Scientific | 05-450-21 | Подойдет любой ротатор с ручным регулированием скорости. |
| Растворимая океанская аквариумная соль | Petco | 1373684 | безопасен. |
| Метанол (без ацетона) | Sigma Aldrich | M1775 | Легковоспламеняющийся: токсичен при вдыхании, проглатывании и контакте. |
| Метилцеллюлоза | Sigma Aldrich | M0387-1006 | Безопасная. |
| Параформальдегид | Sigma Aldrich | P6148 | Легковоспламеняющийся: токсичен при вдыхании, проглатывании и контакте. |
| Щуп (угловой 80 короткий/15,5 см/диаметр наконечника 0,15 мм) | Fine Science Tools | 10140-02 | Острый! |
| Pronase | Roche | 11459643001 | безопасен. |
| Pyrex Spot Plate Fisher | Scientific | 13-748B | Неопасный. |
| Пипетки трансферные, Samco общего назначения | Thermo-Scientific | 204 | Неопасные. |
| Triton X-100 | Sigma Aldrich | T8787 | Раздражающее вещество: вредно при приеме внутрь или контакте. |
| Tween-20 | Sigma Aldrich | P7949 | Неопасен. Другие бренды включают VWR #97063-872. |
Ссылки
- Tait, S. W., Green, D. R. Mitochondria and cell death: outer membrane permeabilization and beyond. Nat. Rev. Mol. Cell Biol. 11, 621-632 (2010).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: controlled demolition at the cellular level. Nat. Rev. Mol. Cell Biol. 9, 231-241 (2008).
- Eimon, P. M., et al. Delineation of the cell-extrinsic apoptosis pathway in the zebrafish. Cell Death Differ. 13, 1619-1630 (2006).
- Jette, C. A., et al. BIM and other BCL-2 family proteins exhibit cross-species conservation of function between zebrafish and mammals. Cell Death Differ. 15, 1063-1072 (2008).
- Kratz, E., et al. Functional characterization of the Bcl-2 gene family in the zebrafish. Cell Death Differ. 13, 1631-1640 (2006).
- Sidi, S., et al. Chk1 suppresses a caspase-2 apoptotic response to DNA damage that bypasses p53, Bcl-2, and caspase-3. Cell. 133, 864-877 (2008).
- Zhao, X., et al. Interruption of cenph causes mitotic failure and embryonic death, and its haploinsufficiency suppresses cancer in zebrafish. J. Biol. Chem. 285, 27924-27934 (2010).
- Yager, T. D., Ikegami, R., Rivera-Bennetts, A. K., Zhao, C., Brooker, D. High-resolution imaging at the cellular and subcellular levels in flattened whole mounts of early zebrafish embryos. Biochem. Cell Biol. 75, 535-550 (1997).
- Furutani-Seiki, M., et al. Neural degeneration mutants in the zebrafish, Danio rerio. Development. 123, 229-239 (1996).
- Sorrells, S., et al. Ccdc94 Protects Cells from Ionizing Radiation by Inhibiting the Expression of p53. PLoS Genet. 8, (2012).
- Gavrieli, Y., Sherman, Y., Ben-Sasson, S. A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation. J. Cell Biol. 119, 493-501 (1992).
- Cole, L. K., Ross, L. S. Apoptosis in the developing zebrafish embryo. Dev. Biol. 240, 123-142 (2001).
- Abrams, J. M., White, K., Fessler, L. I., Steller, H. Programmed cell death during Drosophila embryogenesis. Development. 117, 29-43 (1993).
- Beers Jr, R. F., Hendley, D. D., Steiner, R. F. Inhibition and activation of polynucleotide phosphorylase through the formation of complexes between acridine orange and polynucleotides. Nature. 182, 242-244 (1958).
- Delic, J., Coppey, J., Magdelenat, H., Coppey-Moisan, M. Impossibility of acridine orange intercalation in nuclear DNA of the living cell. Exp. Cell Res. 194, 147-153 (1991).
- Westerfield, M. The Zebrafish Book. , University of Oregon Press. Eugene, OR. (1993).
- Shin, J., Park, H. C., Topczewska, J. M., Mawdsley, D. J., Appel, B. Neural cell fate analysis in zebrafish using olig2 BAC transgenics. Methods Cell Sci. 25, 7-14 (2003).
- Park, H. C., et al. Analysis of upstream elements in the HuC promoter leads to the establishment of transgenic zebrafish with fluorescent neurons. Dev. Biol. 227, 279-293 (2000).
Перепечатки и разрешения
Теги
