Мы демонстрируем строительство камер паров алкоголя с использованием легкодоступных материалов, которые одновременно дом 6 клетки мыши. Мы дополнительно описывают их использование в модели мыши плода воздействия алкоголя эквивалентно всех 3 триместрах беременности человека. Эта парадигма предоставляет животных во время беременности и послеродовой дней 1-12.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Строительство Vapor палат используется для предоставления мышей алкоголю ходе эквивалент всех трех триместров человеческого развития
В этой статье
Краткое содержание
Аннотация
Воздействие алкоголя во время развития может привести к созвездии морфологических и поведенческих отклонений, которые вместе известны как расстройств фетальный алкогольный спектр (FASDs). В наиболее тяжелой части спектра является фетальный алкогольный синдром (ФАС), характеризуется задержкой роста, черепно-лицевой дисморфологии и нейроповеденческих дефицита. Исследования с животных моделей, в том числе грызунов, прояснили многие молекулярные и клеточные механизмы, участвующие в патофизиологии FASDs. Этанол администрация беременным грызунов была использована для моделирования воздействия на человека во время первого и второго триместров беременности. В-третьих потребление триместре этанол в организме человека был смоделирован с помощью неонатальных грызунов. Тем не менее, несколько исследований на грызунах охарактеризовали эффекта воздействия этанола во время эквивалентно всех трех триместров беременности человека, рисунком воздействия, которое является общим у беременных женщин. Здесь мы покажем, как построить камеры паров из легко оbtainable материалы, которые могут друг разместиться до шести стандартных клетках мыши. Опишем камеры паров парадигмы, которую можно использовать для моделирования воздействия этанола, с минимальной обработкой, во всех трех триместра. Наши исследования показывают, что беременные плотины разработан значительный метаболический толерантность к этанолу. Однако новорожденных мышей не развивались метаболизма толерантности и количество плодов, плода вес, вес плаценты, количество щенков / подстилки, количество мертвых щенков / подстилки, а вес детенышей существенно не зависит от воздействия этанола. Важным преимуществом этой парадигмы является его применимость к исследованиям с генетически-модифицированных мышей. Кроме того, эта парадигма минимизирует обработку животных, крупного конфликтовать в плода исследования алкоголя.
Введение
Насколько во время беременности может нанести вред плоду, вызывая стойкие изменения во многих органах и системах, что значительно уменьшают качество жизни для пострадавших лиц и их семей. По оценкам, примерно 10-30% женщин пить во время беременности в США, 1-8% алкоголя в разгул образов 1,2. Диапазон эффектов, вызываемых воздействием этанола в период внутриутробного развития вместе известны как расстройства спектра фетальный алкогольный (FASDs). Последние оценки показывают, что FASDs являются одной из основных проблем общественного здравоохранения с преобладанием достигает 2-5% в США 3. Чем больше тяжелым проявлением FASDs является фетальный алкогольный синдром (ФАС), которая характеризуется задержкой роста, черепно-лицевых аномалий и нейроповеденческих дефицита, в том числе в обучении. Распространенность ФАС, по оценкам, будет 0,2-0,7%, в США 3. Имеющиеся в настоящее время методы лечения FASDs эффективны лишь частичнои разработка более эффективных методов лечения ограничивается плохим пониманием клеточном и молекулярном основ этой сложной спектру заболеваний.
Данные из национальных врожденных дефектов Prevention Study (NBDPS) показывают, что беременные женщины наиболее часто пить во время 1-го триместра, до беременности был обнаружен, а затем воздержания во время более поздних стадиях беременности 2. NBDPS также обнаружили, что второй наиболее распространенной структура потребления этанола во время беременности предполагает пить во всех триместрах беременности 2. Причины этого заключаются в недостатке осведомленности о потенциально вредном воздействии плода воздействия этанола (даже в низких дозах), ограниченный доступ к дородовой помощи, положительной историей для нервно-психических расстройств, и злоупотребления или зависимости от этанола 4. Интересно, что NBDPS сообщил, что третьим наиболее распространенным структура потребления участие воздержание в течение 1 Й и 2-й триместры затем потребления в 3-м триместре, когда он часто предполагается, что употребление алкоголя является безопасным, потому что органогенез, в основном, завершена. Тем не менее, 3-й триместр является периодом высокой восприимчивостью к этанол-индуцированного повреждения нервной системы, потому что это период, когда нейронные цепи претерпевают глубокие доработки 2. NBDPS также определены другие, менее частые моделей потребления алкоголя, которые происходят во время беременности, в том числе потребления на протяжении 1-го и 2-го триместра с последующим воздержания во время 3-го триместра 2.
В попытке смоделировать различные структуры потребления этанола наблюдаемые у беременных женщин, ряд развития парадигм воздействия этанола были созданы с помощью различных видов животных, с крыс и мышей, являющихся наиболее распространенным 5,6. Продолжительность беременности у этих животных обычно ластс около 3 недель, что соответствует 1-й и 2-й триместры беременности человека. Многие исследования грызунов оценили влияние различных доз и форм воздействия этанола в этот период. Примеры способов часто используемых для управления этанол для беременных мышей и крыс включают введение через жидкие диеты 7,8, добавление этанола в питьевую воду 9,10, добровольное употребление сахарина подслащенные решений 11, желудочный зонд 12, пар вдыхание 13 и подкожной или внутрибрюшинной инъекции 14. Результаты этих исследований воспроизводятся некоторые из дефицитов наблюдаемых у людей с FASDs, демонстрируя, что воздействие на ранних стадиях беременности достаточно, чтобы повредить нейронные цепи через мозга (обзор 6,15).
Эксперименты с грызунами также показали, что воздействие в течение эквивалентной 3-го Триместр беременности человека, что примерно соответствует первых 1-2 недель постнатальной жизни у крыс и мышей, может значительно ухудшить развитие мозга. Выдержка в течение этого периода был смоделирован путем введения этанола для новорожденных крыс или мышей. Этанол вводили в этих животных с использованием различных методов, в том числе кормления через гастростомии в искусственно-выращенных животных 16-18, внутрижелудочного интубации 19, подкожной инъекции 20, и вдыхания паров 21,22. Эти исследования убедительно показали, что скачок роста мозга является периодом повышенной уязвимости к развития эффектов этанола 6.
Как уже упоминалось выше, пить в любом триместре беременности является распространенным структура потребления этанола в женщин 2. Тем не менее, сравнительно мало исследований оценивали влияние этой модели воздействия с использованием животных моделей. Некоторые из этих исследований приняли advantagе крупных животных, где 3-й триместр-эквивалентно происходит в утробе матери, а не неонатальном периоде, как и в случае крыс и мышей. Эти животные модели включают без человеческих приматов 23,24 и овец 25-27. Тем не менее, эти модели на животных не широко используются в исследованиях FASDs, в частности, из-за высокой стоимости и необходимости сооружений специализированных учреждениях. Грызуны были более широко используется для характеристики влияния всех триместре этанола воздействия на развитие плода 5. Морские свинки были особенно выгодно в этом отношении данной их широкое развитие пренатальной и сходства в мозговой созревания, чтобы у людей 28,29. С морских свинок, стало возможным охарактеризовать эффект воздействия этанола в период внутриутробного развития, который включает в эквивалентную период развития человеческого 3-го триместра. Сравнительно высокая стоимость этих животных, а также относительно большая продолжительность их беременности(~ 67 дней), ограничил их использование нескольких лабораторий, работающих на исследования FASDs.
Из-за их экономической эффективности и широкого использования в биомедицинских исследованиях, исследователи использовали крыс моделировать воздействие этанола в любом триместре беременности. В первоначальных исследованиях, крысы подвергались во время беременности через жидкие диеты с последующим введением этанола через гастростомия искусственно выращенные новорожденных (день после рождения (Р) 1-10), в результате пиковых уровней этанола в крови (БЭК) в плотин 0,08 г / дл и у детенышей 0,16 г / дл. Эта парадигма вызвало долговременные изменения в зрительного нерва миелинизации и сократили количество Bergmann глии волокон в мозжечке 30-32. Точно так же, Майер и сотрудники, используя искусственные условия воспитания в ведении этанол беременным плотин крыс в разгула манере через внутрижелудочного интубации с последующей новорожденных администрации в течение одной части 3-й триместр эквивалента (P4-9) 33,34. РЕАК матери и щенок БЭК были 0,3 г / дл на обоих гестационного день 20 и Р6. Эта парадигма экспозиции все триместре привело к задержке роста, который был значительно больше, чем это наблюдается у щенков, которые подверглись облучению отдельные периоды беременности 33. Кроме того, крыс, подвергавшихся воздействию этанола в течение эквивалентной любом триместре выставлены снижение количества Пуркинье мозжечка и зернистых клеток, что было больше, чем наблюдалось у животных, подвергшихся в другие периоды 34. Снижение гиппокампа количества клеток были также зарегистрированы с этой парадигмы, но эти эффекты, как представляется, прежде всего следствием воздействия во время 3-го триместра-эквивалентной 35. Метод, который включает в себя введение этанола через внутрижелудочного зонда для обеих крыс и новорожденных мышей была также использована для моделирования все триместре экспозиции 36. Этот метод, который дает БЭК из 0,13 г / дл в плотин (гестационный день 17) и 0,24 г / дл в P6 щенков, индуцированной лонг-прочного изменения в уровнях нейромедиаторов моноаминных в гиппокампе и гипоталамусе, и повышенной экспрессией метилтрансфераз ДНК и метилцитозин связывающий белок 2 в гиппокампе 37,38. Используя аналогичный парадигму экспозиции (БЭК = 0.14-0.2 г / дл в плотин и 0,2 г / дл в щенков), Хиль-Mohapel др.. 39 обнаружил увеличение числа новых незрелых нейронов в зубчатой извилине взрослых крыс, что может представлять собой компенсационный механизм для этанола-индуцированной повреждению нейронов или изменения в созревания взрослых, родившихся нейронов. Следователи также пытаются моделировать все экспозиции триместре этанол, подвергая дамбы через жидкие диеты или пить воду во время беременности и лактации 9,40. Тем не менее, утилита разоблачения щенков с молоком матери ограничен, потому что это, как правило, приводит к низким БЭК детенышей (например, 0.002-0.05 г / дл; 41,42).
Мыши были также использованы EXTENSively охарактеризовать последствия развития воздействия этанола. Данной животной модели разделяет многие из преимуществ, описанных выше для животной модели крысы, с дополнительным преимуществом, что многие генетически модифицированные штаммы мышей имеющиеся 5. Мыши были успешно использованы для характеристики эффекты этанола в течение 1-го, 2-го или 3-м триместрах беременности 43,44. Тем не менее, влияние всех триместре беременности на этих животных не было хорошо характеризуется, потому что это технически сложнее разоблачить мышей во время эквивалентно всем триместрах беременности человека. Например, искусственный разведение и желудочный зонд, которые были успешно использованы в крысах, требуют более специализированные процедуры в мышей 45. Насколько нам известно, только одно исследование на сегодняшний день пытался изучить влияние всех триместре этанола воздействия на мышах; эти животные были подвержены растворе этанола в питьевой воде Duriбеременность нг и лактация 46. Материнская БЭК были 0,07 г / дл и щенок БЭК не были определены, но ожидается, будет доля тех, кто в плотин.
Здесь мы описываем новую модель для всех триместре этанола воздействия мышей, где алкоголь вводят в обе беременных плотин и новорожденных через вдыхания паров камер. Vapor камеры были построены на основе предыдущей конструкции 47. Мы предоставляем подробные инструкции о том, как строить ингаляционные камеры и проводить процедуры облучения. Мы также предоставляем информацию о БЭК которые могут быть достигнуты и изучению последствий воздействия на выживаемость детенышей и роста.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все процедуры животных были одобрены Университета Нью наук Мексика-оздоровительный центр Институциональные уходу и использованию животных комитета.
1. Палата Ассамблея пара
- Вырезать поликарбонатные листы с циркулярной пилой или лобзиком к размерам предоставляемых в видео для верхней, нижней, передней, задней сторон и двери (рисунок 1 и таблицу 1).
- С циркулярной пилой или лобзиком, вырезать отверстие 8 дюймов высокий по 16 дюймов широкий в середине передней панели.
- Измерьте и отметьте отверстия для фортепиано шарнира на 18 дюймов на 10 дюйма поликарбонатного листа, которая станет дверь камеры.
- В двери, сверлить встречные отверстия раковины с 5/16 дюйма сверло с, и с 3/16 дюйма сверло, просверлить отверстие для винтов. Убедитесь в том, чтобы развернуть встречные раковина отверстий на внутренней стороне двери для головок винтов.
- Подготовьте поликарбонатных листов для сварки.
- Соберите сюдант, назад, и боковые панели на нижней панели, используя приварку № 16.
- Печать любых пробелов между панелями с приварку № 16.
- Прикрепите верхнюю панель с приварку № 16.
- Используйте штрих зажимы или тяжелые учебники провести все на месте в то время как сварные швы вылечить.
- Прикрепите 1 дюйм 12-дюймовый кусок поликарбоната на переднюю панель 1 дюйм ниже отверстия для крепления дверных петель.
- Позвольте по крайней мере 24 ч для приварной вылечить.
- Отрежьте 2 куска пластмассовых труб 12 дюймов в длину и 1 кусок 1 дюймов длиной труб PEX.
- С 5/16 сверло с, просверлить отверстие в каждом из 12-дюймового пластмассовых труб примерно 1 до 2 дюймов от одного конца.
- Прикрепите 2 х 12-дюймовый пластмассовых труб к 3/8 дюйма T-разъем с отверстиями, расположенными далеко от разъема.
- Крышка открытые концы трубки PEX с 3/8 дюйма зажигания.
- Прикрепите фортепиано петли на передней панели и двери с использованием 4-40 винты и гайки.
- Использование дверь в качестве ориентира, мковчег отверстия, необходимые для фортепиано петли на 1 дюйм прокладки на передней панели камеры.
- С 3/16 дюйма сверло, просверлить отверстия в передней панели для фортепиано шарнира.
- Прикрепите дверь и фортепиано шарнир к передней панели с помощью 4-40 винты и гайки.
- Соберите зажимные, как показано на видео с шайбой и гайкой по обе стороны от боковой руку.
- Марк и дрель 3/16 дюйма отверстия для зажимные на передней панели и прикрепите зажимные с 4-40 винтов и гаек.
- Добавить 3/8 дюйма резиновой груши уплотнения к внутренней части двери.
- С 5/8 дюйма скучной сверло с, просверлить отверстие в центре верхней панели для впускного отверстия.
- Дрель 1/2 дюймовый отверстие в нижней / центру задней панели для выходного порта.
- Сборка выходное отверстие, нажав на резьбовую часть 3/8 дюйма по толщине стенки адаптеров через заднюю стенку камеры паров в выходное отверстие отверстие. Прикрепите гайку свнутри камеры, чтобы зафиксировать на месте.
- Удалите защитное покрытие от поликарбонатных листов.
- Прикрепите 1 дюймовый кусок пластмассовых труб к Т-разъем и заставить трубки PEX через отверстие в верхней части камеры с внутренней стороны.
- Прикрепите 3/8 дюйма 90 локтем в верхней части 1 дюйм пластмассовых труб с внешней стороны.
ПРИМЕЧАНИЕ: Дрель 1/2 дюймовый отверстие в двери и вставить 1/2 дюйма уплотнения перегородок в отверстие. - Повторите шаги 1-22 для воздух только контролировать камеру.
2. Rack и Ассамблея подачи воздуха
- Если размещение камер на корзину / стойку, упомянутых в списке материалов, собрать телегу в соответствии с инструкциями изготовителя.
- С запасных гаек и болтов, приложите лома кусок поликарбоната к стойке, чтобы держать регуляторы воздушного потока.
- Везде на кусочке поликарбоната, марки и сверла 3/4 дюйма отверстия для регуляторов расхода воздуха и прикрепите регуляторов с орехамипредоставляется.
- Присоединить 3/8 дюйма через стенки адаптера к входным и выходным портами регуляторов потока воздуха.
- Соберите этанола колбу с аэрации камня, # 8 пробкой и быстрого выхода в линии разъемов.
- Использование 3/8 дюйма TYGON трубки, подключить регуляторы потока к воздушным насосом и этанола колбу, как показано на рисунке 1.
- Для единственного воздушной камеры, прикрепите выходное отверстие регулятора воздушного потока на вход 3/8 дюйма 90 локтя с 3/8 дюйма TYGON трубки, как показано на рисунке 1.
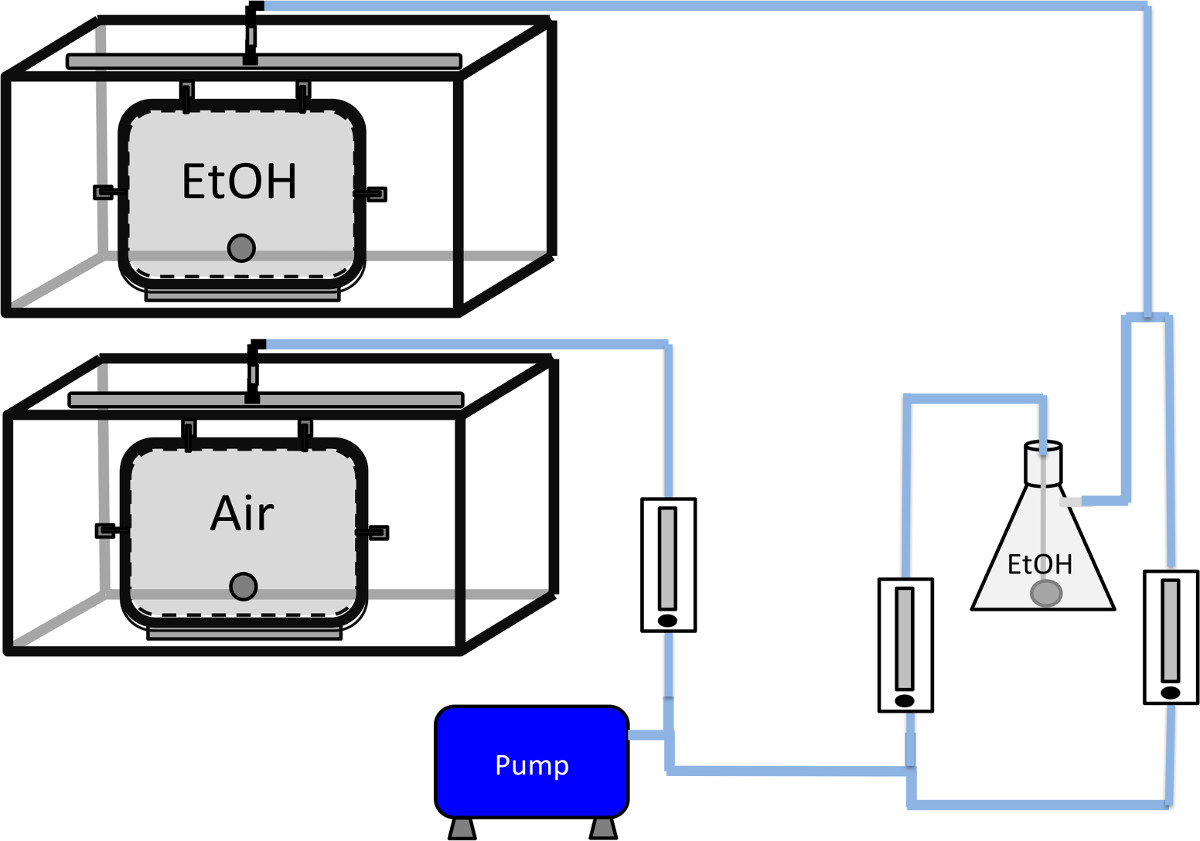
Рисунок 1. Схематическое представление конфигурации камер пара. Т-образный соединитель прикреплен к воздушному насосу низкого шума. Одна сторона T-разъем напрямую связан с регулятором воздушного потока для воздуха только пара камеры. Остальные сязь снова расщепляется и прилагается к 2 различных регуляторов расхода воздуха, по одному для воздуха и один для этанола. Воздушная камера напрямую связан с регулятором, как показано на рисунке. Для камеры паров этанола, один регулятор расхода воздуха соединен с аэратором камня, погруженной в жидкий этанола в колбе фильтра. Боковая рукоятка порт колбы фильтра соединен с выходом на регуляторе подачи воздуха, как указано. Объединены паров этанола и воздух затем соединен с входом камеры паров этанола. Трубы выпускные (не показаны) подключен к сети вентиляции в помещении.
3. Тестовые Vapor Камеры и регулировать уровни Этанол
- Добавить 600 мл этанола пробы 190 в колбу фильтра, вставьте аэрации камень и подключиться к впускной трубы в сторону рычага колбы.
- Закрыть камерные двери и поворот на воздушный насос.
- Регулировка регуляторы воздушного потока таким образом, что приблизительно в два раза меньше воздух проходит через жидкую спирта в качестве воздух смешивается с. Adjusт воздухе только воздушный поток для комбинированного потока спирта и воздуха в смеси этанол камеры.
- Разрешить камеры для уравновешивания в течение не менее 30 мин до измерения концентрации воздуха этанола.
- Измерьте концентрацию воздуха этанола путем извлечения 5 мл воздуха с 18G иглы и 60 мл шприц через мембрану. Развести что образец комнатным воздухом, опираясь на поршень обратно в 60 мл (1:12 разведение). Измерьте уровень воздуха этанола с помощью алкотестер в соответствии с инструкциями производителя. Разбавление камеры воздуха необходимо для достижения уровень паров алкоголя в диапазоне детектирования алкотестер.
ПРИМЕЧАНИЕ: При использовании различных уровней воздействия алкоголя разбавления может нуждаться в корректировке. - В качестве отправной точки, регулировать регуляторы потока воздуха, сколько необходимо для достижения концентрации спирта воздуха приблизительно 4,5-5 г / дл (г спирта в парообразном дл воздуха).
4. Животноводство
- Группа дом женщины C578BL / 6 мышей (2-3 месяцев), по крайней мере 1 недели для синхронизации яичников циклов.
- Индивидуально дом мужчин C57BL / 6 мышей (2-5 месяцев), по крайней мере 2 недели.
- После синхронизации, положить отдельная женщина в с одного мужчины в течение 5 дней, чтобы позволить для спаривания.
- После спаривания, удалите мужчин и индивидуально дома самки и поместить их в камерах.
5. Пред-и послеродовой паров этанола экспозиции
- Expose беременных плотин для паров этанола в течение 4 часов в день, в 10 час в течение светового цикла (огни на с 6 утра-6 вечера), кроме дня рождения, чтобы предотвратить щенка смерть.
- Взвесьте плотины на гестационного день (G) 5, G13-G14, и G18-G20 для мониторинга беременности; постельные принадлежности были изменены в дни, что женщины были взвешены, чтобы минимизировать обработку.
- Каждый день заменить пищу для этанола подвергается групп, чтобы избежать потребления гранул с любым этанола всасывается в них.
- В деньрождение не подвергайте животных. После рождения разоблачить плотин и щенков в течение 4 часов в день, в 10 час от P1-P12.
- Взвесьте щенков на P2, P8, P12, и P25; и изменить постельные принадлежности на P8 и P12, чтобы минимизировать дополнительную обработку.
- Сразу же после последней экспозиции (P12), перенести клетки в стандартный животных жилищного комнате.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Рисунок 2А показывает, что оба беременных мышей и новорожденных потомство подвергались относительно стабильных концентраций паров этанола в камерах. Эти колебалась от 4-6 г / дл. 2В показаны БЭК, достигнутые в беременных мышей в зависимости от времени. БЭК были измерены с помощью стандартного алкогольдегидрогеназы на основе анализа 48. В G5, БЭК быстро поднялся на ~ 60 мм 2 ч после начала воздействия и достиг максимума в конце периода воздействия 4 час. БЭК постепенно уменьша...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Здесь мы подробно описать методы для строительства паровой ингаляции камер. Материалы и инструменты, необходимые для создания камеры легко доступны из ряда коммерческих поставщиков и шаги по строительству камер относительно просты. Система, которую мы описываем здесь не содержит никаких в линию обратные клапаны для предотвращения обратного потока и смешивания. Мы были не в состоянии измерить заметного этанола в воздухе только камеры, предполагающие, что мы не имеем никакого смешивания или обратный поток этанола в воздух...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы не имеют ничего раскрывать.
Благодарности
При поддержке Национального института здоровья предоставляет R01-AA015614, R01-AA014973, T32-AA014127 и К12-GM088021. Авторы благодарят Саманта Л. Бломквист для технической помощи и доктора. Кевин Колдуэлл и Дональд Партридж для критической оценки рукописи и видео.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Поликарбонат 1/4" прозрачный 48" x 24" | McMaster-Carr | 8574K23 | 10 |
| Поролоновый уплотнитель колбы 3/8"Ш x 7/32"h | McMaster-Carr | 93085K67 | 10 футов |
| Приварной #16 | McMaster-Carr | 7515A11 | 3 |
| Петля пианино длиной 12" | McMaster-Carr | 1658A11 | 2 x 1 фут |
| Прижимные тумблерные зажимы стандартные | McMaster-Carr | 5126A26 | 8 |
| трубок PEX 1/2" | McMaster-Carr | 51275K88 | 10 футов |
| Фитинг с колючей тройником (Черный) Pkg 10 | McMaster-Carr | 5463K608 | 1 |
| Фитинг с зазубренной вилкой (Черный) Pkg 10 | McMaster-Carr | 5462K79 | 1 |
| Фитинг с зазубренным коленом (Черный) Pkg 10 | McMaster-Carr | 5463K596 | 1 |
| 3/8" Переходники для сквозных стенок, трубка к резьбовой трубе | McMaster-Carr | 5463K851 | 1 |
| Крепежный винт Phillips 4-40 | McMaster-Carr | 91772A112 | |
| 1 Шестигранная гайка 4-40 | McMaster-Carr | 90480A005 | 1 |
| Панельный расходомер 2-20 | McMaster-Carr | 41945K76 | 3 |
| КОЛБА, ФИЛЬТР 1,000 мл 6/PACK | VWR | 89001-800 | 2 |
| Прецизионное уплотнение Septa | VWR | 89084-490 | 1 |
| VWR Черная резиновая пробка #8 1 отверстие | VWR | 59581-367 | 1 |
| ТРУБКА TYGON R3603 3/8X9/16 50'VWR | 89068-556 | 1 | |
| ТРУБКА TYGON R3603 1/4X11/16 50'VWR | 89068-502 | 1 | |
| Аэраторный камень P2120 | VWR | 32573-007 | 1 |
| 3/8" Т-образные соединители Pk из 20 | VWR | 46600-060 | 1 |
| Разъединители VWR конические Pk of 10 | VWR | 46600-110 | 1 |
| 3/8 Шланг Заусенец с затвором клапана Линейная муфта | Colder Products Company | HFCD17612 | 1 |
| Воздушный насос средней мощности | LMI Производители | DB60L | 1 |
| Стеллаж для проволоки Nexelate 36"Ш x 24" Г X 63"H | Глобальный промышленный | T9A990135 | 1 |
| Набор роликов для выноса (4) 5-дюймовое полиуретановое колесо | Global industrial | T9A500591 | 1 |
Ссылки
- Centers for Disease Control and Prevention (CDC). World Health Organization Who. Alcohol use and binge drinking among women of childbearing age--United States. MMWR Morb Mortal Wkly Rep. 61 (28), 534-538 (2012).
- Ethen, M. K., et al. Alcohol consumption by women before and during pregnancy. Matern Child Health J. 13, 274-285 (2009).
- May, P. A., et al. Prevalence and epidemiologic characteristics of FASD from various research methods with an emphasis on recent in-school studies. Dev Disabil Res Rev. 15, 176-192 (2009).
- Wendell, A. D. Overview and epidemiology of substance abuse in pregnancy. Clin Obstet Gynecol. 56, 91-96 (2013).
- Cudd, T. A. Animal model systems for the study of alcohol teratology. Exp Biol Med (Maywood. 230, 389-393 (2005).
- Valenzuela, C. F., Morton, R. A., Diaz, M. R., Topper, L. Does moderate drinking harm the fetal brain? Insights from animal models). Trends Neurosci. 35, 284-292 (2012).
- Sliwowska, J. H., Song, H. J., Bodnar, T., Weinberg, J. Prenatal Alcohol Exposure Results in Long-Term Serotonin Neuron Deficits in Female Rats: Modulatory Role of Ovarian Steroids. Alcohol Clin. Exp. Res. 10, (2013).
- Sutherland, R. J., McDonald, R. J., Savage, D. D. Prenatal exposure to moderate levels of ethanol can have long-lasting effects on hippocampal synaptic plasticity in adult offspring. Hippocampus. 7, 232-238 (1997).
- Naassila, M., Daoust, M. Effect of prenatal and postnatal ethanol exposure on the developmental profile of mRNAs encoding NMDA receptor subunits in rat hippocampus. J Neurochem. 80, 850-860 (2002).
- Servais, L., et al. Purkinje cell dysfunction and alteration of long-term synaptic plasticity in fetal alcohol syndrome. Proc Natl Acad Sci U S A. 104, 9858-9863 (2007).
- Brady, M. L., Allan, A. M., Caldwell, K. K. A limited access mouse model of prenatal alcohol exposure that produces long-lasting deficits in hippocampal-dependent learning and memory. Alcohol Clin Exp Res. 36, 457-466 (2012).
- Bake, S., Tingling, J. D., Miranda, R. C. Ethanol exposure during pregnancy persistently attenuates cranially directed blood flow in the developing fetus: evidence from ultrasound imaging in a murine second trimester equivalent model. Alcohol Clin Exp Res. 36, 748-758 (2012).
- Cuzon, V. C., Yeh, P. W., Yanagawa, Y., Obata, K., Yeh, H. H. Ethanol consumption during early pregnancy alters the disposition of tangentially migrating GABAergic interneurons in the fetal cortex. J Neurosci. 28, 1854-1864 (2008).
- Godin, E. A., et al. Magnetic resonance microscopy defines ethanol-induced brain abnormalities in prenatal mice: effects of acute insult on gestational day 7. Alcohol Clin Exp Res. 34, 98-111 (2010).
- Gil-Mohapel, J., Boehme, F., Kainer, L., Christie, B. R. Hippocampal cell loss and neurogenesis after fetal alcohol exposure: insights from different rodent models. Brain Res Rev. 64, 283-303 (2010).
- Diaz, J., Samson, H. H. Impaired brain growth in neonatal rats exposed to ethanol. Science. 208, 751-753 (1980).
- Stanton, M. E., Goodlett, C. R. Neonatal ethanol exposure impairs eyeblink conditioning in weanling rats. Alcohol Clin Exp Res. 22, 270-275 (1998).
- West, J. R., Hamre, K. M., Pierce, D. R. Delay in brain growth induced by alcohol in artificially reared rat pups. Alcohol. 1, 213-222 (1984).
- Tran, T. D., Stanton, M. E., Goodlett, C. R. Binge-like ethanol exposure during the early postnatal period impairs eyeblink conditioning at short and long CS-US intervals in rats. Dev Psychobiol. 49, 589-605 (2007).
- Ikonomidou, C., et al. Ethanol-induced apoptotic neurodegeneration and fetal alcohol syndrome. Science. 287, 1056-1060 (2000).
- Heaton, M. B., Paiva, M., Madorsky, I., Siler-Marsiglio, K., Shaw, G. Effect of bax deletion on ethanol sensitivity in the neonatal rat cerebellum. J Neurobiol. 66, 95-101 (2006).
- Ryabinin, A. E., Cole, M., Bloom, F. E., Wilson, M. C. Exposure of neonatal rats to alcohol by vapor inhalation demonstrates specificity of microcephaly and Purkinje cell loss but not astrogliosis. Alcohol Clin Exp Res. 19, 784-791 (1995).
- Kraemer, G. W., Moore, C. F., Newman, T. K., Barr, C. S., Schneider, M. L. Moderate level fetal alcohol exposure and serotonin transporter gene promoter polymorphism affect neonatal temperament and limbic-hypothalamic-pituitary-adrenal axis regulation in monkeys. Biol Psychiatry. 63, 317-324 (2008).
- Schneider, M. L., et al. Moderate-level prenatal alcohol exposure alters striatal dopamine system function in rhesus monkeys. Alcohol Clin Exp Res. 29, 1685-1697 (2005).
- Ramadoss, J., Hogan, H. A., Given, J. C., West, J. R., Cudd, T. A. Binge alcohol exposure during all three trimesters alters bone strength and growth in fetal sheep. Alcohol. 38, 185-192 (2006).
- Ramadoss, J., Lunde, E. R., Pina, K. B., Chen, W. J., Cudd, T. A. All three trimester binge alcohol exposure causes fetal cerebellar purkinje cell loss in the presence of maternal hypercapnea, acidemia, and normoxemia: ovine model. Alcohol Clin Exp Res. 31, 1252-1258 (2007).
- Ramadoss, J., Tress, U., Chen, W. J., Cudd, T. A. Maternal adrenocorticotropin, cortisol, and thyroid hormone responses to all three-trimester equivalent repeated binge alcohol exposure: ovine model. Alcohol. 42, 199-205 (2008).
- Byrnes, M. L., Reynolds, J. N., Brien, J. F. Brain growth spurt-prenatal ethanol exposure and the guinea pig hippocampal glutamate signaling system. Neurotoxicol Teratol. 25, 303-310 (2003).
- Catlin, M. C., Abdollah, S., Brien, J. F. Dose-dependent effects of prenatal ethanol exposure in the guinea pig. Alcohol. 10, 109-115 (1993).
- Phillips, D. E., Krueger, S. K. Effects of combined pre- and postnatal ethanol exposure (three trimester equivalency) on glial cell development in rat optic nerve. Int J Dev Neurosci. 10, 197-206 (1992).
- Phillips, D. E., Krueger, S. K., Rydquist, J. E. S. hort- Short- and long-term effects of combined pre- and postnatal ethanol exposure (three trimester equivalency) on the development of myelin and axons in rat optic nerve. Int J Dev Neurosci. 9, 631-647 (1991).
- Shetty, A. K., Burrows, R. C., Wall, K. A., Phillips, D. E. Combined pre- and postnatal ethanol exposure alters the development of Bergmann glia in rat cerebellum. Int J Dev Neurosci. 12, 641-649 (1994).
- Maier, S. E., Chen, W. J., Miller, J. A., West, J. R. Fetal alcohol exposure and temporal vulnerability regional differences in alcohol-induced microencephaly as a function of the timing of binge-like alcohol exposure during rat brain development. Alcohol Clin Exp Res. 21, 1418-1428 (1997).
- Maier, S. E., Miller, J. A., Blackwell, J. M., West, J. R. Fetal alcohol exposure and temporal vulnerability: regional differences in cell loss as a function of the timing of binge-like alcohol exposure during brain development. Alcohol Clin Exp Res. 23, 726-734 (1999).
- Livy, D. J., Miller, E. K., Maier, S. E., West, J. R. Fetal alcohol exposure and temporal vulnerability: effects of binge-like alcohol exposure on the developing rat hippocampus. Neurotoxicol Teratol. 25, 447-458 (2003).
- Kelly, S. J., Lawrence, C. R. Intragastric intubation of alcohol during the perinatal period. Methods Mol Biol. 447, 101-110 (2008).
- Perkins, A., Lehmann, C., Lawrence, R. C., Kelly, S. J. Alcohol exposure during development: Impact on the epigenome. Int J Dev Neurosci. 31, 391-397 (2013).
- Tran, T. D., Kelly, S. J. Alterations in hippocampal and hypothalamic monoaminergic neurotransmitter systems after alcohol exposure during all three trimester equivalents in adult rats. J Neural Transm. 106, 773-786 (1999).
- Gil-Mohapel, J., et al. Altered adult hippocampal neuronal maturation in a rat model of fetal alcohol syndrome. Brain Res. 1384, 29-41 (2011).
- Popovic, M., Caballero-Bleda, M., Guerri, C. Adult rat's offspring of alcoholic mothers are impaired on spatial learning and object recognition in the Can test. Behav Brain Res. 174, 101-111 (2006).
- Guerri, C., Sanchis, R. Alcohol and acetaldehyde in rat's milk following ethanol administration. Life Sci. 38, 1543-1556 (1986).
- Matta, S. G., Elberger, A. J. Combined exposure to nicotine and ethanol throughout full gestation results in enhanced acquisition of nicotine self-administration in young adult rat offspring. Psychopharmacology (Berl. 193, 199-213 (2007).
- Olney, J. W. Fetal alcohol syndrome at the cellular level). Addict Biol. 9, 137-149 (2004).
- Sulik, K. K. Genesis of alcohol-induced craniofacial dysmorphism. Exp Biol Med (Maywood). 230, 366-375 (2005).
- Lewis, S. M., et al. Modifying a displacement pump for oral gavage dosing of solution and suspension preparations to adult and neonatal mice). Lab Anim (NY). 39, 149-154 (2010).
- Cebolla, A. M., et al. Effects of maternal alcohol consumption during breastfeeding on motor and cerebellar Purkinje cells behavior in mice. Neurosci Lett. 455, 4-7 (2009).
- Becker, H. C., Hale, R. L. Repeated episodes of ethanol withdrawal potentiate the severity of subsequent withdrawal seizures: an animal model of alcohol withdrawal "kindling". Alcohol Clin. Exp. Res. 17, 94-98 (1993).
- Galindo, R., Valenzuela, C. F. Immature hippocampal neuronal networks do not develop tolerance to the excitatory actions of ethanol. Alcohol. 40, 111-118 (2006).
- Workman, A. D., Charvet, C. J., Clancy, B., Darlington, R. B., Finlay, B. L. Modeling transformations of neurodevelopmental sequences across mammalian species. J Neurosci. 33, 7368-7383 (2013).
- Becker, H. C., Diaz-Granados, J. L., Weathersby, R. T. Repeated ethanol withdrawal experience increases the severity and duration of subsequent withdrawal seizures in mice. Alcohol. 14, 319-326 (1997).
- Ukita, K., Fukui, Y., Shiota, K. Effects of prenatal alcohol exposure in mice: influence of an ADH inhibitor and a chronic inhalation study. Reprod Toxicol. 7, 273-281 (1993).
- Varma, P. K., Persaud, T. V. Influence of pyrazole, an inhibitor of alcohol dehydrogenase on the prenatal toxicity of ethanol in the rat. Res Commun Chem Pathol Pharmacol. 26, 65-73 (1979).
- Balcombe, J. P., Barnard, N. D., Sandusky, C. Laboratory routines cause animal stress. Contemp Top Lab Anim Sci. 43, 42-51 (2004).
- Arias, C., Molina, J. C., Mlewski, E. C., Pautassi, R. M., Spear, N. Acute sensitivity and acute tolerance to ethanol in preweanling rats with or without prenatal experience with the drug. Pharmacol Biochem Behav. 89, 608-622 (2008).
- Nizhnikov, M. E., Molina, J. C., Varlinskaya, E. I., Spear, N. E. Prenatal ethanol exposure increases ethanol reinforcement in neonatal rats. Alcohol Clin Exp Res. 30, 34-45 (2006).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Теги
Камеры для паров алкоголямодель фетального алкогольного синдрома у мышейпарадигма воздействия этанолаконструкция поликарбонатной камерысистема регулирования воздушного потокавоздействие на беременных мышейвоздействие на новорожденных мышейизмерение содержания алкоголя в кровигерметизация с помощью рычажного зажимавходные и выходные отверстия
