Этот протокол сравнивает относительное сродство партнеров по связыванию для ГТФаз семейства Rho, включая Rac1. In vivo Rac1-связывающие белки конкурируют за одну связывающую границу, конформация которой определяется связанным нуклеотидом. Нуклеотид важен и его трудно контролировать экспериментально из-за высокой скорости гидролиза.
Методическая статья
Сравнение сродства GTPase-связывающих белков, используя конкурентных анализах
В этой статье
Краткое содержание
Аннотация
В этом протоколе мы демонстрируем метод сравнения конкуренции между ГТФаз-связывающими белками. Такой подход важен для определения связывающих способностей ГТФаз по двум причинам: тот факт, что все взаимодействия включают одну и ту же сторону ГТФазы, означает, что события связывания должны рассматриваться в контексте конкурентов, а тот факт, что связанный нуклеотид также должен контролироваться, означает, что традиционные подходы, такие как иммунопреципитация, непригодны для биохимии ГТФазы. Анализ основан на использовании очищенных белков. Очищенный Rac1, иммобилизованный на гранулах, используется в качестве белка-приманки и может быть загружен GDP, негидролизуемой версией GTP или свободным от левых нуклеотидов, чтобы можно было контролировать исследуемую сигнальную стадию. Исследуемые связывающие белки очищаются из клеток млекопитающих, чтобы обеспечить правильное сворачивание, с помощью метки GFP. Использование одной и той же метки на обоих белках важно, потому что это не только обеспечивает быструю очистку и элюирование, но и позволяет обнаруживать обоих конкурентов с одинаковыми антителами во время элюирования. Это означает, что относительное количество двух связанных белков может быть точно определено.
Введение
Актиновый цитоскелет, определяющий форму, полярность и миграционные свойства клеток млекопитающих, регулируется Rho-семейством малых ГТФаз. ГТФазы семейства Rho включают RhoA, который стимулирует цитоскелетное сокращение, Rac1, который стимулирует ветвление актина и выпячивание мембраны, и Cdc42, который оказывает аналогичное влияние на полимеризацию актина с Rac1 и вызывает образование филоподий 1,2. Сигнальная активность ГТФазы определяется связыванием нуклеотида, который контролирует сокращение и расслабление петель переключателя I и переключателя II, опосредующих белок-белковые взаимодействия как с регуляторами, так и с эффекторами. ГТФазы, связанные с гуанозин-5'-трифосфатом (ГТФ), активируют нижестоящие эффекторы, в то время как связанная с гуанозин-5'-дифосфатом (ГДФ) форма неактивна. В клетке циклы гидролиза ГТФ и обмена нуклеотидов обеспечивают быстрый оборот сигналов ГТФазы, которые необходимы для динамики цитоскелета. Оборот нуклеотидов регулируется тремя механизмами. Факторы обмена гуаниновых нуклеотидов (GEFs) стабилизируют свободную от нуклеотидов ГТФазу, катализируя обмен GDP на GTP, и тем самым стимулируя сигнальную активность ГТФазы 3,4. ГТФаза-активирующие белки (ГТФ) катализируют гидролиз ГТФ до ГДФ, тем самым ингибируя сигнальную активность ГТФазы 5. Секвестрирующие молекулы, такие как регулятор конденсации хроматина 2 (RCC2) и ингибиторы диссоциации нуклеотидов гуанина (GDIs), затемняют петли переключения, а в случае GDI удаляют ГТФазу из мембраны путем взаимодействия с пренильным хвостом 6,7. Каждый из трех классов регуляторных молекул взаимодействует с петлями переключения, так же как и нижестоящие эффекторы и некоторые регуляторы трафика, такие как коронин-1C 7. Целью данного протокола является измерение конкуренции за сайт связывания переключателя I/II между предполагаемыми регуляторами и расположенными ниже по потоку сигнальными молекулами. Следует отметить, что конкурентные анализы проверяют связывание с общим сайтом связывания, поэтому этот протокол не подходит для тестирования взаимодействий с другими сайтами, таких как связывание GDI с пренильным хвостом.
Тонкость конформационных различий между активными и неактивными формами в сочетании с лабильной природой связанного нуклеотида затруднила изучение событий связывания ГТФазы. Роль связанного нуклеотида означает, что обычные анализы связывания, такие как иммунопреципитация или поверхностный плазмонный резонанс, не очень хорошо подходят для исследований, поскольку нуклеотид не поддается контролю. Это препятствие усугубляется перекрытием сайтов связывания GEF, GAP, эффекторов, секвестрирующих молекул и молекул трафика, что затрудняет интерпретацию данных о связывании для одного взаимодействия в контексте конкуренции, которая будет происходить в клетке. Иммунопреципитация, в частности, нарушается конкуренцией между партнерами по связыванию, поскольку при определенных клеточных условиях один партнер по связыванию может быть идентифицирован за счет всех остальных, в то время как при других условиях другой партнер может доминировать. Динамическая природа передачи сигналов ГТФазы имеет важное значение для функционирования ГТФазы и должна учитываться при анализе взаимоотношений между связывающими взаимодействиями различных регуляторов. Действительно, недавно мы описали путь, который в значительной степени зависел от конкурентной привязки. Мы идентифицировали коронин-1C как молекулу трафика, которая связывается с петлями переключения GDP-Rac1 7. В районах с низкой активностью ГЭФ будет доминировать незаконный оборот, что приведет к вытеснению Rac1 из этих регионов. Однако, когда Rac1 доставляется в области клетки, где активность GEF высока, GEF вытесняет коронин-1C, тем самым активируя Rac1 и предотвращая опосредованное коронин-1C удаление Rac1 из этой области. Модель идет дальше, потому что действие ГЭФ связывает ВВП на ГТФ, смещая равновесие еще дальше от коронина-1С. Следовательно, активность Rac1 может быть полностью объяснена в терминах конкуренции и относительного родства.
В этом протоколе мы описываем метод сравнения относительного сродства различных партнеров по связыванию для малых ГТФаз на примере Rac1. Используя подход с использованием очищенного белка, можно собрать воедино цепочку сигнальных событий путем попарного сравнения в эксперименте, где связанный нуклеотид можно точно контролировать.
Протокол
1. Очистка ГТФазы с тегом GST
- Культивирование штамма E. coli, такого как BL21, трансформировали с помощью pGEX-Rac1 O/N при 37 °C, встряхивая при 220 об/мин, в 500 мл автоиндукционной среды (25 мМ Na2HPO4, 25 мМ KH2PO4, 50 мМ NH4Cl, 5 мМ Na2SO4, 2 мМ MgSO4, 2 мМ CaCl2, 0,5% глицерина, 0,05% глюкозы, 0,2% лактозы, 5 г триптона, 2,5 г дрожжевого экстракта, 100 мкг/мл ампициллина).
- Соберите бактерии центрифугированием в течение 10 минут при температуре 10 000 x g, 4 °C.
- Суспендировать бактериальную гранулу в 20 мл реагента для экстракции белка, 1х ингибитор протеазы и инкубировать в течение 20 мин при РТ с инверсией.
- Осветите лизат центрифугированием при 40 000 x g в течение 30 минут.
- Добавьте 2 мл магнитных шариков глутатиона, промытых фосфатно-соевым буфером (PBS: 10 мМ Na2HPO4, 1,8 мМ KH2PO4, 137 мМ NaCl, 2,7 мМ KCl).
- Инкубировать в течение 2 часов, перемешивая путем инверсии при 4 °C.
- Промойте гранулы с белком четыре раза с помощью 10 мл PBS, используя магнитный сортировщик частиц, чтобы осаждать бусины на каждом этапе.
- Суспендируйте гранулы, богатые белком, в 2 мл PBS и храните при -80 °C в 100 мкл аликвот до тех пор, пока они не понадобятся.
2. Экспрессия белков, связывающих ГТФазу
- За день до эксперимента трансфектировали плазмиды, кодирующие помеченные зеленым флуоресцентным белком (GFP) версии каждого белка, связывающего ГТФазу, в отдельную колбу размером 75 см2 HEK293T следующим образом. Для валидации загрузки нуклеотидов трансфектируйте GFP-меченный TrioD1 в третью колбу размером75 см 2 HEK293T.
- Разведите полиэтиламин до 1 мг/мл в 100 мкл стерильного 150 мМ NaCl.
- Добавьте 27 мкл разведенного полиэтилениламина к 223 мкл восстановленной сывороточной среды.
- Добавьте 12 г плазмидной ДНК к 250 μл восстановленной сывороточной среды.
- Инкубируйте каждую пробирку в течение 2 минут при RT.
- Соедините смеси полиэтилениламина и ДНК в одной пробирке и смешайте с вортексом в течение 2 минут.
- Инкубировать в течение 15-20 мин при RT.
- Замените питательную среду (модифицированную среду Dulbecco's Modified Eagle Media, 10% фетальную бычью сыворотку, 2 мл L-глютамина, без антибиотиков) на 90% конфлюентную HEK293T 5 мл свежей питательной среды.
- Добавьте в колбу комбинированную смесь полиэтилениламина и ДНК и инкубируйте O/N при 37 °C, 5%CO2.
3. Очистка белков, связывающих ГТФазу
- Промыть колбы с трансфицированными клетками в PBS и слить воду из колбы в течение 5 мин, отсасывая свободную жидкость.
- Соскребите клетки в буфере для лизиса объемом 500 мкл (50 мМ Tris-HCl (pH7,8), 1% Nonidet P-40, 1x ингибитор протеазы) в микрофугальную пробирку.
- Лизировать клетки путем перемешивания путем инверсии при 4 °C в течение 30 мин.
- Во время лизиса промойте две партии шариков GFP-Trap по 40 мкл три раза свежим буфером для лизиса, осаждая шарики в концентрации 2 700 x g в течение 2 минут между промывками.
- Осветлить лизаты центрифугированием при температуре 21 000 x g в течение 10 минут.
- Перенесите осветленный лизат каждого из конкурирующих белков на отдельные промытые шарики GFP-ловушки и дайте белкам GFP-слияния связываться в течение 2 часов, перемешивая путем инверсии при 4 °C. Храните лизат из клеток GFP-TrioD1 на льду.
- Дважды промыть гранулы GFP-Trap в 50 мМ Tris-HCl (pH 7,8), 50 mM NaCl, 0,7% (w/v) Nonidet P-40 и дважды в 50 мМ Tris-HCl (pH 7,6), 20 mM MgCl2, осаждение гранул при 2 700 x g в течение 2 минут между промывками.
- Разбавьте гибридные белки GFP, добавив 40 мкл 0,2 М глицина (pH 2,5) и пипетируя вверх и вниз в течение 30 с. Немедленно осадите шарики при концентрации 21 000 x g в течение 60 с и перенесите жидкость в новую микропробирку, содержащую 4 мкл 1 М Tris-HCl (pH 10,4). Делайте это быстро, чтобы ограничить повреждение очищенного белка.
- Проанализируйте 1 мкл каждого очищенного белка с помощью вестерн-блоттинга и зондируйте антителом против GFP для определения относительного выхода с использованием системы количественного блоттинга в соответствии с протоколом производителя. В качестве альтернативы можно определить концентрацию белка с помощью анализа бицинхониловой кислоты (BCA), но это приводит к ошибкам, если белки не реагируют с анализом идентичным образом или есть загрязняющие белки.
- Выравнивают концентрацию молярного белка путем добавления 50 мМ Tris-HCl (pH 7,6), 20 mM MgCl2.
4. Нуклеотидная нагрузка ГТФазы
- Разморозьте одну аликвоту магнитных шариков GST-Rac1, приготовленных на шаге 1.
- Возьмите 90 мкл гранул GST-Rac1 и трижды промойте 20 мМ Tris-HCl (pH 7,6), 25 мМ NaCl, 0,1 мМ DTT, 4 мМ ЭДТА, используя магнитопорошковый сортировщик для осаждения гранул на каждом этапе.
- Аспират буферизируйте из гранул и добавьте 100 мкл 20 мМ Tris-HCl (pH 7,6), 25 mM NaCl, 0,1 mM DTT, 4 mM EDTA.
- В зависимости от того, требуется ли для участия в соревновательном эксперименте загрузка нуклеотидов, добавьте 12 мкл 100 мМ GDP, 12 мкл 10 мМ гуанозина 5'-[γ-тио]трифосфата (GTPγS) или его отсутствие .
- Для контроля загрузки нуклеотидов разделите оставшиеся шарики на три аликвоты по 10 мкл и добавьте 2 мкл 100 мМ GDP, 2 мкл 10 мМ GTPγS или без нуклеотидов в каждую пробирку.
- Инкубировать смеси шариков в течение 30 минут при температуре 30 °C с перемешиванием.
- Стабилизировать связанный нуклеотид Rac1 путем добавления 1 M MgCl2: 3 мкл в экспериментальную смесь (стадия 4.4), по 0,5 мкл в каждую из контрольных смесей (стадия 4.5).
5. Привязка к соревнованиям.
- Установите 6 пробирок с микрофугами, каждая из которых содержит:
200 мкл 50 мМ Tris-HCl (pH 7,6), 20 мМ MgCl2
10 мкл экспериментальных нуклеотидных шариков Rac1 (с шага 4.7)
5 мкл Rac1-связывающего белка A (постоянный связывающий белок) - В каждую пробирку добавьте 0, 1, 2,5, 5, 10 или 20 мкл Rac1-связывающего белка B (вариабельный связывающий белок). Эти объемы предполагают примерно равные исходные концентрации постоянных и переменных связывающих белков и, возможно, потребуется скорректировать.
- Отрегулируйте объемы связывающих белков А и В, если существуют большие различия в аффинитете связывания двух белков, и это должно быть определено эмпирически с помощью экспериментальных повторов. Составить общий объем связующей смеси до 235 мкл путем добавления 50 мМ Tris-HCl (pH 7,6), 20 mM MgCl2.
- Установите пробирку для микрофуги, содержащую:
200 мкл 50 мМ Tris-HCl (pH 7,6), 20 мМ MgCl2
10 мкл экспериментальных нуклеотидных шариков Rac1 (с шага 4.7)
10 мкл Rac1-связывающего белка A (постоянный связывающий белок) - Установите пробирки для управления GDP, GTPγS и без нуклеотидов:
200 мкл 50 мМ Tris-HCl (pH 7,6), 20 мМ MgCl2
10 мкл контрольных шариков Rac1, загруженных на этапе 4.5 с GDP, GTPγS или без нуклеотидов и стабилизированных на этапе 4.7.
180 мкл HEK293T лизата GFP-TrioD1, полученного как на стадии 3,6<бр/> 4 μл 1 М MgCl2 - Инкубировать смесь в течение 2 часов, перемешивая путем инверсии при 4 °C.
- Трижды промыть бусины 50 мМ Tris-HCl (pH 7,6), 20 mM MgCl2.
- Элюирующие связанные белки в буфере для проб объемом 20 мкл (50 мМ Tris-HCl (pH 7), 5% SDS, 20% глицерин, 0,02 мг/мл бромфенола синего, 5% β-меркаптоэтанол).
6. Анализ конкуренции
- Растворите 10 мкл связанного белка (шаг 5.6) с помощью электрофореза в геле додецилсульфата натрия (SDS-PAGE) и вестерн-блоттинга.
- Инкубируйте мембрану при 4 °C O/N в антителе против GFP, разведенном в 1/1000 в блокирующем буфере, разбавленном до 1x в PBS, 0,1% Tween-20 для обнаружения обоих меченых GTPase-связывающих белков.
- Промойте мембрану три раза в течение 10 мин PBS, 0,1% Tween-20.
- Инкубируйте мембрану в течение 30 мин при ОТ в DyLight 800-конъюгированное вторичное антитело против кролика, разведенное 1/10 000 в блокирующем буфере, разведенное до 1x в PBS, 0,1% Tween-20.
- Промойте мембрану три раза в течение 10 мин PBS, 0,1% Tween-20.
- Отсканируйте мембрану с помощью инфракрасной системы визуализации, используя программное обеспечение для измерения интенсивности полосы в соответствии с протоколом производителя.
- Нанесите график зависимости интенсивности полосы каждого белка от объема вариабельного конкурента (белка В).
- Разделите объем переменного конкурента в точке, в которой линии пересекаются, на объем постоянного конкурента (белка А, 5 мкл), чтобы определить соотношение конкурентов, при котором достигается равновесие.
- Для валидации статуса загрузки нуклеотидов зондируйте мембраны для p21-активированной киназы 1 (PAK1) (эффектор) и GFP-TrioD1 (GEF), как описано на этапах 6.1-6.6.
Результаты
Данный протокол разработан для расчета относительного сродства партнеров по связыванию с Rac1 без необходимости знать точную концентрацию конкурентов (Рисунок 1). Определение концентрации белка вносит погрешности и не требуется при рассмотрении конкуренции между молекулами в сигнальном пути. Однако важно знать, что два конкурента имеют одинаковую молярную концентрацию в стоковых растворах, чтобы можно было рассчитывать простые соотношения при добавлении различных объемов в анализ. 40 µl гранул GFP-Trap имеют связывающую способность ~300 pmol, поэтому конфлюэнтные колбы объемом 75 cm2 с клетками с высокой экспрессией насытят гранулы, в результате чего препараты двух разных связывающих белков будут схожи до проведения корректировки (Рисунок 2A). Если один из белков экспрессируется плохо, эту проблему можно решить, очистив данный белок из более чем одной колбы с клетками.
Связывание большинства эффекторов и регуляторов GTPase зависит от того, какой нуклеотид загружен в GTPase-приманку, поэтому важно проверить, прошла ли загрузка успешно. Загрузку можно подтвердить путем осаждения известных связывающих белков из клеточных лизатов. Эффекторные белки, такие как PAK1, связываются с GTP-Rac1, и их можно легко осадить из лизатов и обнаружить с помощью вестерн-блоттинга 8 (Рисунок 2B). GEF преимущественно связываются с GTPase, не содержащей нуклеотидов, для стабилизации переходного состояния. Поскольку GEF присутствуют в низких концентрациях, обычно неактивны и часто плохо визуализируются на блотах, для проверки GTPase без нуклеотидов лучше использовать гиперэкспрессию GEF или фрагмента GEF. Мы часто используем первый Dbl-гомологичный домен белка Trio, экспрессируемый в виде слияния с GFP (GFP-TrioD1 9) (Рисунок 2B), но подойдет любой GEF. Белки, связывающиеся с GTPase, загруженной GDP, встречаются реже. Недавно мы сообщили о белке RCC2 как об одном из таких белков 7; в противном случае загрузку GDP можно подтвердить просто отсутствием связывания как с GEF, так и с эффектором.
Результатом эксперимента будет вестерн-блот, демонстрирующий два меченных GFP связывающих партнера, связанных с ГТФазой. Используя одну антитело для детекции обоих белков, можно определить концентрации, при которых связываются равные количества обоих конкурентов, и, следовательно, сделать вывод об их относительной аффинности. В данном примере показана конкуренция между пропеллерным доменом белка транспорта Rac1, коронина-1C (связывающий белок A), и белка-секвестранта Rac1, RCC2 (связывающий белок B) (Рисунок 3A). Используя постоянный объем пропеллера коронина-1C (5 µl) и добавляя увеличивающиеся объемы RCC2, мы видим по блоту GFP, что равновесие достигается при 1,25-2,5 µl RCC2 (звездочка), что доказывает более высокую аффинность RCC2 к Rac1 по сравнению с коронином-1C. Измеряя интенсивность полос с помощью количественного вестерн-блоттинга и строя графики средних значений для каждого конкурента, можно точно рассчитать точку равновесия, определив объемы, при которых кривые пересекаются (Рисунок 3B).
Одним из возможных препятствий для успешного проведения анализа конкурентного связывания является ситуация, при которой партнеры по связыванию взаимодействуют не только с Rac1, но и друг с другом. На Рисунке 3A+B мы демонстрируем конкуренцию между RCC2 и пропеллерным доменом коронина-1C, а не полноразмерным коронином-1C. Причиной использования усеченного коронина является то, что коронин-1C также связывается с RCC2 через хвостовой домен. При титровании полноразмерного коронина-1C относительно RCC2 обнаруживается связывание обоих белков из-за образования тройного комплекса, а не конкуренции (Рисунок 3C). Если происходит конкуренция, связывание одного белка будет увеличиваться, в то время как связывание другого будет снижаться, а общее количество связанного GFP-слитого белка останется постоянным. В случаях, когда образуется тройной комплекс, необходимо усечь один из ГТФаз-связывающих белков, чтобы конкуренты больше не взаимодействовали.
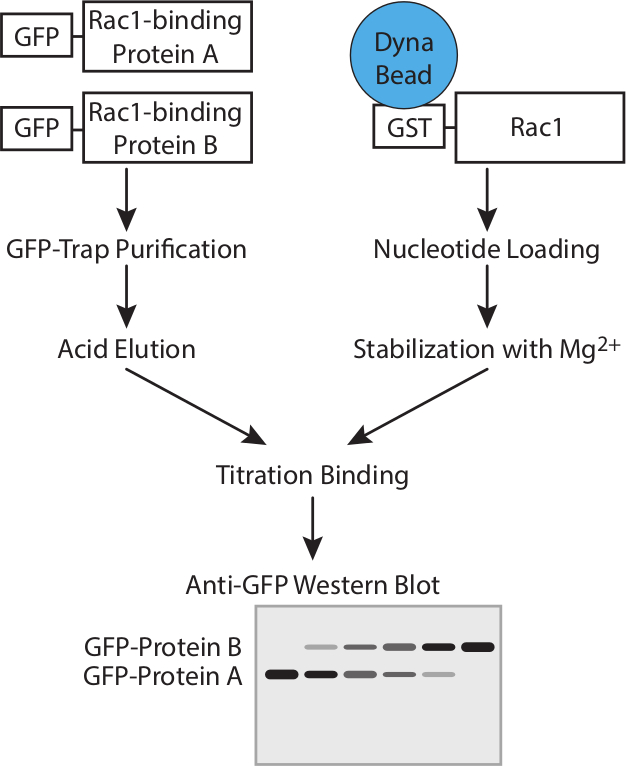
Рисунок 1. Схема работы. Схематическое представление рабочего процесса определения аффинности GTPase-связывающих белков с помощью конкурентного анализа. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.

Рисунок 2. Валидация очищенных белков. (A) Очищенные белки, связывающиеся с Rac1 с GFP-меткой, проанализированы методом вестерн-блота с использованием антител к GFP для определения относительного выхода двух белков. Такой тип выравнивания в ходе эксперимента позволяет скорректировать концентрацию двух белков так, чтобы они совпадали в эксперименте по связыванию. (B) GST-Rac1, нагруженный GDP, GTPγS или не содержащий нуклеотидов, инкубировали с лизатом клеток HEK293T, экспрессирующих GFP-TrioD1; связавшиеся белки выявляли путем детекции эндогенного PAK1 или оверэкспрессированного GFP-TrioD1. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
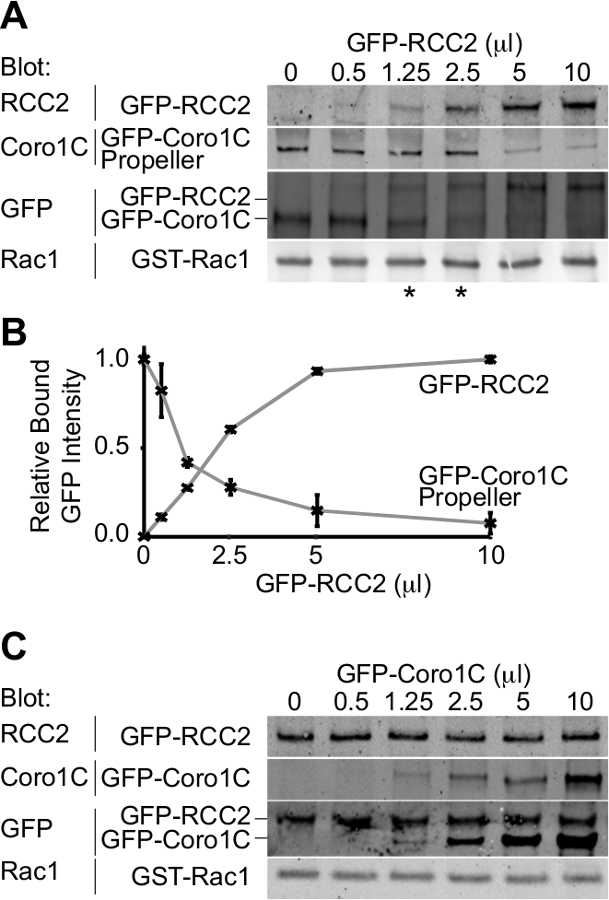
Рисунок 3. Вестерн-блот анализ относительного связывания белков. Примеры результатов анализов конкурентного связывания. (A) Rac1, нагруженный GDP, смешивали с 5 µl пропеллерного домена GFP-coronin-1C и титровали возрастающими объемами GFP-RCC2. Благодаря вестерн-блоттингу белков, связанных с GFP, удается избежать проблем с дифференциальным детектированием двух белков, и сигнал GFP отражает молярное соотношение между двумя слитыми белками. Звездочками отмечены коэффициенты конкуренции по обе стороны от точки равновесия. (B) Интенсивность полос связанных слитых белков GFP из трех независимых экспериментов измеряли методом количественного вестерн-блоттинга с использованием вторичных антител, конъюгированных с флуорофором; средние значения нанесены на график для расчета количества RCC2, необходимого для достижения равновесия. (C) Пример результата эксперимента, в котором белки, связывающиеся с Rac1, связываются друг с другом и образуют тройной комплекс, а не конкурируют. Rac1, нагруженный GDP, смешивали с 5 µl GFP-RCC2 и титровали возрастающими объемами полноразмерного GFP-coronin-1C. Увеличение количества связанного GFP-coronin-1C без потери связанного GFP-RCC2 указывает на образование тройного комплекса. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
Этот протокол описывает метод сравнения относительного сродства пар малых ГТФаз-связывающих белков. Ключевыми этапами являются получение очищенных ГТФаза-связывающих белков и нуклеотидная загрузка ГТФазы. Использование GTPase-связывающих белков с одной и той же меткой GFP позволяет точно определить концентрации, при которых связываются аналогичные количества каждого конкурента. Использование рекомбинантной нуклеотид-нагруженной ГТФазы позволяет исследовать связывающие свойства ГТФазы в определенных условиях активности. Этот этап также является наиболее чувствительным, поскольку нуклеотиды будут как гидролизоваться, так и отделяться от ГТФазы, если условия содержания магния не поддерживаются в точности.
В клетке большое количество ГТФаза-связывающих белков в сочетании с быстрым оборотом нуклеотидов затрудняет интерпретацию таких путей. Простота этого метода, заключающегося в сравнении только пар связывающих белков и использовании тщательно контролируемых условий загрузки нуклеотидов, позволяет выяснить сигнальные пути. Тем не менее, самая большая сила протокола также является самой большой слабостью, поскольку он упрощает ситуацию in vivo . Для построения надежной гипотезы можно использовать конкурентные анализы, но затем ее следует проверить на клетках с помощью экспериментов по нокдауну.
Существует три особенности, которые необходимо учитывать при выборе GFP-меченых GTPase-связывающих белков для использования в эксперименте. Во-первых, гибридные белки должны хорошо экспрессироваться в клетках млекопитающих, таких как HEK293T, поскольку для анализа конкуренции требуется разумное количество белка. Во-вторых, должна быть обеспечена возможность очистки рекомбинантного белка без существенной деградации, а там, где это невозможно, следует рассмотреть возможность клонирования фрагмента, связывающего ГТФазу. В-третьих, два ГТФазы-связывающих белка должны растворяться друг от друга в SDS-PAGE, чтобы можно было провести анализ в разделе 6.
Существует ряд потенциальных предостережений в отношении эксперимента, которые необходимо рассмотреть и, возможно, устранить:
Возможная денатурация очищенных ГТФаза-связывающих белков на стадии кислотного элюирования или стерического препятствия меткой GFP. В наших руках они не были проблемой, но должны быть проверены. Очищенные белки могут быть протестированы с помощью функциональных анализов 10. В настоящее время существуют коммерческие наборы для тестирования активности GEF или GAP без необходимости использования нуклеотидов, меченных изотопами. Секвестрирующие белки по своей природе защищают ГТФазы от активности GEF или GAP, поэтому могут быть использованы в качестве конкурентных ингибиторов в коммерческих анализах GEF или GAP, как мы делали в нашей недавней публикации 7. Существенной особенностью белков, которые транспортируют ГТФазу, является способность связываться с ГТФазой, и это может быть легко проверено с помощью анализа с понижением давления. Альтернативный подход к проверке целостности белка, применимый ко всем связывающим белкам, заключается в титровании белка, элюированного из гранул GFP-ловушки, глицином с тем же белком, который был удален из гранул GFP-ловушки путем ферментативного расщепления. Эксперимент будет проанализирован путем зондирования как GFP-меченного, так и расщепленного белка с антителом против самого белка. Если белок не поврежден элюированием, равновесие должно быть достигнуто в соотношении 1:1. Этот подход также указывает на то, ставит ли присутствие GFP-метки само по себе под угрозу связывающие свойства белка-кандидата, хотя для этого требуется создание конструкции с ферментативным сайтом расщепления между меткой и связывающим белком. Независимо от того, скомпрометирован ли белок меткой или стадией элюирования, проблема может быть решена путем модификации протокола для использования альтернативного метода очистки. В отличие от GFP, связывающие белки могут быть помечены His, очищены с помощью Ni-NTA и проанализированы с использованием антител против His-метки. Важной особенностью является то, что оба связывающих белка должны иметь общую метку, хотя, при необходимости, к белку могут быть добавлены две метки, одна для очистки, а другая для детекции.
Протокол предназначен для исследования конкуренции между взаимодействиями с доменами I/II коммутатора. Хотя большинство взаимодействий ГТФазы опосредованы этим мотивом, есть некоторые исключения, в первую очередь взаимодействия GDI, которые связываются с пренильным хвостом, а также затемняют домены переключения. В принципе, протокол может быть адаптирован для использования ГТФазы, очищенной из клеток млекопитающих, так что ГТФаза пренилирована, однако наличие множественных сайтов связывания или аллостерических эффектов усложняет интерпретацию данных по связыванию конкурентов. Дальнейшие проблемы, связанные с такой модификацией, заключаются в том, что GDI совместно очищаются с ГТФазой из клеток млекопитающих, что ставит под угрозу чистоту выделенных белков, а гидрофобная природа пренильных групп означает, что пренилированные ГТФазы связаны либо с GDI, либо с липидной мембраной, и такие факторы необходимо учитывать в эксперименте.
Количество GST-Rac1, используемое в анализе. Константный белок, связывающий ГТФазу, должен быть в большей концентрации, чем Rac1, иначе при добавлении конкурента он просто свяжется со свободным Rac1. Если это произошло, то это будет сразу же очевидно, поскольку связывание конкурента без потери постоянного белка будет обнаружено во многом таким же образом, как и при связывании двух конкурирующих белков друг с другом, как показано на рисунке 3В. В качестве дополнительного контроля (Шаг 5.3) следует включить реакцию связывания, содержащую вдвое большее количество постоянного связывающего белка и не содержащую вариабельного связывающего белка (Стадия 5.3). Если Rac1 в эксперименте с титрованием насыщен, удвоение количества постоянно связывающегося белка не окажет влияния на выход. Объемы, предложенные в протоколе, должны быть соответствующими, но количество Rac1 можно легко уменьшить. Если наблюдается связывание конкурента без потери постоянного партнера по связыванию, следует попытаться уменьшить количество Rac1, прежде чем пытаться картировать сайты связывания, чтобы избежать образования тройного комплекса.
Неспецифическое взаимодействие ГТФаз-связывающих белков с GST или гранулами, а также конкретно с Rac1. Эта проблема может проявляться в остаточном связывании постоянного белка, связывающего ГТФазу, даже когда вариабельный белок, связывающий ГТФазу, достиг плато при высокой концентрации. Выявлению этой проблемы будет способствовать проведение реципрокных экспериментов, в которых постоянные и вариабельные белки, связывающие ГТФазу, меняются местами. Взаимные эксперименты также значительно повысят точность оценки точки равновесия, поэтому их следует всегда включать. В случаях неспецифического связывания относительные концентрации, при которых достигается равновесие, все еще могут быть рассчитаны путем сравнения интенсивности полосы между максимумами и минимумами для каждого белка или путем измерения степени неспецифического связывания с использованием гранул GST в качестве приманки, а не GST-Rac1.
В дополнение к конкурентному анализу, описанному в данном протоколе, следует использовать анализы с использованием различных условий загрузки нуклеотидов. Определение нуклеотидных предпочтений партнеров важно как для понимания событий конкуренции, так и для понимания сигнального пути, в котором участвует ГТФаза-связывающий белок. На рисунке 2B мы анализируем связывание белков с установленным предпочтением ГТФ-загруженной или нуклеотидной ГТФазы в качестве средства валидации нуклеотидной нагрузки. Тем не менее, имеет смысл исследовать влияние нуклеотидной нагрузки на каждого из конкурентов. Если гипотетические конкуренты продемонстрируют разные предпочтения, конкуренция будет вносить меньший вклад в сигнальный путь, и действительно, обмен нуклеотидов, вероятно, будет механизмом, который управляет обменом связывающими белками.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Эта работа была поддержана грантом Wellcome Trust 088419 MDB.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Bugbuster | Novagen | 70584-3 | |
| ПОЛНЫЙ ингибитор протеазы | Roche | 05 056 489 001 | |
| Магнитные шарики глутатиона | Пирс | 88821 | |
| Полиэтиленимин, разветвленный, средний M<суб>ш ~25,000 | Сигма Олдрич | 408727-100ML | |
| OPIMEM | Life Technologies | 31985-047 | |
| Модифицированный Eagle Media от Dulbecco | Sigma Aldrich | D5796 | |
| Фетальная бычья сыворотка | Life Technologies | 10270-1-6 | |
| L-глутамин | Life Technologies | 25030-024 | |
| GFP-Trap_A | Chromotec | gta-20 | |
| GDP | Sigma Aldrich | G7127 | Крайне нестабильный. Аликвоту и хранить при -80 сразу после восстановления |
| ГТФ&гамма; S | Sigma Aldrich | G8634 | Крайне нестабильный. Аликвота и хранить при -80 сразу после реконструции |
| Блокирующий буфер | Sigma Aldrich | B6429 | |
| Tween-20 | Sigma Aldrich | P9416 | |
| Anti-GFP антитела | Living Colors | 632592 | Использовать при разведении 1/1000 |
| DyLight 800 конъюгированный козий анти-кролик вторичное антитело | Fisher Scientific | 10733944 | |
| Anti-PAK1 антитело | Клеточная сигнализация | 2602S | использование при разведении 1/1000 |
| Odyssey SA Инфракрасная система визуализации | Li-cor | 9260-11PC |
Ссылки
- Burridge, K., Rho Wennerberg, K. and Rac take center stage. Cell. 116 (2), 167-179 (2004).
- Raftopoulou, M., Hall, A. Cell migration: Rho GTPases lead the way. Dev Biol. 265 (1), 23-32 (2004).
- Rossman, K. L., Der, C. J., Sondek, J. GEF means go: turning on RHO GTPases with guanine nucleotide-exchange factors. Nat Rev Mol Cell Biol. 6 (2), 167-180 (2005).
- Worthylake, D. K., Rossman, K. L., Crystal Sondek, J. structure of Rac1 in complex with the guanine nucleotide exchange region of Tiam1. Nature. 408 (6813), 682-688 (2000).
- Scheffzek, K., Ahmadian, M. R. GTPase activating proteins: structural and functional insights 18 years after discovery. Cell Mol Life Sci. 62 (24), 3014-3038 (2005).
- Del Pozo,, A, M., et al. Integrins regulate GTP-Rac localized effector interactions through dissociation of Rho-GDI. Nat Cell Biol. 4 (3), 232-239 (2002).
- Williamson, R. C., et al. Coronin-1C and RCC2 guide mesenchymal migration by trafficking Rac1 and controlling GEF exposure. J Cell Sci. 127 (Pt 19), 4292-4307 (2014).
- Del Pozo, M. A., Price, L. S., Alderson, N. B., Ren, X. D., Schwartz, M. A. Adhesion to the extracellular matrix regulates the coupling of the small GTPase Rac to its effector PAK. Embo J. 19 (9), 2008-2014 (2000).
- Van Rijssel, J., Hoogenboezem, M., Wester, L., Hordijk, P. L., Van Buul, J. D. The N-terminal DH-PH domain of Trio induces cell spreading and migration by regulating lamellipodia dynamics in a Rac1-dependent fashion. PLoS. 7 (1), e29912(2012).
- Self, A. J., Hall, A. Measurement of intrinsic nucleotide exchange and GTP hydrolysis rates. Methods Enzymol. 256, 67-76 (1995).
Перепечатки и разрешения
