Настоящий протокол описывает, как Вестерн-блоттинга и иммуноцитохимия в сочетании с ингибированием лизосомальных ферментов могут быть использованы для демонстрации понижающей регуляции цилиарного нейротрофического рецептор фактора-альфа (CNTFRα), который транспортируют посредством взаимодействия между цитокинами фактор-1 (CLF-1 ) и эндоцитотический рецептора sorLA.
Методическая статья
SorLA и CLC: КТМ-1-зависимый Подавление CNTFRα в продемонстрированной Вестерн-блоттинга, ингибирование лизосомальных ферментов и иммуноцитохимию
В этой статье
Краткое содержание
Аннотация
Гетеродимерный цитокин кардиотрофином-цитокина: цитокин-подобный фактор-1 (КРК: КТМ-1) ориентирована glycosylphosphatidylinositol (ИГП) -anchored CNTFRα с образованием тримерного комплекса, который впоследствии новобранцев гликопротеин 130 / ингибирующий лейкоз рецептор фактора-бета (gp130 / LIFRβ) для передачи сигналов. Оба CLC и CNTFRα необходимы для передачи сигналов, но до сих пор КТМ-1 был только известен как мнимого посредника CLC секреции. Тем не менее, в последнее время было показано, что КТМ-1 содержит три участка связывания: один для CLC; один для CNTFRα (что может способствовать сборки тримера комплекса); и один для эндоцитоза рецептора sorLA. Последний сайт обеспечивает высокую степень сродства связывания CLF-1, CLC: CLF-1, а также тримера (CLC: CLF-1: CNTFRα) комплекса к sorLA, и в sorLA-экспрессирующих клеток растворимые лиганды CLF-1 и CLC : КТМ-1 быстро забирали и усвоены. В клетках коэкспрессирующей CNTFRα и sorLA, CNTFRα первый связывает CLC: КТМ-1 с образованиеммембраносвязанным связанный тример комплекс, но он также подключается к sorLA через свободный sorLA-связывающий сайт в CLF-1. В результате, CNTFRα, который не имеет возможности для эндоцитоза на своего, дернул вдоль и усвоены sorLA-опосредованного эндоцитоза CLC: CLF-1.
Настоящий протокол описывает экспериментальные процедуры, используемые для демонстрации I) sorLA-опосредованного и CLC: КТМ-1-зависимой понижающей регуляции поверхностной мембраны экспрессии CNTFRα; б) sorLA-опосредованного эндоцитоза и лизосомальная адресности CNTFRα; и III) пониженный клеточный ответ на CLC: CLF-1-стимуляции при sorLA-опосредованной понижающей регуляции CNTFRα.
Введение
CLC и КТМ-1 представляют собой две субъединицы гетеродимерным цитокина CLC: CLF-1 1-3. Для индукции клеточного сигнала, CLC: КТМ-1 первый Целевые показатели CNTFRα, его первичная и ГПИ-привязанный-рецептор, чтобы сформировать связанный с мембраной тримерный комплекс. CLC: КТМ-1: CNTFRα комплекс затем рекрутирует gp130 / LIFRβ , которая опосредует сигнализации трансмембранный через Янус - киназа / преобразователи сигналов и активаторов транскрипции 3 (JAK / STAT3) пути 4. Мыши , дефицитные по любой из трех субъединиц отображения один и тот же фенотип и умирают в течение 24 ч после родов вследствие уменьшения количества лицевых нейронов и недостаточная сосунка 5-8. Полученные данные в организме человека аналогичным образом подчеркивают функциональную последовательность из трех субъединиц. Таким образом, человеческие мутации (гомозиготы или соединение), в результате чего дисфункция CLC: КТМ-1 или CNTFRα, все в результате синдрома так называемой холодной индуцированной потоотделение / Crisponi, состояние, характеризующееся такими симптомами, как impaiкрасный сосания и глотания, различные Дисморфоза особенности, температурные пики, и парадоксальным и заливать потливость при низких температурах 9-11.
В пробирке, сочетание CLC и CNTFRα является необходимым и достаточным для взаимодействия с gp130 / LIFRβ и индукции сигнализации в клетках 12. Роль CLF-1 с другой стороны, менее ясна. Он не принимает непосредственного участия в передаче сигналов, и уже давно рассматривается в качестве приложения , который в основном служит для облегчения клеточного секреции CLC 1. Однако недавние исследования показывают, что КТМ-1 имеет дополнительные и более важные функции, как о причастности сигнализации и оборот CLC и CNTFRα. Таким образом, оказывается, что КТМ-1 содержит три независимых сайтов связывания: один для его хорошо известное связывание с КГО; который посредничает прямое связывание с CNTFRα; и третий (высокое сродство) сайт для взаимодействия с рецептором эндоцитоза sorLA. Как и CLC и КТМ-1 & #, кажется,160; целевой CNTFRα со значительным меньшим сродством , чем CLC: КТМ-1 комплекса, можно предположить , что КТМ-1 ( с помощью своего сайта-связывающего CNTFRα) способствует объединению CLC и CNTFRα и тем самым облегчает сигнализации 13.
Взаимодействие КТМ-1 с sorLA, основным вопросом настоящего представления, играет совершенно иную роль. SorLA является одним из пяти 1 -го типа рецепторов на которые составляют рецептор семейства 14 Vps10p-домена. Это выражается в различных тканях , но , в частности , в головном мозге и нервных тканей 15. Подобно другим членам семьи sorLA несет N-концевого лиганда Vps10p-домен, но кроме того, оно также включает в себя другие типы домен , включая лиганд-связывающих элементов , обнаруженных в члены рецептора липопротеинов семейства с низкой плотностью 15. Ее цитоплазматический хвост взаимодействует с несколькими адаптерных белков, например, адаптер белок-1 и -2 и sorLA передает эффективные endocytosэто так же как внутриклеточное сортировка и транспортировка связанных белков 16-18. Vps10p-домен содержит большое десяти лопастной бета-пропеллер 19,20, который связывает ряд несвязанных лигандов , в том числе CLF-1 (но в частности, не CLC) 13. Сайт связывания в CLF-1 доступен даже после того, как комплексообразование с CLC и CNTFRα , что означает , что sorLA связывает не только свободный КТМ-1, но также CLC: КТМ-1 и тример комплекс КРК: КТМ-1: CNTFRα 13. SorLA передает быстрое эндоцитоз CLF-1 и CLC: CLF-1, но они представляют собой растворимые белки, в то время как CNTFRα крепится к поверхности мембраны с помощью GPI-якоря. Поэтому вопрос состоит, если связывание CLC: КТМ-1: CNTFRα позволяет sorLA усваивать весь комплекс и, таким образом, чтобы изменять поверхность мембраны экспрессию CNTFRα (и последующую клеточную восприимчивость к CLC: индукция сигнала КТМ-1), и / или оборот CNTFRα.
Эксперименты, описанные в настоящемотчет были разработаны, чтобы прояснить следующие вопросы:
Есть ли посредником sorLA CLC: КТМ-1-зависимой понижающая регуляция поверхностной мембраны CNTFRα? Чтобы уточнить это, он был первоначально пытались определить оборот CNTFRα (в отсутствие и в присутствии sorLA) с помощью метаболических маркировки и пульс-чейз экспериментов , как описано в 21. Однако попытки маркировать CNTFRα с использованием смеси [S 35] цистеина и [S 35] показали , метионин плохое включение радиоактивности. Это позволяет предположить очень низкую степень нового-синтеза, который, по всей вероятности будет не в состоянии компенсировать внезапной и значительной потере рецепторов. Для того, чтобы определить, является ли CNTFRα была подавлена, когда соединены между собой с помощью CLC: КТМ-1 до sorLA, поэтому было решено просто измерить (с помощью Вестерн-блоттинга) общий клеточный пул CNTFRα до и после воздействия CLC: КТМ-1 - и сравнить результаты в клетках, трансфицированных или не трансфицировалиsorLA.
предназначаться ли sorLA CNTFRα в лизосомы? Чтобы ответить на этот вопрос, локализация CNTFRα - усвоены через его CLC: КТМ-1-опосредованного связывания с sorLA - исследовали с помощью иммуноцитохимия, и этикетирование с антителами, направленными в сторону CNTFRα и поздних эндосом / лизосом маркера лизосом-ассоциированного мембранного белка 1 (LAMP-1). Эксперимент проводили на клетках, обработанных, а также необработанный с ингибиторами лизосомальных ферментов. Идея состояла в том, конечно, что если CNTFRα разжаловали в лизосомах, в клетках, обработанных ингибиторами фермента представит CNTFRα-окрашивание, накапливающейся в LAMP-1 положительных везикул, в то время как необработанные клетки показали бы мало или нет окрашивания для CNTFRα.
Есть ли снизить CNTFRα деактивация клеточный ответ на CLC: CLF-1 стимуляции? Тример комплекс, состоящий из ХЖК, CLF-1 и сигналов CNTFRα через gp130 / LIFRβ гетеродимера с использованием JAK / STAT3путь. Соответственно, способность клеток реагировать на CLC: сигнализация КТМ-1 при понижающей регуляции CNTFRα была изучена с помощью Вестерн-блот-детекции и количественного определения на фосфо-STAT3 (pSTAT3) / общий уровень STAT3 в sorLA трансфектантов.
Протокол
1. Западная блоттинг лизатов CNTFRα
- Экспресс полнометражный sorLA и Мус-меченый CNTFRα строит в эмбриональной почки человека 293 (НЕК293) клеток с использованием пкДНК3.1 / Zeo (-) и pcDNA3.1 / Hyg (-), соответственно. Трансфекции клеток HEK293 с конструкты с использованием коммерческого реагента для трансфекции в соответствии с постав-протоколу. Выберите стабильные клоны в среде , содержащей 150 мкг / мл Zeocin и / или 500 мкг / мл гигромицина Gold 13.
- Семенной равное количество HEK293 трансфектантов выражения либо CNTFRα-Мус или коэкспрессирующей CNTFRα-Myc / sorLA в двух 4-луночных планшетах , как показано на рисунке 1. Культура клеток в среде Игла Модифицированные Eagle's Среда Игла (DMEM) , дополненной 10% плодной бычий сывороточный (ФБС), 100 ед / мл пенициллина и 100 мкг / мл стрептомицина (полная среда) в инкубаторе с 5% диоксида углерода в при 37 ° с.
- Подождите, пока клетки не 50 - 80% сплошности.
- Извлеките носитель изскважин, промыть один раз с Дульбекко фосфатно - солевом буферном (DPBS), и добавить свежую полную среду с использованием или без (контроль) 10 нМ CLC: КТМ-1 , как показано на рисунке 1. Инкубируйте клетки при 37 ° С.
- После того, как 0 и 5 ч инкубации, восстановить среду и хранить его при температуре 4 ° С в 1,5 мл пробирки. Затем добавляют 1% Тритон Х-100 буфер для лизиса (20 мМ Трис-HCl, 10 мМ ЭДТА, рН 8,0) с добавлением ингибитором протеиназы коктейлем в каждую лунку (1 мин, 4 ° С). Впоследствии, передавать клеточные лизаты до 1,5 мл пробирки (4 ° С).
- Спин пробирки, содержащие среды и клеточный лизат (3000 XG, 3 мин, 4 ° С) и передать супернатанты 1,5 мл пробирки (4 ° С). Выбросите осадок. Передача 5 мкл каждого клеточного лизата надосадочной к новым 1,5 мл пробирки - использовать их для измерения содержания белка позже (шаг 1.7). Немедленно добавьте невосстанавливающих LDS буфер выборки для всех супернатантах и вихре образцы.
- Используйте 5 мкл аликвоты для измерения Protсодержание Эйн в клеточных лизатов супернатантах с использованием коммерческого анализа белка в соответствии с протоколом производителя.
- Тепло образцов при 95 ° С в течение 5 мин.
- Индивидууму одинаковое количество белка из каждого образца для снижения SDS-PAGE 13 и вестерн - блоттинга 13 и визуализировать содержание sorLA, бета-актина и CNTFRα-Мус в среде и в клеточных лизатов с использованием кроличьего анти-sorLA 16 (5 мкг / мл), мышиное анти-β-актина (0,4 мкг / мл), и мышиное анти-Мус (1 мкг / мл) антитела и соответствующие ПХ-св занных вторичных антител (1: 2000).
- Количественно полосы с помощью денситометрии в соответствии с протоколом производителя.
2. Иммуноцитохимическая в комбинации с лизосомальных ингибиторам
- Семенной НЕК293 , стабильно трансфицированные CNTFRα-Myc / sorLA на обложке слайды в 4-луночного планшета , как показано на рисунке 2. Культуры клеток в полной среде, как указано выше.
- Подождите, пока клетка не стечение 20 - 40%.
- Удалить среду из лунок и добавляют полную среду с использованием или без 50 мкг / мл лейпептина и пепстатина А (Leu / PEP) (ингибирует лизосомальные гидролаз) к клеткам , как показано на рисунке 2. Инкубируйте клетки при 37 ° С. Носитель должен быть заменен каждые 6 часов в течение следующих 24 ч инкубации.
- Через 24 ч инкубации, еще раз замените носитель (с или без Лей / PEP) и на этот раз добавляют 10 нМ CLC: CLF-1. Инкубируйте клетки при 37 ° С в течение 5 часов.
- Промывают клетки один раз в PBS и зафиксировать их в 4% параформальдегид, рН 7 в течение 15 мин при комнатной температуре.
Внимание: параформальдегид является высокотоксичным, избегать контакта с кожей, глазами и слизистой. Перчатки и защитные очки следует носить и решения на заказ внутри вытяжного шкафа. - Промывают клетки один раз в PBS и клетки проницаемыми в течение 5 мин при комнатной температуре в сапонина, разведенного в PBS (0,5% сапонина).
- Развести козы к антигенам CNTFRα (1 мкг / мл) (в частности,не мышиное анти-Мус использовали для Вестерн-блоттинга), а также мышиное анти-LAMP-1 (15 мкг / мл) антител в 0,5% сапонина и инкубировать клетки с антителами в течение 2 ч при комнатной температуре.
- Промыть клетки 4 раза (5 мин) в 0,5% сапонина и инкубировать клетки с осла анти-козел Alexa 488- и осла против мышиного Alexa 568-конъюгированные вторичные антитела (6 мкг / мл) в течение 2 ч при комнатной температуре.
- Вымойте клетки 4x (5 мин) в 0,5% сапонина, дважды в деионизированной воде (1 мин), а также крепление крышки слайдов на предметные стекла микроскопа с помощью монтажного средства массовой информации.
- Анализировать антитело-окрашивание клеток с помощью конфокальной микроскопии с использованием лазерной сканирующей конфокальной микроскопии с целью погружения в воду в 63X C-Apochromat, NA 1.2.
3. Вестерн-блот-определение уровня pSTAT3
- Семенной HEK293-sorLA клетки (которые выражают эндогенные уровни CNTFRα) в 4-луночного планшета , как показано на рисунке 3. Культуры клеток в полной среде, как указано выше.
- Подождите, покаКлетки 50 - 80% сплошности.
- Удалите среду из лунок, мыть один раз в PBS, и добавить свежую полную среду с или без 10 нМ CLC: CLF-1 к клеткам , как показано на рисунке 3. Инкубируйте клетки при 37 ° С в течение 5 часов.
- Извлеките носитель, промыть клетки дважды в DMEM без добавок (пустой среде, без FBS и антибиотиков), а затем reincubate клетки в течение 90 мин (при 37 ° С) в пустой среде.
- Еще раз, удалите среду и добавьте свежую чистую среду с или без 5 нМ CLC: CLF-1 (для инициирования STAT3 фосфорилирования) , как показано на рисунке 3. Инкубировать в течение 15 мин при 37 ° С.
- Быстрое удаление среды и лизиса клеток (1 мин, 4 ° С) путем добавления 1% Тритон Х-100 буфер для лизиса (20 мМ Трис-HCl, 10 мМ ЭДТА, рН 8,0) с добавлением ингибитор протеиназы коктейль и ингибитор фосфатазы коктейль в каждую лунку. Впоследствии, передавать клеточные лизаты до 1,5 мл пробирки (4 ° С).
- Передача 5 мкл Oе каждый супернатант к новым 1,5 мл пробирки - использовать их для измерения содержания белка позже (шаг 3.8). Немедленно добавьте невосстанавливающих LDS буфер выборки для всех супернатантах и вихре образцы.
- Измеряют содержание белка в аликвотах по 5 мкл с использованием коммерческого анализа белка в соответствии с протоколом производителя.
- не Разрушать ультразвуком каждого образца при комнатной температуре, пока они больше не вязким (приблизительно 1 мин), а затем нагревают их при температуре 95 ° С в течение 5 мин.
- Индивидууму одинаковое количество белка от каждого образца SDS-PAGE 13 и вестерн - блоттинга 13 и визуализировать содержание pSTAT3 и общего STAT3 в клеточных лизатов с использованием кроличьего анти-pSTAT3 (1: 2000) и мышиного анти-STAT3 (1: 1000 ) антитела и соответствующие ПХ-сшитый мышиные и кроличьи вторичные антитела (1: 2000).
- Количественно полосы с помощью денситометрии в соответствии с протоколом производителя.
Результаты
На рисунке 1 показано схематическое представление посевом клеток и CLC: КТМ-1 инкубирования в протоколе 1. На рисунке 2 показано схематическое представление посевом клеток и Лей / PEP и CLC: КТМ-1 инкубации в протоколе 2. Рисунок 3 показывает схематическое представление посевом клеток и CLC: КТМ-1 инкубации и стимуляции в протоколе 3. на рисунке 4 показана sorLA-опосредованной CLC: КТМ-1-зависимой понижающая регуляция CNTFRα. На рисунке 5 показана sorLA-эндоцитоза и лизосомальных адресности CNTFRα. На рисунке 6 показан нижний ответ на CLC: КТМ-1 после стимуляции CNTFRα понижающей.
Обратите внимание, что полосы, обозначающие CNTFRα-Myc имеют аналогичную плотность в нулевой момент времени, в то время как подавление CNTFRα-Myc демонстрируют более слабой полосы в sorLA трансфектантов AFTEг 5 ч (рисунок 4). На рисунке 5 показано , что CNTFRα-Мус накопилось в LAMP-1 положительных везикул Лей / бодрости духа обработанных клетках. В противоположность этому, никакого накопления CNTFRα-Мус не наблюдается в клетках, не подвергнутых обработке Leu / PEP. Это свидетельствует о том, что CNTFRα-Мус сортируется в лизосомы и деградируют. Как можно видеть на рисунке 6, уровень pSTAT3 значительно снижается в предварительно стимулированных клеток , по сравнению с уровнем в клетках , которые не были подвержены CLC: CLF-1. Это согласуется с наблюдаемым sorLA-опосредованной понижающей регуляции CNTFRα в предварительно стимулированных клеток (рисунок 4).
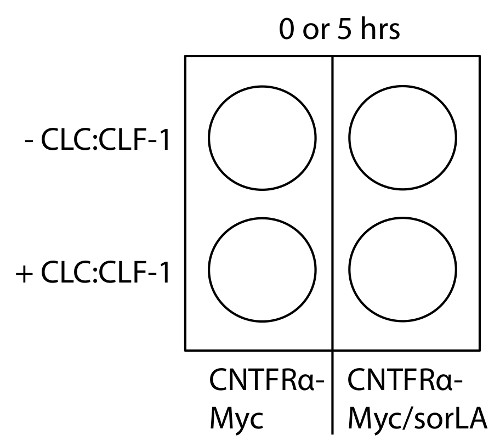
Рисунок 1: Схематическое изображение посевом клеток и CLC: КТМ-1 инкубации в протоколе 1. семенной HEK293-CNTFRα-Myc и HEK293-CNTFRα-Myc / sorLA клеток в двух 4-луночные планшеты (0 и 5 ч) и инкубировать клетки с CLC: КТМ-1, как указано. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
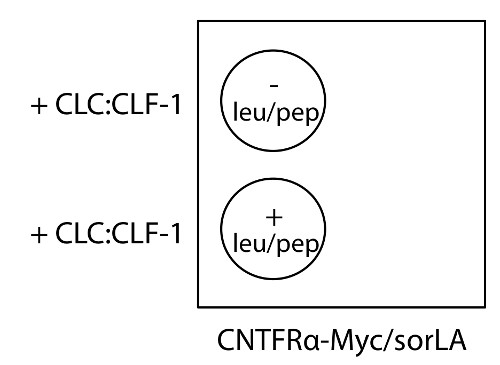
Рисунок 2: Схематическое изображение посевом клеток и Лей / бодрости духа и CLC: КТМ-1 инкубирование в протокол 2. семенной HEK293-CNTFRα-Myc / sorLA клеток на покровных слайды в 4-луночного планшета и инкубировать клетки с или без лея / бодрости духа и CLC: КТМ-1, как указано. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
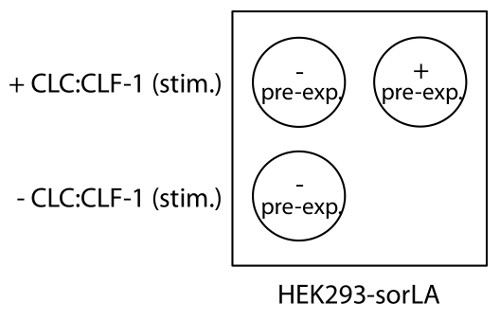
Рисунок 3: Схематическое представление посевом клеток и CLC: CLF инкубации и стимуляции в протокол 3. семенной HEK293-sorLA клеток в одном 4-луночного планшета и инкубировать клетки с или без CLC: (. пре-EXP) CLF-1 до подавляют CNTFRα с последующим CLC: КТМ-1 стимуляции (. стим), чтобы инициировать STAT3 фосфорилирования, как указано. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
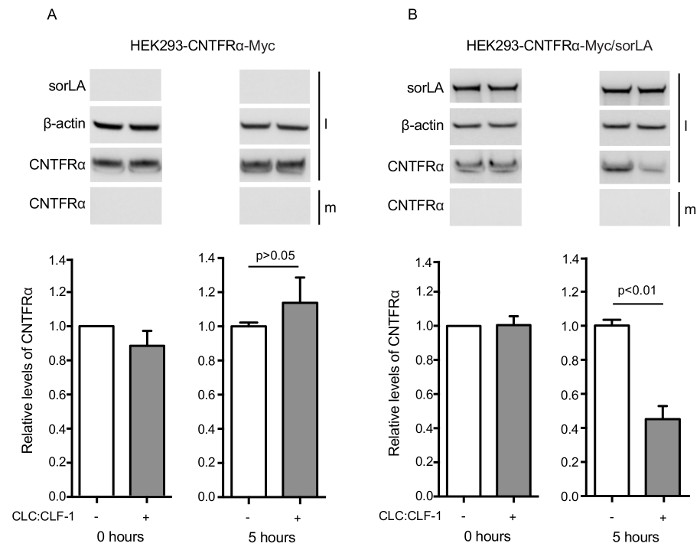
Рисунок 4: Результаты , показывающие , что SorLA посредничает CLC: КТМ-1-зависимой понижающая регуляция CNTFRα. (А) НЕК293-CNTFRα-Мус и клетки (B) НЕК293-CNTFRα-Мус / sorLA инкубировали в отсутствие (белые столбцы) или в присутствии (серые столбцы) 10 нМ CLC: CLF-1. После того, как 0 и5 ч, инкубацию прекращали и содержание CNTFRα-Мус в среде (м), а также в клеточных лизатов (л) определяли с помощью Вестерн-блоттинга и количественно с помощью денситометрии. Верхние панели показывают Вестерн-блот результаты репрезентативных экспериментов и нижние панели показывают обнаруженные уровни CNTFRα-Мус, найденные в клеточных лизатов. Уровни приведены по отношению к уровню CNTFRα-Мус в одиночных и двойных трансфектантов при 0 ч. Каждый столбец представляет собой среднее значение ± SEM (n = 3). р-значения рассчитаны с использованием критерия Стьюдента. Воспроизводится после оригинального рисунка 13. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
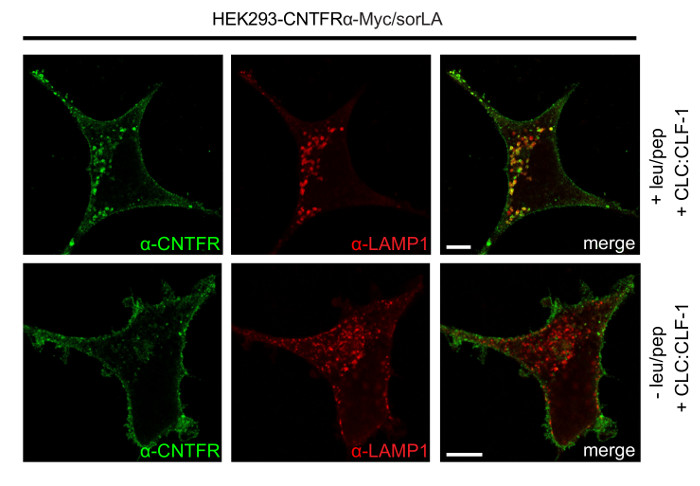
Рисунок 5:Результаты , показывающие , что SorLA посредничает эндоцитоз и лизосомальных адресности CNTFRα. НЕК293-CNTFRα-Мус / sorLA клетки обрабатывали или без Лей / PEP, инкубировали с 10 нМ CLC: КТМ-1 в течение 5 ч, фиксированы, и, наконец, окрашивали с использованием анти-CNTFRα и анти-LAMP-1 антител, как описано в протоколе 2. Шкала баров: 5 мкм. Воспроизводится после оригинального рисунка 13. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
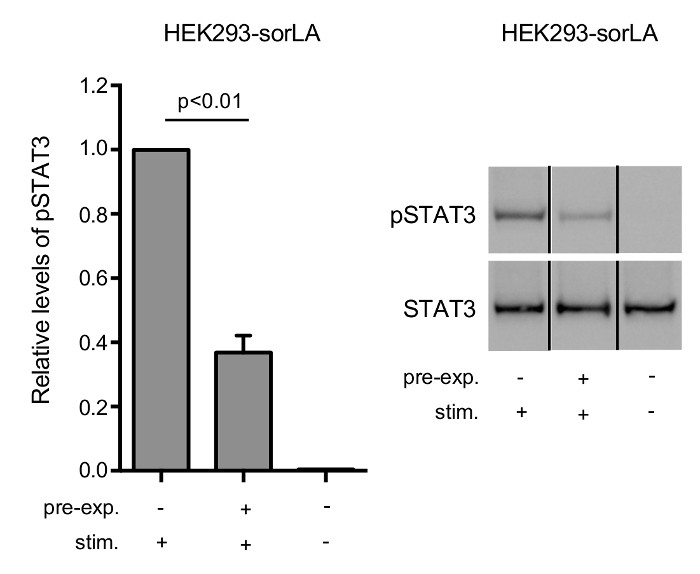
Рисунок 6: SorLA опосредованную понижающая регуляция CNTFRα сопровождается пониженным клеточным ответом на CLC: КТМ-1 стимуляции.
НЕК293-sorLA клетки предварительно инкубировали в отсутствие или в присутствии 10 нМ CLC: (. Пре-ехр) КТМ-1 в течение 5 ч, голодали в БланK среда в течение 90 мин, и стимулировали 5 нМ CLC: (. стим) КТМ-1 в течение 15 мин. (Слева) Столбцы показывают относительные уровни pSTAT3 в клетках. Каждый столбец представляет среднее значение ± SEM (n = 3) по отношению к уровню pSTAT3 в клетках, предварительно инкубированных в отсутствие CLC: КТМ-1, но стимулированные CLC: КТМ-1. р-значение, вычисленное с использованием критерия Стьюдента. (Справа) Вестерн - блот показывает ответ pSTAT3 и STAT3 полученные в типичном эксперименте. Воспроизводится после оригинального рисунка 13. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
Обсуждение
Протокол, описанный здесь, может быть использован специально для демонстрации sorLA-опосредованную CLC: КТМ-1-зависимой деактивация и лизосомальная нацеливание CNTFRα, а также сопутствующее ослаблена реакция на CLC: КТМ-1 стимуляции.
Клеточной линии HEK293 хорошо подходит для этого протокола, поскольку они имеют лишь незначительную эндогенную экспрессию CNTFRα и sorLA, легко трансфекцию, экспресс-gp130 / LIFRβ, и имеют большое тело клетки, которое подходит для иммуногистохимии. Тем не менее, в теории любой клеточной линии с аналогичными свойствами должна работать.
Протокол имеет два важнейших этапа. Первый из них касается шаг 2,3, в котором Leu / PEP среда должна быть заменена примерно каждые 6 часов в течение 24 часов. Несоблюдение этого правила может привести к активным лизосомальных ферментов и меньше или без заметного накопления белка в лизосомах. Второй важный шаг (3.4) относится стирка при предварительной инкубации с CLC: КТМ-1. Это имВАЖН для удаления несвязанного лиганда, и дать время клеткам восстановиться (избегая постоянной стимуляции) в DMEM (неполной эндотелиальной пустой среды). Это позволит обеспечить низкий фоновый уровень pSTAT3 во время последующей повторной стимуляции с CLC: КТМ-1 (шаг 3.5).
Следует отметить, что рисунок 6 показывает , что клеточный ответ (pSTAT3) уменьшается параллельно с sorLA-опосредованной понижающей регуляции CNTFRα. Следует подчеркнуть, однако, что, хотя снижение реакции в соответствии с (и следовало ожидать от) уменьшение пула CNTFRα, это не доказывает, что низкая экспрессия CNTFRα в одиночку приходится уменьшенного клеточного ответа. Таким образом, изменения - в результате предварительной стимуляции или трансфекция - в любой из функциональных элементов сигнального пути вверх по течению к pSTAT3, возможно, внесли свой вклад в измененном ответ.
Основная концепция протокола не ограничивается этим particuлар система рецептора. (Т. Е другой клеточной линии, и другие антитела, другие лиганды, и т.д.) Изменяя протокол может быть использован для определения индуцированной лигандом понижающей регуляции других рецепторов , а также - независимо от участия sorLA's. Тем не менее, следует отметить , что анализ рецепторного-понижающей с помощью вестерн - блоттинга, в основном , подходит для рецепторов, например, GPI-привязанный рецепторы, которые обнаруживают медленный оборот и низкую степень нового синтеза в нестимулированных клетках. Таким образом, в рецепторах, показывающие высокий уровень нового-синтеза, лиганд-индуцированной деактивация могут быть компенсированы путем синтеза новых рецепторов. В этих обстоятельствах, понижающая регуляция пула рецепторов вместо этого может быть определено с помощью метаболических маркировки и пульс-чейз экспериментов , как описано в 21. В качестве альтернативы, йодированные антитела (предпочтительно Fc-фрагменты), которые не вмешиваются связывания с рецептором может быть использован для "метки" эктодомена Receptили, и ожидаемый деактивация может затем быть определено путем подсчета радиоактивного осадка клеток и среды.
По материально-техническим причинам мы трансфецировали наши клетки с CNTFRα построить несущий Myc-метки, а в настоящем протоколе мышиного анти-Мус антитела использовали для Вестерн-блот-обнаружения рецептора. В противоположность этому, козий анти-CNTFRα использовали антитела для иммуногистохимии и двойной маркировки в качестве LAMP-1 был обнаружен с помощью мышиного антитела - и, очевидно, использование двух первичных антител мыши будет приводить к неспецифической (перекрытие) окрашиванием вторичными антителами. Обратите внимание, что, так как козий анти-CNTFRα также работает в вестерн-блоттинга (не показан), протокол может быть легко модифицирован и применен к клеток, трансфицированных немаркированной CNTFRα.
И, наконец, в последнее время было показано , что также эндоцитотический sortilin рецептор связывает CLC: CLF-1 с высоким сродством 22. Таким образом, можно предположить, что sortilin, какsorLA, межблочные CLC: CNTFRα через CLF-1 и может быть посредником эндоцитоза и лизосомальных адресности CNTFRα, а также. Использование sortilin вместо sorLA, настоящий протокол может быть использован для выяснения этого вопроса.
Раскрытие информации
Авторы не имеют ничего раскрывать.
Благодарности
У авторов нет благодарностей.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Zeocin | InvivoGen | ant-zn-1 | |
| Hygromycin B Gold | InvivoGen | ant-hg-1 | |
| FuGENE 6 Реагент для трансфекции | Roche | 11 815 091 001 | |
| 4-луночные планшеты (Nunclon Delta Surface) | Thermo Scientific | 176740 | |
| Safe-Lock tubes | Eppendorf | 0030 120.086 | |
| Dulbecco Modified Eagle´ s Среда (DMEM) | Lonza | BE12-604F/U1 | |
| Фетальная сыворотка крупного рогатого скота (FBS) | Thermo Scientific | 10270106 | |
| Пенициллин/Стрептомицин | Thermo Scientific | 15140122 | |
| Дульбекко фосфат буферизованный физиологическим раствором (ДПБС) | HyClone | SH30028.02 | |
| CLC:CLF-1 | R& D Systems | 1151-CL/CF | |
| Мышь Anti-LAMP-1 | DSHP | H4A3 | |
| Rabbit anti-sorLA | Reference 16 | ||
| Мышиный анти-b-актин | Sigma | A2228 | |
| Мышь анти-Myc | Genscript | A00704 | |
| Козья анти-CNTFRa | НИР D Systems | AF-303 | |
| Rabbit anti-pSTAT3 | Технология клеточной сигнализации | 9145s | |
| Мышь anti-STAT3 | Технология клеточной сигнализации | 9139s | |
| Anti-mouse HRP-linked антитела | Технология клеточной сигнализации | 7076s | |
| Anti-rabbit HRP-linked антитела | Технология клеточной сигнализации | 7074s | |
| Anti-goat HRP-related антитело | Dako | P0160 | |
| Donkey anti-goat вторичное антитело, конъюгат Alexa Fluor 488 | Invitrogen | A11055 | |
| Ослиное вторичное антитело против мыши, Alexa Fluor 568 конъюгат | Invitrogen | A10037 | |
| Leupeptin | Sigma | L8511-5MG | |
| Pepstatin A | Sigma | P4265-5MG | |
| Triton X-100 | AppliChem | A1388 | |
| Tris-HCl | Merck | 1,082,191,000 | |
| EDTA:Titriplex III | Merck | 1,084,180,250 | |
| cOmplete mini EDTA-free | Roche | 11836170001 | |
| PhosSTOP | Roche | 04 906 837 001 | |
| LDS Буфер для проб (4x) | Novex | NP0007 | |
| Bio-Rad Protein Anasay | Bio-Rad | 500-0006 | |
| 4% параформальдегид (PFA) | VWR | 97,135,000 | |
| Сапонин | Sigma | S7900-100G | |
| Монтажный носитель | Dako | S3023 |
Ссылки
- Elson, G. C., et al. CLF associates with CLC to form a functional heteromeric ligand for the CNTF receptor complex. Nat Neurosci. 3 (9), 867-872 (2000).
- Senaldi, G., et al. Novel neurotrophin-1/B cell-stimulating factor-3: a cytokine of the IL-6 family. Proc Natl Acad Sci U S A. 96 (20), 11458-11463 (1999).
- Elson, G. C., et al. Cytokine-like factor-1, a novel soluble protein, shares homology with members of the cytokine type I receptor family. J Immunol. 161 (3), 1371-1379 (1998).
- Lelievre, E., et al. Signaling pathways recruited by the cardiotrophin-like cytokine/cytokine-like factor-1 composite cytokine: specific requirement of the membrane-bound form of ciliary neurotrophic factor receptor alpha component. J Biol Chem. 276 (25), 22476-22484 (2001).
- Zou, X., et al. Neonatal Death in Mice Lacking Cardiotrophin-Like Cytokine (CLC) is Associated with Multifocal Neuronal Hypoplasia. Vet Pathol. 46 (3), 514-519 (2008).
- Forger, N. G., et al. Cardiotrophin-like cytokine/cytokine-like factor 1 is an essential trophic factor for lumbar and facial motoneurons in vivo. J Neurosci. 23 (26), 8854-8858 (2003).
- Alexander, W. S., et al. Suckling defect in mice lacking the soluble haemopoietin receptor NR6. Curr Biol. 9 (11), 605-608 (1999).
- DeChiara, T. M., et al. Mice lacking the CNTF receptor, unlike mice lacking CNTF, exhibit profound motor neuron deficits at birth. Cell. 83 (2), 313-322 (1995).
- Crisponi, L., et al. Crisponi syndrome is caused by mutations in the CRLF1 gene and is allelic to cold-induced sweating syndrome type 1. Am J Hum Genet. 80 (5), 971-981 (2007).
- Crisponi, G. Autosomal recessive disorder with muscle contractions resembling neonatal tetanus, characteristic face, camptodactyly, hyperthermia, and sudden death: a new syndrome. Am J Med Genet. 62 (4), 365-371 (1996).
- Sohar, E., Shoenfeld, Y., Udassin, R., Magazanik, A., Revach, M. Cold-induced profuse sweating on back and chest. A new genetic entity. Lancet. 2 (8099), 1073-1074 (1978).
- Guillet, C., et al. Functionally active fusion protein of the novel composite cytokine CLC/soluble CNTF receptor. Eur J Biochem. 269 (7), 1932-1941 (2002).
- Larsen, J. V., et al. Cytokine-Like Factor 1, an Essential Facilitator of Cardiotrophin-Like Cytokine:Ciliary Neurotrophic Factor Receptor alpha Signaling and sorLA-Mediated Turnover. Mol Cell Biol. 36 (8), 1272-1286 (2016).
- Willnow, T. E., Petersen, C. M., Nykjaer, A. VPS10P-domain receptors - regulators of neuronal viability and function. Nat Rev Neurosci. 9 (12), 899-909 (2008).
- Jacobsen, L., et al. Molecular characterization of a novel human hybrid-type receptor that binds the alpha2-macroglobulin receptor-associated protein. J Biol Chem. 271 (49), 31379-31383 (1996).
- Nielsen, M. S., et al. Sorting by the cytoplasmic domain of the amyloid precursor protein binding receptor SorLA. Mol Cell Biol. 27 (19), 6842-6851 (2007).
- Jacobsen, L., et al. The sorLA cytoplasmic domain interacts with GGA1 and -2 and defines minimum requirements for GGA binding. FEBS Lett. 511 (1-3), 155-158 (2002).
- Klinger, S. C., et al. SorLA regulates the activity of lipoprotein lipase by intracellular trafficking. J Cell Sci. 124 (7), 1095-1105 (2011).
- Kitago, Y., et al. Structural basis for amyloidogenic peptide recognition by sorLA. Nat Struct Mol Biol. 22 (3), 199-206 (2015).
- Quistgaard, E. M., et al. Ligands bind to Sortilin in the tunnel of a ten-bladed beta-propeller domain. Nat Struct Mol Biol. 16 (1), 96-98 (2009).
- Larsen, J. V., et al. Human sorCS1 binds sortilin and hampers its cellular functions. Biochem J. 457 (2), 277-288 (2014).
- Larsen, J. V., et al. Sortilin facilitates signaling of ciliary neurotrophic factor and related helical type 1 cytokines targeting the gp130/leukemia inhibitory factor receptor beta heterodimer. Mol Cell Biol. 30 (17), 4175-4187 (2010).
Перепечатки и разрешения
