Живые изображения конфокальных обеспечивают биолог с мощным инструментом для изучения развития. Здесь мы представляем подробный протокол для живой конфокальной микроскопии развития Arabidopsis цветов.
Методическая статья
Живой конфокальной визуализации Развития Arabidopsis Цветы
В этой статье
Краткое содержание
Аннотация
Изучение роста и развития растений уже давно полагались на экспериментальных методов с использованием мертвых, неподвижных тканей и не имеющих надлежащего клеточное разрешение. Последние достижения в области конфокальной микроскопии, в сочетании с развитием многочисленных флуорофоров, преодолели эти проблемы и открыли возможность изучить экспрессию нескольких генов одновременно, с хорошим ячеистым разрешением, в живых образцах. Живые изображения конфокальных обеспечивают биолог растений с мощным инструментом для изучения развития, и широко используются для изучения роста корней и формирования органов боковых на флангах апикальной меристемы побега. Тем не менее, он не был широко применяется для изучения развития цветка, отчасти из-за проблемы, которые являются специфическими для визуализации цветов, такие, как чашелистики, которые растут над цветочной меристемой и отфильтровать флуоресценцию от нижележащих тканей. Здесь мы представляем подробный протокол для выполнения конфокальной микроскопии живой в прямом эфире, развитие арабаidopsis бутоны, используя либо прямой или инвертированный микроскоп.
Введение
Большая часть тела растений образует после зародыше из группы стволовых клеток, расположенных на или вблизи вершины - или апикальных меристем - побегов и корней. Все надземные структуры взрослых растений происходят из апикальной меристемы побега (SAM), который непрерывно производит боковые органы на флангах: листы в фазе вегетативной и цветочные меристемы (FMS) после перехода к репродуктивной фазе. Главы МИД, в свою очередь превратиться в цветы. В то время как Arabidopsis САМ производит органы боковой по одному за раз, в итерационном, спирали, Главы МИД производят четыре типа цветочных органов в течение четырех мутовках, в частично синхронным образом, с несколькими программами развития разгадке одновременно. Генетические сети , лежащие в основе спецификации идентичности различных цветочных органов были частично расшифрованы (обзоры, ссылки см 1, 2), но многие аспекты цветка developmeнт, например, цветочные позиционировании органа и определение границ между мутовками, по-прежнему плохо изучено.
Ранние молекулярные генетические исследования развития растений в основном полагались на методы , такие , как гибридизация и репортеров ВСО для анализа экспрессии генов в. Хотя эти методы предоставили огромное количество информации и внесли большой вклад в наше понимание роста и развитие растений цветка, существует серьезные ограничения: они не имеют хорошее клеточное разрешение, не позволяют легко наблюдение паттерна экспрессии нескольких генов в том же образцы, и, что важно, может быть применен только к мертвым, фиксированных тканей. Последние достижения в области конфокальной микроскопии преодолеть эти ограничения, а также обеспечить онтогенетики с мощным инструментом для исследования процессов, лежащий морфогенеза растений. В частности, конфокальной микроскопии позволяет для наблюдения живых тканей и органов на протяжении всей их формирования, что сritical полностью понять квинтэссенцию динамического процесса, как развитие.
Живые изображения конфокальных широко используются для анализа антенного роста растений и производства боковых органов со стороны SAM (например , ссылки 3, 4, 5, 6), но за исключением нескольких отчетов (например , ссылки 7, 8, 9, 10), он не был широко применяется для изучения развития цветка. Протоколы для живых конфокальной визуализации SAM доступны (например , ссылки 11, 12), а также обеспечить хорошую основу для того, как изображения развивающихся бутонов , которые окружают SAM. Тем не менее, цветочные почки изображения представлены конкретные задачи: например,цветочные почки быстро стать больше , чем САМ, а на этапе 4, чашелистики начать покрытие FM (этапы , как описано в ссылке 13), и регулировки яркости флуоресценции от нижележащих тканей (фиг.2А). Здесь мы приводим подробный протокол, объясняющие, как выполнять конфокальной микроскопии живой на развитие Arabidopsis бутонов, используя либо прямой или инвертированный микроскоп и водно-погружной объектив. Ранее мы опубликовали этот протокол в работе14.
Протокол
1. Средства массовой информации и столовая Подготовка
- Подготовьте рассечения блюда, заполнив круглые пластиковые коробки (примерно 6 см в ширину, 2 см в глубину) до 0,5 см с 2% агарозы.
- Приготовьте визуализации блюда.
- Для вертикального конфокального микроскопа, заполнить прямоугольные пластиковые навесные коробки (длиной около 7 см, 4,5 см в ширину, 3 см глубиной) до 0,5 см со средой визуализации (см раздел 1.3, «визуализации среды»; фиг 1F).
- Для перевернутой конфокальной микроскопии: заполнить небольшую чашку Петри (около 3,5 см в ширину, 1 см в глубину) точно до краев со средой визуализации (смотри раздел 1.3, «визуализации среды»; рис 1G).
- Подготовка среды визуализации.
- Для точки визуализации одного, используют 1% агарозы.
- Для покадровой экспериментов используют среду роста (апекс 0.5x Мурашига и Скуга базальной смесь солей без витамина, 1% сахарозы, 0,8% агарозы, рН 5,8 с hydroxid калияе раствора, с добавлением витамина [0,01% мио-инозита, 0,0001% никотиновой кислоты, 0,0001% пиридоксина гидрохлорида, 0,001% тиамина гидрохлорид, 0,0002% глицина] и цитокининов [500 нМ N6-бензиладенина]) 15.
2. Рост растений
- Высевают семена на стерилизованных MS пластинах (0,5 или 1x Мурашига и Скуг базальной соли смеси без витамина, 0,8% агара, рН 5,8 с помощью раствора гидроксида калия) с соответствующим выбором. Место пластина длинного дня (16 ч света) или непрерывный день, 16-22 ° C условия в течение двух недель.
- Пересадка рассады в почву с достаточным расстоянием, чтобы обеспечить надежное развитие. Место растений в короткий день, 16-22 ° C условия в течение трех недель.
Примечание: Выращивание растений в долгий день или непрерывном режиме в день непосредственно после пересадки приводит к преждевременному цветению и соцветию, которые являются менее энергичными, и гораздо труднее анализировать. Аналогичным образом, в результате чего растения под короткий день КондитИоны в течение более трех недель приводят к длине независимого дня цветения и соцветий, которые являются менее энергичными. - Передача растения на долгий день (16 ч света) или непрерывный день, 16-22 ° C условия, пока они цветок. Стреляйте Вершины легче всего рассекают, когда соцветия длиной 2-10 см.
3. Рассечение Shoot Apex
- Дополнительно: Использование тонкой заточной камень и капли светлого масла, заострить щипцы под стереоскопическим, чтобы сделать их лезвие типа, а не точечным.
- Удалить стручки, старые цветочные почки и вторичные соцветия из первичного соцветия, нажав на базу цветоносов с пинцетом, пока они не сломаются. Удалить столько цветов , как это возможно без увеличения (рис.1, сравнить А и В).
- Использование щипцов, прошивное вертикальное отверстие в агарозах рассекают блюдо, отрезать последние 0,5 см от соцветия и вставить его вертикально в агарозах. Оставшиесяцветочные почки должны быть над поверхностью агарозов.
- Наполните блюдо изображений с стерильной деионизованной водой, так что стрелять апекс полностью погружен в воду. Поместите рассекает блюдо под стереомикроскопом, и удалить воздух , захваченный вокруг верхушки побегов пути создания водяных струй с 1000 мкла пипеткой (фиг.1, сравнить C и D).
- Под стереоскопического, используйте щипцы для удаления бутонов, которые не быть отображены, нажав на основании цветоноса или в верхней части бутона до плодоножки разрывов (рис 1E). Важно, что цветоносы перерыв чисто на стыке со штоком, а оставшиеся цветоносы препятствуют удалению молодых цветочных почек.
- Если визуализация только цветочные почки стадия 5 и моложе (фиг.2А), удалить воду перед рассечением стадии 6-8 цветочных почек. Если цветок визуализации почки стадии 5 и старше, перейдите к чашелистник абляции (смотри раздел 5.1). В противном случае, проCeed к шагу 3.7.
- Использование щипцов, проколоть вертикальное отверстие в среде с тарелки изображения и палки препарировали апекс прямо в среде, так что только стрелять апикальной меристемы и окружающие цветочные почки над поверхностью среды. В зависимости от того, какого бутона цветка (ы) должны быть отображены, это может быть необходимо слегка наклонить образец, так как цветочные почки не обязательно ориентированными так же , как шток (фиг.2А).
- Переходим к окрашиванию образца, если это необходимо. Если не окрашивание и / или визуализации образца сразу, добавьте воду и закройте блюдо изображений, чтобы предотвратить обезвоживание. При использовании инвертированного микроскопа, поместите блюдо изображения в прозрачной пластиковой коробке и закройте его.

Рисунок 1: Приготовление побегов верхушек для конфокальной микроскопии живой. (А - Е) рассечениястрелять верхушку для визуализации. Соцветие до (А) и после (б) удаления стручков и старых цветов. (С - D) , стрелять апекс погружен в воду в рассекает блюдо, с воздушным пузырем , захваченного в наконечнике (С) и после удаления пузырьков воздуха (D). (E) стрелять верхушку в рассекает блюдо, после рассечения бутонов старше стадии 5. (F - G) Вид стрелять верхушках в блюдо визуализации, на стадии вертикального (F) и перевернутой (G) конфокальный микроскоп , В формуле (F), A-40X воды погружения линз расположена над одной из вершин, с наконечником линзы погружают в воду. В (G), стрелять вершина расположена вниз над 40X воды погружение линзой, с водяным столбом , соединяющей среду формирования изображения до кончика линзы. Меньше панели в (F) показывает HIGее вид увеличения площади в красном прямоугольнике с верхушкой побега, вставленной в среде формирования изображения; красные и голубые линии указывают на поверхность среды и воды, соответственно. (H - I) Примеры заказных устройств , которые позволяют добавлять больше воды в наконечнике водно-окунание линзы: кремниевая резиновый рукав , изготовленный из ботинка свечи зажигания (H), и импровизированного рукав , изготовленный из пальца powderless латексные перчатки (G). Масштабные полоски = 0,5 см в (A) и (B), 0,1 см в (C) и (D), и 100 мкм (Е). Эта цифра была первоначально опубликована в ссылке 14. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
4. Окрашивание
Примечание: Клеточные стенки или плазматические мембраны могут быть окрашены с пропидийиодидом или FM4-64, соответственно, для достижения сотового разрешенияво время съемки. В качестве альтернативы, репортер линия с флуоресцентными белками , помеченных к плазматической мембране может быть использована 6, 16.
- Удалите воду из чашки формирования изображения, а также обеспечить поверхности среды является сухой, чтобы избежать разбавления красителя.
- Под стереомикроскопом, применяют от 20 до 30 мкл либо 1 мг / мл раствора иодида пропидии или 80 мкг раствора / мл FM4-64 к вершине расчлененной с 10 мкла пипеткой. Убедитесь, что весь образец покрыт краской, чтобы обеспечить однородное окрашивание.
- Пятно в течение 2 мин при использовании пропидий йодида, или 20 мин при использовании FM4-64.
- Промыть два раза стерильной деионизированной воды.
5. чашелистник аблации
Примечание: На 4-й стадии, чашелистики зачатки начинают покрытие FM. Как они растут, они отфильтровывают флуоресценцию от основной ткани, а также помешать процессу формирования изображения. Чашелистики могут быть либо удалены вручную с помощью металлического штифта mounteд на пин-тиски, или предотвратить рост с помощью лазерной абляции по возникающему чашелистнику зачатков. В качестве альтернативы, можно в некоторых случаях использовать мутанты , такие как apetala1-1, в которых чашелистики отсутствуют или заменены листовидные органы , которые не покрывают FM в то время как центральная часть цветка развивается нормально (рис 2F) 17.
- Чашелистник абляция на цветочных бутонах стадии 5 и старше с использованием пин-тиски держит прямую металлическую иглу (рисунок 2, Е1-Е2)
- Поместите рассекает блюдо с расчлененной вершиной под стереоскопическим, и установите увеличение на максимум. Погрузить стрелять верхушку в стерильной деионизированной воде, или в качестве альтернативы, использовать 1000 мкл пипетку регулярно применять воду с верхушки побега, а рассекает чашелистики.
- С пин-тиски, поместите палец на верхней части абаксиальных чашелистиков, тангенциально относительно верхушку побега. Аккуратно надавите чашелистик от верхушки побега, пока она не отрываетсяот цветочного бутона.
- Действуйте аналогичны с адаксиальными чашелистиками, но толкать чашелистик к верхушкам побега.
- Продолжайте аналогичным образом с боковыми чашелистиками, но положение штифта в радиальном направлении относительно верхушки побега, и толкать чашелистики в сторону, подальше от бутона цветка.
- Погрузить стрелять верхушку в стерильной деионизированной воде в течение нескольких минут, чтобы предотвратить обезвоживание.
- Лазерная абляция чашелистник зачатков на стадии 3-4 (фиг.2, С5-D5)
- Поместите блюдо изображений с витражной, расчлененной вершиной на конфокальном столике микроскопа. Найдите и сосредоточиться на вершине, как будто готовясь к изображению его (смотрите раздел 6, «настройка изображения»).
- Использование системы абляции программного обеспечения лазера, определить зону абляции, которая соответствует гребню и кончику формирующегося чашелистника зачатков, прежде чем они начинают покрытие цветка меристемы (как правило, на стадии 3 для абаксиальных и адаксиальных чашелистиков, и на поздней стадии 3 / раннего этап 4 для бокового сдружки).
- Установленная мощность лазера и жилое время соответствующих параметров для абляции достаточно клеток, не причиняя слишком много повреждений нижележащих тканей. Как правило, в зависимости от системы лазерной абляции используется, правильные параметры первоначально должны быть определены в рамках процесса проб и ошибок, чтобы обеспечить достаточное количество клеток удаляются, чтобы предотвратить чашелистиков, чтобы впоследствии перерасти в FM, не затрагивая остальную часть цветка бутон. Использование слишком много мощности лазера и жилище результатов времени в ущербе в центр цветка, влияя на его рост и / или выживание. После того, как соответствующие параметры были определены, они могут быть повторно использованы для последующих экспериментов.
Примечание: Если начальная абляции оказывается недостаточной, можно перейти ко второму абляции на последующие дни (фиг.2, C4 и D2).
6. Настройка изображений
- Используйте прямой микроскоп.
- Заполните блюдо формирования изображения с рассеченными верхушками стерильной деионизированной водой так, чтобы поверхность среды покрыта 2,5-5 мм воды (рис 1F). Полностью погрузить образцы.
Примечание: При визуализации с использованием вертикального микроскопа, несколько Вершины могут быть размещены в том же блюде изображения. Однако, если процесс визуализации длится более часа, йодид пропидия имеет тенденцию быть разведены, и некоторые образцы, возможно, потребуется повторное окрашивание перед визуализации. - Поместите блюдо изображений на столике микроскопа (рис 1F). Опустить воды погружения линз и поднять на сцену так, чтобы кончик линзы провалов в воде. Действуйте осторожно, чтобы не раздавить рассеченные или окунуть вершины линзы в среду обработки изображений.
- Если воздушный пузырь удерживается на конце объектива, чтобы струи воды с объемом 1000 мкл пипетки, чтобы удалить его.
- Под эпифлуоресцентного освещением, положение одной из вскрытых верхушек в поле линзы с использованием XY конаТроллингист. Посмотрите через окуляры и сосредоточиться на образце, используя контроллер Z. Действуйте осторожно, чтобы не раздавить образца.
- С помощью конфокальной микроскопии программного обеспечения, увеличения на бутон цветка, чтобы быть отображены, и приступить к визуализации вашего образца.
- Заполните блюдо формирования изображения с рассеченными верхушками стерильной деионизированной водой так, чтобы поверхность среды покрыта 2,5-5 мм воды (рис 1F). Полностью погрузить образцы.
- Используйте инвертированный микроскоп.
- С помощью 1000 мкл пипетки капнуть каплю стерильной деионизированной воды на кончике линзы.
- Держите изображения тарелки вверх-вниз, и с 1000 мкл пипетку, добавьте каплю стерильной деионизированной воды к расчлененным вершине.
- Поместите изображения тарелки вверх-вниз на столик микроскопа (рис 1G). Действуйте осторожно, чтобы не раздавить образца.
- Под эпифлуоресцентного освещением, поместите расчлененную верхушку над кончиком объектива с помощью контроллера XY. С Z контроллером, осторожно опустить стадию, пока образец не достигнет капли воды на конце объектива. Столбец воды должен образовывать betwееп кончик объектива и среды.
- Если столб воды не образует, осторожно добавить каплю воды к образцу с 1000 мкл пипетки. Добавить самодельные рукава на объектив, чтобы добавить больше воды на его кончике, что облегчает создание и поддержание водного столба (рис 1Н и 1I).
- Под эпифлуоресцентного освещением, смотрите через окуляры и сосредоточиться на образце, используя контроллер Z. Действуйте осторожно, чтобы не раздавить образца.
- С помощью конфокальной микроскопии программного обеспечения, увеличения на бутон цветка, чтобы быть отображены, и приступить к визуализации образца.
- При выполнении экспериментов покадровых, вылить воду из тарелки изображения и закрыть его, чтобы предотвратить обезвоживание между точками времени. Поместите блюдо изображений с образцами в длинный день (16 ч света) или непрерывный день, 16-22 ° C условиями. Re-пятна образцы перед каждой временной точкой.
Примечание: В то время как клетки в Develoпинг цветочные органы могут разделить быстрее, клетки в цветочной меристемы делят один или два раза каждый второй день, и клеточные клоны легко отслеживать с точками времени каждые 24 ч. Однако, в случае необходимости, можно изображения образцов каждые шесть часов.
7. Соображения по визуализации параметров
Примечание: Как настроить параметры изображения во многом зависит от конфокальной используемой системы. Ниже приведены предложения для некоторых из этих параметров, которые могут быть использованы с любой конфокальной микроскопией. Для более соображений о параметрах обработки изображений в разделе Обсуждение и ссылки 14.
- Для разрешения XY: используйте 1,024 х 1,024 для хорошего клеточного разрешения. В качестве альтернативы, использовать 512 х 512 для уменьшения времени обработки изображений, за счет разрешения.
- Для разрешения Z: установить размер шага к 0,5-1,5 мкм. Понижение размера шага увеличивает разрешение Z но и время формирования изображения.
- Для прокола: установите крошечное отверстие в 1-1.5 воздушных единица. Увеличение крошечного отверстия увеличивает интенсивность сигнала, но и шум от не-фокальных плоскостей.
8. Визуализация данных конфокальной
- Включите неподвижные изображения временных точек развития цветка в кино.
- Открыть неподвижные изображения (в формате JPEG или TIF формата) в программном обеспечении (например, Fiji).
- Перейти к Image> Стеки> Изображения в стек. Открытые изображения будут сгруппированы в стек.
- Если порядок изображений в стеке не соответствует хронологическому порядку, использовать плагин Stack Сортировщика (Плагины> Стеки> Stack Сортировщик), чтобы изменить порядок их.
- Чтобы включить стек в кино, перейдите в меню Файл> Сохранить как> AVI.
Результаты
На рисунке 2 представлены различные виды конфокальных Z-стеки живых арабидопсиса цветочных почек , экспрессирующих различные флуоресцентные репортерные гены, и окрашивали либо пропидия иодида (рисунок 2, А-С5 и С) или FM4-64 (рисунок 2, E1-F) , к обеспечить четкое клеточное разрешение. Большинство конфокальной системы позволяют для визуализации двух флуорофоров с непересекающихся спектров излучения , такие как GFP или YFP вместе с либо пропидия иодида или FM4-64 (Фигура 2А - 2F). Лучшие системы конфокальных также способны разделить несколько флуорофоров с частично перекрывающимися спектрами излучения в одних и тех же образцах, такие как GFP и YFP, и DsRed и пропидийиодид (рис 2G).
Три примера покадровых экспериментов представлены на рисунке2 и показывают цветочные почки развиваются нормально после того, как чашелистник абляция была выполнена либо с системой лазерной абляции (фиг.2, С1-С5 и D1-D5) или вручную с пин-тиски и металлический штырь (Рисунок 2, Е1-Е2). Обратите внимание , что бутон цветка показан на рисунке 2, Е1-Е2 от сверхчеловека-1 мутантного растения, поэтому пестик зачатки не наблюдается в центре зародыша на стадии 7. лазерной абляции формирующегося чашелистника зачатков бутона показано на рисунке 2, С1-С5 предотвращает их от покрытия FM, который по- прежнему могут быть отображены на стадии 5 (фиг 2, С5). И наоборот, в случае бутона , показанный на рисунке 2, D1-D5, лазерная абляция только с задержкой роста чашелистиков, но в конечном счете , чашелистики выросли , чтобы покрыть большую часть FM на стадии 5 (фиг.2, D5 ). Наоборот, если слишком много мощности лазера и жилого время используются во время лазерной абляции, повреждение распространяется на центральную часть цветка и влияет на его рост, а иногда приводит к последующей гибели всего бутон цветка.
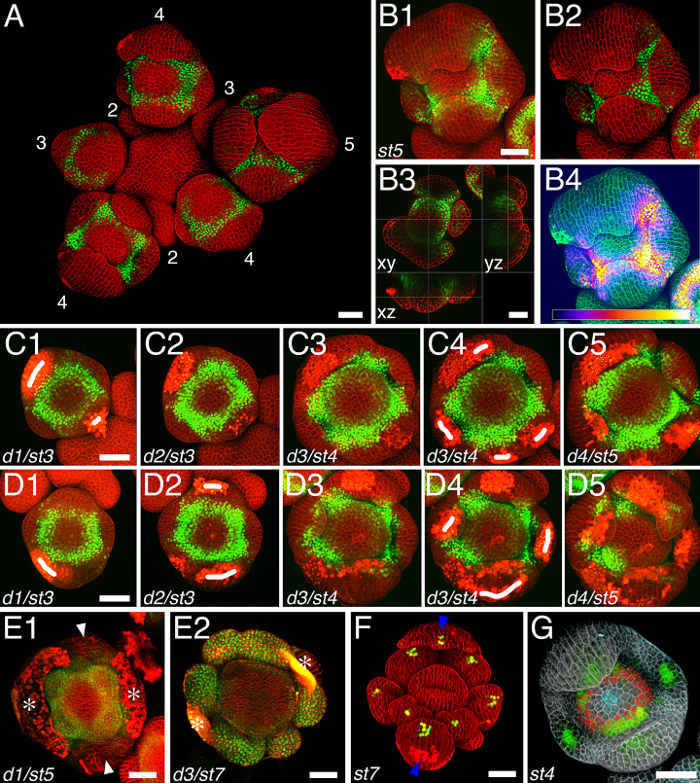
Рисунок 2: Визуализация конфокальной Z-стеки живых бутонов. А и В2 вид прозрачности; B1 и B4-G является максимальной проекцией интенсивности; B3 является ортогональным вид среза. (А - Е2) цветы , экспрессирующие репортер Венера для гена APETALA3 (зеленый); клеточные стенки окрашивали пропидийиодидом (красный, за исключением B4, зеленый). (А) соцветие; Цифры указывают цветочные этапы; чашелистики в стадии 4 и 5 цветов отфильтровать флуоресценцию репортера Венеры, который обычно Foсреднеквадратичное кольцо. Обратите внимание, что некоторые бутоны появляются наклонены по сравнению с соцветием. (В1 - В4) Четыре различные виды одного и того же конфокальной Z-стек на стадии 5 бутон цветка: проекция максимальной интенсивности (B1 и В4) с интенсивностью сигнала Венеры кодированной с интенсивностью пикселей в зеленом цвете (B1) или с огнем цветовым кодом (В4; цветовой код показан в нижней части панели); вид прозрачности (В2) и ортогональная проекция среза (В3; ориентация XY, XZ и YZ ломтиков указываются в панели). (С1 - С5) 4-дневная покадровый индивидуального бутона от стадии 3 к стадии 5; лазерная абляция (отмечено в виде белых признаков) проводила на день 1 и день 3 было достаточно , чтобы предотвратить чашелистики от покрытия центра бутона на стадии 5. (D1 - D5) 4-дневной покадровой индивидуального бутон цветка из сценаОт 3 до стадии 5; лазерная абляция, проведенная на 1-е дня, 2 и 3 была недостаточна, чтобы предотвратить чашелистики от покрытия центра бутона цветка. (E1 - E2) Индивидуальный бутон после ручного удаления абаксиальных и адаксиальных чашелистиков (E1) и всех чашелистиков (E2); белые стрелки указывают на оставшиеся чашелистиков; белые звездочки указывают шрамы в результате удаления чашелистиков. (F) стадия 7 apetala1-1 цветка , экспрессирующие DR5-3xVenusN7 репортера 18 (зеленый); плазматические мембраны окрашивали FM4-64 (красный); синие стрелки указывают листовидные структуры, заменяющие чашелистиков и не покрывают бутон цветка. (G) Стадия 4 бутона цветка , выражающий флуоресцентный GFP репортер Dornröschen-LIKE 7 (зеленый), репортер Венера Супермена (красный) и репортер DsRed для CLAVATA3 19 (голубого цвета); ячейкиСтены были окрашены пропидийиодидом (серый). д: день; й: стадия. Шкала бар = 25 мкм; Шкала идентична B1, B2 и B4, в C1-C5, и в D1-D5. Эта цифра была изменена с 14 ссылки. Пожалуйста , нажмите здесь , чтобы посмотреть увеличенную версию этой фигуры.
Обсуждение
Здесь мы приводим протокол для визуализации живых, развивающегося Arabidopsis бутонов с конфокальной микроскопией и водой погружной линзой. В то время как это может быть сделано либо в вертикальном положении или инвертированный микроскоп, то проще и быстрее использовать прежний. Также стоит отметить, что различные системы конфокальной существенно различаются с точки зрения скорости, чувствительности и способности разделять длины волн. Лучшая конфокальная микроскопы теперь позволяет получать изображения несколько различных каналов (например , GFP, YFP, DsRed и пропидийиодид; фигура 2G) в тех же образцах. Некоторые конфокальные микроскопы оснащены спектральным детектором, который может собрать флуоресценции от нескольких флуорофоров одновременно и отделить их потом. При использовании обычного детектора, однако, множество лазеров и фильтров должно быть использовано для возбуждения и отделить флуоресценции от различных флуорофоров. Некоторые флуорофоры имеют полностью отчетливые спектры излучения (например , CFPд YFP), и могут быть отображены одновременно. Другие флуорофоры имеют частично перекрывающиеся спектры излучения (например , GFP и YFP), и обычно должны быть отображены отдельно, что увеличивает время формирования изображения. Воображение близка флуорофора также часто требует ограничения, сколько спектра собирают для каждого канала, чтобы предотвратить флуоресценции от одного флуорофоры от утечки в другой канал. Это приводит к потере интенсивности собранного сигнала, который может быть компенсирован увеличением мощности лазера и усиление. Однако продолжительное время формирования изображения и увеличение мощности лазера может отбеливать и / или привести к повреждению образца. Увеличение мощности лазера и / или усиления может также увеличить фоновый шум. Оптимизация интенсивности сигнала, разрешение и времени съемки для каждого образца осуществляется через процесс проб и ошибок, и включает в себя постоянные компромиссы.
Этот протокол объясняет, как выполнять живую конфокальную микроскопию цветочных почек, развивающиеся на флангах расчлененной верхушки побега. ЭтоМожно утверждать, что тот факт, что стрелять вершина не соединена с остальной частью растения и растет в среде, содержащей цитокинины могут повлиять на SAM и развитие цветка. Однако, эта среда была разработана эмпирически через процесс проб и ошибок , чтобы обеспечить расчлененный стрелять апикальной меристемы производят новые цветочные почки при нормальной plastochron, и что эти бутоны развиваются нормально 15. Точно так же, чашелистник рассечение не кажется, влияет на характер экспрессии генов или развитие остальной части цветка. Другие протоколы подробно , как выполнять живую конфокальную визуализацию SAM еще прикреплены к остальной части растений (например , ссылка 11). Такие протоколы могут быть адаптированы к, и предлагают полезную альтернативу для визуализации развития цветов, особенно при изучении процессов цитокинина связанных. Они представляют собой ряд недостатков, однако: стволовые удлиняются и изгибы, и изменяют ориентацию цветочных почек;го во время получения изображения всхода апекса, прикрепленный к остальной части растений хорошо работает с прямым микроскопом, это гораздо сложнее сделать это с помощью инвертированного микроскопа.
Погружные линзы имеют лучшую числовую апертуру (NA) , чем «сухие» линзы (то есть линзы, которые отделенны от образца на воздухе), и , следовательно , обеспечивают более высокое разрешение образца, которое имеет решающее значение при использовании конфокальной микроскопии. Использование воды погружение линз, таким образом, обеспечивает гораздо лучше, чем NA сухой линзы, при предотвращении верхушки побега из дегидратации во время процесса формирования изображения. В то время как глицерин и масляные линзы имеют еще более высокий, чем NA воды линзы, они требуют использования покровного, что очень непрактично с образцом размера с верхушкой побега, который также продолжает расти в течение покадровых экспериментов. С учетом размеров образцов (в зависимости от цветочных этапов, стеки может быть более 150 мкм), также важно, чтобы использовать объектив с большим рабочим расстоянием, Как правило, мы используем 20 или 40X объектив с NA 1 и рабочим расстоянием 1,7-2,5 мм.
Конфокальный микроскоп программное обеспечение предлагает несколько способов для визуализации данных конфокальной, в том числе трехмерных реконструкций (рис 2, B1, B2 и B4) и мнения среза (рис 2, B3). В то время как наиболее часто используемые трехмерные виды максимальные проекции интенсивности конфокальной Z-стеки (рис 2, B1 и B4), некоторые программы (например , ZEN и Imaris) открывается вид прозрачности , который отфильтровывает сигнал из более глубоких частей образец (рисунок 2, В2), которые могут быть полезны при взгляде на процессы , происходящие, или генов , выраженных в, эпидермальным слоем. Интенсивность сигнала может либо быть закодированы с помощью одного цвета (фиг.2, B1), используя пиксельный Intensity, или с использованием цветового кода (рисунок 2, B4).
Живые изображения конфокальных предлагает не только ценное качественное понимание развития цветка, он также потенциально обеспечивает онтогенетику с богатством количественных данных. Различное программное обеспечение (например , Imaris, Fiji, МАРС-АЛТ, MorphographX 15, 20, 21) позволяет для количественного определения количества или объема клеток , экспрессирующих один или несколько репортеров, или уровень экспрессии репортера в разных клетках. Такое программное обеспечение может также использоваться для выполнения автоматической сегментации клеток, отслеживать клеточные клоны и количественного роста. Это различное программное обеспечение предлагает аналогичные инструменты, но и во многом отличается. МАРС-АЛТ и MorphoGraphX были разработаны специально для растений 15, 20, 21, в отличие от Imaris ай Fiji. MorphoGraphX позволяет только для сегментации и анализа эпидермального слоя, в то время как Imaris и MARS-ALT позволяют сегментации и анализа всей выборки. Тем не менее, МАРС-ALT требует предварительных изображений одного и того же образец из трех различных углов 15, и Imaris требуется только один стек. Доступ к количественной информации имеет решающее значение для дальнейшего нашего понимания развития цветка.
Раскрытие информации
Автор не имеет ничего раскрывать.
Благодарности
Автор хотел бы поблагодарить проф Эллиот М. Мейерович за его поддержку, а также замечания по рукописи, а также Энн Лавануэй в Колледж Дартмут и д-р Андрес Кольясо на биологической визуализации Facility Калифорнийского технологического института за помощь в решении технических проблем, с живой конфокальной микроскопии. Работа Натанаел Прунет получает поддержку со стороны Национальных институтов здравоохранения через Грант R01 GM104244 к Эллиот M Майероуиц.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Щипцы | Электронная микроскопия | Sciences 72701-D | Dumont Style 5 Inox, для рассечения вершины |
| Pin Vise | Ted Pella, Inc. | 13560 | длина 80 см, для абляции чашелистика |
| Прямые иглы из нержавеющей стали | Тед Пелла, Инк. | 13561-50 | 0,1 мм Диаметр, 1,2 см длиной, для абляции чашелистика |
| Круглые пластиковые коробки | Электронная микроскопия Sciences | 64332 | прозрачные, 6 см в диаметре, 2 см глубиной, для использования в качестве препарирующей посуды |
| Прямоугольные откидные коробки | Durphy Packaging Co. | DG-0730 | прозрачный, 2-7/8" в длину, 2" в ширину, 1-1/4" глубиной, для использования в качестве посуды для визуализации с вертикальным микроскопом |
| Чашки для культуры тканей, полистирол, стерильный | VWR | 25382-064 | прозрачный, 3,5 см в диаметре, 1 см в глубину, для использования в качестве посуды для визуализации с инвертированным микроскопом |
| P10 и P1000 пипетки | с соответствующими фильтрующими наконечниками | ||
| Стереомикроскоп | с максимальным увеличением 80-90X | ||
| Лазерная абляционная система | для абляции чашелистика | ||
| Лазерная сканирующая конфокальная микроскопическая система | |||
| 20 или 40X водопогружающая линза | с NA 1 и рабочим расстоянием 1,7-2,5 мм | ||
| Агароза | |||
| Сахароза | |||
| Мурашиге и Скуг, основная солевая смесь | Sigma-Aldrich | M5524 | без витаминов |
| Мио-инозитол | Сигма-Олдрич | I7508 | витамин |
| Никотиновая кислота | , Сигма-Олдрич | N0761 | витамин |
| Пиридоксина гидрохлорид | Sigma-Aldrich | P6280 | витамин |
| тиамина гидрохлорид | Sigma-Aldrich | T1270 | витамин |
| глицин | Sigma-Aldrich | G8790 | витамин |
| N6-бензиладенин | Sigma-Aldrich | B3408 | BAP, раствор цитокинина |
| Пропидиумия йодида | Sigma-Aldrich | P4864 | 1 мг/мл раствор в воде, для окрашивания клеточных стенок |
| FM4-64 | Invitrogen | F34653 | разведенный в воде до 80 μ г/мл, для окрашивания плазматических мембран |
Ссылки
- Prunet, N., Jack, T. P. Flower Development in Arabidopsis: There Is More to It Than Learning Your ABCs. Methods Mol. Biol. 1110, 3-33 (2014).
- Stewart, D., Graciet, E., Wellmer, F. Molecular and regulatory mechanisms controlling floral organ development. FEBS J. , (2016).
- Heisler, M. G., et al. Patterns of auxin transport and gene expression during primordium development revealed by live imaging of the Arabidopsis inflorescence meristem. Curr. Biol. 15 (21), 1899-1911 (2005).
- Reddy, G. V., Meyerowitz, E. M. Stem-cell homeostasis and growth dynamics can be uncoupled in the Arabidopsis shoot apex. Science. 310 (5748), 663-667 (2005).
- Yadav, R. K., et al. WUSCHEL protein movement mediates stem cell homeostasis in the Arabidopsis shoot apex. Genes & Dev. 25 (19), 2025-2030 (2011).
- Reddy, G. V., Heisler, M. G., Ehrhardt, D. W., Meyerowitz, E. M. Real-time lineage analysis reveals oriented cell divisions associated with morphogenesis at the shoot apex of Arabidopsis thaliana. Development. 131 (17), 4225-4237 (2004).
- Chandler, J. W., Jacobs, B., Cole, M., Comelli, P., Werr, W. DORNROSCHEN-LIKE expression marks Arabidopsis floral organ founder cells and precedes auxin response maxima. Plant Mol. Biol. 76 (1-2), 171-185 (2011).
- Urbanus, S. L., et al. In planta localisation patterns of MADS domain proteins during floral development in Arabidopsis thaliana. BMC Plant Biol. 9, (2009).
- Hong, L., et al. Variable Cell Growth Yields Reproducible OrganDevelopment through Spatiotemporal Averaging. Dev. Cell. 38 (1), 15-32 (2016).
- Roeder, A. H., et al. Variability in the control of cell division underlies sepal epidermal patterning in Arabidopsis thaliana. PLoS Biol. 8 (5), e1000367(2010).
- Heisler, M. G., Ohno, C. Live-imaging of the Arabidopsis inflorescence meristem. Methods Mol. Biol. 1110, 431-440 (2014).
- Tobin, C. J., Meyerowitz, E. M. Real-Time Lineage Analysis to Study Cell Division Orientation in the Arabidopsis Shoot Meristem. Methods Mol. Biol. 1370, 147-167 (2016).
- Smyth, D. R., Bowman, J. L., Meyerowitz, E. M. Early flower development in Arabidopsis. Plant Cell. 2 (8), 755-767 (1990).
- Prunet, N., Jack, T. P., Meyerowitz, E. M. Live confocal imaging of Arabidopsis flower buds. Dev. Biol. , (2016).
- Fernandez, R., et al. Imaging plant growth in 4D: robust tissue reconstruction and lineaging at cell resolution. Nat. Methods. , (2010).
- Cutler, S. R., Ehrhardt, D. W., Griffitts, J. S., Somerville, C. R. Random GFP::cDNA fusions enable visualization of subcellular structures in cells of Arabidopsis at a high frequency. Proc. Natl. Acad. Sci. U S A. 97 (7), 3718-3723 (2000).
- Irish, V. F., Sussex, I. M. Function of the apetala-1 gene during Arabidopsis floral development. Plant Cell. 2 (8), 741-753 (1990).
- Vernoux, T., et al. The auxin signalling network translates dynamic input into robust patterning at the shoot apex. Mol. Systems Biol. 7, 508(2011).
- Zhou, Y., et al. Control of plant stem cell function by conserved interacting transcriptional regulators. Nature. 517 (7534), 377-380 (2015).
- Barbier de Reuille, P., et al. MorphoGraphX: A platform for quantifying morphogenesis in 4D. Elife. 4, 05864(2015).
- Barbier de Reuille, P. B., Robinson, S., Smith, R. S. Quantifying cell shape and gene expression in the shoot apical meristem using MorphoGraphX. Methods Mol. Biol. 1080, 121-134 (2014).
Перепечатки и разрешения
