Подробная информация представлена о том, как сопоставление QTL с целостной генетической картой, основанной на геноме, может быть использовано для идентификации гена устойчивости к лекарственным средствам в Toxoplasma gondii и как это можно проверить с помощью системы CRISPR / Cas9, которая эффективно редактирует геномную мишень, в этом случае Ген устойчивости к лекарственным средствам.
Методическая статья
QTL Mapping и CRISPR / Cas9 для определения гена резистентности к лекарственным средствам в
В этой статье
Краткое содержание
Аннотация
Научные знания неразрывно связаны с имеющимися технологиями и методами. В этой статье будут представлены два метода, которые позволили бы идентифицировать и проверить ген резистентности к лекарственным средствам в Apicomplexan паразите Toxoplasma gondii , способе картирования Quantitative Trait Locus (QTL) с использованием генетической карты на основе целостной геномной последовательности (WGS) и метода Из кластеризованных регулярных интервальных коротких палиндромных повторов (CRISPR) / редактирования на основе Cas9. Подход QTL-сопоставления позволяет проверить, существует ли корреляция между геномной областью (ами) и фенотипом. Для запуска QTL-сканирования необходимы два набора данных: генетическая карта, основанная на потомстве рекомбинантного креста, и количественный фенотип, оцененный в каждом потомстве этого креста. Эти данные затем форматируются для совместимости с программным обеспечением R / qtl, которое генерирует QTL-сканирование для определения значительных локусов, коррелированных с фенотипом. Хотя это может значительно сузить поиск wIndow возможных кандидатов, QTLs охватывают области, содержащие несколько генов, из которых необходимо идентифицировать причинный ген. Наличие WGS потомства имеет решающее значение для идентификации мутации каузальной лекарственной устойчивости на уровне гена. После идентификации мутант-кандидат может быть проверен путем генетической манипуляции чувствительными к лекарственным средствами паразитами. Самый простой и эффективный метод генетической модификации T. gondii - это система CRISPR / Cas9. Эта система состоит из всего двух компонентов, кодируемых на одной плазмиде, одной направляющей РНК (gRNA), содержащей последовательность 20 bp, комплементарную геномной мишени, и эндонуклеазу Cas9, которая генерирует двухцепочечный разрыв ДНК (DSB) у мишени, Ремонт которых позволяет вставлять или удалять последовательности вокруг места разлома. В этой статье приводятся подробные протоколы для использования инструментов редактирования генома на основе CRISPR / Cas9 для проверки гена, ответственного за устойчивость к синусфунгину, и для создания трансгенных паразитов.
Введение
Диапазон хозяев определяет степень распространенности паразитов. Некоторые паразиты имеют очень специфические требования к хосту, которые ограничивают область, из которой они находятся, а другие - обобщающие. Одним из таких обобщающих является Toxoplasma gondii ( T. gondii) . Этот паразит встречается во всем мире, так как он может заразить всех млекопитающих и многих птиц. Люди также восприимчивы, и, по оценкам, примерно 1/3 мирового населения заражено. К счастью, устойчивый иммунный ответ обычно контролирует рост паразита, но в ситуациях, когда иммунная система скомпрометирована, паразит может расти бесконтрольно и вызывать заболевания, часто энцефальные. Кроме того, этот паразит может вызвать врожденные заболевания, если ранее неинфицированные женщины инфицированы во время беременности, поскольку у них нет иммунной памяти, чтобы быстро ограничить распространение паразита. Кроме того, существует брешь окулярного токсоплазмоза, которая может привести к потере зрения 1 . Для этих реасоNs T. gondii стал предметом исследования, и из-за многих молекулярных методов, разработанных для его исследования, была модель для Apicomplexan паразитов. Два метода, которые будут обсуждаться здесь, - это количественное отображение локуса (QTL) и регулярное редактирование коротких палиндромных повторов (CRISPR) / Cas9 с кластеризацией. Картирование QTL и редактирование CRISPR / Cas9 представляют собой, соответственно, передовые и обратные генетические подходы, которые использовались в предыдущих исследованиях для идентификации и / или характеристики генов вирулентности T. gondii . Здесь эти методы объединяются для идентификации и подтверждения функции гена устойчивости к синуфунгину (SNF r ), TgME49_290860 и его ортологов (аннотированных как SNR1 ) 2 .
Хотя T. gondii может инфицировать большое количество промежуточных хозяев, он должен пройти и заразить кишечные эпителиальные клетки фелида, чтобы завершить жизненный цикл. Кошки являются окончательными хозяевами паразита, где sПроизводятся конечные стадии и происходит генетическая рекомбинация через мейоз. Для проведения исследования QTL необходимо создать генетический крест, а в случае Toxoplasma это означает прохождение двух разных штаммов паразита, которые отличаются фенотипическим признаком, родительскими пятнами, через кошку, чтобы произвести рекомбинантное потомство 3 . Перед тем, как кормить кошек, родительские штаммы становятся устойчивыми к отдельным лекарственным средствам, чтобы обеспечить более эффективную идентификацию рекомбинантов путем двойного выбора лекарственного средства потомства 4 . Для этой цели в T. gondii использовались три препарата; Фтороксиоксирибоза (FUDR), для которой урацилфосфорибозилтрансфераза ( UPRT ) представляет собой ген устойчивости 5 , аденозин-арабинозид (ARA), для которого аденозин-киназа ( АК ) является геном устойчивости 6 и синуфунгином (SNF), для которого не был обнаружен ген устойчивости. Несколько генетических крестов былиСозданный для T. gondii , но только 24 потомства креста ME49-FUDR r X VAND-SNF r были генотипированы с использованием цельного геномного секвенирования (WGS) 8 . Это открыло возможность картирования и идентификации гена устойчивости к SNF с использованием этого креста, поскольку родитель VAND был сделан синуфунгином, устойчивым с помощью химического мутагенеза чувствительного к лекарственным средствам штамма VAND (VAND-SNF s ), а контрольный геном VAND был секвенирован с использованием VAND- SNF s, таким образом, позволяя идентифицировать все полиморфизмы между WGX потомства и эталонным геномом VAND-SNF, включая унаследованную родительскую мутацию VAND-SNF r, которая обеспечивает устойчивость некоторых синусофенинов потомства.
Чтобы идентифицировать причинный однонуклеотидный полиморфизм (SNP) в потомстве SNF r , для анализа данных можно использовать несколько ресурсов с открытым исходным кодом на основе вычислений. Чтобы создать генетическую карту для ME49-Был разработан FUDR r X VAND-SNF r программный пакет REDHORSE 9, в котором используются WGS-выравнивания родителей и потомства для точного определения геномных позиций генетических кроссоверов. Затем эту информацию сопоставления можно объединить с фенотипическими данными (SNF r в потомстве) для форматирования набора данных, совместимого с пакетом 10 «qtl» в программном программном программном обеспечении R, в котором может выполняться сканирование QTL для выявления значительных локусов, коррелированных с фенотип. Чтобы идентифицировать причинный SNP, расположенный в локусе QTL, WGS-считывание потомства может быть индивидуально согласовано с чувствительным к синусфунгину геномом VAND с использованием программы 11 выравнивания Bowtie 2, из которой SNP можно вызывать, используя программу 12- го варианта варианта VarScan mpileup2snp. Используя эти SNP, локус QTL можно затем сканировать для полиморфизмов, которые присутствуют в SNF r, но неВ потомстве ОЯТ. С причинным SNP, идентифицированным в кодирующей области гена, генетическая модификация гена-кандидата SNF r может быть выполнена в штамме SNF для проверки функции лекарственной устойчивости.
Недавно была создана система редактирования генома CRISPR / Cas9 в Toxoplasma 13 , которая добавила важные инструменты для исследования сложной биологии этого паразита, особенно для генетических исследований в нелабораторных адаптированных штаммах. Из-за высокоактивной активности Non-Homologous End Joining (NHEJ) в клетках Toxoplasma WT целевая модификация генома трудно достичь, поскольку экзогенно введенная ДНК случайно интегрирована в геном с чрезвычайно высокой частотой 14 . Для увеличения вероятности успешной модификации локуса использовались различные подходы для повышения эффективности гомологичной рекомбинации и / или уменьшенияE NHEJ активность 15 , 16 . Одним из таких подходов является система CRISPR / Cas9. По сравнению с другими методами система CRISPR / Cas9 эффективна при внедрении модификаций, специфичных для конкретного участка, и проста в разработке 13 , 17 , 18 . Кроме того, он может быть использован в любом штамме Toxoplasma без дополнительной модификации паразиту 13 , 19 .
Система CRISPR / Cas9 возникла из адаптивной иммунной системы Streptococcus pyogenes , которая использует ее для защиты инвазии мобильных генетических элементов, таких как фаги 20 , 21 , 22 . Эта система использует РНК-энзимулятор эндонуклеазы ДНК, основанный на РНК, для введения двухцепочечного ДНК-разрыва (DSB) в мишень, который затем репаЛибо с помощью подверженного ошибкам NHEJ, чтобы инактивировать целевые гены посредством коротких индель-мутаций, или путем гомологичной направленной рекомбинации, чтобы изменить целевой локус точно так же, как и 23 , 24 . Специфичность мишени определяется малой молекулой РНК, называемой однонаправленной РНК (gRNA), которая содержит индивидуально разработанную последовательность 20 нт, которая имеет 100% -ную гомологию с ДНК-мишенью 22 . Молекула gRNA также содержит сигнатуры, распознаваемые Cas9, которые направляют нуклеазу на целевой участок, который включает специальный подвижный мотив Protospacer (PAM, последовательность - «NGG») 25 , 26 . Следовательно, молекула gRNA и последовательность PAM работают вместе, чтобы определить сайт расщепления Cas9 в геноме. Можно легко изменить последовательность gRNA для нацеливания на разные сайты для расщепления.
Когда система CRISPR / Cas9 была впервые разработана в ToxopLasma, единственная плазмида, экспрессирующая нуклеазу Cas9 и молекулу gRNA, использовалась для введения DSB на сайт ориентации 13 , 17 . Было показано, что система CRISPR / Cas9 резко повышает эффективность модификации генома сайта, а не только гомологичную рекомбинацию, но также и не гомологичную интеграцию экзогенной ДНК 13 . Он делает это в штаммах дикого типа, которые содержат активность NHEJ. Поэтому эту систему можно использовать практически для любого штамма Toxoplasma для эффективного редактирования генома. В типичном эксперименте целевая специфическая плазмида CRISPR и фрагмент ДНК, используемые для модификации мишени, совместно трансфицируются в паразиты. Если фрагмент ДНК, используемый для модификации мишени, содержит гомологичные последовательности к целевому локусу, гомологичная рекомбинация может быть использована для восстановления DSB, введенного CRISPR / Cas9, чтобы обеспечить точную модификацию мишени. С другой стороны, если intРожденный фрагмент ДНК не содержит гомологичной последовательности, он все же может быть интегрирован в сайт нацеливания CRISPR / Cas9. Последний часто используется для разрушения генов путем введения селективных маркеров или для дополнения мутантов в локусах, которые допускают отрицательный отбор 13 . Здесь локус SNR1 служит примером для демонстрации того, как CRISPR / Cas9 можно использовать для разрушения гена и генерации трансгенных паразитов.
Протокол
1. Оценить SNF r в потомстве ME49-FUDR r x VAND-SNF r Cross
ПРИМЕЧАНИЕ: T. gondii является обязательным внутриклеточным паразитом, и тахизоитовая стадия легко растет в тканевой культуре.
- Для выращивания паразита T. gondii поддерживать их в слитой культуре монослоя фибрибласта человека (HFF) человека, засеянной в колбах T25, с средой среды модифицированного носителя Eulle (DMEM) Дульбекко, дополненной 10% фетальной бычьей сывороткой (FBS) (среда D10) при 37 ° C и 5% CO 2 .
ПРИМЕЧАНИЕ. См. Протокол 1.1 Примечание в дополнительном файле 1 . - Чтобы протестировать отдельные клоны потомства для устойчивости к синуфунгину, вырасти каждый клон до высокой плотности паразита в культуральной колбе T25 HFF в течение 2-3 дней, пока большинство паразитов не начнет лизировать клетки-хозяева.
- Очистите монослой клеточным скребком и передайте раствор паразита через 10 мл шприц / 22 G тупой иглы 2-3x tO lyse клетки-хозяева, высвобождающие паразиты. Раствор можно вытащить обратно в шприц для нескольких каналов иглы.
- Отфильтруйте раствор паразита в новой конической трубке через мембрану с размером пор 3 мкм для удаления клеток HFF и клеточного обломка.
- Подсчитайте паразитов на гемоцитометре и определите количество паразитов на мл.
- Используя пипетитор, проведите 2,5 × 10 5 паразитов в новую культуральную колбу T25 HFF, содержащую среду D10 с 0,3 мкМ рабочей концентрации препарата синуфунгина.
- Растите паразитов при 37 ° С и 5% СО 2 в течение 7-10 д.
- Оцените потомство для фенотипа роста в препарате синуфунгина. Наблюдайте за монослоем под перевернутым фазово-контрастным микроскопом и оценивайте 0 без роста (чувствительный к синусфунгину), оценка 1 для роста и лизиса монослоя (устойчива к синуфенгину).
ПРИМЕЧАНИЕ. См. Протокол 1.8 Примечание в дополнительном файле 1 .
2. RUn QTL Scan of SNF r Фенотип в R / qtl
ПРИМЕЧАНИЕ. См. Протокол 2 Примечание в дополнительном файле 1 .
- Установите программное обеспечение языка программирования R на локальном компьютере. См. 27 .
- Запустите R и установите пакет «qtl». Либо сделайте это из интерфейса интерфейса R GUI «Пакеты-> Установить пакет (ы)», либо выполните следующую команду из командной строки R (первый символ «>» в каждом примере обозначает начало команды, а не скопировано):
> install.packages ( "ЛКП")
ПРИМЕЧАНИЕ. После установки R и пакета «qtl» существует два способа запуска R / qtl из командной строки R или с помощью программы графического интерфейса пользователя (GUI), называемой J / qtl 28 : см. 29 для загрузки J / ЛКП. Этот протокол предоставит синтаксис командной строки R / qtl со случайной ссылкой на эквивалентную функцию в J / qtl. - Загрузите пакет «qtl»:
> Библиотека (qtl)
ПРИМЕЧАНИЕ. См. Протокол 2.3. Примечание в дополнительном файле 1 для формата набора данных и загрузки. - Загрузите файл набора данных в R / qtl.
- Для формата «csv» (см. Файл данных 1):
> SNFR <- read.cross (format = "csv", file = "$ PATH / Rqtl-SNFR.csv", genotypes = c ("0", "1"), na.strings = c ("-") , ConvertXdata = FALSE) - Или для формата «gary» (см. Файл данных 2):
> SNFR <- read.cross (format = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "genotype. Txt ", phefile =" phenos.txt ", pnamesfile =" phenonames.txt ", convertXdata = FALSE)
Где $ PATH - путь к файлу, содержащему набор данных qtl. Например: / Пользователи / HotDiggityDog / QTLfiles
ПРИМЕЧАНИЕ. Файлы также могут быть загруженыEd в J / qtl с предыдущими командами с использованием опции «Вставить комментарий или команду» или загрузить данные с помощью параметра «Файл -> Загрузить перекрестные данные» графического интерфейса пользователя.
- Для формата «csv» (см. Файл данных 1):
- Вычислить вероятности для карты:
> SNFR <- calc.genoprob (SNFR, step = 2.0, off.end = 0.0, error.prob = 1.0E-4, map.function = "haldane", stepwidth = "fixed") - Выполните одно сканирование с использованием бинарного распределения фенотипа устойчивости к синусфунгину во всех хромосомах:
> SNFR.scan <- scanone (cross = SNFR, chr = c («Ia», «Ib», «II», «III», «IV», «V», «VI», «VIIa», «VIIb »,« VIII »,« IX »,« X »,« XI »,« XII »), pheno.col = c (1), model =« binary », method =« em »)
ПРИМЕЧАНИЕ. Если для запуска фенотипа VIR используется опция «model =» normal »'. - Выполнить 1000 перестановок для вычисления значений пороговых значений, а затем attrIbute перестановки в переменную SNFR.scan:
> SNFR.scan.permutations <- scanone (cross = SNFR, chr = c («Ia», «Ib», «II», «III», «IV», «V», «VI», «VIIa», «VIIb», «VIII», «IX», «X», «XI», «XII»), pheno.col = c (1), model = «двоичный», метод = «em», n.perm = 1000, perm.Xsp = FALSE, verbose = FALSE)
> Attr (SNFR.scan, "pheno.col") <- c (1)
ПРИМЕЧАНИЕ. Шаги с 2.5 по 2.7 можно запустить в J / qtl с помощью опции «Анализ -> Основное сканирование - Запуск одного сканирования генома QTL». - Выделите результаты сканирования:
> Plot (SNFR.scan, gap = 0, bandcol = "серый")
ПРИМЕЧАНИЕ. Сюжет, созданный в J / qtl, является интерактивным.- Постройте результаты сканирования только для хромосомы IX, хромосомы с самым высоким пиком:
> Plot (SNFR.scan, chr = c ("IX"), gap = 0, bandcol = "серый", show.marker.names = TRUE)
- Постройте результаты сканирования только для хромосомы IX, хромосомы с самым высоким пиком:
- Показать все позиции маркера и оценки LOD из одного сканирования:
> SNFR.scan - Покажите пороговые результаты теста перестановки:
> резюме (SNFR.scan.permutations) - Покажите только те маркеры, которые превышают пороговое значение alpha = .05 (взято из предыдущего выхода):
> SNFR.scan [SNFR.scan $ lod> 2.68,] - Покажите маркеры с самым высоким показателем LOD на каждой хромосоме:
> Резюме (SNFR.scan) - Покажите те маркеры, у которых значение максимального значения LOD (взято из предыдущего вывода):
> SNFR.scan [SNFR.scan $ lod> = 6.57,]
ПРИМЕЧАНИЕ. См. Протокол 2.13. Примечание в дополнительном файле 1 .
3. Идентифицировать причину SNF-мутации с использованием WGS-чтения из потомства
ПРИМЕЧАНИЕ. См. Протокол 3 Примечание в дополнительном файле 1 .
- Выровнять WGS-чтения отдельных потомков с чувствительной к синусфунгину VAND(VAND-SNF s ) родительского генома.
ПРИМЕЧАНИЕ. Загрузите базовый геном VAND (SNF s ) из сборки NCBI AEYJ00000000.2, а WGS читает (файлы .sra) для 24 потомков от NCBI SRA PRJNA258152. Также загрузите следующие программы: Bowtie2 11 , NCBI SRA Toolkit, SAMtools 30 , VarScan 12 и MUMмер 31 .- Создайте совместимый с Bowtie 2 индекс из файла FASTA справочного генома VAND, используя программу bowtie2-build, здесь назвав индекс «VAND»:
> Bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - Преобразуйте файлы в формате WGS, отформатированные в формате SRA, в файлы FASTQ с помощью fastq-дампа с опцией -split-files для парных чтений (в качестве примера будет использоваться файл SRR1555372.sra для потомства P1_14VB):
> Fastq-dump --split-файлы SRR1555372.sra
ПРИМЕЧАНИЕ. Запустите это и все следующие команды в протоколе 3.1 для всех 24Потомство. - Выровняйте WGS, прочитав контрольный геном, используя bowtie2 с выходом в файл SAM (.sam) и опцию --end-to-end:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam - от конца до конца - Преобразуйте .sam-файл в файл BAM (.bam):
> Просмотр samtools -bS SRR155372.sam> SRR155372.bam - Сортировка файла .bam:
> Samtools сортировать SRR155372.bam SRR155372.sort - Укажите отсортированный файл .bam:
> Индекс samtools SRR155372.sort.bam
- Создайте совместимый с Bowtie 2 индекс из файла FASTA справочного генома VAND, используя программу bowtie2-build, здесь назвав индекс «VAND»:
- Вызовите SNP для потомства с помощью VarScan
ПРИМЕЧАНИЕ. См. Протокол 3.2. Примечание в дополнительном файле 1 .- Преобразуйте все индексированные файлы BAM (.sort.bam) в один файл с форматированием pileup, используя samtools mpileup с помощью файла ссылок VAND genome, всех файлов-потомков .sort.bam и вывода в файл с именем AllProgeny-mpileup.txt:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556200. Sort.bam SRR1556202.sort.bam SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556399. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - Вызовите все SNP с помощью программы VarScan mpileup2snp, используя файл AllProgeny-mpileup.txt, минимальное количество просмотров 5, минимальную частотную частоту при чтении .8, p-значение 0,01 и вывод в имена файлов AllProgeny-SNP. текст:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt --min-coverage 5 --min-var-freq .8 -p-value .01> AllProgeny-SNPs.txt
ПРИМЕЧАНИЕ. Файл AllProgeny-SNPs.txt представляет собой текстовый файл с разделителями табуляции, который будет использоваться в протоколе 3.4 для поискаПричинный SNP.
- Преобразуйте все индексированные файлы BAM (.sort.bam) в один файл с форматированием pileup, используя samtools mpileup с помощью файла ссылок VAND genome, всех файлов-потомков .sort.bam и вывода в файл с именем AllProgeny-mpileup.txt:
- Найдите координаты генома VAND, соответствующие координатам локуса QTL на основе ME49
ПРИМЕЧАНИЕ. См. Протокол 3.3. Примечание в дополнительном файле 1 .- Используйте программу MUMmer nucmer для выравнивания генома ME49 (доступного для загрузки с ToxoDB.org 32 ) и файла генома ссылки VAND (вывод идет в файл out.delta):
> Нумер ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - Используйте программу show-coords MUMmer, чтобы получить координаты двух выравниваний генома, вывести в файл с именем ME49vsVAND-coords.txt:
> Show-coords out.delta> ME49vsVAND-coords.txt
ПРИМЕЧАНИЕ. Файл ME49vsVAND-coords.txt можно использовать для поиска коннектов VAND и позиций, соответствующих локусу QTL; Маркеры MV359 до MV366, расположенные на хромосоме IX ME49 между 3,187,537 и 4,202,258 bp. Есть два VAND contigs, которые охватывают коррекциюOnding локус QTL; KN044604.1: 657,441-1 п.о. и KN042501.1: 430,910-41,870 б.п. (оба согласуются с реверсом к хромосоме ME49).
- Используйте программу MUMmer nucmer для выравнивания генома ME49 (доступного для загрузки с ToxoDB.org 32 ) и файла генома ссылки VAND (вывод идет в файл out.delta):
- Оцените SNP-потомства, расположенные в локусе QTL для SNP, унаследованных только в потомстве SNF r
ПРИМЕЧАНИЕ. См. Протокол 3.4. Примечание в дополнительном файле 1 .- Просмотрите файл данных 3, чтобы определить причинную мутацию, расположенную в локусе QTL. Сканирование данных для шаблона, в котором у потомков SNF r есть SNP, и SNF s не могут (возможно, потому что SNP для потомства были получены по сравнению с эталонным геномом VAND-SNF). Это должно привести только к одной позиции с этим рисунком, позиция 348130 на VAND contig KN042501.1.
- См. Строку 6604 в файле данных 3 ( рисунок 3 ).
ПРИМЕЧАНИЕ. См. Протокол 3.4.2. Примечание в дополнительном файле 1 .
4. Проверка идентифицированных хитов CRISPR / Cas9-Опосредованной инактивацией гена.
ПРИМЕЧАНИЕ. Для подтверждения причинно-следственного SNP, идентифицированного с помощью QTL-сопоставления и анализа SNP WGS, соответствующие генетические изменения должны быть сделаны на фоне ОЯТ WT и в результате выявлен фенотип. В случае устойчивости к синуфунгину ответственная мутация приводит к инактивации гена SNR1 досрочного прекращения 2 . Поэтому для подтверждения может быть использовано нарушение SNR1 . Здесь представлен подробный протокол для использования индуцированных CRISPR / Cas9 мутаций indel для разрушения SNR1 , чтобы продемонстрировать его участие в устойчивости к синуфунгину ( рисунок 4 ).
- SNR1- специфическая конструкция плазмиды CRISPR
ПРИМЕЧАНИЕ. См. Протокол 4.1. Примечание в дополнительном файле 1 для получения плазмид и карт.- Получите геномную последовательность гена-мишени ( SNR1 , TGME49_290860) от ToxoDB 32 .
- Используйте онлайн-инструменты, такие как E-CRISP 33, для разработки целевых специфических gRNA. Не включайте последовательность PAM (NGG) в gRNA.
ПРИМЕЧАНИЕ. См. Протокол 4.1.2. Примечание в дополнительном файле 1 . - Синтез праймеров для конструирования целевой специфической плазмиды CRISPR.
- Согласно схеме, приведенной на этапе 4.1.2, синтезируют два праймера для изменения гРНК нацеливания UPRT в исходной плазмиде CRISPR в выбранную последовательность gRNA путем сайт-направленного мутагенеза.
ПРИМЕЧАНИЕ. Последовательности этих двух праймеров следующие: gRNA-Fw: NNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNNN
- Согласно схеме, приведенной на этапе 4.1.2, синтезируют два праймера для изменения гРНК нацеливания UPRT в исходной плазмиде CRISPR в выбранную последовательность gRNA путем сайт-направленного мутагенеза.
- Выполните реакцию на сайт-направленный мутагенез.
- Используя UPRT- таргетинг на плазмиду CRISPR (pSAG1 :: CAS9-U6 :: sgUPRT) в качестве матрицы и два праймера, перечисленные выше, выполняют реакции направленного на сайт мутагенезаВ соответствии с инструкциями производителя.
ПРИМЕЧАНИЕ. Используйте следующие условия циклирования для ПЦР: 98 ° С в течение 1 мин, затем 25 циклов 98 ° С в течение 10 с, 55 ° С в течение 30 с и 72 ° С в течение 5 мин с последующим окончательным удлинением в течение 2 мин При 72 ° С.
- Используя UPRT- таргетинг на плазмиду CRISPR (pSAG1 :: CAS9-U6 :: sgUPRT) в качестве матрицы и два праймера, перечисленные выше, выполняют реакции направленного на сайт мутагенезаВ соответствии с инструкциями производителя.
- Трансформировать продукты мутагенеза, содержащие GOI-специфические плазмиды CRISPR, в компетентные клетки E.coli путем химической трансформации в соответствии с протоколом поставщика (см. Таблицы материалов ). Растите трансформанты на листах лизогенного бульона (LB), содержащих ампициллин (100 мкг / мл) при 37 ° C. Затем подбирают 2-4 клона и индивидуально выращивают их в 5 мл среды LB, дополненной 100 мкг / мл ампициллина в течение 12-16 часов.
- Экстрагируют плазмиды из культур с использованием набора для выделения ДНК и анализируют их с помощью ДНК-гель-электрофореза для проверки размера плазмид (ожидаемый размер плазмиды составляет 9674 п.о., используют исходную плазмиду CRISPR как control). Используйте праймер M13-Rev (5'-CAGGAAACAGCTATGACC) для последовательности плазмид, чтобы подтвердить целевую специфическую последовательность gRNA.
- После идентификации положительных клонов храните обе плазмидную ДНК при -20 ° C и соответствующую бактериальную культуру при -80 ° C для будущего использования.
ПРИМЕЧАНИЕ. Плазмиду CRISPR, которая должна использоваться для трансфекции, должна быть растворена в деионизированной воде и концентрации, определенной спектрофотометрией или альтернативным методом.
- После идентификации положительных клонов храните обе плазмидную ДНК при -20 ° C и соответствующую бактериальную культуру при -80 ° C для будущего использования.
- Экстрагируют плазмиды из культур с использованием набора для выделения ДНК и анализируют их с помощью ДНК-гель-электрофореза для проверки размера плазмид (ожидаемый размер плазмиды составляет 9674 п.о., используют исходную плазмиду CRISPR как control). Используйте праймер M13-Rev (5'-CAGGAAACAGCTATGACC) для последовательности плазмид, чтобы подтвердить целевую специфическую последовательность gRNA.
- Трансфекция паразитов.
ПРИМЕЧАНИЕ. Общие методы культивирования T. gondii в клетках HFF в среде D10 были описаны ранее 34 .- За два-три дня до трансфекции добавьте достаточное количество паразитов в колбу T25, содержащую слитый монослой HFF-клеток (0,5-1 × 10 6 для штаммов 1-го типа, 1-2 × 10 6 для других штаммов) для достижения 70-80% -ной HFF-клетки Лизис в течение 2-3 дней.
- ExamiNe культура под инвертированным фазовым контрастным микроскопом, когда монослой HFF 70-80% лизируется паразитами. Осторожно удалите среду пипеткой и промойте клетки с поверхности колбы 5 мл цитомикса (120 мМ KCl, 0,15 мМ CaCl 2 , 10 мМ K 2 HPO 4 / KH 2 PO 4 pH = 7,6, 25 мМ HEPES, 2 ММ ЭДТА, 5 мМ MgCl 2 , pH = 7,6). Затем переносят раствор паразита в 15-миллилитровую коническую трубку.
ПРИМЕЧАНИЕ. См. Протокол 4.2.2. Примечание в дополнительном файле 1 . - Пропустите раствор паразита через 10 мл шприц / 22 G тупой иглы 2-3x.
- Отфильтруйте раствор паразита в новой конической трубке через мембрану с размером пор 3 мкм для удаления клеток HFF и клеточного обломка.
- Гранулируют фильтрованные паразиты центрифугированием при 400 мкг в течение 10 мин.
- Вылейте супернатант и ресуспендируют гранулированные паразиты с 10 мл цитомиксинового буфера, возьмите 10 мкл аликвоты, чтобы определитьСравните концентрацию паразита с гемоцитометром и оставим осадок центрифугированием при 400 × g в течение 10 мин.
- Удалите супернатант и повторно суспендируйте гранулу в цитомиксе, чтобы получить плотность 4 × 10 7 паразитов / мл.
- В 4-миллиметровую зазоровую кювету смешайте раствор паразита 250-300 мкл (1-1,3 × 10 7 паразитов) с 7,5 мкг плазмиды CRISPR, 6 мкл АТФ (100 мМ) и 6 мкл глутатиона (GSH) (250 мМ).
- Электромобили паразитов 35 . Включите отдельную электропорацию в качестве отрицательного контроля, в котором плазмида CRISPR ориентирована в другом месте, например, UPRT, нацеливающая CRIPSR-плазмиду.
ПРИМЕЧАНИЕ. Настройки электропорации зависят от устройства. Для электропоратора, указанного в Материалах, используйте кюветы на расстоянии 4 мм. Рекомендуется следующий протокол: 1700 В, 176 мкс длительности импульса, 2 импульса с интервалом 100 мс.
- Определить частоту резистентности синуфунгинаNce после таргетинга CRISPR.
- Семена HFF-клеток к покровным стеклам, помещенным в 24-луночные планшеты на 3-4 d перед электропорацией, так что к тому времени они становятся конфлюэнтными для осуществления трансфекции в 4.2.
- Трипсинизируйте клетки HFF из одной сливной колбы T25 и затем добавьте 12 мл среды D10 и хорошо перемешайте.
- Добавьте покровное стекло в каждую лунку 24-луночного планшета и аликвоты 500 мкл раствора HFF-клеток в каждую лунку. Инкубируйте планшет при 37 ° C в течение 3 4 дней, чтобы клетки увеличивались до слива.
ПРИМЕЧАНИЕ. Клетки из одной колбы Т25 достаточно для посева одной 24-луночной планшеты. - Добавьте 50 мкл электропористого паразита из стадии 4.2.9 в одну лунку 24-луночного планшета, содержащего покровное стекло, высеваемое сливающимися клетками HFF. Перенесите оставшийся раствор электропористого паразита в колбу T25, высеваемую сливными клетками HFF.
- Оцените эффективность трансфекции.
- Растите клетки в 24-луночном планшете в течение 24 чИ затем фиксируют клетки (клетки-хозяева и паразиты) 500 мкл 4% формальдегида для проверки экспрессии Cas9-GFP с помощью иммунофлуоресцентного анализа (IFA).
- Прощупайте клетки антителом против GFP и специфичным к токсоплазме антителом (таким как anti-TgALD), чтобы маркировать полные паразиты. См. Лист продукта для антител для рекомендуемого разведения (обычно для 1-й степени 1: 1 достаточно для IFA). Если антитела неконъюгированы, используйте два разных вторичных антитела, конъюгированных с флуоресцентными красителями, для обозначения первичных антител.
- Соблюдайте маркированные ячейки на флуоресцентном микроскопе с фильтрами, подходящими для вторичных флуоресцентных красителей. Получите эффективность трансфекции, разделив количество положительных паразитов GFP на количество всех паразитов.
ПРИМЕЧАНИЕ. Два антитела, используемые для IFA, должны исходить из двух разных видов хозяев, например, используя комбинацию мышиного анти-GFP и кролика anti-TgALD.
- Определите fТребования к сопротивлению синуфунгина у трансфецированных паразитов.
- Для трансфецированных паразитов, культивируемых в колбах T25, выращивайте их в течение 2-3 дней до естественного выхода. Затем собирайте паразиты, тупые клетки лизиса, чтобы высвободить внутриклеточные паразиты, и очистите их фильтрацией через мембраны с размером пор 3 мкм. Подсчитайте паразитов гемоцитометром, чтобы оценить плотность.
- Добавьте очищенные паразиты в 6-луночные планшеты, засеянные сливающимися клетками HFF: для первого ряда (3 лунки) добавьте 200 паразитов / лунку и произведите их в обычной среде D10 (2 мл / лунку); Для второго ряда добавьте 5000 паразитов / лунку и произведите их в среде D10, содержащей 0,3 мкМ синуфунгина.
- Поместите пластины в 5% -ный инкубатор CO 2 и вырастите паразиты при 37 ° C 8-10 д без помех, чтобы образовать бляшки. Закрепите образцы 70% этанолом (2 мл / лунку) и окрашивают монослой 0,1% кристаллическим фиолетовым (2 мл / лунку). Вымойте лунки водой для визуализацииБляшки (прозрачные зоны), образованные ростом паразита.
ПРИМЕЧАНИЕ. Отрицательный контроль следует обрабатывать одинаково рядом.
- Вычислите скорость индуцированной CRISPR устойчивости к синуфунгину.
- Получите среднее число (Х) бляшек из лунок, не содержащих лекарств, и рассчитайте жизнеспособность паразита как X / 200. Получите среднее число (Y) бляшек из колодцев, содержащих синусфунгин, для расчета скорости индуцированного CRISPR сопротивления синусфунгина следующим образом:
Скорость индуцированного CRISPR сопротивления = 200 × Y / (эффективность трансфекции 5000 × X ×)
ПРИМЕЧАНИЕ. Эффективность трансфекции получается из 4.3.2.
- Получите среднее число (Х) бляшек из лунок, не содержащих лекарств, и рассчитайте жизнеспособность паразита как X / 200. Получите среднее число (Y) бляшек из колодцев, содержащих синусфунгин, для расчета скорости индуцированного CRISPR сопротивления синусфунгина следующим образом:
- Семена HFF-клеток к покровным стеклам, помещенным в 24-луночные планшеты на 3-4 d перед электропорацией, так что к тому времени они становятся конфлюэнтными для осуществления трансфекции в 4.2.
- Изучите мутации indel, индуцированные CRISPR / Cas9
- Выращивают электропористые паразиты из раздела 4.2.9 в колбе T25, высеянной клетками HFF в течение 2 дней при 37 ° C. Затем замените среду 5 мл среды D10, содержащей 0,3 мкМ синуфунгина (среда для отбора).
- Держите паразитов в среде для отбора в течение как минимум 3 проходов до тех пор, пока устойчивый бассейн не станет стабильным (это указывает на отсутствие роста паразита в группе отрицательного контроля, но робастный рост паразита в экспериментальной группе).
- Подключить бассейн, устойчивый к синуфунгину, для получения клоновых штаммов.
- Собирают свежевыпущенные паразиты, очищают мембранной фильтрацией 3 мкм и субклоном в 96-луночные планшеты, засеянные сливающимися клетками HFF в 150 мкл среды D10. Выращивают субклонирующие культуры в инкубаторе CO 2 при 37 ° C в течение 7-10 дней без нарушения пластин.
ПРИМЕЧАНИЕ. См. Протокол 4.4.2.1. Примечание в дополнительном файле S 1 .
- Собирают свежевыпущенные паразиты, очищают мембранной фильтрацией 3 мкм и субклоном в 96-луночные планшеты, засеянные сливающимися клетками HFF в 150 мкл среды D10. Выращивают субклонирующие культуры в инкубаторе CO 2 при 37 ° C в течение 7-10 дней без нарушения пластин.
- Проверьте 96-луночные планшеты под инвертированным фазово-контрастным микроскопом, чтобы искать лунки, которые содержат только одну доску. Отметьте такие лунки и затем перенесите клетки из каждой лунки в 24-луночные планшеты, засеянные клетками HFF, с помощью пипетки.
- Когда 80-90% клеток HFF в лунке лизируются, собирайте паразиты (около 500 мкл) и пропускайте 50 мкл раствора паразита в новую лунку для поддержания напряжения. Используйте остальные (≈450 мкл) для извлечения геномной ДНК для амплификации ПЦР.
- Для выделения геномной ДНК из клона SNF r , осадок паразитов (небольшое количество загрязнений HFF-клеток допустимо) при 1000 мкг в течение 10 мин. Вымойте гранулированные паразиты забуференным фосфатом физиологическим раствором (PBS) один раз и снова окуните их. Выделение геномной ДНК из гранулированных клеток с использованием коммерческого набора или путем кипячения. Ресуспендируют паразиты в 50-100 мкл PBS.
ПРИМЕЧАНИЕ. Выполните ПЦР для получения фрагмента гена SNR1 для секвенирования. Используйте следующие праймеры для усиления локуса SNR1 2 : SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC и SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTTACAGACAGAC. Используйте высокоточные ДНК-полимеразы. Усильте локус WT для целей управления.
- Для выделения геномной ДНК из клона SNF r , осадок паразитов (небольшое количество загрязнений HFF-клеток допустимо) при 1000 мкг в течение 10 мин. Вымойте гранулированные паразиты забуференным фосфатом физиологическим раствором (PBS) один раз и снова окуните их. Выделение геномной ДНК из гранулированных клеток с использованием коммерческого набора или путем кипячения. Ресуспендируют паразиты в 50-100 мкл PBS.
- Выполнить tПЦР с 20 мкл реакционного объема и запускать его со следующей программой: 98 ° С в течение 1 мин, затем 30 циклов 98 ° С в течение 10 с, 55 ° С в течение 30 с и 72 ° С в течение 2,5 мин, затем Конечное удлинение в течение 2 мин при 72 ° С.
ПРИМЕЧАНИЕ. Последовательность продуктов ПЦР с использованием следующих праймеров: SNR1-Seq1: 5 'GCC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCT CCA TCA CGG GTT GG, SNR1-Seq3: 5 'GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5' GCA CCG TCC GCA AGC и SNR1-Seq6: 5 'CCG GAA GGT GAA TCG TTC TTC. - Сравните последовательности гена SNR1 от мутантов, устойчивых к синусфунгину, к мутации штамма WT, используя инструмент выравнивания последовательностей.
ПРИМЕЧАНИЕ. Дополнительную информацию об использовании отрицательного отбора в локе SNR1 см. В дополнительном файле 2 Протокола 5 для генетической комплементации или трансгенной деформации.
- Выращивают электропористые паразиты из раздела 4.2.9 в колбе T25, высеянной клетками HFF в течение 2 дней при 37 ° C. Затем замените среду 5 мл среды D10, содержащей 0,3 мкМ синуфунгина (среда для отбора).
Результаты
В этой статье подробно изложены несколько методов, которые могут быть использованы последовательно для идентификации гена, ответственного за лекарственную устойчивость ( рис. 1 ). Было показано, что 24 потомства ME49-FUDR r X VAND-SNF r- креста оценивали на устойчивость к синуфунгину лекарственного средства, как описано в Протоколе 1. Используя генетическую карту и фенотип потомства SNF r потомства, сканирование QTL выполнялось в R / Qtl - Протокол 2 ( рисунок 2 ). Это привело к одному существенному пику на хромосоме IX, охватывающем приблизительно 1 Мб. Именно в этом регионе находится причинная мутация.
Чтобы идентифицировать причинную мутацию, WGS, считываемые из потомства, были выровнены с эталонным геномом VAND-SNF с использованием Bowtie2 - Protocol 3.1, SNP были вызваны с использованием VarScan mpileup2snp - Protocol 3.2, а локус QTL в геноме VAND был идентифицирован с использованием MUMmer - ProtocОл 3.3. Пространственные SNP в локусе QTL были извлечены и отсканированы для шаблона, где у потомства SNF r есть SNP, а SNF s нет, что возможно, потому что SNPs потомства были получены по сравнению с эталонным геномом VAND-SNF ( рисунок 3 ) , Только один SNP соответствовал этой схеме, которая приводит к раннему стоп-кодону в предполагаемом переносчике аминокислот SNR1 .
Подтверждение того, что SNR1 является геном устойчивости SNF r , было выполнено с использованием системы CRISPR / Cas9. Была создана новая плазмида CRISPR / Cas9, предназначенная для редактирования гена T. gondii , содержащая gRNA, нацеливающую ген SNR1 вблизи мутации SNF r, идентифицированной в потомстве - Протокол 4 ( рисунок 4A ). Плазмиду SNR1, нацеленную на плазмиду CRISPR / Cas9, электропорировали в штамм паразита SNF s WT, а устойчивые мутанты были получены, когда культВ 0,3 мкМ синуфунгина. Никаких паразитов SNF r не было получено при электропорации с помощью UPRT, нацеленной на плазмиду CRISPR / Cas9. Несколько клонированных мутантов SNF r CRISPR клонировали, а область вокруг мишени SNR1 gRNA была секвенирована. У каждого мутанта был indel, который нарушал кодирующую последовательность гена SNR1 ( фиг. 4B ). Этот метод также можно использовать для вставки конструкции таргетинга в локус SNR1 через NHEJ ( рисунок 5) или HR ( рисунок 6 ) - дополнительный файл 2 .
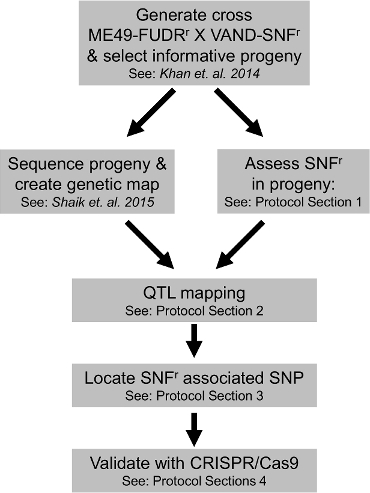
Рисунок 1: Схематический рабочий процесс для экспериментов, изложенных в протоколах. Основные этапы идентификации и подтверждения гена SNF r с использованием креста ME49-FUDR r X VAND-SNF r показаны со ссылкой на соответствующие Протоколы, изложенные в tЕго статья. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
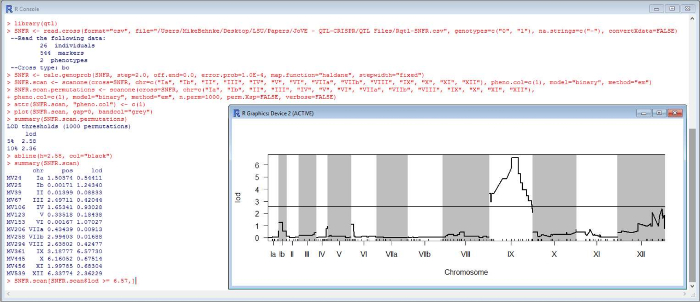
Рисунок 2: Команды R / qtl для запуска QTL-сканирования на фенотипе SNF r . Команды, описанные в Протоколе 2, выполнялись в R с использованием пакета qtl. Отображаются типичные команды и график. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
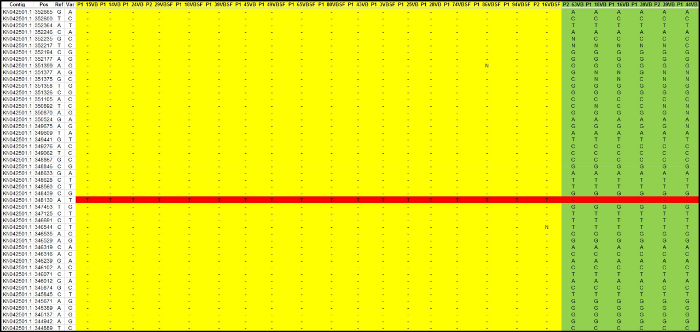
Рисунок 3: Местоположение причинного SNP. Читатели Progeny WGS были привязаны к эталонному геному VAND-SNF с Bowtie 2, SNP были вызваны с VarScan, и соответствующие Локаль VAND QTL идентифицирован с помощью MUMmer. SNP, расположенные в локусе QTL, были импортированы в электронную таблицу и идентифицирован причинный SNP. SNG r потомство (желтый), потомство SNF (зеленый), SNF r SNP (красный) (см. Файл данных 3 ). Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
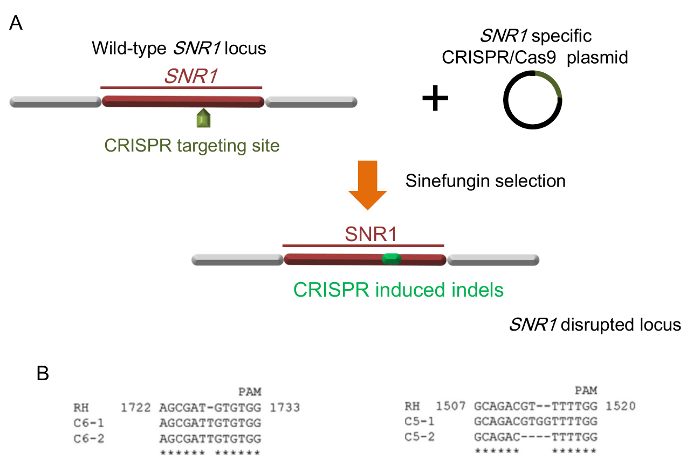
Рисунок 4: Подтверждение SNR1 в качестве SNF r Gene с использованием CRISPR / Cas9. ( A ) CRISPR / Cas9 индуцировали мутации indel (зеленые) в локусе SNR1 . ( B ) Типичные индексы в SNR1, вызванные двумя различными SNR1- специфическими плазмидами CRISPR (соответственно C5 и C6). RH - штамм WT, а C5 и C6 - мутанты SNF. (B взято из ссылкиS = "xref"> 2). Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
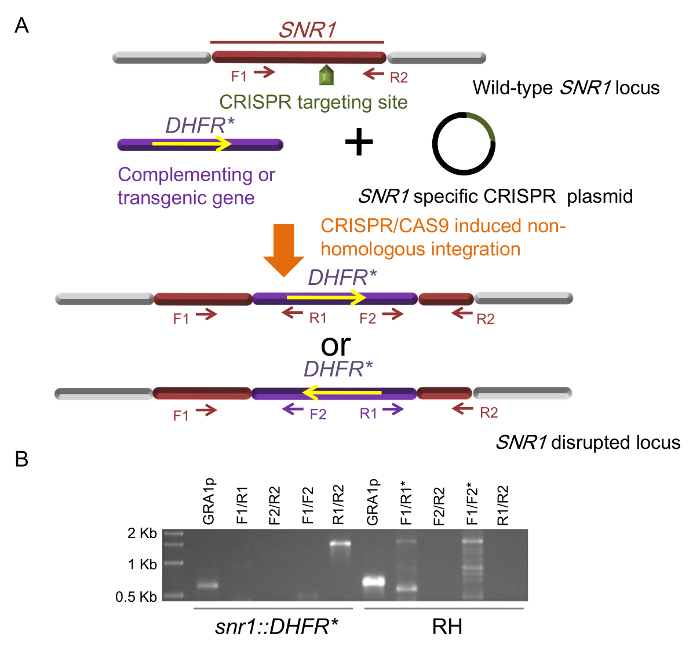
Рисунок 5. Вставной мутагенез с использованием CRISPR / Cas9. ( A ) Внесение дополняющих или трансгенных генов в локус SNR1 посредством CRISPR / Cas9-опосредованной интеграции с сайтом. Две возможные ориентации вставленного DHFR * мини-гена и праймеры, используемые для идентификации, F1 / 2 и R1 / 2, представляют собой сайты прайминга олигонов, используемых в диагностических ПЦР. ( B ) Диагностические ПЦР одного клона snr1 :: DHFR * , RH используется как регулятор WT. ПЦР GRA1p включается в качестве контроля, проверяющего качество геномной ДНК в качестве шаблонов. Звездочки указывают полосы с неспецифическими полосами (рис. 5В взято из рефералаCe 2 ). Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
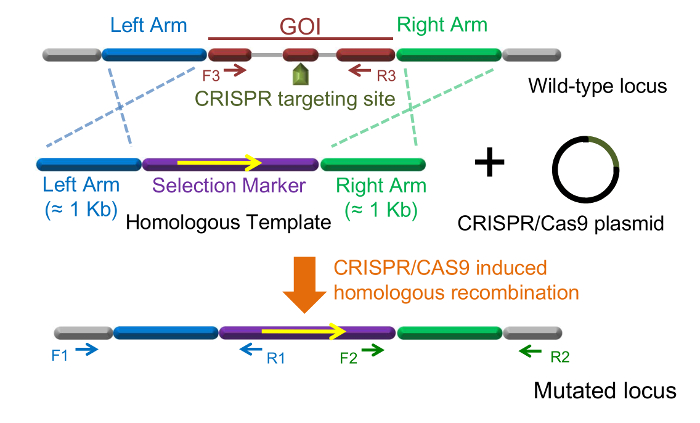
Рисунок 6: Нокаут гена с использованием CRISPR / Cas9. Классический дизайн для CRISPR / Cas9-опосредованной гомологичной замены генов в T. gondii . В этом случае фиксируется ориентация вставленного трансгена. F1 / R1, F2 / R2 и F3 / R3 представляют собой сайты прайминга олигонов, используемых в диагностических ПЦР. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Файл данных 1: ME49-FUDR r X VAND-SNF r Перекрестный файл fИли использовать в формате R / qtl, csv. Один CSV-файл, который можно загрузить в R / qtl с опцией format = "csv". Нажмите здесь, чтобы скачать этот файл.
Файл данных 2: (chrid txt, genotype txt, markerpos.txt, mname.txt, phenonames.txt и phenos.txt). ME49-FUDR r X VAND-SNF r Кросс-файлы для использования в формате R / qtl, «gary». Шесть файлов .txt, которые могут быть загружены в R / qtl с опцией format = "gary". Нажмите здесь, чтобы скачать этот файл.
Файл данных 3. Электронная таблица с простыми SNP по SNF r Локаль QTL. Содержит один рабочий лист с SNP потомства и второй лист с фенотипическими данными родителей и потомство креста. Нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1: дополнительные сведения о протоколе. Нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 2: Протокол 5 - Использование отрицательного выбора в локе SNR1 для генетической комплементации или трансгенной деформации. Нажмите здесь, чтобы скачать этот файл.
Обсуждение
Эти протоколы представляют несколько методов, которые при объединении позволяют идентифицировать ген устойчивости к лекарственным средствам в T. gondii . Два, в частности, были неотъемлемой частью проекта, относительно опытный метод картирования QTL и недавно разработанный метод редактирования гена CRISPR / Cas9. Ландер и Ботштейн опубликовали свою влиятельную статью в 1989 году, демонстрирующую QTL-карту, которая коррелирует с генетическими локусами с фенотипами 36 . Совсем недавно в 2012 году Dounda и Charpentier описали систему редактирования CRISPR / Cas9 в Streptococcus pyogenes 22, которая была быстро адаптирована как генетический инструмент во многих разных моделях, включая T. gondii 13 , 17 . Оба метода были полезны здесь, где QTL-отображение определяло локус, содержащий мутацию резистентности к лекарственным средствам, которая была в конечном счете идентифицирована с использованием обнаружения SNP на основе WGS, а редактирование CRISPR / Cas9 предоставило мне Ans для подтверждения SNR1 является геном резистентности к синуфенгину.
Первоначально было разработано ME49-FUDR r X VAND-SNF r cross 8, чтобы опросить фенотип вирулентности 19 , но родительские штаммы также имели дополнительную фенотипическую разницу, для которой причинный ген не был известен, сопротивление синусфунгина у родителя VAND. Это подчеркивает одно преимущество крестов в том, что они могут быть перепрофилированы, когда наблюдаются дополнительные фенотипические различия в родителях. Это имело место для другого креста Toxoplasma типа 2 x типа 3, где несколько генов, вовлеченных в вирулентность, были обнаружены путем картирования множественных фенотипов 37 , 38 , 39 , 40 . На сегодняшний день описаны четыре различных креста T. gondii, которые используются для сопоставления генов, ответственных за фенотипыSs = "xref"> 8 , 37 , 41 , 42 , все из которых могут быть повторно использованы для отображения новых фенотипов, для которых генетическая основа неизвестна. Вдоль этих линий были выделены геномы для штаммов 62 T. gondii , представляющие известное глобальное генетическое разнообразие 43 . Новые кресты могут быть сделаны из этого пула для штаммов, которые отличаются интересными фенотипами. Выразив преимущества сопоставления QTL, нужно сказать, что создание креста не является незначительным делом. Существуют и другие методы, которые могут быть использованы для идентификации причинных генов. Один мощный метод использует химический мутагенез для создания мутантов, которые можно скринировать для фенотипов. Чтобы найти причинный ген, мутанты могут быть дополнены космидическими библиотеками 44, или способы повторного выравнивания генома могут быть использованы для нахождения причинной мутации 45 . Для моRe на этом, см. Две статьи JoVE Coleman et al. И Walwyn et al. Которые описывают эти подходы 46 , 47 .
Многие шаги, ведущие к идентификации мутации каузальной SNF (Протоколы 2 и 3), основаны на вычислительных методах, проводимых с программным обеспечением, которое свободно доступно для академического использования. Предоставляются подробные команды для каждого шага, и при запуске с надлежащими файлами пользователь сможет воссоздать наборы данных, необходимые для обнаружения причинно-следственного SNP-файла SNP. Имейте в виду, что некоторые синтаксисы в командах относятся к именам файлов или структуре каталогов ($ PATH), которые могут быть изменены для предпочтений пользователя. Хотя приведенные здесь команды, конечно же, не исчерпывают способов анализа креста с анализом QTL и идентификацией SNP на основе WGS, они достаточно полны, чтобы повторить эксперимент, описанный в этой статье, и должны позволить пользователю стать m Знакомые с тем, как эти подходы используются поэтапно.
Хотя сопоставление QTL и определение SNP на основе последовательности SNS было достаточным для идентификации гена SNF-кандидата, необходимы дополнительные эксперименты, чтобы подтвердить свою роль в резистентности к лекарственным средствам. Это можно убедительно продемонстрировать с помощью методов разрушения гена или нокаута, которые могут быть достигнуты с помощью редактирования CRISPR / Cas9. Даны подробные методы использования CRISPR / Cas9 для генерации индивидуальных мутаций или вставки трансгенных конструкций в геном-мишенью в T. gondii . Специфичность таргетинга, которую обеспечивает CRISPR / Cas9, повышает эффективность редактирования генов по сравнению с традиционными методами. Кроме того, это значительно увеличило эффективность использования нелабораторных адаптированных штаммов для генетических исследований, которые ранее трудно было модифицировать 13 . Несмотря на то, что в раннем возрасте CRISPR / Cas9 уже использовался для нарушения геновLass = "xref"> 2 , 13 , 17 , 18 , 48 , 49 , метки генов 17 и делают генные нокауты 16 , 19 , 50 , 51 , 52 , 53 , 54 в T. gondii , обещая быть полезным инструментом Для многих других исследований в будущем.
Открытие того, что Инактивация SNR1 приводит к устойчивости к синуфнуну, делает локус SNR1 перспективным сайтом для введения трансгена или генетической комплементации. Чтобы максимизировать успех использования CRISPR / Cas9-опосредованного генного нацеливания, чтобы направлять интеграцию трансгена в локус SNR1 , следует учитывать следующие аспектыКрасный во время экспериментального проектирования. Во-первых, маркер выбора рекомендуется включать в трансгенную конструкцию для повышения эффективности конструкции деформации. Если включен маркер выбора, можно использовать как положительный, так и отрицательный выбор, в результате чего почти 100% дважды отобранных паразитов трансгенны с GOI, интегрированным в локус SNR1 . Напротив, если трансгенная конструкция не содержит дополнительных выбираемых признаков и полагается на отрицательный выбор в локусе SNR1 , эффективность успешного трансгенеза во многом зависит от эффективности котрансфекции плазмы CRISPR и трансгенной конструкции.
Во-вторых, хотя CRISPR / Cas9-опосредованная сайт-специфическая интеграция не гомологичного фрагмента ДНК часто используется для комплементации и трансгенезации, следует отметить, что ориентация введения не может быть гарантирована в таких случаях, когда возможно любое направление. Это может создатьMs для некоторых приложений. Например, чтобы дополнить мутант различными генами аллелей, трудно гарантировать, что все аллели вставлены в одну и ту же ориентацию, а расхождения в ориентации могут вызывать разницу экспрессии. Для этого типа применения рекомендуются конструкции ДНК с последовательностями, гомологичными локусу SNR1 , которые будут вести правильную интеграционную ориентацию ( рисунок 6 ).
В-третьих, при трансфекции соотношение между плазмидой CRISPR и молекулой трансгенной ДНК имеет решающее значение для успешной трансформации трансгенных штаммов. Это соотношение необходимо скорректировать в соответствии со стратегиями отбора. Рекомендуются следующие рекомендации: 1) Если трансгенная конструкция содержит маркер, устойчивый к лекарственным средствам, и соответствующий препарат является единственным выбором, используемым для генерации трансгенных паразитов, то есть синуфунгин не используется, предлагаемое молярное соотношение между трансгенной конструкцией и плазмой CRISPRId - 1: 5. Использование большей плазмиды CRISPR в этом случае увеличивает вероятность того, что паразиты, получающие трансгенную конструкцию, также получат плазмиду CRISPR, поэтому устойчивые к лекарственным средствам паразиты с большей вероятностью будут иметь маркер, вставленный на сайт ориентации CRISPR. Если отношение отменено, большинство паразитов, получающих трансгенную конструкцию, не получат плазмиду CRISPR. Как следствие, подавляющее большинство лекарственно-устойчивых паразитов получают трансгенную конструкцию посредством случайной интеграции, не связанной с опосредованной CRISPR / CAS9 специфической для сайта вставкой. 2) Если трансгенная конструкция содержит маркер, устойчивый к лекарственным средствам, и соответствующий препарат используется вместе с синуфенгином для отбора трансгенных паразитов, предлагаемое молярное соотношение между трансгенной конструкцией и плазмидой CRISPR составляет 1: 1. Эта стратегия обеспечивает наивысшую эффективность конструкции трансгенных деформаций. 3) Если трансгенная конструкция не содержит выбираемого производителя, полагаясь на отрицательный выборТолько синусфунгином для получения трансгенных паразитов, предлагаемое молярное соотношение между трансгенной конструкцией и плазмидой CRISPR составляет 5: 1. Обоснование этой конструкции такое же, как в первом руководстве выше. Поскольку для отбора в протоколе 5 использовали как пириметамин, так и синусфунгин, соотношение между мини-геном DHFR и SNR1, нацеливаемым на плазмиду CRISPR, устанавливали как 1: 1.
В совокупности описанные здесь методы имеют уровень детализации, который невозможно было передать в оригинальной публикации, которая идентифицировала SNR1 2 . Эти протоколы; В частности, синтаксис командной строки, последовательная компоновка используемых программ и использование CRISPR / Cas9 должны способствовать будущим усилиям по выявлению новых генов, ответственных за фенотипы.
Раскрытие информации
Авторы заявляют, что у них нет конкурирующих финансовых интересов.
Благодарности
Мы хотели бы поблагодарить Л. Дэвида Сибли и Асиса Хана за их вклад в оригинальную публикацию, на которой основаны эти протоколы. Эта работа финансировалась грантом AI108721 Национального института здоровья.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Колбы T25 | Corning | 430639 | |
| фибробласты крайней плоти человека (HFF) | ATCC | SCRC-1041 | |
| T. gondii ME49 штамм | ATCC | 50840 | |
| T. gondiiVAND штамм | ATCC | PRA-344 | |
| DMEM (без бикарбоната натрия) | Медико-биологические науки | 12800017 | |
| Бикарбонат натрия | Sigma Aldrich | S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| Фетальная бычья сыворотка (FBS) Premium Grade | VWR International | 97068-085 | |
| L-глютамин 200 мМ | Sigma Aldrich | G7513 | |
| Гентамицин (10 мг/мл) | Life Technologies | ||
| Скребок для колб | VWR International | 10062-904 | |
| Шприц 10 мл | BD | 309604 | |
| Тупые иглы 22 г x 1" | BRICO Продукты | BN2210 | |
| Фильтр для ядер 3.0 &микро; m, 25 мм | GE Healthcare | 110612 | |
| Держатель фильтра Swin-Lok 25 мм | GE Healthcare | 420200 | |
| Проппер для гемацитометра | MFG | 90001 | |
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R | The R Foundation | https://www.r-project.org/ | |
| J/qtl | The Churchill Group | http://churchill.jax.org/software/jqtl.shtml | |
| Bowtie2 | Университет Джона Хопкинса | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Toolkit | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | Wellcome Trust Sanger Institute | http://www.htslib.org/ | |
| VarScan | Вашингтонский университет, Сент-Луис | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI & Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Addgene | Plasmid #54467 | T. gondii CRISPR плазмида для разрезания гена UPRT |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plasmid #59855 | T. gondii CRISPR плазмида для разрезания гена TG*_290860 SNR1 |
| pUPRT::D HFR-D | Addgene | Plasmid #58528 | Шаблон для набора DHFR* mini gene |
| Q5 Site-Directed Mutagenesis Kit | Новая Англия Biolabs | E0552S | |
| QIAprep Spin Miniprep Kit | QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB Бульон | Fisher Scientific | DF0446-07-5 | |
| Хлорид калия | Sigma Aldrich | P9541 | |
| Хлорид кальция | Sigma Aldrich | 746495 | |
| Фосфат калия одноосновной | Sigma Aldrich | P9791 | |
| Фосфат калия двухосновной | Sigma Aldrich | P5504 | |
| EDTA | Sigma Aldrich | E5134 | |
| Хлорид магния | Sigma Aldrich | M1028 | |
| Аденозинтрипошпат (АТФ) | Sigma Aldrich | A6419 | |
| L-глутатион (GSH) | Sigma Aldrich | G4251 | |
| ECM 830 Электропорационная система | BTX | 45-0002 | |
| Электропорационная кювета 4 мм | Гарвардский аппарат | 45-0126 | |
| Crytal Violet | Alfa Aesar | B21932-14 | |
| 6-луночная TC-пластина | Corning | 353046 | |
| 24-луночная TC-пластина | Corning | 353935 | |
| Защитное стекло 12 мм круглое | VWR | International 89015-724 | |
| 96-луночная пластина | TC Corning | 353075 | |
| Gibson Assembly Cloning Kit (многофрагментный) | New England Biolabs | E5510S | |
| Q5 Высокоточная полимераза | New England Biolabs | M0491S | |
| Пириметамин | TCI AMERICA | P2037-1G | Использование cuation при использовании устойчивых к пириметамину паразитов - см. Протокол |
Ссылки
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
Перепечатки и разрешения
