След eyeblink классический подготовлять (ECC) был использован для оценки гиппокампа зависимых ассоциативные обучения взрослых крыс, которые были под высокой концентрации (11,9% v/v) алкоголя во время раннего развития новорожденных мозга. В общем ECC процедуры являются звук диагностические инструменты для обнаружения дисфункции мозга во многих психологических и биомедицинских параметров.
Методическая статья
Использование трассировки Eyeblink классический подготовлять для оценки гиппокампа дисфункции в мышиной модели плода алкоголь спектра расстройств
В этой статье
Краткое содержание
Аннотация
Новорожденным крысам вводили относительно высокая концентрация этилового спирта (11,9% v/v) во время послеродовых дней 4-9, когда мозг плода подвергается быстрому организационных изменений и похож на ускоренного изменения мозга, которые происходят во время третьего триместра беременности в организме человека. Эта модель плода алкоголь спектра расстройств (FASDs) производит серьезные повреждения мозга, подражая на объем и структура выпивкою питья, встречается у некоторых беременных алкогольных. Мы описывают использование трассировки eyeblink классический подготовлять (ECC), вариант более высокого порядка ассоциативные обучения, чтобы оценить долгосрочные гиппокампа дисфункции, которая обычно рассматривается в подвергшихся воздействию алкоголя взрослого потомства. В возрасте 90 дней грызуны хирургически подготовлены с записью и стимулирующих электродов, которые измерены электромиографической (ГРП) мигает активность мышц левой веко и доставлены мягкий шок задний левый глаз, соответственно. После 5 дней периода восстановления они прошли 6 сессий трассировки ECC для определения ассоциативные обучения различия между воздействием алкоголя и контролировать крыс. След ECC является одним из многих возможных процедур ECC, которые могут быть легко изменены с помощью же оборудования и программного обеспечения, таким образом, чтобы можно было оценить различные нервные системы. ECC процедур в целом, может использоваться как средства диагностики для обнаружения патологии нервной систем различных мозга и различных условий, которые оскорбляют мозга.
Введение
Довольно трудно представить, что в наше время, при улучшении качества медицинской помощи и доступности медицинских услуг, злоупотребление алкоголем остается серьезной глобальной проблемой здравоохранения. К сожалению, было показано, что у беременной женщины, употребляющей большое количество алкоголя, может родиться ребенок с тяжелыми повреждениями головного мозга и нарушениями нейроразвития, которые сохраняются на протяжении всей жизни, что отчетливо проявляется у лиц, страдающих фетальным алкогольным синдромом (ФАС)1,2,3. У женщин с подтвержденным анамнезом употребления алкоголя в период беременности развивающийся плод также чувствителен к небольшим дозам алкоголя или различным схемам его потребления, которые вызывают колебания концентрации алкоголя в крови. В последнем случае, хотя у детей могут не проявляться столь тяжелые морфологические или нейроповеденческие нарушения, как при ФАС, у них все равно могут наблюдаться пожизненные когнитивные нарушения и эмоциональные расстройства различной степени тяжести — от легкой до тяжелой3,4. В совокупности ФАС и менее тяжелые формы пренатальных нарушений, вызванных воздействием алкоголя, представляют собой группу расстройств фетального алкогольного спектра (РФАС). Неудивительно, что РФАС полностью предотвратимы, однако, поразительно, но данные показывают, что в популяциях, где злоупотребление алкоголем весьма распространено, они остаются основной негенетической причиной нейронной и когнитивной инвалидности, затрагивая примерно от 2% до 5% детей младшего возраста в США, а также в европейских странах, таких как Франция и Швеция. Что касается заболеваемости только ФАС в США, ее распространенность составляет от 2 до 7 случаев на 1 000 живорожденных5, что подразумевает гораздо более высокую общую заболеваемость РФАС по сравнению с ФАС.
Нейровизуализационные исследования, проведенные у детей с РАСП, показали наличие аномалий развития мозга, таких как истончение мозолистого тела6, уменьшение передней части червя мозжечка7 и уменьшение гиппокампа8. Эти структурные изменения мозга лежат в основе некоторых долгосрочных нейрокогнитивных нарушений, наблюдаемых у детей с РАСП. Точные взаимосвязи между вариациями изменений в мозге, вызванных воздействием алкоголя в период беременности, и особенностями профиля (т. е. типом и степенью выраженности) конкретных нейрокогнитивных нарушений еще предстоит четко определить. Однако в качестве отправной точки гиппокамп является отличным объектом для изучения его чувствительности к воздействию алкоголя на пренатальном этапе. Действительно, у детей с РАСП наблюдается дефицит функций, опосредованных гиппокампом, таких как пространственное обучение9,10 и отсроченное воспроизведение объектов11.
Модели FASD на грызунах оказались неоценимыми для выяснения механизмов, приводящих к нейрокогнитивным нарушениям, наблюдаемым у детей с FASD. Общепринятая модель эпизодического воздействия, которую мы использовали, предполагает введение алкоголя крысам в период с 4-го по 9-й постнатальные дни12,13 — в период, когда в мозге происходит интенсивное формирование синапсов и дендритных контактов, что сопоставимо с 24-й неделей развития человеческого плода и продолжается в течение 3rd триместра14,15,16,17. Данная конкретная модель вызывает значительную гибель нейронов гиппокампа18,19 и нейронов во многих других областях мозга, таких как мозжечок12,13,14,15,16,17,18,19,20,21,22,23, что сопровождается тяжелыми нарушениями когнитивных функций в различных областях21,24,25. Когнитивные нарушения вследствие раннего воздействия алкоголя у крыс могут оцениваться различными способами, в частности, с помощью классического кондиционирования реакции мигания (ECC). ECC — это парадигма, которая используется уже более века для научного исследования фундаментальных основ обучения26,27 и, как такая, представляет собой полезный метод для более глубокого понимания неблагоприятных нейрокогнитивных последствий воздействия алкоголя на плод. Это очень гибкая парадигма, позволяющая исследователям использовать разнообразные процедуры ECC, каждая из которых может быть изучена на многих видах млекопитающих по мере продвижения по филогенетическому ряду (от мышей до человека) и на разных этапах развития мозга28,29,30,31. Кроме того, фундаментальные нейронные цепи, опосредующие ассоциативное обучение в этой парадигме, подтверждены экспериментальными и нейропсихологическими данными на тех же видах26,32,33,34,35,36,37.
В данной работе демонстрируется одна из форм классического обусловливания моргания (ECC) — следовое ECC (Рисунок 1). Для контекста оно сравнивается с более традиционной формой — отсроченным ECC. Парадигма ECC была смоделирована по принципу классического обусловливания на собаках, впервые проведенного физиологом, лауреатом Нобелевской премии, Иваном Павловым. Павлов обнаружил, что определенные стимулы, такие как звуковые сигналы, сами по себе не вызывают слюноотделения, но если сигнал предшествует подаче пищи и перекрывается с ней, слюнные реакции могут усиливаться при многократном повторении этих двух событий, при условии сохранения данной взаимосвязи между сигналом и пищей. Это пример отсроченного ECC, основанного на представлении о том, что сила ассоциации опосредована непосредственной временной близостью двух стимулов, что создает оптимальные условия обучения для животного. Он также тестировал другие варианты взаимосвязи сигнала и пищи, например, выключал звук и оставлял период «следа» перед подачей пищи. Когда эти два стимула были достаточно разнесены во времени, собакам становилось гораздо труднее проявлять слюнные реакции до подачи пищи. Таким образом, временной разрыв между выключением звука и подачей пищи является примером следового ECC. Поскольку грызуны естественным образом не выделяют слюну в ответ на присутствие пищи, вместо этого используются более релевантные для данного вида стимулы, такие как слабый удар током; они также не проявляют естественных защитных реакций моргания в ответ на звуковые сигналы. С учетом этого, процедуры ECC у грызунов включают подачу звукового сигнала определенного уровня децибел и его сочетание определенным образом со слабым ударом тока либо в круговую мышцу глаза (orbicularis oculi), либо в височную мышцу (temporalis) для вызывания реакции моргания. Звуковой сигнал считается обусловленным стимулом (CS), в то время как удар током считается безусловным стимулом (US). При отсроченном ECC сначала предъявляется CS; этот стимул действует в течение определенного времени. Затем подается US. Эти два стимула перекрываются по времени в течение определенного периода, после чего оба прекращаются одновременно; результирующая реакция моргания, вызванная US, считается безусловной реакцией (UR). В этой процедуре грызуны учатся моргать через некоторое время после предъявления CS, но непосредственно перед US, чтобы предвосхитить этот аверсивный стимул. Выученная реакция моргания называется обусловленной реакцией (CR). При следовом ECC стимулы CS и US разделены промежутком времени, свободным от стимулов, который известен как интервал следа; они не перекрываются во времени, как при отсроченном ECC. В течение этого интервала животное должно сформировать ассоциативную связь между стимулами. Подобно отсроченному ECC, обучение происходит, когда животное последовательно проявляет реакцию моргания после выключения CS, но непосредственно перед подачей US. После определенного количества тренировок по приобретению навыка (сочетание CS с US) формируются кривые обучения (т. е. на основе различных измерений CR). Исследования с применением лезионов и нейровизуализации показывают, что успешное обучение при отсроченном ECC зависит от целостности нейронных цепей мозжечка и ствола мозга38,39,40, тогда как следовое ECC является процедурой более высокого порядка, требующей дополнительного участия гиппокампа41,42,43,44 и других корковых структур45,46. Из-за требований к точности временных интервалов, необходимых для успешного приобретения следовых CR, эта задача также является более сложной для освоения (даже для нормальных субъектов).
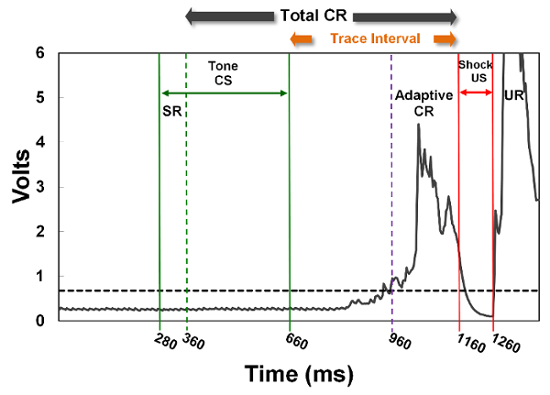
Рисунок 1: Классическое обусловливание мигания глазами с интервалом (trace conditioning). Приведена реальная форма сигнала, репрезентативная для взрослой крысы из контрольной группы без интубации (UC). Сначала подается тональный условный стимул CS (85 dB, 2.8 kHz) в течение 380 ms. Затем следует интервал прослеживания (trace interval) длительностью 500 ms, в течение которого стимулы отсутствуют. После этого подается шоковый безусловный стимул US (1.6 mA) в течение 100 ms. Успешное обучение в данной задаче происходит, когда частота (%) или амплитуда (в вольтах) миганий глаз в течение временного окна обусловленной реакции (CR) (общий период CR) увеличивается на протяжении многих тренировочных сессий. В частности, грызуны с сохранным гиппокампом обычно демонстрируют больше точно выверенных по времени CR (адаптивных CR) непосредственно перед началом шокового US (в пределах 200-ms окна). Также измеряются реакции испуга (SR) в течение первых 80 ms после начала тонального CS и безусловные реакции (UR). Неассоциативные SR обычно низкие или отсутствуют у хорошо обученных грызунов, тогда как UR, как ожидается, характеризуются высокой частотой и амплитудой. Эта задача требует, чтобы грызун научился связывать прекращение CS и начало US (в течение интервала прослеживания), что делает ее по определению более сложной для освоения по сравнению с обусловливанием с задержкой (delay ECC). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Здесь мы демонстрируем неблагоприятные функциональные последствия воздействия алкоголя в неонатальный период при введении в режиме запойного употребления, оцениваемые с помощью процедуры трейс-обусловливания (trace ECC), при которой подается тональный условный стимул (CS) громкостью 85 dB (2,8 kHz) продолжительностью 380 ms, за которым следует безусловный стимул (US) в виде шока силой 1,6 mA продолжительностью 100 ms; данные стимулы разделены интервалом (трейсом) длительностью 500 ms. Мы сообщали о полезности данного поведенческого теста в предыдущих исследованиях, посвященных вмешательству с применением холина и добавлению железа для смягчения последствий воздействия алкоголя в неонатальный период18,47. Действительно, трейс-обусловливание может использоваться в качестве диагностического инструмента для оценки патологии гиппокампа, индуцированной алкоголем в неонатальный период. Его преимущество перед обусловливанием с задержкой (delay ECC) заключается в более высокой чувствительности к выявлению нарушений функции гиппокампа, которые наблюдаются у людей с FASDs.
Демонстрация ECC выходит далеко за рамки исследований фетального алкогольного синдрома. Многие варианты ECC (например, задержка, след, составной, реверсия) могут быть использованы для выяснения онтогенетических различий в обучении в процессе развития, нейробиологических основ ассоциативного обучения у млекопитающих в норме, а также уязвимости различных систем мозга к множеству негативных факторов, включая (но не ограничиваясь ими) тератогены, токсины окружающей среды, черепно-мозговые травмы, нейродегенеративные заболевания и психические расстройства.
Протокол
ПРИМЕЧАНИЕ: Все процедуры были одобрены и проведены в соответствии с правилами, установленными IACUC Университета Восточной Каролины. Крысы линии Long-Evans были получены от самок, спаренных с самцами-производителями. Потомство из всех трех групп воздействия (см. 1.1) было получено в одном помете от одной самки. Было получено пять пометов, и в каждом из них на 3-й постнатальный день (PD) количество крысят было сокращено до 8 особей. Оставшиеся два крысенка из каждого помета были распределены по отдельным экспериментам. В исследование были включены как самцы, так и самки потомства (по одной особи на группу воздействия). В данном исследовании было обследовано в общей сложности N = 27 взрослых особей; 3 крысы были исключены из-за поломки проводов 3T (см. 3.1.1), которую невозможно было устранить в 1-й день обучения ECC.
1. Подготовка групп, материалов и растворов
- На 3-й день после рождения (PD 3) отделите детенышей от матери и поместите их на терморегулируемую грелку для поддержания тепла. Используя процедуру случайного распределения, разделите крысят по трем группам: (1) группа с алкогольной интубацией (AI); (2) контрольная группа с имитацией интубации (SI); или (3) контрольная группа без интубации (UC). Проведите утвержденные процедуры идентификации, такие как татуирование лап [нетоксичными] чернилами с помощью иглы 30G x 1/2 in согласно схеме нумерации. После завершения татуирования верните детенышей к матери.
- Подготовьте трубку (трубки) для интрагастральной интубации, используя полиэтилен (PE) размеров 50 и 10. Общая длина трубки определяется пользователем и может быть скорректирована соответствующим образом.
- С помощью микродиссекционных ножниц отрежьте фрагмент трубки PE-50 длиной 3 in и фрагмент трубки PE-10 длиной 6 in.
- Осторожно прикрепите трубку PE-50 к стерильной подкожной игле 22 G x 1 in.
- Вставьте один конец трубки PE-10 в открытый конец трубки PE-50. Для облегчения введения трубки PE-10 в трубку PE-50 может потребоваться сделать диагональный срез на кончике PE-10.
- Отрежьте небольшой фрагмент трубки PE-50 (около 2-3 mm) и наденьте его на открытый конец трубки PE-10. Это будет служить визуальным стопором.
- Храните готовую трубку для интрагастральной интубации в свежем 70% изопропиловом спирте для обеспечения стерильности.
- Соблюдая правила асептики, приготовьте стоковый раствор молока в бутылях объемом 50 mL. Стоковый раствор молока основан на формуле диеты, впервые разработанной West et al. (1984)48. Храните бутыли при -18 °C до момента использования. Перед использованием разморозьте две бутыли с молоком в теплой воде.
- С помощью стерильного шприца отберите 7.16 mL 95% этилового спирта (USP) и добавьте его в одну бутыль с молоком объемом 50 mL. Таким образом получается 11.9% v/v раствор спирта, который вводится крысятам в течение первых двух кормлений за день (см. 2.1.1); общая суточная доза спирта составляет 5.25 g/kg/day. Раствор предназначен для доставки спирта в объеме (0.0278 mL/g за одно кормление) в обогащенном молочном растворе.
ПРИМЕЧАНИЕ: Данное количество может быть скорректировано в зависимости от размера помета и предполагаемого расхода в течение 3-4 дней. Количество добавляемого спирта также должно быть скорректировано для получения 11.9% v/v раствора. - Тщательно встряхните бутыль и нанесите соответствующую маркировку (например, 11.9% v/v этиловый спирт в молоке).
- Соответствующим образом промаркируйте вторую бутыль с молоком (без добавления спирта) (например, только молоко) и используйте ее для дополнительных кормлений, как указано в 2.1.1.
- Храните обе бутыли с молоком в холодильнике.
- С помощью стерильного шприца отберите 7.16 mL 95% этилового спирта (USP) и добавьте его в одну бутыль с молоком объемом 50 mL. Таким образом получается 11.9% v/v раствор спирта, который вводится крысятам в течение первых двух кормлений за день (см. 2.1.1); общая суточная доза спирта составляет 5.25 g/kg/day. Раствор предназначен для доставки спирта в объеме (0.0278 mL/g за одно кормление) в обогащенном молочном растворе.
2. Воздействие алкоголя в неонатальный период (постнатальные дни 4-9)
- Начиная с 4-го дня после рождения (PD 4), проводите всего 4 интубации в день для щенков групп AI и SI. Интервал между интубациями должен составлять 2 ч. Поскольку щенкам группы AI вводится раствор, каждая их интубация считается кормлением.
- Проводите интубацию щенков группы AI раствором этилового спирта в молоке (11.9% v/v) во время первых двух кормлений за день, а во время последних двух кормлений — раствором только из молока для поддержания их роста.
- Проводите интубацию щенков группы SI 4 раза каждые два часа без введения какого-либо раствора, чтобы обеспечить такое же время воздействия трубки PE-10, как и у щенков группы AI. Группа UC интубации не подвергается.
- Отделите щенков от матери и поместите их на терморегулируемый водяной нагревательный коврик для сохранения тепла. Взвесьте каждого щенка и запишите массу тела (в g). Используйте заранее подготовленную таблицу кормления, чтобы определить объем интубации для каждого щенка группы AI, и занесите его в регистрационный лист.
- Поместите раствор этилового спирта в молоке (11.9% v/v) в теплую водяную баню и тщательно перемешайте.
- Процедура интрагастральной интубации:
- Тщательно промойте теплой водой трубку для интрагастральной интубации, которая хранилась в 70% изопропиловом спирте.
- Наберите необходимый объем раствора с помощью стерильного шприца объемом 1 mL.
- Окуните кончик интубационной трубки (конец PE-10) в свежее кукурузное масло (это облегчает введение).
- Измерьте длину трубки PE-10 от рта щенка до его желудка. Отрегулируйте стопор PE-50, чтобы использовать его в качестве ограничителя при введении.
- Осторожно введите трубку PE-10 в рот щенка, проведите ее по пищеводу, слегка пройдите через гастроэзофагеальный сфинктер и введите в желудок. Осмотрите щенка, зафиксируйте его и медленно нажмите на поршень шприца для подачи раствора.
ПРИМЕЧАНИЕ: Чтобы избежать случайного введения трубки в трахею, сначала направьте трубку так, чтобы она изогнулась и коснулась мягкого неба, прежде чем продвигаться вперед. Используйте небо в качестве ориентира, так как трубка естественным образом отклонится от этой области и будет направлена в пищевод. В противном случае любое значительное отклонение кончика в вентральном направлении может привести к его попаданию в трахею. Если вы не уверены в правильности положения трубки, лучше извлечь ее и не продолжать интубацию — введите трубку правильно при следующей попытке. - Осторожно извлеките трубку PE-10 и осмотрите щенка на предмет вытекания раствора, наличия крови или физических повреждений. Если все в порядке, верните щенка к однопометникам. Вся процедура интубации занимает менее 1 мин для каждого щенка и примерно 4 мин в общей сложности для 4 щенков из каждого помета, подвергающихся интубации (2 AI, 2 SI).
- Процедура интрагастральной интубации для щенков группы SI: Выполните ту же процедуру введения PE-10, что и для щенков группы AI, но без введения раствора в течение того же времени (1 мин).
- Верните всех щенков к матери сразу после завершения процедур для последнего щенка в помете. Верните мать в виварий до следующего сеанса кормления (через 2 ч).
- Промойте трубку для интрагастральной интубации теплой стерильной водой и поместите ее в 70% изопропиловый спирт для хранения. Тщательно промывайте трубку водой перед каждым сеансом кормления.
- Повторите шаги с 2.2 (за исключением взвешивания щенков) по 2.2.2.9 для второго сеанса кормления. При последних двух кормлениях интубируйте щенков группы AI раствором только из молока, используя те же объемы интубации, что были определены в пункте 2.2.
- Взвешивайте крыс через регулярные интервалы, например, на PD 15 (при открытии глаз), PD 21 (отъем), PD 30, PD 60 и PD 90 (операция), чтобы получить репрезентативные кривые роста.
3. Изготовление и модификация электродов
- Изготовьте один электромиографический (ЭМГ) «головной блок» (headstage) для каждой крысы (Рисунок 2). Головной блок позволяет регистрировать реакции мигания с помощью системы регистрации мигания (Рисунок 4).
- Соберите головной блок, который состоит из двух проволок из нержавеющей стали с политетрафторэтиленовым (ПТФЭ) покрытием размера 3T (по 5 cm каждая), одной проволоки из нержавеющей стали с ПТФЭ-покрытием размера 10T (5 cm), трех штыревых контактных выводов и одного изолятора микроленточного разъема, обрезанного до 3 отверстий (см. 3.1.4).
- Снимите ПТФЭ-покрытие с проволоки 10T, зажав ее центр зубчатым прецизионным пинцетом и удаляя покрытие в обоих направлениях гладким прецизионным пинцетом. Убедитесь, что все следы покрытия с этой проволоки удалены.
- Окримпуйте один конец проволоки 10T к контактному выводу с помощью стоматологических плоскогубцев с зубчатой платформой; этот провод будет служить заземлением. Осторожно зажмите проволоку 3T гладким прецизионным пинцетом на расстоянии 1–1,5 mm от одного конца. Снимите ПТФЭ-покрытие длиной 1–1,5 mm, оставив остальную часть покрытия нетронутой. Окримпуйте контактный вывод к оголенному концу проволоки 3T.
- Повторите те же действия для второй проволоки 3T. Обе проволоки будут служить положительным и отрицательным отводами регистрирующих ЭМГ-электродов.
- Проведите проверку на разрыв (tug test) всех проволок, чтобы убедиться в их надежном креплении к выводам. Будьте осторожны, чтобы не согнуть и не повредить проволоки.
- Отрежьте сегмент изоляционной ленты разъема до 3,5 отверстий (разрежьте середину четвертого отверстия) с помощью режущего лезвия стриппера. Обрежьте этот сегмент ровно до 3 полных отверстий и, если необходимо, зашлифуйте обе стороны. Это поможет гарантировать наличие 3 полных отверстий. Вставьте блоки «вывод-провод» в три отверстия микроленты до тех пор, пока окримпованные концы не сравняются с нижним краем сегмента изолятора. Узел 10T должен находиться в одном из крайних отверстий микроленты, а не в среднем.
- Модифицируйте биполярные стимулирующие электроды (Рисунок 2).
- Предусмотрите для каждой крысы один биполярный стимулирующий электрод. Этот электрод подает небольшой электрический ток через изолятор стимула (см. систему регистрации мигания) в качестве шокового безусловного стимула (US) во время классического обусловливания (ECC). Электроды приобретаются у производителя в скрученном виде и имеют экранирование.
- Раскрутите два металлических отвода 2–3 раза, чтобы придать им V-образную форму (расстояние между ними 5 mm), затем с помощью гладкого прецизионного пинцета максимально выпрямите каждый «зубец». С помощью лезвия бритвы снимите 1 mm экранирования с кончика каждого зубца (по всему периметру). Осмотрите каждый зубец на наличие неровностей и изгибов, при необходимости исправьте их, не снимая дополнительного экранирования.
- Удалите заводское масло и посторонние загрязнения с ЭМГ-головных блоков и биполярных электродов, промыв их в 95% этиловом спирте. Дайте им высохнуть, затем подвергните автоклавированию.
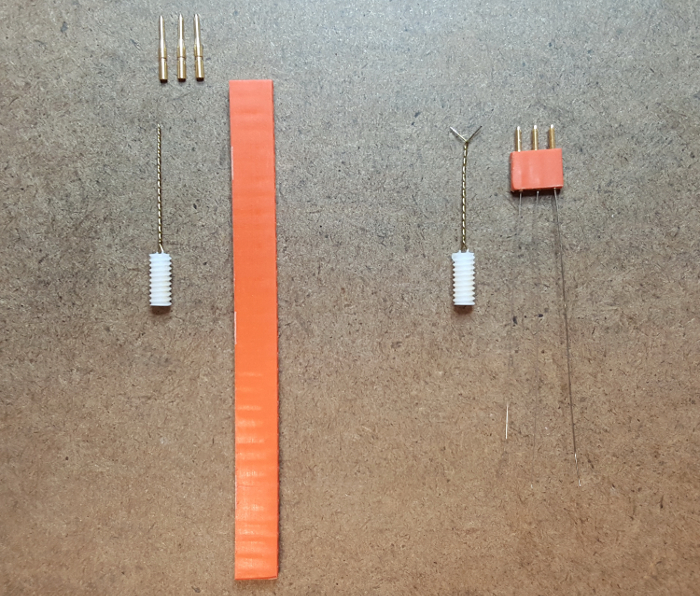
Рисунок 2: Электромиографические (ЭМГ) регистрирующие электроды и биполярный электрод. Готовый входной каскад ЭМГ (справа, оранжевый) состоит из трех штыревых контактов, двух проводов с PTFE-покрытием размера 3T, одного провода с PTFE-покрытием размера 10T и модифицированной микрополоски. Три провода длиной примерно 5 cm каждый обжаты на контактных штырях. Готовый биполярный электрод (справа, белый) раскручен, выпрямлен и придан V-образной форме (развод 5 mm). Экранирование удалено с кончиков двух зубцов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
4. Процедура операции на веках (постнатальный день 90)
- Подготовка материалов (подробная информация о расходных материалах приведена в разделе «Материалы»), животных, хирургической и нехирургической зон:
- Автоклавируйте хирургические инструменты и принадлежности — число в скобках ( ) указывает приблизительный объем, необходимый на одну взрослую крысу или одно измерение: хирургические инструменты (1 набор на 4 крысы, согласно утвержденному протоколу ECU IACUC), марлевые салфетки (3-4), ватные тампоны (5-6), оберточная пленка 20 x 20 (4 шт. на одну операцию), фарфоровый тигель (1), микрошпатель из нержавеющей стали (1), 0,9% физиологический раствор (1 промывочный флакон), чашка Петри (1) и винты из нержавеющей стали 0-80 (3 шт./крыса).
- Другие необходимые стерильные принадлежности: хирургический скальпель, лезвие №10 (1 на 4 крысы), хирургическая салфетка (1 на крысу), ветеринарная офтальмологическая мазь, повидон-йод (1 промывочный флакон), игла для инъекций 26G x 3/8" (2), никелированный зажим для сверл с сверлом №55, никелированная плоская отвертка для ювелирных работ (лезвие 1,8-2 мм).
- Подготовьте стерильную зону для хранения всех хирургических инструментов и принадлежностей, используя утвержденный дезинфицирующий раствор исследовательского или медицинского класса. Поместите материалы в эту зону, когда она будет готова.
- Подготовьте стерильное хирургическое пространство, используя утвержденный дезинфицирующий раствор исследовательского или медицинского класса. В этой зоне должны находиться терморегулируемая грелка с водой, стереотаксический аппарат с маской для анестезии крыс, стерилизатор с стеклянными шариками и газовый испаритель изофлурана (для анестезии). Испаритель оснащен трубками, ведущими к маске для анестезии и к индукционной камере, расположенной в отдельной зоне для нестерильных процедур подготовки животных; каждой трубкой управляет отдельный клапан.
- Тщательно вымойте руки и предплечья с антимикробным мылом. Не касаясь внутренней поверхности, предварительно откройте предметы, упакованные в стерилизационные пакеты или обертки. Наденьте стерильные перчатки, соблюдая асептическую технику, и перенесите все необходимые предметы в хирургическую зону. Установите сверло в зажиме на нужную глубину (~ 2 мм) и подготовьте отвертку. Накройте стерильные материалы стерильной оберткой до начала операции.
- Подготовьте нестерильную зону с весами, электрическим триммером для шерсти, стерильными шприцами объемом 1 mL с иглами 26G x 3/8 in (1 на крысу), журналом операций и бупренорфином (концентрация 0,03 mg/mL), который вводится в дозе 0,1 mL/100 граммов.
ПРЕДОСТЕРЕЖЕНИЕ: Бупренорфин является полусинтетическим опиоидом списка III DEA; он должен храниться в запертом шкафу с соответствующим учетом в журнале. - Проверьте уровень газа в испарителе изофлурана; при необходимости дозаправьте его. Пока оставьте ручки подачи газа и смеси выключенными. Откройте баллон с O2 и убедитесь, что газа достаточно для всех операций.
- Взвесьте каждую крысу и запишите массу тела в журнал операций. Используйте таблицу дозирования бупренорфина для определения правильного объема инъекции.
- Откройте клапан испарителя, ведущий к индукционной камере, и оставьте закрытым клапан к операционной маске. Установите значение смеси на 3, а скорость потока на 3 (3% изофлурана с 100% O2 в качестве газа-носителя при объеме 3 L/min).
- Поместите крысу в индукционную камеру и дождитесь достижения соответствующего уровня анестезии (замедленное дыхание, отсутствие педального рефлекса, отсутствие рефлекса мигания). Извлеките крысу из камеры после достижения этого состояния.
- Выбрейте шерсть на голове с помощью триммера, обнажая достаточный участок кожи для места разреза и левое веко. При необходимости снова поместите животное в индукционную камеру для восстановления уровня анестезии перед продолжением бритья.
- Дезинфицируйте обнаженную кожу, поочередно протирая ее изопропиловым спиртом и повидон-йодом три раза. При необходимости снова поместите животное в индукционную камеру для восстановления уровня анестезии перед переносом на операционный стол.
- Хирургическое вмешательство
- Откройте клапан испарителя, ведущий к маске для анестезии, и закройте клапан индукционной камеры. Установите значение смеси на 2,5, а скорость потока на 2 (2,5% изофлурана с 100% O2 в качестве газа-носителя при объеме 2 L/min). Перенесите крысу в стереотаксический аппарат и следуйте стандартным процедурам по фиксации головы к резцовой и ушным планкам (пример см. у Geiger et al., 200849).
- Сделайте крысе предоперационную подкожную инъекцию (SC) бупренорфина и осторожно утилизируйте иглу (без колпачка) в контейнер для острых предметов. Наложите на крысу стерильную хирургическую салфетку, оставив открытой только операционную зону и изолировав ее от остального тела.
- Наденьте хирургическую маску, шапочку, халат, защитные очки и любые другие средства индивидуальной защиты, требуемые IACUC. Тщательно вымойте руки и предплечья с антимикробным мылом. Наденьте стерильные перчатки, соблюдая стерильную технику.
- С помощью ватного тампона нанесите небольшое количество офтальмологической мази в оба глаза, чтобы предотвратить их пересыхание.
- Приступайте к операции, когда крыса достигнет соответствующего уровня анестезии. Постоянно мониторируйте состояние крысы на протяжении всей операции и периодически проверяйте уровень изофлурана. В ходе операции соответствующим образом регулируйте подачу газа и смесь, исходя из реакции крысы на анестезию.
- С помощью лезвия скальпеля сделайте продольный разрез по срединной линии черепа. Разрез должен обнажить достаточную область перед глазами (включая лобную кость) и область чуть позади лямбдовидного шва.
- Аккуратно соскребите надкостницу с верхней части черепа, стараясь не вызвать избыточного кровотечения. Удалите излишки соединительной ткани и кровь ватным тампоном.
- С помощью зажима для сверл просверлите отверстие, начав непосредственно за венечным швом на одной из теменных костей. Удалите кровь и костную стружку ватным тампоном. Захватите винт 0-80 за резьбу сплинтерным пинцетом и закрутите его в отверстие ювелирной отверткой; затяните винт ровно настолько, чтобы не повредить ткани коры головного мозга (обычно 3-4 полных оборота).
- Повторите процедуру, описанную в п. 4.2.8, чтобы закрепить еще два винта 0-80 в черепе: один непосредственно за венечным швом противоположной теменной кости и один прямо перед правым лямбдовидным швом. Было установлено, что 3 винтов достаточно для фиксации стоматологического цемента (см. п. 4.2.18) к черепу, так как четвертый винт (перед левым лямбдовидным швом) помешал бы установке биполярного электрода.
- Достаньте из чашки Петри блок ЭМГ-регистратора. Разверните блок так, чтобы провод 10T находился с правой стороны крысы. Отогните провод 10T вверх, чтобы он был параллелен нижнему краю микрополоски. Слегка отогните его вправо, чтобы провод мог пройти вокруг переднего и заднего винтов 0-80. Отложите его, но держите в пределах досягаемости.
- [Для правшей] Возьмите в левую руку зажим 3 дюйма, а в правую — зажим 4 дюйма. Захватите верхнюю часть кожи в месте разреза левого глаза зажимом 4 дюйма и направьте зажим 3 дюйма к углу этого глаза; захватите кожу в этом углу. Удерживайте кожу зажимом 3 дюйма, отпустив зажим 4 дюйма.
- Возьмите иглу 26G x 3/8 in и введите ее в угол века; поверните иглу так, чтобы скос был направлен вверх. С помощью микродиссекционного пинцета с платформой вставьте средний провод 3T в отверстие иглы. Протолкните его через отверстие на несколько сантиметров, не вводя полностью; этот провод является отрицательным электродом.
- Выполните процедуры, описанные в п. 4.2.11 и 4.2.12, чтобы ввести внешний провод 3T в среднюю часть века; этот провод является положительным электродом.
- Одной рукой удерживайте обе иглы, а другой (или пинцетом) — блок регистратора. Одним непрерывным движением вытяните иглы из века, перемещая блок регистратора в том же направлении. При необходимости поверните блок так, чтобы провод 10T был направлен к правому глазу животного; не допускайте перекрещивания проводов 3T. С помощью остроконечного пинцета убедитесь, что положительный электрод находится посередине века.
- Отрегулируйте положение блока так, чтобы он был центрирован между глазами и находился в оптимальной позиции на лобной кости, перед вкрученными винтами. Удерживая блок одной рукой, а зажим 3 дюйма — другой, оберните провод 10T вокруг одного или обоих винтов со стороны 10T.
- Возьмите в одну руку зажим 3 дюйма, в другую — зажим 4 дюйма. С помощью зажима 3 дюйма захватите кожу в месте разреза в области левого виска. С помощью зажима 4 дюйма создайте небольшой «карман», отделив кожу (т. е. поверхностную фасцию) от височной мышцы. Используйте иридиальные ножницы, чтобы вырезать больше соединительной ткани, двигаясь к углу левого глаза, чтобы увеличить размер этого кармана. Будьте осторожны, чтобы не зайти слишком глубоко и не перерезать кровеносные сосуды.
- Возьмите биполярный электрод и придайте проводам форму, чтобы они прилегали по изгибу височной мышцы, в то время как два штырька (дорсальный и вентральный) располагались бы позади левого глаза (см. видео), а нижний конец биполярного электрода находился прямо на черепе. Оставьте достаточное расстояние между блоком и этим электродом, чтобы штекеры кабеля коммутатора (Рисунок 3) могли подключиться без помех.
- Насыпьте порошок стоматологического цемента в тигель — начните примерно с 1/3 тигеля, затем при необходимости отрегулируйте количество. Добавьте жидкий компонент до получения водянистой консистенции и перемешайте компоненты шпателем. Когда консистенция цемента станет более вязкой, нанесите его на место разреза, перекрывая все края кожи с запасом не менее 1/8 дюйма.
- Нанесите достаточное количество цемента, чтобы зафиксировать блок регистратора и биполярный электрод, не препятствуя при этом закрытию обоих глаз крысы. Быстро удалите цемент, который капнул на ненужные участки шерсти крысы.
- Убедитесь, что как минимум 4-5 витков биполярного электрода остались не залитыми цементом, чтобы можно было накрутить биполярный штекер (Рисунок 3). Удалите излишки цемента с блока регистратора — верхняя часть микрополоски и три контактных штырька должны быть чистыми. Цемент быстро затвердевает и может помешать полному соединению электродов со штекерами кабеля коммутатора. Используйте сплинтерный пинцет, чтобы удалить частично засохший излишек цемента.
- Дождитесь затвердевания цемента; он станет прозрачным. С помощью микродиссекционных ножниц обрежьте излишки длины двух проводов 3T, оставив несколько сантиметров для работы.
- Возьмите в левую руку микродиссекционный пинцет с платформой, а в правую — остроконечный микродиссекционный пинцет. Захватите один провод 3T левым пинцетом чуть впереди века. Правым пинцетом приподнимите веко, чтобы обнажить больше провода 3T, и удерживайте его. Отпустите левый пинцет и левой рукой придержите блок регистратора (убедитесь, что он к этому моменту надежно зафиксирован). Правым пинцетом снимите часть ПТФЭ-изоляции, чтобы провод мог контактировать с мышцей orbicularis oculi.
ПРИМЕЧАНИЕ: Будьте осторожны, не тяните слишком сильно за провод 3T, так как он может отсоединиться от контактного штырька. Если провод отсоединится, заменить контактный штырек будет невозможно, так как затвердевший цемент не отделится от черепа без перелома кости. - Повторите действия из п. 4.2.21, чтобы снять излишки ПТФЭ со второго провода 3T.
- Возьмите два микродиссекционных пинцета, как указано в п. 4.2.21 (с платформой в левой руке, остроконечный в правой). Расположите левый пинцет чуть впереди одного из проводов 3T, оставив место для правого пинцета непосредственно перед веком. Захватите провод обоими пинцетами.
- Сформируйте «крючок», удерживая правый пинцет неподвижно и поворачивая левый пинцет вверх и вокруг в сторону века; сделайте это одним движением. Осторожно отпустите сначала правый, затем левый пинцет.
ПРИМЕЧАНИЕ: Фиксация электродов «крючком» за веки помогает минимизировать вероятность их трения о роговицу. Это также снижает риск обрыва провода на любом этапе поведенческого тестирования. Хотя такая фиксация не полностью предотвращает трение провода о роговицу у всех животных, обычно у них не наблюдается признаков повреждения глаз, что подтверждается высокой амплитудой мигания (измеряемой цифровым осциллографом в п. 5.1.7) и ежедневными послеоперационными наблюдениями за здоровьем (отсутствие чрезмерного слезотечения, частичного закрытия век, неподвижности из-за повреждения глаза). Если у крысы появляются первые признаки дискомфорта, ее анестезируют изофлураном (см. п. 4.1.10), а электроды повторно осматривают и/или перепозиционируют. Для предотвращения пересыхания роговицы наносится офтальмологическая мазь. За крысой ежедневно наблюдают на предмет любых послеоперационных осложнений со стороны глаз; при их сохранении следует обратиться к ветеринару. Крысы с тяжелыми осложнениями глаз, которые не могут быть устранены перепозиционированием электродов или ветеринарным лечением, подвергаются гуманной эвтаназии в соответствии со стандартными операционными процедурами ECU IACUC.
- Сформируйте «крючок», удерживая правый пинцет неподвижно и поворачивая левый пинцет вверх и вокруг в сторону века; сделайте это одним движением. Осторожно отпустите сначала правый, затем левый пинцет.
- Выполните действия из п. 4.2.23 для второго провода 3T. Обрежьте излишки провода микродиссекционными ножницами.
- Одной рукой освободите крысу из ушных планок, поддерживая ее тело другой рукой. Осмотрите голову на наличие крови или загрязнений, при необходимости очистите ее и сделайте послеоперационную инъекцию бупренорфина.
- Поместите крысу в контейнер для восстановления с источником тепла (например, терморегулируемой грелкой с водой), чтобы облегчить восстановление. Отметьте время окончания операции в журнале и внесите любые важные примечания о состоянии крысы во время операции. Следите за правильным дыханием крысы; когда она примет положение лежа на груди (стернальное положение) или начнет двигаться, ее можно вернуть в домашнюю клетку.
- Повторно стерилизуйте инструменты (кроме микродиссекционных пинцетов, так как они могут быть повреждены) с помощью стерилизатора с шариками; обеспечьте асептичность хирургической зоны и повторите асептические процедуры, если будут выполняться несколько операций на веках.
5. Процедура классического обусловливания моргания
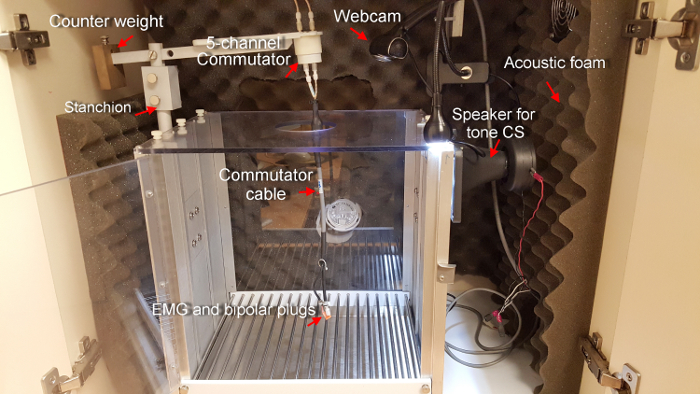
Рисунок 3: Модифицированная камера для оперантного обусловливания с целью формирования мигательного рефлекса. Поскольку крысы являются свободно передвигающимися млекопитающими, для поддержания электрического контакта сигналов ЭМГ и биполярных штекеров, закрепленных на голове, используется вращающийся коммутатор. Коммутатор прикреплен к кронштейну стойки, оснащенной противовесом для снижения давления на крысу. Пьезоэлектрический твитер (динамик) подает сигнал частотой 2.8 kHz и интенсивностью 85 dB; эти значения регулярно калибруются. Акустический поролон способствует подавлению внешнего шума. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
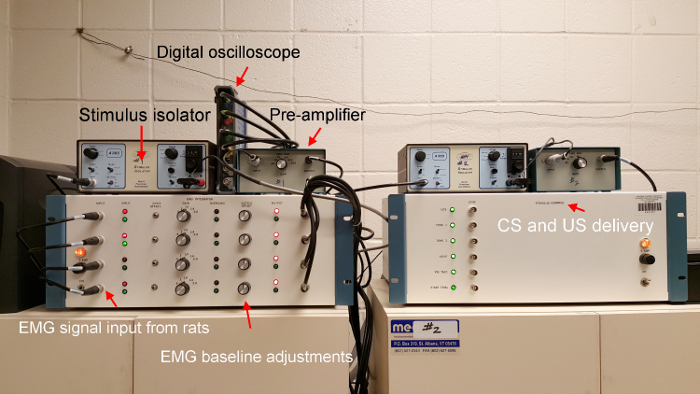
Рисунок 4: Система обусловливания мигания. Эта специально разработанная система состоит из блока интегратора ЭМГ, который фильтрует и усиливает входящие сигналы от крыс, блока управления стимулами, подающего различные стимулы в дополнение к тонам и ударам тока, предусилителя для каждого оперантного бокса для увеличения усиления ЭМГ-сигнала, и изолятора стимулов для каждого оперантного бокса; система обеспечивает различные уровни разряда (в mA). Цифровой осциллограф (не входит в стандартную систему обусловливания мигания) используется в диагностических целях во время привыкания и сбора данных. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
- Начните привыкание и обучение усвоению через 5 дней после операции. Каждой крысе посвятите один день для привыкания к экспериментатору и к тренировочному аппарату, который представляет собой модифицированную камеру для оперантного обусловливания, помещенную в более крупную звукоизолированную камеру (Рисунок 3) — после чего следует 6 дней обучения приобретению реакции. Проводите сеансы габитуации и приобретения с использованием специально разработанной системы регистрации моргания (Рисунок 4).
- Создайте файл журнала обучения и распечатайте его для ежедневного ведения записей. В этом журнале группа крыс должна быть предварительно распределена по тренировочным боксам псевдослучайным образом (или с использованием другого метода рандомизации).
- Включите систему регистрации моргания, компьютер и запустите соответствующее программное обеспечение. Данная версия ПО содержит различные модули (или приложения), которые работают независимо друг от друга. Запустите модуль Animal («Животные»), чтобы создать файл в формате *.RAT, содержащий информацию о субъектах (номер сессии, идентификатор животного, пол, вес и номер бокса). Один RAT-файл позволяет управлять группой до четырех крыс. Введите соответствующие значения и сохраните файл. Создавайте отдельный RAT-файл для каждой группы крыс, подлежащих обучению.
- Перенесите крыс из вивария в помещение для тестирования и закройте дверь. В течение 5 минут проведите ручную манипуляцию с каждой крысой.
- Переместите крысу в назначенную клетку и подключите штекеры ЭМГ и биполярного электрода кабеля коммутатора к соответствующему предусилителю ЭМГ и биполярному электроду на голове животного.
ПРИМЕЧАНИЕ: При первом контакте с коммутационным кабелем крыса может сопротивляться и проявлять признаки стресса. Обращайтесь с животным осторожно и делайте перерывы между неудачными попытками подключения, чтобы снизить уровень стресса. - Используйте вращающийся коммутатор 360° при сохранении подачи и приема электрических сигналов во время свободного перемещения крысы внутри бокса. Устройство имеет 5 каналов (3 для ЭМГ-электродов, 2 для биполярных электродов), которые ведут в блок интегратора ЭМГ, осуществляющий фильтрацию и усиление исходного сигнала.
- Убедитесь, что крыса свободно передвигается и что ее движениям не препятствуют вес коммутационного кабеля или рычаг стойки. При необходимости отрегулируйте противовес в задней части стойки. Проверьте надежность всех соединений, после чего закройте дверцу клетки. Повторите процедуру подключения и проверки для всех остальных крыс.
- Используйте осциллограф для мониторинга ЭМГ-активности на предмет выявления аномальных сигналов (например, высокочастотной и/или высокоамплитудной электрической активности), а также систему видеонаблюдения (при наличии) для контроля состояния животных (например, двигательной активности, чувствительности к окружающей среде, признаков боли). Фиксируйте все выявленные проблемы в журнале обучения.
- Дайте крысам привыкнуть к камерам в течение 10 минут, после чего верните их в домашние клетки.
- Очистите и продезинфицируйте оперантные камеры, подметите пол и протрите стол (столы). Выполняйте эти процедуры после каждого сеанса.
- Обучение приобретению навыка проводится в течение 6 последовательных дней (сессий).
- День 1: Поместите крысу в назначенную клетку, подсоедините разъемы ЭМГ и биполярные штекеры коммутационного кабеля к соответствующему предусилителю ЭМГ и биполярному электроду на голове животного. Выполните те же процедуры, что указаны в пунктах 5.1.6 и 5.1.7.
- Включите изоляторы стимулов и установите подаваемый ток на уровне 0,4 мА (4% от 10 мА, как показано на видео). Изоляторы подают электрический ток поочередно (т. е. от одного испытания к другому) между дорсальным и вентральным зубцами биполярного электрода. Это способствует снижению утомляемости мышечных волокон (в каждой точке воздействия на мышцу) при многократной подаче стимулов.
- Отслеживайте все зарегистрированные реакции мигания и проявляемую толерантность в каждой пробе для всех крыс. После каждой второй пробы увеличивайте интенсивность шокового безусловного стимула (БС) на 0,4 мА для каждой крысы, пока не будет достигнуто значение 1,6 мА (на 7-й и 8-й пробах). Убедитесь, что все крысы реагируют нормально в своих боксах, что все настройки усиления и коэффициента усиления неизменны, а поступающие от них электрические сигналы корректны (т. е. наблюдается низкий/незначительный шум ЭМГ). На протяжении всех дней обучения в период освоения используйте интенсивность шокового БС 1,6 мА.
ПРИМЕЧАНИЕ: Если крыса проявляет признаки болевой реакции при определенном уровне разряда (например, высоко подпрыгивает, пытается забраться по стенкам или хаотично бегает), испытание приостанавливается, и животное возвращается к предыдущему значению силы тока (на 0,4 мА ниже) на два испытания. После этого крысе снова подается более высокое значение разряда, которое ранее было непереносимым; в случае переносимости значения силы тока постепенно увеличиваются до достижения 1,6 мА. Если животное не переносит ни одного из значений, на протяжении всего обучения используется следующее более низкое значение (с шагом 0,4 мА), которое является переносимым. - Используйте осциллограф для наблюдения за их ЭМГ-активностью на предмет наличия аномальных сигналов (напр., высокочастотная и/или высокоамплитудная электрическая активность) и систему видеонаблюдения для контроля их состояния (например,, двигательная активность, чувствительность к окружающей среде, признаки боли).
ПРИМЕЧАНИЕ: Пояснение к трассировке ЭКГ: репрезентативная эпоха пробного испытания с зарегистрированными осциллограммами ЭМГ представлена на Рисунок 1 а процедура частичного угашения (trace ECC) подробно объясняется в видео. Файл обучения кондиционированию с интервалом настроен на проведение 100 проб (90 проб с сопряженным CS-US и 10 проб только с CS на каждые 10th испытание) со средним интервалом между испытаниями 30 с. Весь тренировочный сеанс длится примерно 52 мин (при условии отсутствия остановок). В Сеансе 1 все крысы являются неопытными (naïve) и будут демонстрировать различные кривые обучения (определяемые по выраженности условных реакций) по мере прохождения нескольких дней тренировок. - Начало обучения: запустите программный модуль Blink. При появлении соответствующего запроса выберите нужный RAT-файл и файл обучения для кондиционирования мигания глаз по типу «след» (trace).
- Запишите время начала и имя экспериментатора в журнал обучения. На данном этапе контролируйте все показатели: правильность сигналов ЭМГ, адекватность реакций моргания на шоковый безусловный стимул (т. е. выраженные/частые БР), состояние здоровья животных и исправность оборудования. Внесите любые значимые примечания в журнал обучения.
- Сбор данных осуществляется программным обеспечением автоматически в виде RAW-файлов (по одному на крысу в день). RAW-файлы содержат данные об амплитуде ЭМГ (в вольтах), подсчете частот, латентности и площади ответа для стартл-реакций (SR), безусловных реакций (UR) и условных реакций (CR) (общих и адаптивных). Артефакт от разряда тока перекрывает первые 100 мс периода UR, поэтому данные UR содержатся только в последних 140 мс этого периода.
- По завершении обучения программное обеспечение закроется автоматически. Извлеките всех крыс из боксов для обучения и верните их в виварий.
- Повторите шаги 5.2.5–5.2.6 для всех последующих дней обучения. Перед запуском модуля Blink в конкретный день обновите номер сессии в RAT-файле. Это позволит создать новые RAW-файлы для всех крыс за этот день. У каждой крысы должно быть 6 RAW-файлов, при условии, что ни одна из них не была исключена из процесса обучения.
- Обработайте RAW-файлы и создайте файл, отфильтрованный для статистического анализа.
- Запустите модуль анализа. Просмотрите каждую сессию для каждой крысы по каждому отдельному испытанию на предмет выявления проблемных проб. Это необходимо для отсеивания испытаний, которые могли быть скомпрометированы по различным причинам (например,, чрезмерная фоновая активность перед стимуляцией (CS), избыточные движения, отсоединение электродов, проблемы с кабелями/проводами). В программном обеспечении реализованы алгоритмы, помогающие экспериментатору выявлять «плохие пробы» и исключать их из отфильтрованного набора данных.
- Импортируйте отфильтрованные данные в программу для работы с электронными таблицами и проведите соответствующий статистический анализ.
Результаты
Программное обеспечение eyeblink способен обеспечить большой и всеобъемлющий набор данных для многих типов измерений. Для краткости мы приводим в этом исследовании, представитель результаты обучения и производительности меры, которые включают адаптивной CR процент, адаптивные CR амплитуды, UR процент и UR амплитуды. Адаптивный CR период был выбран как он представляет собой приобретение своевременный eyeblink ответов за повторное обучение, в результате расширения синаптической пластичности в гиппокампе во время трассировки ECC50,51,52. UR меры были выбраны для выяснения ли дефицит новорожденных алкоголя индуцированной обучения в след ECC были из-за перебоев в ассоциативные обучения или сбоев в реагировании на шок нас - что может свидетельствовать о мотивации или мотор различия, а не обучения различия между группами лечения. Данные для каждой меры были проанализированы с использованием 2 (секс) x 3 (неонатальной группы) x 6 (сессия) смешанного ANOVAs, с сессии как фактор повторил мер. Существенные основные эффекты для новорожденных лечение были проанализированы с помощью тестов post hoc Тьюки и значимых взаимодействий были проанализированы с помощью простых эффектов тестов. Все статистические анализы были проведены с использованием минимального уровня Альфа-0,05 и результаты в графах среднее ± SEM.
Начиная с адаптивной меру процент CR, ANOVA указал значительные основной эффект неонатальной группы, F(2,21) = 11,69, p < 0,001, но без существенных основной эффект секса (p = 0,71) или значительное взаимодействие между этими факторами (p = 0,20). Как ожидается, адаптивной CR доля увеличилась в течение шести сессий обучения, F(5, 105) = 81,15, p < 0,001 и различия между новорожденным групп были зависит от определенного уровня сессии, F(10, 105) = 4.58, p < 0,001. Существовали без других значимых взаимодействий, связанных с коэффициента сессии. Аналогичным образом для адаптивной CR амплитуды, был снова значительной основной эффект неонатальной группы, F(2,21) = 22.32, p < 0,001, но без существенных основной эффект секса (p = 0,21) или значительное взаимодействие между этими факторами (p = 0,48). Амплитуда CR также значительно увеличилось за шесть сессий обучения, F(5, 105) = 59.27, p < 0,001 и различия между новорожденным групп были зависит от определенного уровня сессии, F(10, 105) = 4,31, p < 0,001. В целом как CR меры показали значительные различия среди группы и эти средства значительно разделены на различных сессиях обучения. Чтобы подтвердить, какие группы существенно отличались, Тьюки post hoc тесты показали, что крысы интубированных алкоголя (AI) выполняется значительно хуже на обоих CR меры, чем unintubated контроль (UC) и Шам интубированных крысы (SI) (p < 0.01 процент CR; p < 0,001 для CR амплитуда), которые не отличаются друг от друга (p> 0,05). Простые эффекты испытания на значительные группы новорожденных x сессии взаимодействий для обеих мер CR, подтвердил, что AI крыс были более существенно нарушаются в приобретении CRs, начиная с сессии 2 и проведении сессии 6 по сравнению с UC и SI крысы (все p< 0,05), которая не отличается друг от друга на протяжении шести сессий. Единственным исключением был адаптивной CR амплитуды для SI крыс не начинают значительно отличаются от AI крысы до 3 сессии. Эти результаты показаны на рисунке 5А, 5б.
Существовали никаких существенных различий в UR меры из-за пола, неонатальной группы или взаимодействие этих факторов с фактором сессии. Эти негативные выводы указал, что каждая группа смогла выделяют eyeblink ответы на шок нас одинаково, и не были обучения дефицит наблюдается в AI крыс под влиянием мотивационные или мотор различия в мигающий (Рисунок 6A, 6В).
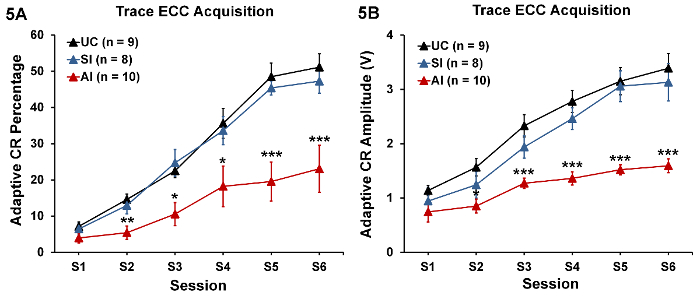
Рисунок 5 : Приобретение трассировки кондиционером ответивших (среднее ± SEM). Раннего воздействия алкоголя (группы AI) существенно повлияло на приобретение адаптивной условный рефлекс (CR) процент (A) и амплитуды (B). Трассировка ECC является по своей природе трудно приобрести, поэтому меры относительно ниже, для всех групп - с задержкой ECC, доля может достигать 80-85% в FASD21,53-грызунов модели. Тем не менее трассировка ECC процедура является более таксировать на гиппокампе, который восприимчивыми к воздействию алкоголя во время раннего развития мозга. * = p < 0,05, ** = p < 0.01, *** = p < 0,001 между UC и ии крыс; в скобках указаны размеры выборки. Пожалуйста, нажмите здесь, чтобы посмотреть большую версию этой фигуры.
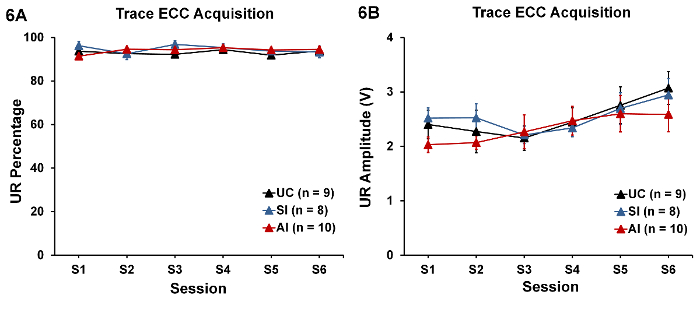
Рисунок 6 : Приобретение unconditioned ответов (средний ± SEM). Eyeblink производительности (процент UR и UR амплитуды) не был значительно отличаются между группами. Отсутствие различия указывают, что интенсивность шок, используемые во время приобретения учебных дифференциально не изменяют мотивации в AI крыс или их способности производить оборонительных мигать ответы на шок, по сравнению с обеих групп управления (UC и SI). В скобках указаны размеры выборки. Пожалуйста, нажмите здесь, чтобы посмотреть большую версию этой фигуры.
Обсуждение
Щенков новорожденных крыс, которые получил этилового спирта во время послеродовых дней 4-9 выставлены трассировки eyeblink принадлежности нарушениями в зрелом возрасте. Эти выводы поддерживают идею, что алкоголь является систему или тератогеном с терпя пагубное влияние на гиппокампа функции. В целом, кондиционером, отвечая в процедуре след был ниже для крыс воздействию алкоголя, по сравнению с крысами в обеих группах управления. Ассоциативные обучения расстройства в спирт облученных крыс были не под влиянием различия мотивационные или мотор (т.е., никаких различий в мигающий шок США интенсивности).
В то время как трассировки ECC является полезным диагностическим инструментом для разъяснения вызов индуцированной гиппокампа невропатология, результаты от этого метода должны быть помещены в надлежащий контекст. Во-первых основные процедурные элементы в этой демонстрации участие адресности алкоголя во время известных окна уязвимости для развивающегося мозга, изготовление электродов оборудования, которое позволяет записывать электромиографической активности и поставляет шок, хирургической имплантации вышеупомянутого оборудования, и последующие животных тестирования с помощью обучения парадигмы, которая оценивает когнитивной функции интерес. На каждом этапе процесса необходимо позаботиться чтобы не повредить ненужные/непредусмотренной субъектам грызунов и регулярно контролировать их признаки здоровья. Их поведенческих результаты обеспечивают «окна» для познания, психологической конструкции, только точно описано, когда их здоровье не скомпрометированы экспериментальной ошибки, охватывающих дозировки спирта, аппаратных дефектов или хирургической имплантации. Таким образом каждый процедурный элемент в процессе исследования должны осуществляться на прочной основе тем, что результаты от ECC могут быть экстраполированы на выводы в организме человека. Во-вторых ECC парадигма дает представление о характере обучения ассоциативные, но необходимо позаботиться не продлить выводы, используя этот подход и широко приписывают их в другие когнитивные домены - например рабочей памяти, короткие/долгосрочной памяти и сознания - если один включила некоторые аспекты этих доменов в рамках исследования ECC экспериментальный дизайн. Например эта демонстрация изучил этапа приобретения трассировки ECC обучения, но не рассматривала памяти хранения в крыс после того, как они завершили подготовку. Таким образом, память является независимым психологический процесс, который должен быть оценен в дополнение к обучению. Дизайн одно может включить интервал хранения памяти для оценки способности либо краткосрочной или долгосрочной памяти. В-третьих признание, что есть параллельной памяти систем54 , которые могут одновременно работать вместе с мотивационный, эмпирического и гормональные факторы, способствующие поведение, имеет важное значение для понимания, что ассоциативность (во время ECC), но один из многих процессов, которые показывают, что такое «хорошо» или «бедные» об обучении. Наконец трассировка ECC не является чисто гиппокампа зависимые задачи, как другие регионы мозга может посредничать некоторых компонент ЧР. Таким образом понимание взаимодействия между различными нейронных цепей и/или тип параметров стимул, которые используются в исследовании, должны приниматься во внимание при принятии последствия на основе дискретного результатов. Например, мозжечке, также способствует трассировки ECC, где она влияет на топографические характеристики CR и CR, сроки, особенно когда МСИ короткие по продолжительности. Трассировки ECC не подвергается в организме человека с повреждением мозжечка, которые тестируются с интервалом в длинный след (1000 мс), но это влияет в тех, которые получают короче трассировки интервал (400 мс)34. Кроме того двусторонним поражения спинной медиальной префронтальной коры (mPFC), которые регионов передней поясной и медиальной протискивается в мышей, предотвратить приобретение трассировки CRs55, в то время как уничтожение хвостового mPFC у кроликов производит аналогичные результаты46. Эти выводы также подчеркнуть важность рассмотрения что Межвидовые различия в префронтальной вклад мозжечка головного мозга стволовые ведомый ассоциативные обучения, например трассировки ECC. В то время как воздействия неонатальной алкоголя во время PD 4-9 пострадавшим приобретение 500-ms CRs трассировки для взрослых крыс в это исследование и другие47,56, это не же случай для новорожденных крыс воздействию алкоголя столкнуться интервале трассировки 300 мс, даже когда оспаривается в относительно высокой дозы алкоголя (5 г/кг)57, о том, что трассировка обесценения алкоголя облученных крыс зависит от длительности интервала трассировки.
В этом исследовании гиппокамп было подчеркнуто как жизненно важные для посреднических трассировки ECC и когда оспаривается неонатальной алкоголя экспозиции, экспонатов нейронных связанных с ущербом, отраженных от дефектов в приобретении трассировки CRs. Он должен, однако, предупредил, что мозжечка мозг стволовых схемотехника, особенно interpositus ядра, имеет важное значение для многих аспектов ECC, включая приобретение, выражения и топографических особенностей территории ЧР, в зависимости от типа задачи ECC, включая трассировки ECC36,40,55,,5859. Действительно этот нейронной цепи взаимодействует с гиппокампа для вождения выражение CRs во время высокого порядка форм ECC, например трассировки ECC60. Затрагивает ли воздействия алкоголя во время раннего развития мозга специально гиппокампа функции в трассировке ECC не вполне ясно. Многие регионы различных мозга уязвимы для раннего оскорбления алкоголя, включая mPFC, мозжечок и гиппокампа18,19,23,47,,6162, и это очень вероятно, что алкоголь нарушает функционирование этих структур в различной степени и разной, но функционально важные различия во многих процедурах ECC. Несмотря на недостатки относительно толкования результатов трассировки ECC исследований успешное приобретение трассировки CRs было показано по крайней мере полагаться на нетронутыми гиппокампа, поддержанные животных поражения исследования42,44,63,64,65. Таким образом, эта процедура остается весьма ценным подход для демонстрации связи между воздействием развития алкоголя проследить кондиционером отвечает потому, что нейронная цепь, лежащие в основе его, гораздо лучше понимать чем другие гиппокампа зависимых задач, таких как место обучения в лабиринте Моррис воды, Роман объекта признания и контекстуальных и следа страха принадлежности.
ECC как поведенческих метод для «проба» познания, имеет широкое применение в области развития neuroteratology. Действительно недавние выводы из нашей лаборатории поддерживают понятие, что развивающихся гиппокампа очень чувствительна к воздействию алкоголя, которые могут быть уменьшены путем различных интервенционных стратегий18,47. Ключевым преимуществом здесь является, что с лучшего понимания алкоголя индуцированной трассировки ECC обучения дефицита, они могут быть прогнозирования других проблем в гиппокампа функций за пределами ассоциативные обучения - особенно известно для быть опосредовано же гиппокампа neurocircuitry.
Приложение трассировки ECC и его другие варианты (например, задержки, отмены, дискриминации, составные) для выяснения нейробиологических механизмов и нервной систем, участвующих в ассоциативные обучения, может быть расширено за пределы области исследований плода алкоголь. Например эта парадигма получил много внимания в случаях заболевания людей и животных моделей психиатрических условий, таких как шизофрения66,67, нейродегенеративных заболеваний, таких как болезнь Альцгеймера68,69и наркотиков злоупотреблений70,,7172. Ее преимущества, как метода исследования для оценки neurocognitive функции и дисфункции очевидны таким образом во многих психологических и биомедицинских дисциплинах, включая нейронауки.
Раскрытие информации
Авторы не имеют ничего сообщать.
Благодарности
Эта работа была поддержана Грант для TDT от алкоголя Фонд медицинских исследований и напитки (ABMRF).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| <сильно>Неонатальное воздействие алкоголя< / сильный> | |||
| 190 пруф этиловый спирт (USP) | Pharmco-AAPER | 225-36000 [ECU Medical Storage] | Может быть заменен; должен быть УТП; избегайте использования 200 крепостного этилового спирта |
| Контейнер/корзина для щенков | Любое | ||
| кукурузное масло | Любой | пищевой | |
| насос для нагрева воды с / Прокладки | Gaymar | TP-500 | Для сохранения тепла у щенков; могут быть заменены: |
| иглы для подкожных инъекций 22G x 1 дюйм, стерильные | любые | ||
| иглы для подкожных инъекций 30G x 1/2 дюйма, стерильные | любые | ||
| изопропиловые спирты 70% | EMD Millipore | PX1840-4 [Fisher Scientific] | Могут быть заменены; реагент grade www.fishersci.com |
| Long-Evans Rats (самки и самцы заводчиков) | Charles River Laboratories | N/A [ECU Dept. of Comparative Medicine] | Необходимо указать возраст и вес; цены варьируются в зависимости от этих факторов www.criver.com |
| Микроножницы для препарирования, 3,5 дюйма, 23 мм лезвия | Biomedical Research Instruments | 11-2200 | Для резки полиэтиленовых трубок brisurgical.comПолиэтиленовая |
| трубка 10 (0,011 дюйма) Удостоверение личности; 0.024 дюйм О.Д.) | BD Diagnostic Systems | 22-204008 [Fisher Scientific] | Может быть заменено www.fishersci.comТрубка |
| полиэтилена 50 (0,023 дюйма. Удостоверение личности; 0.038 дюйм О.Д.) | Диагностические системы BD | 22270835 [Fisher Scientific] | Может быть заменен www.fishersci.com |
| Регулируемый водонагреватель или подогреватель детских бутылочек для молока | Любой | Опционально; помогает с подогревом холодных молочных растворов | |
| Туберкулиновые шприцы, Стерильные, 1,0 мл | Любые | ||
| Туберкулиновые шприцы, Стерильные, 10 мл | Любые | Может использоваться для извлечения этилового спирта или использовать микропипетки подходящего размера | |
| Весы для взвешивания | любого | Должен иметь хорошее разрешение (в граммовых единицах) | |
| Name< | strong>Company | Номер в каталоге | Комментарии |
| ЭМГ Изготовление сцены и биполярный электрод Модификация | |||
| биполярный электрод, 2-канальный скрученный пластик из нержавеющей стали | One, Inc. | MS303/2-B/SPC ИЗБРАННЫЕ СС 2C TW .008" | Необходимо указать пользовательскую длину 20 мм ниже пьедестала www.plastics1.com |
| Centi-Loc Strip Socket Insulator (aka, Micro Strip) | ITT Cannon / ITT Interconnect Solutions | CTA4-IS-60* или CTA4-1S-60* | *Зависит от поставщика; см. www.onlinecomponents.com или www.avnetexpress.avnet.com |
| Стоматологические плоскогубцы, зубчатые | CMF Medicon | 390.20.05 | Может быть заменен; использовать для обжима проводов к контактным контактам с наружной резьбой www.medicon.de |
| Микроножницы для препарирования, лезвия 3,5 дюйма, 23 мм Инструменты | для биомедицинских исследований | 11-2200 | Используйте только для резки проводов 3T; резка проводов 10T повредит лезвие лезвия - используйте вместо этого лезвие устройства для снятия проводов brisurgical.com |
| Проволока из нержавеющей стали с покрытием из ПТФЭ, 10T (диаметр 0,010 дюйма) | Sigmund Cohn-Medwire | 316SS10T | www.sigmundcohn.com |
| Проволока из нержавеющей стали с покрытием из ПТФЭ, 3T (диаметр 0,003 дюйма) | Sigmund Cohn-Medwire | 316SS3T | www.sigmundcohn.comЛезвие |
| бритвы | Любое | Для снятия 1 мм зубцов биполярного электрода | |
| Relia-Tac Socket Contact Pin, наружная | Cooper Interconnect | 220-P02-100 | См. Allied Electronics Cat # 70144761 www.alliedelec.com |
| Пинцет, высокоточный, зубчатый, 4 3/4 в | электронной микроскопии | 78314-00D | Для крепкого захвата проволоки 10T при зачище ПТФЭ гладким пинцетом www.emsdiasum.com |
| Пинцет, высокоточный, гладкий, 4 3/4 в | электронной микроскопии | 78313-00B | www.emsdiasum.com |
| Пинцет, ультратонкие наконечники, 4 3/4 в | электронной микроскопии | 78510-0 | Зачистить 1 мм фторопласта с одного конца проволоки 3Т; захватить экранированную часть гладким пинцетом www.emsdiasum.com |
| Средство для зачистки проволоки, 16-26 AWG | Любое | Используйте конец лезвия для резки микрополосок | |
| Название | Company | Номер в каталоге | Комментарии |
| Eyelid Surgery | |||
| Хирургические инструменты (высококачественная нержавеющая сталь) | |||
| 2 х перевязочных щипца, 4 в зубчатых | биомедицинских исследовательских инструментах | 30-1205 | Могут быть заменены; дополнительные щипцы для захвата электродов/винтов за пределами хирургического лотка brisurgical.com |
| Перевязочные щипцы, 3 в зубчатых | биомедицинских исследовательских инструментах | 30-1200 | Можно заменить brisurgical.comЛоток |
| для инструментов | Инструменты для биомедицинских исследований | 24-1355 | Можно заменить brisurgical.comРукоятка |
| ножа No3, 5 в | Инструменты для биомедицинских исследований | 26-1000 | Можно заменить brisurgical.com |
| Микрощипцы для препарирования, 3,5 дюйма, тонкие точки | Инструменты для биомедицинских исследований | 10-1630 | Можно заменить brisurgical.com |
| Микрощипцы для препарирования, 3,5 дюйма, гладкая платформа (0,3 x 5 мм) | Инструменты для биомедицинских исследований | 10-1720 | brisurgical.comМикро |
| Ножницы для препарирования, 3,5 дюйма, чрезвычайно тонкие, лезвия 15 мм | Инструменты для биомедицинских исследований | 11-2000 | Можно заменить brisurgical.com |
| Простые щипцы для заноз, 3,5 дюйма | Инструменты для биомедицинских исследований | 30-1600 | Могут быть заменены brisurgical.com |
| #10 Хирургическое лезвие из нержавеющей стали для ручки #3, стерильное | Любое | может быть заменено | |
| 0-80 x 0.125 в винтах из нержавеющей стали Plastics | One, Inc. | 0-80 x 0.125 | Может быть заменено www.plastics1.com |
| Alcohol Prep Pads, Sterile | Fisher Scientific | 22-363-750 [Fisher Scientific | Может быть заменено www.fishersci.com |
| Betadine Povidone-Iodine | Purdue Frederick Co. | 6761815101 [Fisher Scientific] | Можно заменить www.fishersci.com |
| Betadine Povidone-Iodine Prep | Pads Moore Medical | 19-898-946 [Fisher Scientific] | Можно заменить www.fishersci.com |
| палочки, автоклавируемые | любые | Обычно длина сверла 7,6 см или 15,2 см | |
| для штифтовых тисков, #55 (0,052 дюйма) | Любой | металл должен быть устойчив к ржавчине и коррозии | |
| Марлевые прокладки, 2 в x 2 в | Fisher Scientific | 22-362-178 [Fisher Scientific] | Можно заменить www.fishersci.com |
| Универсальные латексные/нитриловые/виниловые перчатки общего назначения | любые | ||
| Стерилизатор со стеклянными шариками | Любой | Стерилизация инструментов между операциями | |
| Насос для терапии водой с подогревом с прокладками x 2 | Gaymar | TP-500 | Может быть заменен; рекомендуются отдельные насосы - 1 для хирургии, 1 для восстановления |
| Иглы для подкожных инъекций 26G x 3/8 дюйма, стерильные | любые | ||
| изофлураны | Vedco | NDC 50989-150-12 | Производитель может быть заменен; может потребоваться ветеринарное одобрение |
| Система исофурана для испарителя, настольная, недышащая | Parkland Scientific | V3000PK | Может быть заменена www.parklandscientific.comJewelers |
| Отвертка с лезвием 1,8-2 мм | Любой | металл должен быть устойчив к ржавчине и коррозии | |
| Ortho-Jet BCA Package (стоматологический цемент) | Lang Dental | B1334 | Содержит порошок (1 фунт) и жидкость www.langdental.com |
| Кислородный баллон с регулятором давления, крупный | местный поставщик | ||
| Фарфоровый тигель, высокая форма, глазурованный, 10 мл | CoorsTek, Inc. | 07-965C [Fisher Scientific] | Может быть заменен на Fisher FB-965-I Широкоформатный тигель www.fishersci.com |
| Puralube Ветеринарная офтальмологическая мазь, стерильная | компания Henry Schein NC0144682 | [Fisher Scientific] | Может быть заменена www.fishersci.com |
| Quatricide PV-15 | Фармацевтическое | противомикробное дезинфицирующее средство PV-15; может быть заменено www.pharmacal.com | |
| Маски для газовой анестезии крыс для стереотаксической хирургии | Stoelting Company | 51610 | www.stoeltingco.com |
| Rat Stereotaxic Apparatus with Ear Bars (45 градусов) | Любые | полоски под углом 45 градусов рекомендуются для предотвращения повреждения барабанных перепонок | |
| Roboz Surgical Instrument Milk | Roboz Surgical | NC9358575 [Fisher Scientific] | Может быть заменен; для смазки инструментов при автоклавировании www.fishersci.com |
| Триммер для волос грызунов | любой | ||
| хлорид натрия | Fisher | Scientific S641-500 [Fisher Scientific] | Для получения 0,9% физиологического раствора; реагентный сорт; USP www.fishersci.com |
| Микрошпатель из нержавеющей стали (лезвие: 0,75 л x 0,18 дюйма. W) | Fisher Scientific | 21-401-15 [Fisher Scientific]Может | быть заменено www.fishersci.com |
| Starrett Pin Vise, 0,000 дюйма - 0,055 в | любом | никелированном или эквивалентном, рекомендуемом для защиты от ржавчины и коррозии | |
| Стерильные хирургические перчатки | Любые | ||
| стерилизационные пленки, 20 дюймов x 20 дюймов, автоклавируемые | Propper Manufacturing | 11-890-8C [Fisher Scientific] | Полезно для упаковки автоклавируемых материалов и на стерильном поле во время операции www.fishersci.com |
| Хирургическая простыня, стерильная/автоклавируемая | Любая | может потребоваться обрезка по размеру для крыс | |
| Хирургический халат* | Любой*Если | маска IACUC | |
| Любые | |||
| туберкулиновые шприцы, стерильные, 1,0 мл | Любые | ||
| весы | Должны иметь хорошее разрешение (в граммовых единицах) | ||
| Название | Company | Номер в каталоге | Комментарии |
| Система и компоненты <сильного>мигающего мигания (при условии системы с 4 грызунами) | |||
| 5-канальный коммутатор x 4 | Plastics One, Inc. | SL2 + 3C | www.plastics1.com |
| Биполярный электродный кабель, двойной 305 x 4 | Plastics One, Inc. | 305-305 80CM TT2 (C) | Обеспечивает разъем для подключения биполярного электрода на крысе и к коммутатору; должен быть модифицирован www.plastics1.com |
| Кабель, 5 каналов, экранированный, 26 AWG x 4 | Любой Для | изготовления коллекторного кабеля; это должно быть изготовлено с нуля | |
| Камера для Оперантного Тестового Бокса (Внутри: 24 В x 23 Ш x 14 Г дюймов) x 4 | Med-Associates | Могут быть заменены; внутренние размеры должны удобно помещаться в оперантном тестовом боксе, с местом для акустической пены; подходить с вентилятором - 55-60 дБ www.med-associates.com | |
| Eyeblink Система и программное обеспечение | JSA Designs | N/A | Запатентовано и адаптировано для исследовательской лаборатории |
| Термоусадочная трубка (диаметр 3/16 дюйма, 1/4 дюйма, 3/8 дюйма, 1/2 дюйма) | Любой | Для защиты припаянных концов и сращивания модифицированного коллекторного кабеля | |
| Melamine Triple Peak Acoustical Foam с черным гипалоном (24 x 48 дюймов) | McMaster-Carr | 9162T5 | Может быть заменен; обрезано по размеру 4 камер корпуса www.mcmaster.com |
| Оперантный тестовый бокс (внешний 12,5 д x 10 Ш x 13,5 дюйма в В), полный x 4 | Med-Associates | ENV-007 Custom Package | С решетчатым полом из нержавеющей стали и нестандартным верхом (3 отверстия в центре для коммутаторного кабеля) www.med-associates.com |
| Осциллограф (опционально) | Любой | Рекомендуемые минимальные характеристики: аналоговая полоса пропускания 200 МГц, дискретизация в реальном времени 1 Гвыб/с, 4 канала; см. www.picotech.com /td> | |
| Пьезодинамики (динамики) x 4 (7 x 3 дюйма) | MCM Electronics | 53-805 | Должны соответствовать спецификациям частотного диапазона для системы с миганием глазом (2500 Гц - 25 кГц) www.mcmelectronics.com |
| Паяльная станция, припой, флюс, оловянка | любая | Для пайки кабелей 26 AWG к гнездам (к которым подходят штекерные контакты relia-tac) и биполярным штекерам | |
| Stimulus Isolators x 4 | WPI International | A365 | Эти блоки работают от щелочных батареек 16-9 В; доступна подходящая перезаряжаемая версия (A365R) www.wpiinc.com |
| Триполярный электродный кабель для коммутатора SL3C x 4 | Plastics One, Инк. | 335-335 80 см TT3 C | Обеспечивает заглушку для головки ЭМГ на крысе и коллектора; необходимо модифицировать www.plastics1.com |
| USB Светодиодные лампы x 4 | Любые | лампы на основе USB не вызывают электрического "шума" с помощью сигналов ЭМГ от крыс www.plastics1.com | |
| Webcams x 4, программы для видеонаблюдения | любой | ||
| ПК, компьютер под управлением ОС MS Windows | , любой |
Ссылки
- Jones, K. L., Smith, D. W. Recognition of the fetal alcohol syndrome in early infancy. Lancet. 2, 999-1001 (1973).
- Stratton, K. R., Howe, C. J., Battaglia, F. C. Fetal alcohol syndrome: Diagnosis, epidemiology, prevention, and treatment. , National Academy Press. (1996).
- Streissguth, A. P., Barr, H. M., Martin, D. C., Herman, C. S. Effects of maternal alcohol, nicotine, and caffeine use during pregnancy on infant mental and motor development at eight months. Alcohol Clin Exp Res. 4 (2), 152-164 (1980).
- Streissguth, A. P., O'Malley, K. Neuropsychiatric implications and long-term consequences of fetal alcohol spectrum disorders. Semin Clin Neuropsychiatry. 5 (3), 177-190 (2000).
- May, P. A., et al. Prevalence and epidemiologic characteristics of FASD from various research methods with an emphasis on recent in-school studies. Dev Disabil Res Rev. 15 (3), 176-192 (2009).
- Sowell, E. R., et al. Mapping callosal morphology and cognitive correlates: Effects of heavy prenatal alcohol exposure. Neurology. 57 (2), 235-244 (2001).
- Sowell, E. R., et al. Abnormal development of the cerebellar vermis in children prenatally exposed to alcohol: Size reduction in lobules I-V. Alcohol Clin Exp Res. 20 (1), 31-34 (1996).
- Autti-Ramo, I., et al. MRI findings in children with school problems who had been exposed prenatally to alcohol. Dev Med Child Neurol. 44 (2), 98-106 (2002).
- Hamilton, D. A., Kodituwakku, P., Sutherland, R. J., Savage, D. D. Children with Fetal Alcohol Syndrome are impaired at place learning but not cued-navigation in a virtual Morris water task. Behav Brain Res. 143 (1), 85-94 (2003).
- Uecker, A., Nadel, L. Spatial but not object memory impairments in children with fetal alcohol syndrome. Am J Ment Retard. 103 (1), 12-18 (1998).
- Uecker, A., Nadel, L. Spatial locations gone awry: object and spatial memory deficits in children with fetal alcohol syndrome. Neuropsychologia. 34 (3), 209-223 (1996).
- Goodlett, C. R., Lundahl, K. R. Temporal determinants of neonatal alcohol-induced cerebellar damage and motor performance deficits. Pharmacol Biochem Behav. 55 (4), 531-540 (1996).
- Goodlett, C. R., Kelly, S. J., West, J. R. Early postnatal alcohol exposure that produces high blood alcohol levels impairs development of spatial navigation learning. Psychobiol. 15, 64-74 (1987).
- Bayer, S. A., Altman, J., Russo, R. J., Zhang, X. Timetables of neurogenesis in the human brain based on experimentally determined patterns in the rat. Neurotoxicol. 14 (1), 83-144 (1993).
- Dobbing, J., Sands, J. Quantitative growth and development of human brain. Arch Dis Child. 48 (10), 757-767 (1973).
- West, J. R. Fetal alcohol-induced brain damage and the problem of determining temporal vulnerability: A review. Alcohol Drug Res. 7 (5-6), 423-441 (1987).
- Zecevic, N., Rakic, P. Differentiation of Purkinje cells and their relationship to other components of developing cerebellar cortex in man. J Comp Neurol. 167, 27-48 (1976).
- Rufer, E. S., et al. Adequacy of maternal iron status protects against behavioral, neuroanatomical, and growth deficits in fetal alcohol spectrum disorders. PLoS One. 7 (10), e47499(2012).
- Tran, T. D., Kelly, S. J. Critical periods for ethanol-induced cell loss in the hippocampal formation. Neurotoxicol Teratol. 25 (5), 519-528 (2003).
- Pierce, D. R., Goodlett, C. R., West, J. R. Differential neuronal loss following early postnatal alcohol exposure. Teratology. 40 (2), 113-126 (1989).
- Tran, T. D., Jackson, H. J., Horn, K. H., Goodlett, C. R. Vitamin E does not protect against neonatal ethanol-induced cerebellar damage or deficits in eyeblink classical conditioning in rats. Alcohol Clin Exp Res. 29 (1), 117-129 (2005).
- Goodlett, C. R., Peterson, S. D., Lundahl, K. R., Pearlman, A. D. Binge-like alcohol exposure of neonatal rats via intragastric intubation induces both Purkinje cell loss and cortical astrogliosis. Alcohol Clin Exp Res. 21 (6), 1010-1017 (1997).
- Green, J. T., Tran, T. D., Steinmetz, J. E., Goodlett, C. R. Neonatal ethanol produces cerebellar deep nuclear cell loss and correlated disruption of eyeblink conditioning in adult rats. Brain Res. 956, 302-311 (2002).
- Cronise, K., Marino, M. D., Tran, T. D., Kelly, S. J. Critical periods for the effects of alcohol exposure on learning in rats. Behav Neurosci. 115 (1), 138-145 (2001).
- Tran, T. D., Cronise, K., Marino, M. D., Jenkins, W. J., Kelly, S. J. Critical periods for the effects of alcohol exposure on brain weight, body weight, activity and investigation. Behav Brain Res. 116 (1), 99-110 (2000).
- Steinmetz, J. E. Brain substrates of classical eyeblink conditioning: A highly localized but also distributed system. Behav Brain Res. 110 (1-2), 13-24 (2000).
- Thompson, R. F. The neurobiology of learning and memory. Science. 233 (4767), 941-947 (1986).
- Ivkovich, D., Eckerman, C. O., Krasnegor, N. A., Stanton, M. E. Eyeblink classical conditioning: Vol. 1 Applications in humans. Woodruff-Pak, D. S., Steinmetz, J. E. , Kluwer Academic Publishers. 119-142 (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume I - Applications in humans. , Kluwer Academic Publishers. (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume II - Animal models. , Kluwer Academic Publishers. (2000).
- Kishimoto, Y., et al. Implicit Memory in Monkeys: Development of a Delay Eyeblink Conditioning System with Parallel Electromyographic and High-Speed Video Measurements. PLoS One. 10 (6), e0129828(2015).
- Chen, L., Bao, S., Lockard, J. M., Kim, J. K., Thompson, R. F. Impaired classical eyeblink conditioning in cerebellar-lesioned and Purkinje cell degeneration (pcd) mutant mice. J Neurosci. 16 (8), 2829-2838 (1996).
- Freeman, J. H. Jr, Carter, C. S., Stanton, M. E. Early cerebellar lesions impair eyeblink conditioning in developing rats: Differential effects of unilateral lesions on postnatal day 10 or 20. Behav Neurosci. 109 (5), 893-902 (1995).
- Gerwig, M., et al. Trace eyeblink conditioning in patients with cerebellar degeneration: Comparison of short and long trace intervals. Exp Brain Res. 187 (1), 85-96 (2008).
- LaBar, K. S., Disterhoft, J. F. Conditioning, awareness, and the hippocampus. Hippocampus. 8 (6), 620-626 (1998).
- McCormick, D. A., Steinmetz, J. E., Thompson, R. F. Lesions of the inferior olivary complex cause extinction of the classically conditioned eyeblink response. Brain Res. 359 (1-2), 120-130 (1985).
- Clark, R. E., Zola, S. Trace eyeblink classical conditioning in the monkey: a nonsurgical method and behavioral analysis. Behav Neurosci. 112 (5), 1062-1068 (1998).
- Anderson, B. J., Steinmetz, J. E. Cerebellar and brainstem circuits involved in classical eyeblink conditioning. Rev Neurosci. 5 (3), 251-273 (1994).
- Thompson, R. F., Krupa, D. J. Organization of memory traces in the mammalian brain. Annu Rev Neurosci. 17, 519-549 (1994).
- Miller, M. J., et al. fMRI of the conscious rabbit during unilateral classical eyeblink conditioning reveals bilateral cerebellar activation. J Neurosci. 23 (37), 11753-11758 (2003).
- Geinisman, Y., et al. Remodeling of hippocampal synapses after hippocampus-dependent associative learning. J Comp Neurol. 417 (1), 49-59 (2000).
- Ivkovich, D., Stanton, M. E. Effects of early hippocampal lesions on trace, delay, and long-delay eyeblink conditioning in developing rats. Neurobiol Learn Mem. 76 (3), 426-446 (2001).
- Moyer, J. R. Jr, Deyo, R. A., Disterhoft, J. F. Hippocampectomy disrupts trace eye-blink conditioning in rabbits. Behav Neurosci. 104 (2), 243-252 (1990).
- Solomon, P. R., Vander Schaaf, E. R., Thompson, R. F., Weisz, D. J. Hippocampus and trace conditioning of the rabbit's classically conditioned nictitating membrane response. Behav Neurosci. 100 (5), 729-744 (1986).
- Kronforst-Collins, M. A., Disterhoft, J. F. Lesions of the caudal area of rabbit medial prefrontal cortex impair trace eyeblink conditioning. Neurobiol Learn Mem. 69 (2), 147-162 (1998).
- Weible, A. P., McEchron, M. D., Disterhoft, J. F. Cortical involvement in acquisition and extinction of trace eyeblink conditioning. Behav Neurosci. 114 (6), 1058-1067 (2000).
- Thomas, J. D., Tran, T. D. Choline supplementation mitigates trace, but not delay, eyeblink conditioning deficits in rats exposed to alcohol during development. Hippocampus. 22 (3), 619-630 (2012).
- West, J. R., Hamre, K. M., Pierce, D. R. Delay in brain growth induced by alcohol in artificially reared rat pups. Alcohol. 1 (3), 213-222 (1984).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Christian, K. M., Thompson, R. F. Neural substrates of eyeblink conditioning: acquisition and retention. Learn Mem. 10 (6), 427-455 (2003).
- Kishimoto, Y., Nakazawa, K., Tonegawa, S., Kirino, Y., Kano, M. Hippocampal CA3 NMDA receptors are crucial for adaptive timing of trace eyeblink conditioned response. J Neurosci. 26 (5), 1562-1570 (2006).
- Shors, T. J., et al. Neurogenesis in the adult is involved in the formation of trace memories. Nature. 410 (6826), 372-376 (2001).
- Tran, T. D., Stanton, M. E., Goodlett, C. R. Binge-like ethanol exposure during the early postnatal period impairs eyeblink conditioning of short and long CS-US intervals in rats. Dev Psychobiol. 49 (6), 589-605 (2007).
- Mizumori, S. J., Yeshenko, O., Gill, K. M., Davis, D. M. Parallel processing across neural systems: Implications for a multiple memory system hypothesis. Neurobiol Learn Mem. 82 (3), 278-298 (2004).
- Siegel, J. J., et al. Trace Eyeblink Conditioning in Mice Is Dependent upon the Dorsal Medial Prefrontal Cortex, Cerebellum, and Amygdala: Behavioral Characterization and Functional Circuitry(1,2,3). eNeuro. 2 (4), (2015).
- Murawski, N. J., Jablonski, S. A., Brown, K. L., Stanton, M. E. Effects of neonatal alcohol dose and exposure window on long delay and trace eyeblink conditioning in juvenile rats. Behav Brain Res. 236 (1), 307-318 (2013).
- Lindquist, D. H. Hippocampal-dependent Pavlovian conditioning in adult rats exposed to binge-like doses of ethanol as neonates. Behav Brain Res. 242, 191-199 (2013).
- Ivarsson, M., Svensson, P. Conditioned eyeblink response consists of two distinct components. J Neurophysiol. 83 (2), 796-807 (2000).
- Woodruff-Pak, D. S., Lavond, D. G., Thompson, R. F. Trace conditioning: abolished by cerebellar nuclear lesions but not lateral cerebellar cortex aspirations. Brain Res. 348 (2), 249-260 (1985).
- Takehara-Nishiuchi, K. The Anatomy and Physiology of Eyeblink Classical Conditioning. Curr Top Behav Neurosci. , (2016).
- Mattson, S. N., Schoenfeld, A. M., Riley, E. P. Teratogenic effects of alcohol on brain and behavior. Alcohol Res Health. 25 (3), 185-191 (2001).
- Goodfellow, M. J., Abdulla, K. A., Lindquist, D. H. Neonatal Ethanol Exposure Impairs Trace Fear Conditioning and Alters NMDA Receptor Subunit Expression in Adult Male and Female Rats. Alcohol Clin Exp Res. 40 (2), 309-318 (2016).
- Beylin, A. V., et al. The role of the hippocampus in trace conditioning: Temporal discontinuity or task difficulty? Neurobiol Learn Mem. 76 (3), 447-461 (2001).
- Port, R. L., Romano, A. G., Steinmetz, J. E., Mikhail, A. A., Patterson, M. M. Retention and acquisition of classical trace conditioned responses by rabbits with hippocampal lesions. Behav Neurosci. 100 (5), 745-752 (1986).
- Weiss, C., Bouwmeester, H., Power, J. M., Disterhoft, J. F. Hippocampal lesions prevent trace eyeblink conditioning in the freely moving rat. Behav Brain Res. 99 (2), 123-132 (1999).
- Brown, S. M., et al. Eyeblink conditioning deficits indicate timing and cerebellar abnormalities in schizophrenia. Brain Cogn. 58 (1), 94-108 (2005).
- Sears, L. L., Steinmetz, J. E. Effects of haloperidol on sensory processing in the hippocampus during classical eyeblink conditioning. Psychopharmacology. 130 (3), 254-260 (1997).
- Kronforst-Collins, M. A., Moriearty, P. L., Schmidt, B., Disterhoft, J. F. Metrifonate improves associative learning and retention in aging rabbits. Behav Neurosci. 111 (5), 1031-1040 (1997).
- Woodruff-Pak, D. S., Finkbiner, R. G., Sasse, D. K. Eyeblink conditioning discriminates Alzheimer's patients from non-demented aged. Neuroreport. 1 (1), 45-48 (1990).
- Oristaglio, J., Romano, A. G., Harvey, J. A. Amphetamine influences conditioned response timing and laterality of anterior cingulate cortex activity during rabbit delay eyeblink conditioning. Neurobiol Learn Mem. 92 (1), 1-18 (2009).
- Scavio, M. J., Clift, P. S., Wills, J. C. Posttraining effects of amphetamine, chlorpromazine, ketamine, and scopolamine on the acquisition and extinction of the rabbit's conditioned nictitating membrane response. Behav Neurosci. 106 (6), 900-908 (1992).
- Fortier, C. B., et al. Delay discrimination and reversal eyeblink classical conditioning in abstinent chronic alcoholics. Neuropsychology. 22 (2), 196-208 (2008).
Перепечатки и разрешения
