Эта рукопись описывает использование генетически закодированный fluorogenic журналистам в приложении клеток для изучения ксенобиотик индуцированного окислительного стресса. Этот экспериментальный подход предлагает беспрецедентную пространственно-временных разрешение, чувствительность и специфичность избегая многих недостатков традиционных методов, используемых для обнаружения токсикологические оксидативного стресса.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Imaging подходы для оценки токсикологической оксидативного стресса, используя генетически закодированный Fluorogenic датчики
В этой статье
Краткое содержание
Аннотация
Окислительный стресс является механизм часто цитируется токсикологические, обычные методы для его изучения страдают от ряда недостатков, включая разрушение образца, введение возможных артефактов и отсутствие специфики для реактивной виды участвуют. Таким образом существует в области токсикологии текущего необходимость неразрушающего, чувствительной и конкретные методы, которые могут использоваться для наблюдения и количественно внутриклеточные окислительно-восстановительные возмущений, чаще называют оксидативного стресса. Здесь мы представляем метод для использования двух датчиков генетически закодированный fluorogenic, roGFP2 и HyPer, чтобы использоваться тепловизионные исследования клеток соблюдать ксенобиотик индуцированного окислительного ответы. roGFP2 уравновешивает с потенциальных редокс глутатион (GSHE), в то время как HyPer непосредственно обнаруживает перекиси водорода (H2O2). Оба датчика может быть выражено в различные типы клеток через трансфекции или трансдукции и могут быть предназначены для конкретных клеточных отсеков. Самое главное микроскопия живой клетки, используя эти датчики предлагает высоким пространственным и временным разрешением, это не возможно с использованием обычных методов. Изменения в интенсивности флуоресценции, мониторинг на 510 нм служит как индикация для обоих датчиков генетически закодированный fluorogenic когда последовательно возбуждается 404 Нм и 488 нм свет. Это свойство делает обоих датчиков ratiometric, устранение общих микроскопии артефакты и устранения различий в выражении датчика между ячейками. Эта методология может применяться в различных флуориметрический платформы способны захватывающие и собирая выбросов на установленных длин волн, что делает его пригодным для использования с конфокальный тепловизионных систем, обычных-поля микроскопии и пластины читатели. Оба датчика генетически закодированный fluorogenic были использованы в различных типах клеток и токсикологических исследований для мониторинга сотовых EГШ и H2O2 поколения в режиме реального времени. Здесь приводится стандартизированный метод, который широко адаптируемым различных типов клеток и флуориметрический платформ для применения roGFP2 и HyPer в токсикологические оценки клеток оксидативного стресса.
Введение
Термин «оксидативного стресса» часто приводится в качестве механизма в токсикологии, пока редко это термин описанные. Оксидативный стресс может ссылаться несколько внутриклеточных процессов, в том числе генерации активных форм кислорода, повреждения, вызванные свободными радикалами, окисления молекул антиоксидант, и даже активации конкретные сигнальные каскады. Широкий спектр экологических загрязнителей1,2 и3,фармацевтических агентов4 были задокументированы, чтобы вызвать оксидативного стресса, либо прямого действия комплекса ксенобиотиков, сам5 ,6 или вторично производство видов окислитель как часть клеточный ответ7,8,9,10. Именно поэтому большой интерес в токсикологии точно соблюдать и характеризуют окислительных процессов, ведущих к неблагоприятных исходов. Обычные методы измерения оксидативного стресса включают выявление окисленных биомолекул11,12,13,,1415 или антиоксидантов16 ,17,18,19,20, или прямого измерения реактивной видов, сами,21,,2223 24. Однако эти методы, как правило, требуют сотовой срыв, который часто использует образец, устраняет пространственное разрешение и потенциально представляет артефакты25. Развитие более чувствительной и конкретных методов для выявления видов окислителя и маркеры оксидативного стресса является широко применимо к расследованию неблагоприятных эффектов ксенобиотиков воздействия.
Микроскопия клеток, используя новое поколение генетически закодированный fluorogenic датчиков стала мощным инструментом для мониторинга внутриклеточные окислительно-восстановительного состояния живых клеток. Эти датчики обычно выражаются с помощью вектора под контролем промотора вирусных, который вводится через трансфекции или трансдукции методологий. Высокая экспрессия эффективность не являются необходимыми, поскольку клетки, выражая флуоресцентные датчик может быть легко идентифицированы визуально. Токсикологические оценки клетки, выражая эти датчики можно наблюдать с помощью микроскопии флуоресцирования, как они подвергаются воздействию ксенобиотиков соединений в реальном времени. Этот экспериментальный дизайн допускает повторные измерения в той же ячейке, позволяя каждой ячейки базовых показателей, установленных в качестве своего собственного управления. Высокая временное разрешение, обеспечиваемой клеток хорошо подходит для обнаружения окислительного события, особенно те, которые имеют скромные масштабы или переходный характер. Помимо чувствительных и конкретным для их молекулы-мишени, флуоресценции некоторых из этих датчиков может быть взволнован с помощью двух длин волн света. Это явление позволяет Флуоресцентные выбросов выражается как отношение, которое позволяет проницательность сигнал изменения, связанные с подлинными датчик ответов от тех, которые вызваны артефакты как вариации в датчик выражение, толщина клеток, лампа интенсивность, Фотообесцвечивание и чувствительности детектор флуоресценции26. Еще одним преимуществом использования датчиков fluorogenic является, что они могут быть предназначены для конкретных клеточных отсеков, создания уровня пространственного разрешения, которая имеет себе равных среди обычных методов25,,2627.
Большое семейство генетически закодированный датчики, основанные на Зеленый флуоресцентный белок (ГПУП) были разработаны и охарактеризовать доклад о широкий спектр физиологических маркеров, в том числе рН, температуры, концентрации кальция и соотношение АТФ/ADP25 ,-28,-29,-30,-31. Среди них включены датчики глутатион redox потенциал (EGSH) и пероксида водорода (H2O2). Хотя эти датчики были разработаны для применения в редокс биологии и физиологии, они также были адаптированы для изучения ксенобиотик индуцированного окислительного стресса. В частности Протокол, изложенные здесь описывает использование EGSH датчик roGFP2 и H2O2 датчика HyPer.
roGFP2 сообщает о redox потенциал внутриклеточного восстановленного и окисленного глутатиона (GSH/GSSG) через редокс реле, с участием глутатионпероксидазы (GPx) и glutaredoxin (Grx), глутатионредуктазы (гр) (рис. 1)25, 32 , 33. глутатион является преобладающим сотовой антиоксидантное молекулы и присутствует главным образом в сокращенной форме (GSH) в millimolar концентрациях в цитозоль25,34. В то время как EГШ не был связан с любых функциональных результатов, он признан важным показателем внутриклеточных окислительных статус34. Относительно небольшое увеличение концентрации GSSG приводит к увеличению числа EGSH , обнаруживаемых roGFP2. Не менее важно, мониторинг EGSH с помощью roGFP2 во время ксенобиотиков воздействия может потенциально выявить много о механизм действия в нескольких точках в редокс реле и связанные пути, такие как фосфат пентозы шунта (Рисунок 1 )35. Второй датчик, обсуждаемых здесь, HyPer, является внутриклеточным H2O2 зонд, производный от включения желтого флуоресцирующего белка (рекламы ЯФП) в область регулирования бактериальных H2O2-чувствительных транскрипции фактор OxyR136. Хотя ранее было сочтено повреждения реактивнооксигенных промежуточных, H2O2 все шире признается как важный внутриклеточных сигнальной молекулы при физиологических условиях37, 38, предполагая, что неизвестный роли для H2O2 существуют в токсикологии, а также. Например избыток H2O2 индуцированные ксенобиотиков воздействия может быть прекурсором для регуляции клеточной сигнализации или сдвиг в биоэнергетике.
Оба датчика генетически закодированный fluorogenic были выражены в нескольких установленных клеточные линии, включая линии человека плоскоклеточный рак клетки A431 и линии эпителиальных клеток человека бронхиальной Беас 2B, чтобы наблюдать изменения вГШ E и H2 O2 в ответ на различных токсикологических воздействий. К ним относятся газообразных загрязнителей (35озона), растворимых компонентов твердых частиц (1,2 нафтохиноновое39,40 и цинка41), и никель наночастиц (неопубликованные данные). Эти исследования представляют собой лишь небольшое подмножество возможных применений этих двух датчиков. Теоретически любой тип клеток, которое способно получать и выражая ДНК этих датчиков через обычные молекулярные методы биологии могут быть использованы для оценки последствий ксенобиотиков, предположительно изменить состояние клеточных окислительного. На сегодняшний день, один или более из этих датчиков была выражена в различных прокариот и эукариот, в том числе несколько млекопитающих, растений, бактериальных и дрожжевых клеток типы25,26,36,42. Индикация дляГШ E и H2O2 датчиков является изменение интенсивности флуоресценции излучается на 510 нм после возбуждения светом 488 и 404 Нм. Этот метод широко адаптируемым флуориметрический платформ, включая различные типы микроскопии (конфокальный и поля) и плиты читателей. Представленные здесь метод позволяет для чувствительной и конкретные наблюдения внутриклеточногоGSH E и H2O2 в vitro токсикологические систем.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
1. Подготовка клеток
Примечание: Эта процедура описывает лентивирусные трансдукции увековечен клеточной линии (Беас 2B; «««ATCC, Манасас, VA) выразить желаемого репортер (roGFP2 или HyPer). Другие клетки линии/типы или методы переноса генов, включая трансфекции, могут быть использованы до тех пор, как они приводят к уровня экспрессии репортер, достаточное для визуализации достаточное количество датчик выражая ячеек на поле зрения (обычно 5-10 клеток). Если с помощью методов трансфекции, процедура должна быть выполнена в блюдо, которое в конечном итоге будет использоваться для метода анализа (например, transfect клетки в же блюдо, которое будет представляться микроскопом). Для подготовки ячейки transductions в тарелку культуры клеток 6-ну подробно описанные ниже шаги. Если данный формат не соответствующий размер для требуемого приложения, может быть заменен другим судам.
- Рост клеток до приблизительно 40-60% слияния в нормальный рост средств массовой информации.
Примечание: Это исследование используются линии эпителиальных клеток человека бронхов, Беас 2B, выращенных в средний рост кератиноцитов (KGM). - Просто до трансдукции замените роста СМИ на клетки с 500 мкл сыворотки свободных СМИ, содержащий соответствующее количество вируса, рассчитывается по формуле:
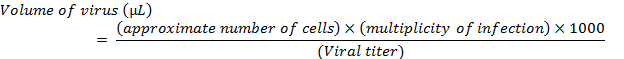
- Для трансдукции Беас 2B клеток используйте сыворотки бесплатно кератиноцитов базальной среднего (КБМ) для замены кгм роста СМИ во время вирусной инкубаций.
Примечание: Выше расчете предназначен для одного трансдукции одной скважиной клеток в формате 6-хорошо. При необходимости выполните transductions нескольких скважин могут быть выполнены путем корректировки формулы с умножения на количество скважин, чтобы быть преобразованы. Для лентивирусные transductions используйте разносторонность инфекции (МВД) между 5 и 20. Для аденовирусных transductions используйте MOI между 100 и 500.
- Для трансдукции Беас 2B клеток используйте сыворотки бесплатно кератиноцитов базальной среднего (КБМ) для замены кгм роста СМИ во время вирусной инкубаций.
- Инкубируйте клетки с вирусной смеси при 37 ° C для 4 h, распространение вирусных частиц в блюдо каждые 30-60 мин с кратким качалки или закрученного движения.
- Добавьте 1 mL полный рост СМИ на блюдо и инкубировать при 37 ° C для дополнительного 4-16 ч.
- Удалите все средства массовой информации и заменить свежим полный рост средств массовой информации.
- Продолжать расти и проход клетки, расширяются по мере необходимости.
Примечание: Клетки должны начать заметно выражая датчик в пределах 12-48 ч. Если лентивирусные вектор был использован для трансдукции, стабильной выражение желаемого датчика следует продолжать через проходы. - Для микроскопии на основе оценок клетки семян в стекло дном Микроскоп блюда и расти до желаемого места впадения (≥70 - 80%) до изображений.
Примечание: Заполнение плотность будет зависеть от размера блюдо, темпы роста клеток линии-используется и время оценки после посева. Например семя 300.000 Беас 2B клетки в 35-мм блюдо приносить примерно 70-80% слияния после 1 дня роста.
2. микроскопия Set-up
Примечание: Протокол, в описанный ниже выполняется с использованием Конфокальный микроскоп оснащен лазерной линии на 404 и 488 нм. Другие средства оценки флуориметрический датчиков, описанные в рамках настоящего Протокола в их предписанные возбуждений/выбросов следует также дают жизнеспособные данных. Важно отметить, что параметры оборудования может сильно варьироваться в зависимости от типа, возраста и состояния инструментом; Таким образом любой инструмент значения упомянутых могут быть специфическими для оборудования, используемого в других лабораториях.
- Выполнить анализ всех изображений с помощью экологического контроля для поддержания соответствующей температуры (например, 37 ° C), влажности (обычно > 95% относительная влажность), и/или газа концентрация (например, 5% CO2) подходит для клетки во всем продолжительность эксперимента.
- Если высокие значения относительной влажности, держать любой поверхности, которые могут соприкасаться с увлажненной атмосферы (например., цель микроскопа) или чуть выше температуры, при котором влажность генерируется для предотвращения конденсации. Это может быть достигнуто с использованием объективных нагревателя и/или Отопление ленты и соответствующие кработе.
- Включите все компоненты микроскопа и настроить все оборудование, необходимое для последовательного возбуждения 488 и 404 Нм с выбросов в 510 нм. Убедитесь, что все компоненты оптических конфигурации устанавливаются соответствующим образом для реального времени приобретения.
- Настройка этапа Топ климатическая камера для поддержания постоянной температуры при 37 ° C, 5% CO2 атмосферы, и > 95% влажности. Перед началом захвата изображений, сбалансировать экологические камеры для по крайней мере 10 мин после первоначальной настройки всех экологического контроля.
Примечание: Условия окружающей среды могут быть ликвидированы или скорректированы в зависимости от длины эксперимента, тип ячейки и воздействия используется. - Поместите блюдо клеток (шаг 1.7) на сцене топ в пределах экологических камеры.
- С желаемой объектива найдите фокальной плоскости клеток с помощью окуляра и белый свет и обеспечения нормальной морфологии.
Примечание: 1.4 NA 60 X фиолетовый исправлены, обычно используется масляный объектив, который позволяет идентифицировать внутриклеточных отсеков при максимальном оптическое разрешение confocal системы. - Проверьте в выражении флуоресценции клеток в поле зрения. Сделайте это во время визуализации клетки под широкий поле флуоресцентной подсветки с набором соответствующего фильтра, например флуоресцеин Изотиоцианаты (FITC). На данный момент используя освещение поля, хотя глядя через окуляр является более удобным, потому что это легче двигаться блюдо для выбора поля клеток для изучения. В общем выбирайте поле зрения, который содержит по крайней мере 5 до 10 клеток, которые выражают датчика, как указано в зеленой флуоресценцией.
- Кроме того, выполнение этой оценки, confocally с помощью лазерного возбуждения на длине волны наиболее совместим с датчиком выражаются (488 нм обычно работает лучше).
Примечание: Из-за их неотъемлемой флуоресцентные свойства, это будет более трудно визуализировать клетки, выражая HyPer чем те выражая roGFP2 с помощью либо FITC или на 488 нм. Однако все еще можно увидеть слабые клетки.
- Кроме того, выполнение этой оценки, confocally с помощью лазерного возбуждения на длине волны наиболее совместим с датчиком выражаются (488 нм обычно работает лучше).
- Найдя нужное поле зрения, закройте экологической палаты.
Примечание: Используйте функцию фокус поддержание, часто доступны на стендах передовых Микроскоп, чтобы облегчить поддержание стабильной фокальной плоскости всей учебы. - Настройка параметров получения для обеспечения оптимальной оценки датчика интерес через период желаемой экспозиции. Ниже приведены рекомендации и подходы для конфокальная томография датчик ответы:
- Отрегулируйте мощность лазера для возбуждения 488 нм и выбросов на 510 нм. Выберите уровень мощности лазера, который позволяет визуализировать клетки и держать это постоянная между образцы или реплицировать блюда.
Примечание: Для этого исследования, 12% и 1,5% лазерной энергии были использованы для лазерных линий 488 и 404 Нм соответственно. - Используйте конфокальный элементы управления приобретение программного обеспечения убедитесь, что выбранный фокальной плоскости был оптимизирован для максимальной флуоресценции интенсивности выбросов в центре клетки (ось z) путем сканирования на 488 Нм при регулировке плоскости z. Это стало проще с помощью параметра высокий коэффициент усиления при поиске в z самолет, который приводит к наиболее передержке клеток. Найдя соответствующий фокальной плоскости, вернуть параметр, который является наиболее оптимальным для флуоресценции репортер, используются без oversaturating пикселей наблюдается прирост.
Примечание: Лазер и получить настройки, которые подходят для поиска и наблюдения клеток во время экспериментов полностью зависит от конфокальной системы используются. В целом, после того, как клетки были найдены в поле зрения, рекомендуется, что минимальное количество мощности лазера будет использоваться (обычно ≤20%), как чрезмерное сканирование клеток с использованием мощного лазерного света может вызвать окислительных изменений поддающиеся обнаружению датчика. - Используйте выгоды для тонкой настройки базовых флуоресценции. С roGFP2 устанавливают базовые вблизи верхнего предела (≈ 90% относительная интенсивность) документа без перенасыщенности, как эти клетки будут терять 510 нм флуоресценции индуцированных 488 нм возбуждения, когда EGSH увеличивается. В отличие от интенсивности флуоресценции с 488 нм возбуждения должно быть низким (≈ 10% относительная интенсивность) в базовых для HyPer, выражая клетки, как эти клетки будут получить 510 нм интенсивности флуоресценции при обнаружении H2O2 .
- Повторите шаги 2.9.2 и 2.9.3 с возбуждением 404 Нм и выбросов на 510 нм. Получить параметры для волны возбуждения 404 Нм, напротив тех, которые используются с 488 нм возбуждения для каждого датчика (то есть, низкий базовый флуоресцирования (≈ 10% относительной интенсивности) на 404 Нм для roGFP2, высокой базовой флуоресцирования (≈ 90% относительная интенсивность) для2 H Датчик2 O).
Примечание: В общем, флюоресценция (510 выбросов) в 404 Нм возбуждения будет значительно ниже, чем, что доступная с 488 нм возбуждения в клетках выражения roGFP2 и HyPer, как 404 Нм пик является сравнительно незначительных возбуждения максимум для обоих из этих датчики.
- Отрегулируйте мощность лазера для возбуждения 488 нм и выбросов на 510 нм. Выберите уровень мощности лазера, который позволяет визуализировать клетки и держать это постоянная между образцы или реплицировать блюда.
3. сбор данных
- Настройка приобретение программного обеспечения для последовательного возбуждения двух длинах волн возбуждения (первый 488 нм, а затем 404 Нм) и собирать выбросов для обоих на 510 нм с интервалом заранее определенного времени всей нужной длины эксперимента (например захвата изображения каждые 60 s для 60 мин).
- Кроме того получить изображения вручную до и после воздействия если приблизительные сроки изменения вГШ E или H2O2 известны ксенобиотик тестируется. Однако это может привести к потере временного разрешения.
- Для реального времени оценки экспериментальных параметров выберите по крайней мере 5-10 датчик выражая клетки в поле и установить их как регионы интереса («трансформирования») для мониторинга их флуоресценции изменений во время эксперимента.
Примечание: Этот шаг является необязательным и может быть выполнено после эксперимента, если непосредственное наблюдение в режиме реального времени является нежелательным или ограничения программного обеспечения предотвратить непрерывный мониторинг. В зависимости от популяции клеток Выбор датчика, выражая клетки как ROIs могут представлять различные уровни выражения ячейках.- Для этих исследований добавьте экологических токсиканта 9,10-phenanthrenequinone (9,10-PQ) или перекисью водорода (H2O2) после 5-мин базового периода.
- Подготовьте все реагенты для последующего использования в настоящем Протоколе. Растворите 9,10-PQ в диметилсульфоксида (ДМСО) к концентрации 15 мм и развести в базальные СМИ для получения рабочего решения 250 мкм. Кроме того приготовьте рабочий раствор перекиси водорода в воде, что даст окончательный концентрации 1 мм после инъекции.
- После того, как были определены экспериментальные параметры, начните приобретение время курс. Создать базовый период по крайней мере 5 минут (или 5 точек данных) до начала ксенобиотиков воздействия.
- Разоблачить клетки токсикант изучаются с использованием обычных подходов в vitro дозирования. Подготовить растворимых соединений в воде или другим соответствующим растворителем и внедрить непосредственно в средствах массовой информации.
- Если требуются органические растворители (например, диметилсульфоксида или этанола), держите конечная концентрация растворителя на уровне или ниже 0,1%. Убедитесь, что растворитель не производит эффект наGSH E или H2O2 производства с элементом управления транспортного средства в отдельное блюдо клеток.
- Для соединений с нижней растворимость добавьте смешивания шаг с помощью микропипеткой к Протоколу после инъекции. Насос газообразных воздействия непосредственно в экологической камеру с помощью соответствующего перевозчика газовой смеси.
- Следить за изменениями в флуоресцировании во время периода воздействия. При необходимости выполните последующие инъекции. Взять большую осторожность, чтобы не переложить на блюдо во время инъекции, таким образом, чтобы на протяжении всего времени в то время как образы в одной фокальной плоскости следуют те же клетки.
- В конце эксперимента разоблачить клетки соответствующие элементы управления. Для обоих датчиков генетически закодированный fluorogenic добавьте конкретные концентрации соединений, известных окисляются и уменьшить эти датчики в остроконечное демонстрации их ratiometric способности. H2O2 и Дитиотреитол (DTT) служат соответствующие элементы управления для окисления и уменьшить обоих датчиков. Как правило конечная концентрация 100-1000 мкм H2O2, следуют 1-5 мм Дитиотреитол (DTT), позволяет пользователю полностью окисляется и уменьшить эти датчики.
- Для этих исследований используйте для определения реакции максимальная датчик 1 мм H2O2 следуют 5 мм DTT.
- Подождите, по крайней мере 5 минут чтобы датчик реагировать и затем вставляют восстанавливающего агента, например DTT, уменьшить Сеньор и вернуть его к уровню флуоресцирования на или вблизи его базовых показателей, установленных.
Примечание: Использование элементов управления в этот шаг имеет решающее значение для нормализации и должны быть выполнены в конце каждого эксперимента, чтобы определить динамический диапазон датчика в каждой ячейке. Для roGFP2 aldrithiol также могут быть добавлены в конце эксперимента. Aldrithiol обходит реле окислительно-восстановительные roGFP2 чтобы окислить датчик непосредственно. Это полезно для оценки функции датчика ксенобиотиков воздействия.
4. анализ данных
- Если еще не установлены, нарисуйте ROIs вокруг клетки, чтобы быть проанализированы. Используйте соответствующее программное обеспечение для измерения интенсивности флуоресценции каждой ROI на каждой длине волны на протяжении времени. Убедитесь, что клетки не двигаться или пластины не сделал сдвиг во время выполнения.
Примечание: Создание ROIs проще всего путем рисования закрытых региона, шаблону флуоресцентные выражение каждой ячейки. Для дальнейшего содействия этому процессу, передаваемого изображения света (или brightfield) клеток в пределах установленных поле зрения можно накладывается на флуоресцентные изображение в усилиях по определению границ ячейки. Однако использование передаваемого изображения света требует от пользователя для захвата дополнительный канал (набор изображений) в ходе эксперимента. Кроме того некоторые производители учитывали их изображений, которые используют конкретные параметры, такие как интенсивность порогов для установления ROIs в методе более количественный, менее субъективным, алгоритмы. - Экспортируйте данные в требуемый анализ программного обеспечения (например, электронные таблицы).
- Рассчитайте ratiometric датчик ответ для каждого ROI в каждый момент времени, с помощью формул:
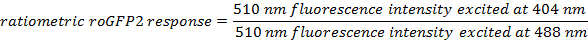
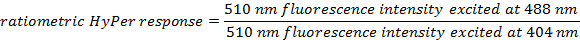
- Для каждой точки время средний расчетный ratiometric значения всех ROIs.
- Вычислить значение базового плана, который будет использоваться для нормализации данных, путем усреднения ранее рассчитанный ratiometric значения (шаг 4.4), собранные перед добавлением ксенобиотик (например, первые пять раз точек).
- Нормализует ratiometric значения из шага 4.4 путем деления каждого значения базовое значение рассчитывается в 4.5. Нормализованные показатели будут сосредоточены вокруг значение 1 в базовых, а увеличениеGSH E или H2O2 следующей инъекции вызовет соотношение для увеличения. Оценки ксенобиотик, которые вызывают оксидативный изменения, как правило, дают значения в диапазоне 3 - 6 раз базового значения.
- Для оказания помощи в сопоставлении ответов в рамках экспериментов и, Экспресс нормализованных данных в процентах от максимальной датчик ответ, определив ответ управления окислителей (например, 1 мм H2O2) как 100%.
Примечание: Если выражения данных в процентах от максимальной датчик ответ, важно, чтобы гарантировать что же концентрация управления окислителя используется последовательно через эксперименты. Все данные, полученные от анализа изображений жить клеток поддается обычным попарного и group-wise статистический анализ, чтобы быть выбраны по усмотрению следователя.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Использование roGFP2 и HyPer в обнаружение изменений в EГШ и внутриклеточных H2O2 был хорошо описано ранее25,36,,4243 и проявляется здесь. Конфокальный изображения клеток, выражая roGFP2 на базовые и следующее добавление H2O2 и DTT показаны на рисунке 2. Затем данные из изображе...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Использование roGFP2 и HyPer в обнаружение изменений в внутриклеточногоGSH E и H2O2, соответственно, была хорошо описана в предыдущем физиологические и токсикологические исследования 25,35,36 ,,3940,,4142,43. Протокол, изло...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Обзор национальных медицинских и экологических последствий научно-исследовательская лаборатория, агентство по охране окружающей среды США и утвержден для публикации исследований, описанных в этой статье. Содержание этой статьи не должно толковаться представлять политики Агентства, ни упоминание названия торговых или коммерческих продуктов является одобрение или рекомендация для использования.
Благодарности
Авторы хотели бы поблагодарить Кейтлин Lavrich за помощь в экспериментальный дизайн и редактирование рукописей.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| roGFP2 Плазмида | Университет Орегона | Н/А Щедрый | подарок С.Д. Ремингтона |
| HyPer Плазмида | Евроген | FP941 | |
| Перекись водорода | Сигма Олдрич | H1009 | |
| Дитиотреитол | Сигма Олдрич | 10708984001 | |
| 9,10-фенантренэкинон | Сигма Олдрич | 156507 | |
| черный Настенная посуда со стеклянным дном | Ted Pella | 14029-20 | |
| BEAS-2B клеточная линия | Американская коллекция типовых культур | CRL-9609 | |
| Кератиноцитарная базальная среда | Lonza | 192151 | |
| кератиноцитарная среда для роста BulletKit | Lonza 192060 | ||
| Excel | Microsoft Office Suite | N/A | |
| Программное обеспечение для создания изображений с дополненной реальностью | Nikon | N/A | |
| Система конфокальной визуализации Nikon C1si Система конфокальной визуализации | Nikon | N/A |
Ссылки
- Cross, C. E., et al. Environmental oxidant pollutant effects on biologic systems: a focus on micronutrient antioxidant-oxidant interactions. Am J Respir Crit Care Med. 166, 44-50 (2002).
- Kobzik, L. Environmental particulate-mediated cytokine production in lung epithelial cells (A549): role of preexisting inflammation and oxidant stress. J Toxicol Environ Health. 55, 31-44 (1998).
- Jaeschke, H., McGill, M. R., Ramachandran, A. Oxidant stress, mitochondria, and cell death mechanisms in drug-induced liver injury: lessons learned from acetaminophen hepatotoxicity. Drug Metab Reviews. 44, 88-106 (2012).
- Wolf, M. B., Baynes, J. W. The anti-cancer drug, doxorubicin, causes oxidant stress-induced endothelial dysfunction. Biochim Biophys Acta. 1760, 267-271 (2006).
- Kumagai, Y., Shinkai, Y., Miura, T., Cho, A. K. The chemical biology of naphthoquinones and its environmental implications. Annu Rev Pharmacol Toxicol. 52, 221-247 (2012).
- Pham, H. T., Maccarone, A. T., Campbell, J. L., Mitchell, T. W., Blanksby, S. J. Ozone-induced dissociation of conjugated lipids reveals significant reaction rate enhancements and characteristic odd-electron product ions. J Am Soc Mass Spectrom. 24, 286-296 (2013).
- Abdel-Malek, Z. A., Kadekaro, A. L., Swope, V. B. Stepping up melanocytes to the challenge of UV exposure. Pigment Cell Melanoma Res. 23, 171-186 (2010).
- Berisha, H., Pakbaz, H., Absood, A., Foda, H., Said, S. Nitric oxide mediates oxidant tissue injury caused by paraquat and xanthine oxidase. Ann N Y Acad Sci. 723, 422-425 (1994).
- Gao, X., et al. Mitochondrial dysfunction may explain the cardiomyopathy of chronic iron overload. Free Radic Bio Med. 49, 401-407 (2010).
- Shukla, A., et al. Asbestos induces mitochondrial DNA damage and dysfunction linked to the development of apoptosis. Am J Physiol Lung Cell Mol Physiol. 285, 1018-1025 (2003).
- Charles, R., Jayawardhana, T., Eaton, P. Gel-based methods in redox proteomics. Biochim Biophys Acta. 1840, 830-837 (2014).
- Thornalley, P. J., Rabbani, N. Detection of oxidized and glycated proteins in clinical samples using mass spectrometry-a user's perspective. Biochim Biophys Acta. 1840, 818-829 (2014).
- Arato, S., Ito, H., Miyashita, K., Hayakawa, K., Itabashi, Y. A facile method for the detection of aldehydes in oxidized lipids using solid-phase microextraction fiber and gas chromatograph equipped with a septum-free injector. J Oleo Sci. 58, 17-22 (2009).
- Collins, A. R. Measuring oxidative damage to DNA and its repair with the comet assay. Biochim Biophys Acta. 1840, 794-800 (2014).
- Churg, A., Keeling, B., Gilks, B., Porter, S., Olive, P. Rat mesothelial and tracheal epithelial cells show equal DNA sensitivity to hydrogen peroxide-induced oxidant injury. Am J Physiol Lung Cell Mol Physiol. 268, 832-838 (1995).
- Fraga, C. G., Oteiza, P. I., Galleano, M. In vitro measurements and interpretation of total antioxidant capacity. Biochim Biophys Acta. 1840, 931-934 (2014).
- Niki, E., Noguchi, N. Evaluation of antioxidant capacity: what capacity is being measured by which method. IUBMB Life. 50, 323-329 (2000).
- Pharikal, K., Das, P., Dey, C., Dasgupta, S. Tissue ascorbate as a metabolic marker in cadmium toxicity. Int J Vitam Nut Res. 58, 306-311 (1987).
- Tabata, M., Totani, M., Murachi, T. A chemiluminometric method for NADPH and NADH using a two-enzyme bioreactor and its application to the determination of magnesium in serum. Biomed Chrom. 4, 123-127 (1990).
- Ballatori, N., et al. Glutathione dysregulation and the etiology and progression of human diseases. Biol Chem. 390, 191-214 (2009).
- Nauseef, W. M. Detection of superoxide anion and hydrogen peroxide production by cellular NADPH oxidases. Biochim Biophys Acta. 1840, 757-767 (2014).
- Hawkins, C. L., Davies, M. J. Detection and characterisation of radicals in biological materials using EPR methodology. Biochim Biophys Acta. 1840, 708-721 (2014).
- Kettle, A. J., et al. Measuring chlorine bleach in biology and medicine. Biochim Biophys Acta. 1840, 781-793 (2014).
- Carballal, S., Bartesaghi, S., Radi, R. Kinetic and mechanistic considerations to assess the biological fate of peroxynitrite. Biochim Biophys Acta. 1840, 768-780 (2014).
- Meyer, A. J., Dick, T. P. Fluorescent protein-based redox probes. Antioxid Redox Signal. 13, 621-650 (2010).
- Dooley, C. T., et al. Imaging dynamic redox changes in mammalian cells with green fluorescent protein indicators. J Biol Chem. 279, 22284-22293 (2004).
- Malinouski, M., Zhou, Y., Belousov, V. V., Hatfield, D. L., Gladyshev, V. N. Hydrogen peroxide probes directed to different cellular compartments. PloS One. 6, 14564(2011).
- Guzman, J. N., et al. Oxidant stress evoked by pacemaking in dopaminergic neurons is attenuated by DJ-1. Nature. 468, 696-700 (2010).
- Breckwoldt, M. O., et al. Multiparametric optical analysis of mitochondrial redox signals during neuronal physiology and pathology in vivo. Nat Med. 20, 555-560 (2014).
- Wolf, A. M., Nishimaki, K., Kamimura, N., Ohta, S. Real-time monitoring of oxidative stress in live mouse skin. J Invest Dermatol. 134, 1701-1709 (2014).
- Mishina, N. M., et al. Does cellular hydrogen peroxide diffuse or act locally. Antioxid Redox Signal. , (2011).
- Gutscher, M., et al. Real-time imaging of the intracellular glutathione redox potential. Nat Methods. 5, 553-559 (2008).
- Lohman, J. R., Remington, S. J. Development of a family of redox-sensitive green fluorescent protein indicators for use in relatively oxidizing subcellular environments. Biochem. 47, 8678-8688 (2008).
- Schafer, F. Q., Buettner, G. R. Redox environment of the cell as viewed through the redox state of the glutathione disulfide/glutathione couple. Free Radic Bio Med. 30, 1191-1212 (2001).
- Gibbs-Flournoy, E. A., Simmons, S. O., Bromberg, P. A., Dick, T. P., Samet, J. M. Monitoring intracellular redox changes in ozone-exposed airway epithelial cells. Environ Health Perspect. 121, 312(2013).
- Belousov, V. V., et al. Genetically encoded fluorescent indicator for intracellular hydrogen peroxide. Nat Methods. 3, 281-286 (2006).
- Wood, Z. A., Poole, L. B., Karplus, P. A. Peroxiredoxin evolution and the regulation of hydrogen peroxide signaling. Science. 300, 650-653 (2003).
- Sies, H. Role of Metabolic H2O2 Generation REDOX SIGNALING AND OXIDATIVE STRESS. J Biol Chem. 289, 8735-8741 (2014).
- Cheng, W. -Y., et al. Linking oxidative events to inflammatory and adaptive gene expression induced by exposure to an organic particulate matter component. Environ Health Perspect. 120, 267(2012).
- Cheng, W. -Y., et al. An integrated imaging approach to the study of oxidative stress generation by mitochondrial dysfunction in living cells. Environ Health Perspect. , 902-908 (2010).
- Wages, P. A., et al. Role of H 2 O 2 in the oxidative effects of zinc exposure in human airway epithelial cells. Redox Biol. 3, 47-55 (2014).
- Morgan, B., Sobotta, M. C., Dick, T. P. Measuring E GSH and H2O2 with roGFP2-based redox probes. Free Radic Bio Med. 51, 1943-1951 (2011).
- Schwarzländer, M., Dick, T. P., Meyer, A. J., Morgan, B. Dissecting redox biology using fluorescent protein sensors. Antiox Redox Signal. 24, 680-712 (2016).
- Wang, L., Atkinson, R., Arey, J. Formation of 9, 10-phenanthrenequinone by atmospheric gas-phase reactions of phenanthrene. Atmos Environ. 41, 2025-2035 (2007).
- Tantama, M., Hung, Y. P., Yellen, G. Imaging intracellular pH in live cells with a genetically encoded red fluorescent protein sensor. J Am Chem Soc. 133, 10034-10037 (2011).
- Matlashov, M. E., et al. Fluorescent ratiometric pH indicator SypHer2: applications in neuroscience and regenerative biology. Biochim Biophys Acta. 1850, 2318-2328 (2015).
- Hou, J. -T., et al. A highly selective water-soluble optical probe for endogenous peroxynitrite. Chem Commun. 50, 9947-9950 (2014).
- Kojima, H., et al. Detection and imaging of nitric oxide with novel fluorescent indicators: diaminofluoresceins. Anal Chem. 70, 2446-2453 (1998).
- Gabe, Y., Ueno, T., Urano, Y., Kojima, H., Nagano, T. Tunable design strategy for fluorescence probes based on 4-substituted BODIPY chromophore: improvement of highly sensitive fluorescence probe for nitric oxide. Anal Bioanal Chem. 386, 621-626 (2006).
- Garner, A. L., et al. Specific fluorogenic probes for ozone in biological and atmospheric samples. Nat Chem. 1, 316-321 (2009).
- Cheng, W. -Y., Larson, J. M., Samet, J. M. Monitoring intracellular oxidative events using dynamic spectral unmixing microscopy. Methods. 66, 345-352 (2014).
- Wages, P. A., Cheng, W. -Y., Gibbs-Flournoy, E., Samet, J. M. Live-cell imaging approaches for the investigation of xenobiotic-induced oxidant stress. Biochim Biophys Acta. 1860, 2802-2815 (2016).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
