Здесь мы описываем протокол для получения липидного капель индекс (LD) для изучения динамики триацилглицеролов в клетки культивировали в высок объём экспериментов. Assay индекс LD-это простой и надежный метод, который использует BODIPY 493/503. Этот assay не нужно dispendious экстракции липидов или анализа в микроскопии.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Определение липидов индекс путем восстановления жидкого флуоресценции в грибкового патогена Пузырчатая Maydis
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
В статье показано как реализовать пробирного LD индекс, который является чувствительной Гонав пробирного определить накопление триацилглицеролов (Теги) в капельках липидов (LDs). LD индекс получается без экстракции липидов. Это позволяет измерения содержания LDs в высок объём экспериментов в различных условиях, таких как рост в богатых или азота в исчерпаны средства массовой информации. Хотя этот метод был описан в первый раз для изучения капелька метаболизма липидов в Saccharomyces cerevisiae, он был успешно применен к базидиомицета пузырчатая maydis. Интересно и потому, что LDs являются органеллы, филогенетически сохраняется в эукариотических клетках, метод может быть применен к большое количество клеток, от дрожжевых клеток млекопитающих. LD индекс основан на пробу восстановления жидкого флуоресценции (LFR) BODIPY 493/503 тушения условиях путем добавления ячеек фиксированной с формальдегидом. Калий йод используется как флуоресценции утоления. Соотношение между флуоресценции и склонах оптической плотности называется LD индекс. Склоны вычисляются из прямых линий, полученных при BODIPY флуоресценции и оптическая плотность 600 Нм (600OD) заговор против добавления образца. Оптимального качества отражается коэффициенты корреляции равной или выше 0,9 (r ≥ 0.9). Несколько образцов можно читать одновременно, как он может быть реализован в микроплиты. Поскольку BODIPY 493/503 липофильных флуоресцентных красителей что разделы в капелек липидов, она может использоваться во многих типах клеток, которые аккумулируют LDs.
Введение
Липидного капель (LDs) являются повсеместно внутриклеточного жира тела состоит из ядра нейтральные липиды, главным образом Теги и эфиры стеринов (SE). Ядро окружен монослоя фосфолипидов, который взаимодействует с белками, как perilipin и ферментов, участвующих в синтезе нейтральные липиды, например диацилглицерол ацил трансферазы, ацетил-КоА carboxylase и дефицит ацил CoA синтазы1. Из-за его динамическое поведение фосфолипидный монослоя также содержит триацилглицеринов липазы которые гидролизуют Теги и SE2. В зависимости от типа клеток и организм хранимые нейтральные липиды могут использоваться для получения энергии, или синтезировать фосфолипидов и сигнальных молекул. Дрожжи и другие грибки, содержание LDs изменения в ответ на изменения в коэффициент азота/углерода в культуре средств массовой информации, указав, что наличие снижение азота может быть ключом к увеличению липидный нейтральными производства3,4 ,5. Производство большое количество тегов в дрожжи имеет потенциального использования в биотехнологии как источника биотоплива и в пищевой промышленности. Некоторые хранимые липиды содержат высокие пропорции полиненасыщенных жирных кислот, как Омега 3 и Омега 6, с питания и диетических значение 6,,78,9,10 , 11. LDs mammalian клеток, включая клетки человека, также содержат теги и эфиры холестерина. Фосфолипидный монослоя взаимодействует с млекопитающих гомологичных белков, описанных в дрожжи LDs и с дополнительного белка, perilipin, который отсутствует в S. cerevisiae12. Один предложил, что роль для его связанного белков и фосфолипидов монослоя стабилизации структуры LDs и разрешить взаимодействие LDs с органеллы митохондрии, эндоплазматический ретикулум, пероксисомы и вакуоли, главным образом для липидного обмена 13,14. Интересно, что в организме человека, LDs, как представляется, быть вовлечены в патологии как тип 2 диабета, атеросклероза, стеатогепатит и ишемической болезни сердца, в котором есть увеличение их числа в 15,16,17 . Некоторые типы вирусов использовать LDs как платформы для сборки вирионы 2,18,19.
Из-за последствий LDs в человеческой патологии и их потенциального использования биотехнологических точного экспериментального определения формирования LDs является важной задачей. Эта статья описывает надежного анализа на основе восстановления флюоресценция (LFR) BODIPY 493/503 (4, 4-difluoro-1, 3, 5, 7, 8-pentamethyl-4-бора 3А, 4а диазафенантрена s-indacene), чтобы получить значение относительного содержания нейтральные липиды в клетках. С этот assay можно проследить динамику накопления нейтральные липиды в грибы как U. maydis и S. cerevisiae, а также в клетках млекопитающих, без необходимости извлечения липидов в 20. Метод был применен для в первый раз в S. cerevisiae для идентификации белковых фосфатаз и киназы, участвующих в регуляции жирового обмена. Это стало возможным без экстракции липидов и белков очистки21,22. LFR также использовался для создания динамики формирования LDs в перитонеальных макрофагов23. Использование BODIPY 493/503 имеет некоторые преимущества над другими красителями нейтральных липидов как красный Нила. BODIPY 493/503 весьма специфичен для нейтральные липиды и имеет узкий спектр излучения, облегчения одновременного обнаружения сигналов от краски как красный флуоресцирующий белок или Mito трекер, когда анализируются образцы confocal микроскопии. К сожалению BODIPY 493/503 чувствителен к Фотообесцвечивание, но этот процесс можно избежать с помощью antiquenching реагента при воздействии света24.
Для проведения пробирного LFR в дрожжевых клеток, они культивировали в желаемый питания условиях, и аликвоты снимаются в разное время. Далее клетки фиксируются с формальдегидом, который сохраняет целостность LDs для месяцев, когда клетки хранятся при 4 ° C. Другие методы фиксации следует избегать, особенно те, с использованием метанола или холодной ацетона, поскольку они ведут к деградации LDs внутри клетки24. Для измерения индекса LD, формальдегида Исправлена клетки подвешены в воде для получения определенной концентрации. Затем они добавляются в раствор, содержащий Флюорофор BODIPY 493/503 закаленном KI, и когда Флюорофор входит в ячейку и связывает с LDs, является восстановление ее флуоресценции. Сопутствующих измерений флуоресценции (485 Нм/510 нм), концентрация клеток количественно измеряя оптическую плотность 600 Нм. Каждый образец читается в четыре раза, добавив последующие 5 мкл аликвоты формальдегида Исправлена клеток подвески к тому же хорошо. Бланки флуоресценции и поглощения приобретаются перед добавлением клеток. Качество флуоресценции и поглощения данные оцениваются путем определения линейность измерений: если r < 0.9, данные отбрасываются. Значение r имеет важное значение, потому что в основном интенсивность флуоресценции должен производить линейным откликом на увеличение концентрации клеток. Если клетки концентрация слишком высока, линейность теряется. LFR assay обеспечивает быстрый, простой и экономичный метод для выбора желаемого фенотип LD в высок объём экспериментов. После выбора желаемых условий, LD содержание отдельных ячеек может быть изучен конфокальная микроскопия, используя те же формальдегида Исправлена клетки окрашивали BODIPY, обеспечивая образ LDs в ячейке. Теги и их SE содержания могут теперь далее анализироваться хромотографией тонким слоем.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
1. Подготовка буферов и решения
- Подготовить 1 Л фосфата буфер солевой раствор (PBS, pH 7), растворяют 8 г NaCl, 0,2 г KCl, 1,44 г Na2HPO4, 0,24 г х2PO4 800 мл дистиллированной воды. Отрегулируйте пэ-аш до 7.0 с HCl, а затем добавьте воды для окончательного объемом 1 л PBS могут быть сделаны как 10 x Стоковый раствор и хранятся при комнатной температуре.
- Подготовить 10 мл фиксации решение, добавьте 1 mL 37% формальдегида в 9 мл PBS до конечной концентрации 3,7%. Готовить это решение непосредственно перед использованием.
Предупреждение: Используйте перчатки для обработки раствора формальдегида. - Подготовить закалки раствор (500 мм), растворяют 8.3 g ки в 100 мл дистиллированной воды. Готовить это решение перед использованием и хранить его при комнатной температуре.
- Подготовить раствор BODIPY 10 мм, Растворите 10 мг BODIPY 493/503 3.8 мл диметилсульфоксида (ДМСО). Держите 100 мкл аликвоты в темноте-70 ° c.
- Подготовить BODIPY 5 мкм тушение раствора, 1 мкл 10 мм BODIPY мл 493/503 до 2 500 мм, закалки решения. Для assay НОСЛЛ конечная концентрация 5 мкм BODIPY не требуется.
- Для подготовки минеральных решение, добавьте 0,06 g H3Бо3, 0,14 г НКД2-4 H2O, 0,4 г ZnCl2, 0,04 г Na2MoO4-2 H2O, 0,1 г FeCl3-6 H2O и 0,4 г CuSO 4-5 H2O в 1 Л дистиллированной воды.
- Подготовить раствор соли, добавьте 16 g KH2PO4, 4 g Na2,4, 8 г хлористого калия, 2 г MgSO4, 1 g CaCl2и 8 мл раствора минеральных в 1 Л дистиллированной воды.
- Подготовить минимальный средний без источника азота для U. maydis FB2 (a2b2), добавить в 1 Л дистиллированной воды, 10 г глюкозы и 62,5 мл солевого раствора согласно Холлидей, et al. 31. Отрегулируйте пэ-аш до 7.0 и затем распределять 100 мл СМИ в 250 мл флакон и стерилизовать их. Автоклав для 20 мин при давлении 15 psi (1,05 кг/см2) на жидком цикла или фильтр стерилизовать.
- Чтобы подготовить дрожжи Пептон Декстроза среднего (YPD), добавьте 5 г дрожжей экстракт, 2.5 g Пептон, и 5 г глюкозы в 1 Л дистиллированной воды. Отказаться от 100 мл раствора в 250 мл флакон и стерилизовать их. Автоклав для 20 мин при давлении 15 psi (1,05 кг/см2) на жидком цикла или фильтр стерилизовать.
2. Культура состояния и фиксации ячейки
Примечание: Сохранить структуру LDs, фиксируя клетки как можно скорее. Фиксация может быть сделано в microcentrifuge трубы. Фиксированные клетки могут храниться при температуре 4 ° C до одного месяца, если избежать обезвоживания оставляя тонкий слой воды.
- Растут U. maydis клетки в условиях культуры соответствующие исследования. Запустите культуры с первоначального ОД600 0,05 (1,15 × 10⁶ клеток / мл). Инкубируйте клетки на 28 ° C, 180 об/мин за 24 ч. ОД600 1 соответствует 2,37 × 10 клеток / мл.
- В выбранной раз, снять Алиготе клеток. Для U. maydis, снять 5 мл каждые 2 ч в течение первых 8 ч. После 8 h роста аликвоты 2 мл достаточны.
- Измеряют оптическую плотность на 600 Нм каждого Алиготе.
- Центрифуга суспензию клеток в 14.000 x g 1 мин на 4 ° C, с помощью настольной центрифуги. Выбросите супернатант.
- Приостановите Пелле клеток в 1 мл буфера PBS-формальдегид 3,7%. Инкубируйте клетки для 15 мин при комнатной температуре.
- После инкубации центрифуга суспензию клеток в 14.000 x г за 1 мин при 4 ° C. Выбросите супернатант.
- Помойте лепешка клетки дважды с же объем дистиллированной воды (1 мл). Центрифуга суспензию клеток в 14.000 x г за 1 мин при 4 ° C. Выбросите надосадке после каждой стирки шага.
- Отрегулируйте Пелле ячейки до 5 ОД600 (1.15 x 10⁸ клеток / мл) с дистиллированной воды (уравнение 1).
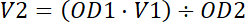 Уравнение 1.
- Держите образца при температуре 4 ° C до его использования.
3. Жидкие флуоресценции восстановления Assay (LFR)
- Включите спектрофотометра и откройте программное обеспечение Skanlt. Нажмите на новой сессиии выберите Пуск , а затем Varioskan Lux. Выберите протокол из дерева сессии, введите параметры для флуоресценции длин волн (возбуждения 485 Нм/выбросов 510 нм; оптическая плотность 600 Нм) и выбрать автоматическое фотоэлектронный умножитель выгоды. Для возбуждения пропускной способности, выберите 12 Нм. В оптике, выбрать лучшие (возбуждения образца-от верхней части колодца).
- Введите нежный и непрерывное агитации (300 об/мин). Выберите запустить пластиныи Пауза до действий пользователя (время используется для добавления образца к скважинам). Повторите пять раз протокол. Нажмите кнопку сохранить и записать имя для сессии в Поле имя сеанса. Протокол теперь готов для анализа проб.
- Добавьте 200 мкл BODIPY 5 мкм - закалка решение каждой скважины 96 хорошо черно снимите нижнюю крышку.
- Поместите пластины в камере спектрофотометром и инкубировать 5 мин при 30 ° C. С этого момента защищают пластину от света как можно больше.
- Нажмите кнопку Пуск и читать флюоресценция (возбуждения 485/выбросов 510) и ОД600 соответствующие пробелы.
- Добавьте 5 мкл суспензии клеток формальдегида Исправлена скважин во время паузы. Тщательно перемешать образцы с пипеткой. Положите пластину внутри спектрофотометра и нажмите кнопку продолжить. Затем образцы будут обрабатываться согласно протокол, разработанный выше.
- Повторите три последовательных добавлений 5 мкл суспензии клеток. Убедитесь, что клетки не осадок. (Рис. 1).
4. Расчет индекса LD
- Для каждого образца в микроплиты график флуоресценции и поглощения против объем каждого последовательных сложения (5 очков, включая пустые). В этом исследовании использование программного обеспечения Microsoft Excel для вычислений. Печать данных, введите объем, флуоресценции и оптической плотности данных в первой, второй и третьей колонках таблицы, соответственно. Затем, выберите все данные с помощью курсора, нажмите кнопку Вставить и выберите ТОЧЕЧНАЯ (XY).
- Выберите точки для каждой строки в графе и вставьте соответствующие Линии ТРЕНДА с флажок Показать уравнение . Запишите значения на склонах двух прямых линий, согласно уравнению 2:
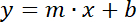 Уравнение 2
Где y = флуоресценции или оптической плотности, x = объем образца (0, 5, 10, 15, 20 мкл), m = наклон флуоресценции или линии оптической плотности, и b = y пересечение. - Разделите наклон линии флуоресценции, наклон линии оптической плотности для получения индекса LD, уравнение 3.
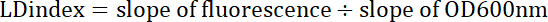 Уравнение 3
LD индекс соответствует частное флуоресценции и оптической плотности трасс.
5. качество анализ данных
- Вычислить коэффициент корреляции каждой прямой линии: нажмите на Мастера функции (fx) и выберите КОРРЕЛ. Если r < 0.9, отменить данные и повторите чтения. Если r ≥ 0.9, показания являются надежными.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
НОСЛЛ, с BODIPY 493/503 как флуоресцентный зонд является надежной и простой метод для изучения динамических накопление LDs в U. maydis, независимо от условий роста. Когда клетки были культивировали в YPD-средний, было увеличение индекса LD на этапе экспоненциального последующим снижением в стационарной фазе (рисунок 2A). В противоположность этому в клетках, выращенных под азота голод, был неуклонный рост индекса LD поэтапно как экспоненциальная и ста...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
LFR это новый метод, который был применен в первый раз для изучения жирового обмена в S. cerevisiae и позднее было успешно реализовано в U. maydis20,21. Хотя индекс LD не абсолютное значение тэгов, накапливается в клетках, он обеспечивает быстрый идея содержания липидов клеток, и интерпретация данных проста при сравнении LD индекс из двух или более экспериментальных условиях. BODIPY 493/503 весьма специфичен для нейтральные липиды, основной комп...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы не имеют ничего раскрытие
Благодарности
Эта работа была поддержана от грантов Instituto Nacional-Secretaria политехнического де инвестигасьон и Posgrado (IPN-SIP-20170864), Programa de Apoyo де инвестигасьон Proyectos e Innovación Tecnológica (PAPIIT IN222117)-(Universidad Nacional Autónoma de México ЮНАМ) и Consejo Nacional de науки y Tecnología (КОНАСИТ 254904-JPP и 256520-GGS). Фонд-де-ампаро Pesquisa делать Рио-де-Жанейро (FAPERJ-Cientistas делать Nosso Estado: E 26/103.353/2011). Мы благодаря QFB. Оскар Иван Лукеньо Bocardo Схематический обзор. Мы благодарим д-р Мигель Родригес Тапиа за ценную помощь в конфокальной микроскопии LDs. Мы хотели бы поблагодарить д-р Бруно Bozaquel Morais за его новаторскую работу по разработке технику в S. cerevisiae , что мы адаптировали для U. maydis.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Спектрофотометр | Varioskan Lux многомодовый микропланшет | reade D5879 | Filter 493/503 или монохроматор |
| детектора Plate costar | Corning Inc. | 3615 | 96 луночный планшет с черными стенками/прозрачным дном |
| costar | Corning Inc | 3598 | 96 луночный планшет для культивирования клеток |
| costar BODIPY 493/503 | Invitrogen/ Thermofisher | D3922 | 4,4-дифтор-1,3,5,7,8-пентаметил-4-бора-3a,4a-диаза-s-индацен |
| Раствор формальдегида | Sigma Aldrich | 252549 | реагент ACS, 37 мас.% в H2O, содержит 10-15% метанола для предотвращения полимеризации |
| Йодид калия | Sigma Aldrich | 60399 | BioUltra, ≥ 99,5% (AT) |
| FB2 Ustilago maydis | ATCC | 201384 | Базидиомицет-дрожжи Хлорид |
| натрия | Sigma Aldrich | 746398 | реагент ACS, неорганическая соль |
| Фосфат калия одноосновной | Sigma Aldrich | P0662 | ACS реактив |
| Select Экстракт дрожжей | Sigma Aldrich | Y100 | Смесь аминовых кислот, пептидов, водорастворимых, витаминов и углеводов для питательных сред |
| N-Z case plus | Sigma aldrich | N4642 | Казеиновый ферментативный гидролизат из коровьего молока |
| Глюкоза | Sigma Aldrich | G-8270 | D (+) глюкоза |
| Skaker колба | Pirex | CLS4450250-6EA | Borosiicate glass |
| Shaker | SEV Mé xico | INO650V-7 | Орбитальный шейкер |
| Стол для центрифуги | Eppendorf | 5415C | Центрифуга |
| Микропробирки | Sigma Aldrich | Z606340 | Eppendorf |
| Наконечники для пипеток | Axygen Scientific | T-200-Y | Универсальные наконечники для пипеток со скошенным концом, 200 мкл, нестерильная |
| пипетка mLine | Biohit | 725130 | 8 каналов, диапазон объема 5-100 мкл |
Ссылки
- Guo, Y., Cordes, K. R., Farese, R. V., Walther, T. C. Lipid droplets at a glance. Journal of Cell Science. 122 (6), 749-752 (2009).
- Welte, M. A. Expanding roles for lipid droplets. Current Biology. 25 (11), R470-R481 (2015).
- Sestric, R., Munch, G., Cicek, N., Sparling, R., Levin, D. B. Growth and neutral lipid synthesis by Yarrowia lipolytica on various carbon substrates under nutrient-sufficient and nutrient-limited conditions. Bioresource Technology. 164, 41-46 (2014).
- Raimondi, S., et al. Getting lipids from glycerol: new perspectives on biotechnological exploitation of Candida freyschussii. Microbial Cell Factories. 13, 83(2014).
- Cescut, J., Fillaudeau, L., Molina-Jouve, C., Uribelarrea, J. L. Carbon accumulation in Rhodotorula glutinis induced by nitrogen limitation. Biotechnology for Biofuels. 7, 164(2014).
- Galafassi, S., et al. Lipid production for second generation biodiesel by the oleaginous yeast Rhodotorula graminis. Bioresource Technology. 111, 398-403 (2012).
- Kot, A. M., Blazejak, S., Kurcz, A., Gientka, I., Kieliszek, M. Rhodotorula glutinis-potential source of lipids, carotenoids, and enzymes for use in industries. Applied Microbiology and Biotechnology. 100 (14), 6103-6117 (2016).
- Rakicka, M., Lazar, Z., Dulermo, T., Fickers, P., Nicaud, J. M. Lipid production by the oleaginous yeast Yarrowia lipolytica using industrial by-products under different culture conditions. Biotechnology for Biofuels. 8, (2015).
- Zhu, Z. W., et al. Dynamics of the Lipid Droplet Proteome of the Oleaginous Yeast Rhodosporidium toruloides. Eukaryotic Cell. 14 (3), 252-264 (2015).
- Kolouchova, I., Mat'atkova, O., Sigler, K., Masak, J., Rezanka, T. Production of Palmitoleic and Linoleic Acid in Oleaginous and Nonoleaginous Yeast Biomass. International Journal of Analytical Chemistry. , (2016).
- Radulovic, M., et al. The emergence of lipid droplets in yeast: current status and experimental approaches. Current Genetics. 59 (4), 231-242 (2013).
- Takahashi, Y., et al. Perilipin-Mediated Lipid Droplet Formation in Adipocytes Promotes Sterol Regulatory Element-Binding Protein-1 Processing and Triacylglyceride Accumulation. Plos One. 8 (5), e64605(2013).
- Thiam, A. R., Farese Jr, R. V., Walther, T. C. The biophysics and cell biology of lipid droplets. Nature Reviews Molecular Cell Biology. 14 (12), 775-786 (2013).
- Penno, A., Hackenbroich, G., Thiele, C. Phospholipids and lipid droplets. Biochimica et Biophysica Acta. 1831 (3), 589-594 (2013).
- Ageitos, J. M., Vallejo, J. A., Veiga-Crespo, P., Villa, T. G. Oily yeasts as oleaginous cell factories. Applied Microbiology and Biotechnology. 90 (4), 1219-1227 (2011).
- Athenstaedt, K., Daum, G. The life cycle of neutral lipids: synthesis, storage and degradation. Cellular and Molecular Life Sciences. 63 (12), 1355-1369 (2006).
- Marshall, L. L., Stimpson, S. E., Hyland, R., Coorssen, J. R., Myers, S. J. Increased lipid droplet accumulation associated with a peripheral sensory neuropathy. Journal of Biological Chemistry. 7 (2), 67-76 (2014).
- Filipe, A., McLauchlan, J. Hepatitis C virus and lipid droplets: finding a niche. Trends in Molecular Medicine. 21 (1), 34-42 (2015).
- Greenberg, A. S., et al. The role of lipid droplets in metabolic disease in rodents and humans. Journal of Clinical Investigation. 121 (6), 2102-2110 (2011).
- Aguilar, L. R., et al. Lipid droplets accumulation and other biochemical changes induced in the fungal pathogen Ustilago maydis under nitrogen-starvation. Archives of Microbiology. , (2017).
- Bozaquel-Morais, B. L., Madeira, J. B., Maya-Monteiro, C. M., Masuda, C. A., Montero-Lomeli, M. A new fluorescence-based method identifies protein phosphatases regulating lipid droplet metabolism. PLoS One. 5 (10), e13692(2010).
- Madeira, J. B., et al. TORC1 Inhibition Induces Lipid Droplet Replenishment in Yeast. Molecular and Cellular Biology. 35 (4), 737-746 (2015).
- Maya-Monteiro, C. M., et al. Leptin induces macrophage lipid body formation by a phosphatidylinositol 3-kinase- and mammalian target of rapamycin-dependent mechanism. Journal of Biological Chemistry. 283 (4), 2203-2210 (2008).
- Listenberger, L. L., Brown, D. A. Current Protocols in Cell Biology. , John Wiley & Sons, Inc. (2001).
- Jump, D. B., Torres-Gonzalez, M., Olson, L. K. Soraphen A, an inhibitor of acetyl CoA carboxylase activity, interferes with fatty acid elongation. Biochemical Pharmacology. 81 (5), 649-660 (2011).
- Hobro, A. J., Smith, N. I. An evaluation of fixation methods: Spatial and compositional cellular changes observed by Raman imaging. Vibrational Spectroscopy. 91, 31-45 (2017).
- Chen, Y. T., Wan, L., Zhang, D. P., Bian, Y. Z., Jiang, J. Z. Modulation of the spectroscopic property of Bodipy derivates through tuning the molecular configuration. Photochemical & Photobiological Sciences. 10 (6), 1030-1038 (2011).
- Pagac, M., et al. SEIPIN Regulates Lipid Droplet Expansion and Adipocyte Development by Modulating the Activity of Glycerol-3-phosphate Acyltransferase. Cell Reports. 17 (6), 1546-1559 (2016).
- Qiu, B., Simon, M. C. BODIPY 493/503 Staining of Neutral Lipid Droplets for Microscopy and Quantification by Flow Cytometry. Bio-protocol. 6 (17), (2016).
- Rumin, J., et al. The use of fluorescent Nile red and BODIPY for lipid measurement in microalgae. Biotechnology for Biofuels. 8, 42(2015).
- Holliday, R. Ustilago maydis. Handbook of genetics. King, R. , Plenum. New York. 575-595 (1974).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
