Представлен протокол для оценки эффективности ингибирования химических соединений против интраклеточного роста Toxoplasma gondii с использованием анализа роста на основе люциферазы. Метод используется для подтверждения специфики ингибирования путем генетического удаления соответствующего гена-мишени. В качестве примера оценивается ингибирование LHVS против протеазы TgCPL.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Определение эффективности химического ингибитора против внутриклеточного токсоплазмы Gondii Рост С помощью Люциферазы основе анализ роста
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Toxoplasma gondii является протозоанным патогеном, который широко влияет на популяцию человека. Текущие антибиотики, используемые для лечения клинического токсоплазмоза ограничены. Кроме того, они проявляют неблагоприятные побочные эффекты в определенных группах людей. Поэтому, открытие новых терапевтических препаратов для клинического токсоплазмоза является обязательным. Первым шагом развития новых антибиотиков является выявление химических соединений, показывающих высокую эффективность ингибирования роста паразитов с использованием высокой пропускной технологии стратегии скрининга. Как обязывательный внутриклеточный патоген, Токсоплазма может размножаться только в клетках-хозяинах, что запрещает использование оптических измерений абсорбции в качестве быстрого индикатора роста. Представлено здесь подробный протокол для luciferase основе роста асссе. В качестве примера, этот метод используется для расчета удвоения времени дикого типа паразитов токсоплазмы и измерения эффективности морфолинурея-лейцил-гомофенил-виниловый суфолфена фенил (LHVS, цистеин протеазы ориентации соединения) в отношении ингибирования паразита внутриклеточного роста. Также описан протокол удаления генов на основе CRISPR-Cas9 в Токсоплазме с использованием гомологических областей 50 bp для гомологически-зависимой рекомбинации (HDR). Путем количественной оценки эффективности ингибирования LHVS в диком типе и TgCPL (Токсоплазма катепсин L-как протеазы)-дефицитных паразитов, показано, что LHVS ингибирует рост паразитов дикого типа более эффективно, чем рост CPL, предполагая, что TgCPL является целью, что LHVS связывается с в Токсоплазма Высокая чувствительность и легкая работа этого анализа роста на основе люциферазы делают его пригодным для мониторинга пролиферации токсоплазмы и оценки эффективности препарата в высокой пропускной форме.
Введение
Toxoplasma gondii является весьма успешным обликирующим внутриклеточным паразитом, который поражает примерно треть населения человека. Его высокая скорость передачи в основном объясняется его разнообразными путями передачи, включая потребление недоваренного мяса, воздействие млекопитающих и врожденную передачу во время родов. T. gondii в основном вызывает оппортунистические инфекции, которые могут привести к тяжелой заболеваемости и смертности у лиц с ослабленным иммунитетом1,,2,,3,,4,,5,6. Антибиотики в настоящее время используется для лечения острого токсоплазмоза особенно неэффективны в лечении врожденных и скрытых инфекций и вызвать тяжелые реакции у некоторых людей3,7,8. Таким образом, существует настоятельная необходимость в выявлении новых терапевтических препаратов. Понимание различий в подклеточных процессах в токсоплазме и ее хозяине поможет определить потенциальные цели препарата. Поэтому для изучения роли отдельных генов в токсоплазменеобходимы эффективные и удобные методы манипуляции геномом. Кроме того, Toxoplasma относится к phylum Apicomplexa, которая включает в себя несколько других значительных человеческих патогенов, таких как Plasmodium spp. и Cryptosporidium spp. Таким образом, токсоплазма может быть использована в качестве модели организма, чтобы помочь изучить основные биологии в других паразитов apicomplexan.
Для выявления новых антибиотиков против микробных патогенов, высокая пропускная мощность скрининга библиотеки химических соединений первоначально проводится для определения их эффективности в подавлении роста микробов. До сих пор, несколько микроплит на основе роста анализы были разработаны для измерения внутриклеточного роста Т. gondii (т.е., радиоактивные 3H-uracil инкорпорации на основе количественной количественной ELISA основе обнаружения паразитов с использованием T. gondii-специфическиеантитела10,11, репортер белка на основе измерения с использованием й-galactosidase или YFP-выражения Токсоплазма штаммов12,13, и недавно разработанный высокосодержание изображения анализа14).9
Все эти индивидуальные стратегии имеют уникальные преимущества; однако некоторые ограничения также ограничивают их применение. Например, поскольку токсоплазма может размножаться только в нуклеарных клетках животных, аутофлуоресценция и неспецифические связыванияанти-T. gondii антител к клеткам-хозяинам вызывают вмешательство в измерения на основе флуоресценции. Кроме того, использование радиоактивных изотопов требует особого соблюдения требований безопасности и потенциальных проблем безопасности. Некоторые из этих анализов больше подходят для оценки роста в один момент, а не для непрерывного мониторинга роста.
Здесь представлен люциферазена основе протокола для количественной оценки внутриклеточного роста токсоплазмы. В предыдущем исследовании, NanoLuc luciferase ген был клонирован под toxoplasma тубулина промоутер, и это luciferase экспрессии построить был трансфицирован в дикий тип (RH'ku80ххг штамма) паразитов для создания RHq ku80хххгг::NLuc штамма (именуемый RH'ku80::NLuc далее.15 Этот штамм служил родительским штаммом для внутриклеточного определения роста и удаления генов в этом исследовании. Использование RH qku80::Штамм NLuc, рост паразитов в крайней плоти человека фибробластов (HFFs) был проконтролирован в течение 96 ч период после инфекции для расчета паразита удвоение времени.
Кроме того, эффективность ингибирования LHVS против роста паразитов может быть определена путем построения темпов роста токсоплазмы против последовательных концентраций LHVS для определения значения IC50. Предыдущая литература сообщила, что TgCPL является основной мишенью LHVS у паразитов и что лечение LHVS снижает развитие острых и хронических инфекций токсоплазмы 16,17,18,19. Кроме того, RH'ku80::NLuc был использован в качестве родительского штамма для модификации генома для создания штамма TgCPL-дефицит (RH'ku80qcpl::NLuc), и торможение LHVS был измерен против этого мутанта. Наблюдая upshift ic50 значения для LHVS в TgCPL-дефицитныхпаразитов по сравнению с штаммом WT, было подтверждено, что TgCPL является мишенью LHVS in vivo.
В этом протоколе, RH'ku80::NLuc используется в качестве родительского штамма, который не имеет эффективного негомологического конца присоединения пути (NHEJ), тем самым облегчая двойной кроссовер гомологически химологии-зависимой рекомбинации (HDR)20,21. Кроме того, 50 bp гомологичные области фланговые на обоих концах лекарственной устойчивости кассеты ПЦР. Продукт PCR служит шаблоном ремонта для удаления всего генного локуса через HDR с помощью инструментов редактирования генома на основе CRISPR-Cas9. Такие короткие гомологичные области могут быть легко включены в грунтовки, обеспечивая удобную стратегию для производства шаблона ремонта. Этот протокол может быть изменен для выполнения универсального удаления генов и эндогенных генов пометки.
Например, в нашей последней публикации, три гена протеазы, TgCPL, TgCPB (Токсоплазма катепсин B-как протеазы), и TgSUB1 (Токсоплазма субтилизин-как протеазы 1), были генетически ablated в TgCRT (Токсоплазма хлорокина-резистентность транспортер)15 Кроме того, TgAMN (побудительная аминопептидаза N «TgAMN, TGGT1_221310») был эндогенно помечен15. Лаборатория Лууридо также сообщила об использовании коротких гомологичных областей в диапазоне 40-43 bp для введения направляемой на сайт генной мутации и эндогенного гена, пометки в геноме Токсоплазмы с помощью аналогичного метода22. Эти успешные изменения генома предполагают, что 40-50 bp гомологичная область достаточна для эффективной рекомбинации ДНК в TgKU80-дефицитный штамм, который значительно упрощает манипуляции генома в Toxoplasma gondii.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Toxoplasma gondii отнесена к группе риска 2 и должна быть обработана на уровне биобезопасности 2 (BSL-2). Протокол был рассмотрен и одобрен Институциональным комитетом по биобезопасности при Университете Клемсона.
1. Люцифераза основе токсоплазмы роста анализ
- Семена человека крайней плоти фибробластов (HFFs) за неделю до прививки паразита, чтобы убедиться, что клетки-хозяина полностью сливается. Выполните макет асссе в прозрачной пластине, чтобы убедиться, что паразиты остаются внутриклеточными в течение всего периода оценки.
ПРИМЕЧАНИЕ: Здесь анализ проводится в 96 скважинах. В соответствии с экспериментальными потребностями, его можно масштабировать до 384 или 1536 скважин микроплит. - Передайте паразитов токсоплазмы в сливочные HFF за 2 дня до использования, переведя 0,3-0,4 мл полностью лисизированных паразитов в колбу T25. Инкубировать инфицированные клетки-хозяина при 37 градусах Цельсия с 5% CO2 в течение 2 дней.
- Шприц 5 мл свежевылитных паразитов через 21 G безопасности иглы 5x освободить внутриклеточных паразитов, а затем пройти через фильтр 3 мкм для удаления мусора клетки-хозяина. Промыть остаточных паразитов из колбы с помощью 7 мл фенола красно-свободного D10 среды, а затем пройти через фильтр снова.
- Центрифуга паразитов при 1000 х г в течение 10 мин при комнатной температуре (RT). Налейте супернатант и resuspend гранулы в 10 мл фенола красно-свободного D10 средств массовой информации.
- Считайте паразитов с помощью гемоцитометра, чтобы определить концентрацию.
- Разбавить паразитов до 1 х 104 паразитов / мл для дикого типа (WT) штамма. Для роста дефицитных штаммов паразитов, увеличить концентрацию соответственно наблюдать значительное увеличение сигналов люциферазы.
- Тщательно аспирировать средства массовой информации из 96 скважин микроплиты предварительно посеяны с HFFs и привить 150 л паразита повторного в скважины в формате из трех столбцов и пяти строк, что представляет собой три технических репликации и пять тайм-пойнтов.
- Инкубировать микроплиту при 37 градусах Цельсия и 5% CO2 на 4 ч.
- Тщательно аспирировать средства массовой информации из скважин, чтобы удалить невторгленных паразитов, а затем заполнить колодцы с RT фенол красно-свободных средств массовой информации в каждом ряду (за исключением первого ряда).
- Смешайте равные объемы PBS и 2x люциферазы ассеации буфера и разбавить субстрата люциферазы до 12,5 мкм.
- Добавьте 100 л разбавленного субстрата люциферазы в каждую скважину верхнего ряда. Инкубировать микроплиты на RT в течение 10 минут, чтобы позволить клеткам полностью лизировать.
- Измерьте активность люциферазы с помощью микроплитного считывателя. Настройки чтения пластин перечислены в таблице 1. Каждое чтение представляет собой первоначальное число вторгшихся паразитов на 4 ч после инфекции.
- Повторите шаги 1.9-1.12 для каждого ряда каждые 24 ч в течение 4 дней без изменения среды. Эти показания отражают общее количество реплицированных паразитов на уровне 24 ч, 48 ч, 72 ч и 96 ч после инфицирования.
- Рассчитайте средние показания в каждой точке времени и разделите их на средние показания на 4 ч, чтобы определить изменения в развратных изменениях роста паразитов с течением времени.
- Участок данных с помощью графического программного обеспечения. Представитель роста таблицы чтения и сюжеты RH'ku80::NLuc паразитов показаны на рисунке 1A,B.
- Чтобы вычислить время удвоения, начастоте значения log2 изменения склада в отдельных временных точках во время инкубации. Используйте функцию линейной регрессии для расчета наклона, который представляет собой удвоение времени каждого штамма(рисунок 1A,C).
2. Оценка эффективности ингибирования химических соединений против роста токсоплазмы
ПРИМЕЧАНИЕ: Здесь, оценка ингибирования LHVS в росте Токсоплазмы представлена в качестве примера. Восемь различных концентраций LHVS проверяются, и три технических репликации выполняются для каждого из трех биологических репликации для обоих RH'ku80::NLuc и RH'ku80qpl::NLuc штаммов.
- До паразита инфекции, семена HFFs до 96 хорошо микроплиты в формате трех строк и девять столбцов для одной биологической репликации на соединение на штамм. Клетки-хозяина будут расти, по крайней мере, за 7 дней до использования.
- Передайте RH'ku80::NLuc иRH'ku80qcpl::NLuc паразитов в течение 2 дней до использования. Выполните шаги 1.2-1.6 для очистки и количественной оценки паразитов. Resuspend паразитов в фенол красно-свободных средств массовой информации на 1 х 104 паразитов / мл.
- Аспирировать средства массовой информации из пластины, содержащей сопливые HFFs и привить каждый колодец с 150 Зл паразитов повторной. Инкубировать микроплиту при 37 градусах Цельсия и 5% CO2 на 4 ч.
- Подготовка LHVS в восьми различных концентрациях в 12 скважин резервуара последовательного разбавления. Как правило, концентрации уменьшаются в три раза в последовательном способе разбавления.
ПРИМЕЧАНИЕ: Самая низкая концентрация уменьшается в 6561 раз по отношению к самой высокой концентрации. Изменение разбавления может быть скорректировано соответствующим образом на основе различных свойств отдельных соединений. - На 4 ч после инфекции, аспирных средств массовой информации для удаления не вторгшихся паразитов и заполнить каждый колодец из столбцов 2-9 с 150 зЛ средств массовой информации дополняется LHVS в различных концентрациях. Оставьте первую колонку, заполненную обычной средой, в качестве необработанного элемента управления.
- Инкубировать микроплиту при 37 градусах Цельсия и 5% CO2 еще на 96 ч.
- Выполните шаги 1.9-1.11 и измерьте активность люциферазы отдельных скважин.
- Среднее деятельность люциферазы трех технических репликаций из скважин каждой отдельной концентрации LHVS.
- Разделите среднюю активность люциферазы для каждой концентрации LHVS на среднюю активность люциферазы, полученную от необработанных паразитов, чтобы вычислить нормализованную активность люциферазы в процентах.
- Участок нормализованной деятельности люциферазы против отдельных концентраций LHVS с помощью программного обеспечения для графиков(рисунок 2). Ингибирование пириметамина против роста паразитов также измеряется как контроль. Пириметамин является клиническим антибиотиком, используемым для лечения острого токсоплазмоза путем ингибирования метаболизма фолиевой кислоты в токсоплазме.
- Рассчитайте значения IC50 для отдельных соединений, используя встроенный метод в графирующем программном обеспечении, нормализованную реакцию против «ингибитора» в рамках программы регрессии «доза-ответ-ингибирование». IC50 рассчитывается по следующей формуле:
Y 100/(1 й X/IC50)
Где: Y представляет собой нормализованную деятельность инфицированных клеток при различных концентрациях ингибитора, а X представляет индивидуальные концентрации ингибитора.
3. Удаление гена на основе CRISPR-Cas9 у паразитов токсоплазмы
- Поколение плазмидной конструкции, выражающей направляющую РНК (sgRNA) и Cas9 для удалять интересующий ген
- Перейти к www.ToxoDB.org и получить всю последовательность кодирования генов, в том числе интроны и экзоны, а также 1,5 кб 5'-UTRs и 3'-UTRs (непереведенные регионы).
ПРИМЕЧАНИЕ: Здесь TgCPL (TGGT1_321530) является репрезентативным примером. - Копируйте полученную последовательность TgCPL в программное обеспечение анализа последовательности (обратитесь к таблице материалов для названия и версии) и пометьте 5'- и 3'UTR регионов.
- Выберите значок «Инструменты» в верхнем баре меню, а затем выберите Клонирование Найти сайты CRISPR.
- Выберите 3'(Cas9) для расположения сайта PAM и выберите папку, содержащую последовательность генома Toxoplasma в разделе оценки специфичности. Оставьте остальные настройки по умолчанию.
- Выберите sgRNA со следующими двумя критериями: 1) показывая высокий балл специфичности, как правило, йgt;98%, и 2) не хватает G после NGG, протосказер смежных мотив (PAM) последовательность. Выбранный sgRNA обычно расположен на участках близко к старту и останавливает codons гена интереса.
- Копируйте последовательность выбранной sgRNA и вставьте ее в следующий шаблон грунтовки.

Часть в красном цвете представляет выбранную последовательность TgCPL sgRNA. Его можно заменить различными sgRNA для различных генов, представляющих интерес.
ПРИМЕЧАНИЕ: Если выбранная sgRNA не начинается с G, добавьте G в начале sgRNA, чтобы помочь улучшить его выражение. - Выполните пЦР реакции, чтобы изменить уже существующие плазмиды выражения sgRNA (Рисунок 3A), что цели Toxoplasma uracil фосфорозилтрансферазы (TgUPRT) ген23 с помощью пЦР-премикс с настройками, предусмотренными в таблице 2.
- Запустите продукт ПЦР на геле агарозы, чтобы подтвердить успешное усиление. Ожидается, что продукт ПЦР 10 кб будет усилен(рисунок 3B).
- Извлеките продукт PCR используя набор экстракции геля дна и циркулировать его используя набор mutagenesis site-направленного. Обратитесь к таблице 3 для рецепта. Инкубировать реакцию в течение 10-20 мин на RT.
- Преобразуйте циркулярный продукт ПЦР в кишечную палочку и выберите 10 клонов для дальнейшей проверки включения разработанной сгРНК.
- Вырастить два клона и извлечь плазмиды. Вырезать очищенные плазмиды с BamHI и EcoRV. Кандидат плазмиды даст две полосы на 2,4 кб и 7,2 кб(рисунок 3C).
- Отправить плазмиды для секвенирования Сэнгер с помощью M13 обратных грунтовки, чтобы подтвердить успешную замену TgUPRT sgRNA с разработанs sgRNA (Рисунок 3D).
- Перейти к www.ToxoDB.org и получить всю последовательность кодирования генов, в том числе интроны и экзоны, а также 1,5 кб 5'-UTRs и 3'-UTRs (непереведенные регионы).
- Поколение шаблона ремонта для удаления генов с помощью механизма HDR
- Согласно сайтам таргетинга выбранной sgRNA, найдите 50 bp 5'-UTRs или 3'-UTRs целевого гена для гомологически-зависимой рекомбинации (HDR, см. раздел обсуждения). Выбор регионов соответствует критериям, перечисленным ниже, в зависимости от местоположения целей sgRNA.
- Если место расщепления Cas9 расположено вверх по течению от начала кодона, выберите следующее: последовательность ДНК 50 bp вверх по течению от места расщепления в качестве левой области HDR, и 50 bp последовательность ДНК вниз по течению от стоп-кодона как правой области HDR.
- Если место расщепления Cas9 находится между стартом и остановкой кодонов, выберите следующее: 50 bp последовательность ДНК вверх по течению от стартового кодона как левой области HDR, и 50 bp последовательность ДНК вниз по течению от остановки кодон как правая область HDR.
- Если место расщепления Cas9 расположено вниз по течению от остановки Кодон, выберите следующее: 50 bp последовательность ДНК вверх по течению от стартового кодона как левой области HDR, и 50 bp последовательность ДНК вниз по течению от места расщепления, как правая область HDR.
ПРИМЕЧАНИЕ: Для гена TgCPL, место расщепления расположено между стартом и стоп-кодонами. Таким образом, следующие праймеры предназначены для усиления шаблона ремонта с помощью pMDC64 в качестве шаблона, который кодирует кассету сопротивления пириметамина. Последовательности в черном anneal к pMDC64 плазмида для усиления ПЦР. Области, помеченные красным цветом, являются TgCPL-специфическимипоследовательностями для гомологичных рекомбинаций.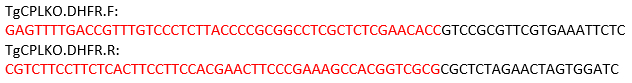
- Выполните ПЦР с помощью пЦР-премикса в условиях ПЦР, описанных в таблице 4.
- Запустите продукт ПЦР на геле агарозы(Рисунок 3E), а затем гель экстракции и стандартные процедуры количественной оценки нуклеиновой кислоты.
ПРИМЕЧАНИЕ: Если ожидаемая полоса не может быть успешно усилена, оптимизируйте условия ПЦР и/или переключите пары грунтовки.
- Согласно сайтам таргетинга выбранной sgRNA, найдите 50 bp 5'-UTRs или 3'-UTRs целевого гена для гомологически-зависимой рекомбинации (HDR, см. раздел обсуждения). Выбор регионов соответствует критериям, перечисленным ниже, в зависимости от местоположения целей sgRNA.
- Трансфекция токсоплазмы
- Передайте RH'ku80::NLuc паразитов в течение 2 дней в T25 колбу, содержащую сопливые HFFs. Колба T25 полностью лисизированных паразитов достаточна для двух-трех трансфекций.
- Шприц и фильтр-очистите паразитов, как описано в шаге 1.2. Resuspend паразитов в буфере cytomix и спина вниз на 1000 х г в течение 10 минут на RT.
- Вымойте гранулированных паразитов с 10 мл буфера цитомикс и спина вниз паразитов на 1000 х г в течение 10 минут на RT.
- Тщательно слить супернатант и resuspend паразитов в том же буфере в концентрации 1 х 108 паразитов / мл.
- Смешайте 2 мкг днк шаблона ремонта с 20 мкг плазмид с выражением sgRNA/Cas9 (массовое соотношение 1:5, эквивалентно соотношению 1:3 моляров). Если выход усиления шаблона ремонта низок, уменьшите вход обеих частей дна соответственно. Можно использовать как минимум 0,5 мкг шаблона ремонта.
- Смешайте 400 л повторений паразитов, ДНК и 5 л 200 мМ АТФ/500 мМ, уменьшенного глутатиона (ГСГ) в 1,5 мл центрифуги. При необходимости доведите общий объем до 500 кЛ с буфером цитомикса.
- Перенесите смесь паразитов и ДНК в электропорацию cuvette (ширина зазора 4 мм) и выполняйте электропорацию (напряжение 2 кВ, сопротивление 50 кВ) с помощью электропорационного аппарата.
- Передача электропорированных паразитов в колбу T25, содержащую сопливые HFF в свежей среде D10. Применить соответствующий антибиотик для выбора препарата после 24 ч.
- Держите препарат селективное давление до тех пор, пока рост трансгенных паразитов не будет стабильным.
- Очистите геномную ДНК от нокаут населения и проверить на интеграцию пылики сопротивления пириметамина в локус TgCPL пЦР. После проверки перейдите в раздел 3.4. Если нет, выполните еще один раунд трансфекции паразитов и отбора лекарств. Неспособность обнаружить правильную интеграцию кассеты лекарственной устойчивости обычно свидетельствует о том, что ген-мишень необходим или что генная локус недоступна.
- Клонирование тунеядцев нокаута
- Семя два 96 хорошо микроплиты с Клетками HFF и инкубировать на 37 КС и 5% CO2 в течение 1 недели до клонирования паразитов.
- Передайте 0,3-0,4 мл популяции трансгенных паразитов в колбу T25, содержащую сольятся ГФФ, и выращивайте их в течение 2 дней. Рассмотрим передачу больше паразитов, если мутант показывает дефекты роста.
ПРИМЕЧАНИЕ: Для достижения наилучшей урожайности и жизнеспособности клетки-хозяина сильно инфицированы паразитами, и большинство паразитов находятся во внутриклеточной стадии. - Шприц инфицированных клеток-хозяев и фильтр-очистите свежевылищых паразитов, как упоминалось в шаге 1.3. Resuspend паразитов в D10 среды и спина их вниз на 1000 х г в течение 10 минут на RT.
- Приостановите пеллетные паразиты в 10 мл среды D10.
- Подсчитайте паразитов с помощью гемоцитометра для определения концентрации паразитов.
- Проведите двухступенчатое разбавление, чтобы довести концентрацию до 10 паразитов/мл в среде D10, дополненной соответствующим антибиотиком. Как правило, первоначальная повторная подвеска паразита разбавляется в 1000 раз, а затем второй разбавления до 10 паразитов / мл.
- Аспирные носители из 96 хорошо микроплит, содержащих сольятся HFFs и прививать 150 л разбавленных паразитов в каждой скважине.
- Инкубировать пластины при 37 градусах Цельсия с 5% CO2 в течение 7 дней без помех, чтобы налет образования. Инкубационный период может быть более длительным, если трансгенные паразиты проявляют дефекты роста.
- Экран пластин с помощью фазово-контрастного микроскопа и пометить только колодцы, содержащие один налет.
- Выполните колонии ПЦР для выявления правильных клонов.
- Используйте пипетки советы, чтобы очистить дно каждой скважины, чтобы поднять инфицированных монослой Овф.
- Пипетка 75 л повторений клеток от каждого отмечены хорошо в 1,5 мл микроцентрифуговых труб.
- Центрифуги трубки в течение 10 минут на максимальной скорости на RT. Тщательно аспирируйте супернатант и resuspend гранулы в 10,25 л люсиса буфера, содержащего буфер разбавления и ДНК релиз добавки, предусмотренные в комплекте (Таблица материалов).
- Инкубировать образцы в течение 4 мин на RT, затем 2 мин при 98 градусах По Цельсию. После этого образцы можно использовать для ПЦР или хранить при -20 градусов до использования. Три набора реакций ПЦР используются для тестирования на интеграцию кассеты лекарственной устойчивости и потери гена интереса(рисунок 4A). Обратитесь к таблице 5 для установки реакции ПЦР и таблице 6 для настроек термоциклора.
- Определите правильные клоны и перенесите четыре клона в фляги T25, содержащие сопредельные HFF.
- После того, как отдельные клоны лиза ютяни клетки, очистить геномную ДНК для дальнейшей проверки ПЦР.
- Если антитела признавая белок интерес доступен, следуйте стандартной процедуре иммуноблтинга, чтобы проверить потерю целевого белка в правильной токсоплазмы нокаутов. Репрезентативные изображения для скрининга мутанта TgCPL-удаленияотображаются на рисунке 4B, C.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Рисунок 1 представляет собой пример кривой роста для RH qku80::Штамм NLuc и производные расчеты для его удвоения времени. Как правило, асссможно проводится в трех технических репликациях для каждой из трех биологических репликаторов, учитывающих вариации показаний активности люциферазы. Для того, чтобы рассчитать нормализованное изменение складок роста паразитов, каждое чтение на 24-96 ч после инфекции было разделено на начальное чтение на 4...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
«Этот протокол описывает протокол на основе люциферазы для оценки роста внутриклеточной токсоплазмы и оценки эффективности ингибирования химических соединений против роста паразитов. По сравнению с существующими стратегиями измерения внутриклеточного роста токсоплазмы, этот метод обладает высокой чувствительностью и специфичностью. При мониторинге роста паразитов, макет анализ в ясной 96 хорошо микроплиты рекомендуется подтвердить, что испытания штамма преждевременно лиза клетки-хозяина до конца периода...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Авторы хотели бы поблагодарить д-р Сибли и Каррутерс для обмена pSAG1-Cas9-sgRNA-TgUPRT плазмид и антитела анти-TgCPL и TgActin. Эта работа была поддержана Фондом стартапов Clemson (к З.Д.), Рыцари Тамплиеров Глаз Фонд детской офтальмологии Карьера-Стартер исследований Грант (к З.Д.), пилотный грант NIH COBRE грант P20GM109094 (к З.Д.), и NIH R01AI143707 (к З.Д.). Спонсоры не принимали никакой роли в разработке, сборе и анализе данных, принятии решения о публикации или подготовке рукописи.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Набор для экстракции агарозного геля | New England BioLabs | T1020L | |
| BamHI | New England BioLabs | R0316S | |
| Biotek Synergy H1 Hybrid Multi-Mode Microplate Reader | BioTek Instuments | ||
| BTX Gemini Twin Waveform Electroporation System | Гарвардский аппарат | ||
| Химически компетентные E. coli клетки | New England BioLabs | C29871 | |
| CloneAmp HiFi PCR premix | Takara Bio | 639298 | |
| Coelenterazine h | Prolume | 301-10 hCTZ | |
| EcoRV | New England BioLabs | R3195S | |
| Phire Tissue Direct PCR Master Mix | Thermo Scientific | F170L | |
| Plasmid miniprep kit | Zymo Research | D4054 | |
| Q5 Site-Directed Mutagenesis kit | New England BioLabs | E0554S | |
| Software | |||
| Geneious software for sgRNA (версия: R11) | |||
| GraphPad Prism software (8th version) | |||
| SnapGene для молекулярного клонирования (версия: 4.2.11) |
Ссылки
- Blader, I. J., Coleman, B. I., Chen, C. T., Gubbels, M. J. Lytic Cycle of Toxoplasma gondii: 15 Years Later. Annual Review of Microbiology. 69 (1), 1-23 (2014).
- Jones, J. L., Kruszon-Moran, D., Rivera, H., Price, C., Wilkins, P. P. Toxoplasma gondii Seroprevalence in the United States 2009-2010 and Comparison with the Past Two Decades. The American Journal of Tropical Medicine and Hygiene. 90 (6), (2014).
- Kieffer, F., Wallon, M. Congenital toxoplasmosis. Handbook of Clinical Neurology. 112, 1099-1101 (2013).
- Hoffmann, S., Batz, M. B., Morris, G. J. Annual cost of illness and quality-adjusted life year losses in the United States due to 14 foodborne pathogens. Journal of Food Protection. 75 (7), 1292-1302 (2012).
- Dubey, J. Toxoplasmosis. Journal of the American Veterinary Medical Association. 205 (11), 1593-1598 (1994).
- Lindsay, D., Dubey, J. Toxoplasma gondii: the changing paradigm of congenital toxoplasmosis. Parasitology. 138 (14), 1-3 (2011).
- Deng, Y., Wu, T., Zhai, S., Li, C. Recent progress on anti-Toxoplasma drugs discovery: Design, synthesis and screening. European Journal of Medicinal Chemistry. 183, 111711(2019).
- Butler, N. J., Furtado, J. M., Winthrop, K. L., Smith, J. R. Ocular toxoplasmosis II: clinical features, pathology and management. Clinical & Experimental Ophthalmology. 41 (1), 95-108 (2013).
- Pfefferko, E., Pfefferko, L. C. Specific Labeling of Intracellular Toxoplasma gondii with Uracil. Journal of Eukaryotic Microbiology. 24 (3), 449-453 (1977).
- Merli, A., Canessa, A., Melioli, G. Enzyme immunoassay for evaluation of Toxoplasma gondii growth in tissue culture. Journal of Clinical Microbiology. 21 (1), 88-91 (1985).
- Derouin, F., Chastang, C. Enzyme immunoassay to assess effect of antimicrobial agents on Toxoplasma gondii in tissue culture. Antimicrobial Agents and Chemotherapy. 32 (3), 303-307 (1988).
- McFadden, D., Seeber, F., Boothroyd, J. Use of Toxoplasma gondii expressing beta-galactosidase for colorimetric assessment of drug activity in vitro. Antimicrobial Agents and Chemotherapy. 41 (9), 1849-1853 (1997).
- Gubbels, M. J., Li, C., Striepen, B. High-Throughput Growth Assay for Toxoplasma gondii Using Yellow Fluorescent Protein. Antimicrobial Agents and Chemotherapy. 47 (1), 309-316 (2003).
- Touquet, B., et al. High-content imaging assay to evaluate Toxoplasma gondii infection and proliferation: A multiparametric assay to screen new compounds. PLoS ONE. 13 (8), e0201678(2018).
- Thornton, L. B., et al. An ortholog of Plasmodium falciparum chloroquine resistance transporter (PfCRT) plays a key role in maintaining the integrity of the endolysosomal system in Toxoplasma gondii to facilitate host invasion. PLOS Pathogens. 15 (6), e1007775(2019).
- Larson, E. T., et al. Toxoplasma gondii cathepsin L is the primary target of the invasion-inhibitory compound morpholinurea-leucyl-homophenyl-vinyl sulfone phenyl. The Journal of Biological Chemistry. 284 (39), 26839-26850 (2009).
- Dou, Z., McGovern, O. L., Cristina, M., Carruthers, V. B. Toxoplasma gondii Ingests and Digests Host Cytosolic Proteins. mBio. 5 (4), e01188-14(2014).
- Cristina, M., et al. Toxoplasma depends on lysosomal consumption of autophagosomes for persistent infection. Nature Microbiology. 2, 17096(2017).
- Parussini, F., Coppens, I., Shah, P. P., Diamond, S. L., Carruthers, V. B. Cathepsin L occupies a vacuolar compartment and is a protein maturase within the endo/exocytic system of Toxoplasma gondii. Molecular Microbiology. 76 (6), 1340-1357 (2010).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryotic cell. 8 (4), 530-539 (2009).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryotic Cell. 8 (4), 520-529 (2009).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient Genome Engineering of Toxoplasma gondii Using CRISPR/Cas9. PLoS ONE. 9 (6), e100450(2014).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, D. L. Efficient Gene Disruption in Diverse Strains of Toxoplasma gondii Using CRISPR/CAS9. mBio. 5 (3), e01114-14(2014).
- Radke, J. R., et al. Defining the cell cycle for the tachyzoite stage of Toxoplasma gondii. Molecular and Biochemical Parasitology. 115 (2), 165-175 (2001).
- Ran, A. F., et al. Genome engineering using the CRISPR-Cas9 system. Nature Protocols. 8 (11), 2281-2308 (2013).
- Labun, K., Montague, T. G., Gagnon, J. A., Thyme, S. B., Valen, E. CHOPCHOP v2: a web tool for the next generation of CRISPR genome engineering. Nucleic Acids Research. 44 (W1), W272-W276 (2016).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nature Methods. 11 (2), 2812(2014).
- Peng, D., Tarleton, R. EuPaGDT: a web tool tailored to design CRISPR guide RNAs for eukaryotic pathogens. Microbial Genomics. 1 (4), e000033(2015).
- Doench, J. G., et al. Rational design of highly active sgRNAs for CRISPR-Cas9-mediated gene inactivation. Nature Biotechnology. 32 (12), 1262-1267 (2014).
- Sidik, S. M., et al. A Genome-wide CRISPR Screen in Toxoplasma Identifies Essential Apicomplexan Genes. Cell. 166 (6), 1423-1435 (2016).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
