Здесь описан протокол изучения событий, вызванных FcγRIIIa, терапевтическими антителами в клетках-убийцах человека. Эта платформа искусственной стимуляции позволяет исследовать последующие эффекторные функции, такие как дегрануляция, производство хемокина / цитокина и сигнальные пути, опосредованные частями FcγRIIIa и Fc антител, участвующих в связывании.
Методическая статья
Оценка событий естественных клеток-киллеров человека, обусловленных вовлечением FcγRIIIa в присутствии терапевтических антител
В этой статье
Краткое содержание
Аннотация
Одним из механизмов действия клинической эффективности терапевтических антител является стимулирование связанных с иммунитетом функций, таких как секреция цитокинов и цитотоксичность, обусловленных FcγRIIIa (CD16), экспрессируемых на естественных киллерах (NK) клетках. Эти наблюдения привели к исследованиям, сосредоточенным на методах увеличения событий, опосредованных рецепторами Fc, которые включают удаление фрагмента фукозы, обнаруженного на fc-части антитела. Дальнейшие исследования выявили механистические изменения в сигнализации, клеточных процессах и цитотоксических характеристиках, которые увеличивают активность ADCC с афукозилированными антителами. Кроме того, другие исследования показали потенциальные преимущества этих антител в сочетании с ингибиторами малых молекул. Эти эксперименты продемонстрировали молекулярные и клеточные механизмы, лежащие в основе преимуществ использования афукозилированных антител в комбинированных условиях. Многие из этих наблюдений были основаны на искусственном анализе активации in vitro, в котором FcγRIIIa на NK-клетках человека активировался терапевтическими антителами. Этот анализ обеспечил гибкость для изучения последующих эффекторных функций NK-клеток, таких как производство цитокинов и дегрануляция. Кроме того, этот анализ был использован для опроса сигнальных путей и идентификации молекул, которые могут быть модулированы или использованы в качестве биомаркеров. Наконец, другие терапевтические молекулы (т.е. ингибиторы малых молекул) были добавлены в систему, чтобы дать представление о комбинации этих терапевтических средств с терапевтическими антителами, что имеет важное значение в современном клиническом пространстве. Эта рукопись призвана обеспечить техническую основу для выполнения этого искусственного анализа активации NK-клеток человека. Протокол демонстрирует ключевые шаги для активации клеток, а также потенциальные последующие приложения, которые варьируются от функциональных показаний до более механистических наблюдений.
Введение
За последние несколько десятилетий огромное внимание уделялось разработке таргетной терапии рака с использованием антител. Терапевтические антитела, такие как трастузумаб и ритуксимаб, действуют через несколько механизмов, включая предотвращение димеризации сигнальных молекул и мобилизацию иммунной системы1,2. Последнее достигается за счет антителозависимой клеточной цитотоксичности (ADCC), при которой лимфоциты, называемые естественными киллерами (NK), доводятся до клетки-мишени антителом1,2. Помещая клетки в непосредственной близости друг от друга, NK-клетка активируется и может лизировать опухоль/клетку-мишень посредством секреции эффекторных молекул3.
На молекулярном уровне Fab-часть антитела связывает свой родственный антиген, экспрессируемый на опухолевых клетках, в то время как его часть Fc задействует FcγRIIIa, экспрессируемую на NK-клетках, чтобы объединить две клетки1,2. После вовлечения FcγRIIIa сигнальные пути (т.е. пути MAPK и PI3K) управляют цитоскелетной перестройкой, выработкой цитокинов и цитотоксичностью4,5,6,7,8,9. Таким образом, ADCC является событием, управляемым FcγRIIIa, опосредованным NK-клетками и антителами.
Поскольку ADCC считался механизмом действия этих терапевтических антител, исследователи искали методы увеличения ADCC путем модификации антитела. Одной из модификаций было удаление фукозы на олигосахаридной цепи, прикрепленной к аспарагину 297, что увеличивает сродство связывания Fc-части антитела к FcγRIIIa10,11,12. В исследованиях на животных мыши, получая афукозилированные антитела, демонстрировали более медленный рост опухоли по сравнению с мышами, получавших фукозилированный аналог13. Что еще более важно, обинутузумаб (например, Gazyva, одобренное афукозилированное антитело) показал лучшую эффективность по сравнению с ритуксимабом (например, Ритуксаном, его фукозилированным аналогом) у пациентов с диагнозом хронический лимфоцитарный лейкоз или фолликулярная лимфома14,15.
До недавнего времени механизмы, лежащие в основе повышения ADCC через афукозилированные антитела, были неизвестны. В сочетании с тем фактом, что существуют многочисленные исследовательские программы, разрабатывающие терапевтические антитела для использования механизмов, управляемых FcγRIIIa, для нацеливания на раковые клетки, крайне важно разработать анализы in vitro, которые изучают молекулярные и клеточные аспекты, продвигаемые этими антителами. Это обеспечивает фундаментальное понимание механизмов действия, а также потенциала для обнаружения биомаркеров. Таким образом, был разработан искусственный анализ активации для изучения антителозависимых FcγRIIIa-опосредованных функций в дополнение к сигнальным и клеточным характеристикам8. Благодаря этим исследованиям были выяснены механизмы, лежащие в основе повышения эффективности афукозилированных антител, в которых повышенное сродство связывания увеличивает передачу сигналов для повышения клеточных свойств и цитотоксических характеристик8.
Современной тенденцией в клинических испытаниях является использование комбинации терапевтических молекул16. Одним из наиболее часто мутировавших путей является путь PI3K, который вызвал огромные усилия по разработке ингибиторов малых молекул, которые нацелены на компоненты этого пути17,18,19,20. Тем не менее, как эти молекулы действуют в сочетании с терапевтическими антителами, относительно неизвестно, особенно в комбинациях, где ингибитор может влиять на молекулы, которым требуется путь PI3K для функционирования, например, те, которые управляются терапевтическими антителами.
С этой целью анализ in vitro, используемый для исследований афукозилированных антител, также использовался для изучения комбинации ингибиторов PI3K и терапевтических антител. Эти исследования определили молекулярные характеристики ингибирования PI3K на терапевтических событиях, управляемых антителами PI3K, и описали, как афукозилированные антитела могут компенсировать эту потерю сигналов9. Эти результаты актуальны, поскольку они дают потенциальное руководство для разработки клинических испытаний. Кроме того, эта серия экспериментов также привела к первым описанным наблюдениям за кинетической регуляцией сигнального пути PI3K для модуляции транскрипции и производства хемокина/цитокина, которые могут служить потенциальными биомаркерами9.
Искусственный анализ активации in vitro, используемый для определения сигнальных и клеточных характеристик, описанных выше, был разработан для изучения событий, управляемых FcγRIIIa в NK-клетках, опосредованных антителами в отсутствие клеток-мишеней. Без клеток-мишеней в системе все наблюдаемые сигнальные события и функции могут быть отнесенные непосредственно к NK-клеткам. В представленном анализе антитело добавляют к очищенным NK-клеткам, после чего часть Fc связывает FcγRIIIa. За этим следует сшивание антитела с использованием античеловеческого антитела κ легкой цепи для искусственной стимуляции клеток. Сшивание антитела имитирует связывание целевого антигена для создания сигнальной платформы, которая вызывает последующие события. В зависимости от продолжительности стимуляции исследователи могут оценить сигнальные, клеточные процессы, цитотоксические характеристики и эффекторные функции8,9. Аналогичным образом, этот анализ также обеспечивает гибкость в изучении этих событий, когда антитела объединяются с другими молекулами9.
Вместе это идеальный анализ in vitro для изучения терапевтических антител, которые вызывают реакции NK-клеток через их FcγRIIIa как часть механизма действия. Этот протокол описывает производительность этого анализа активации in vitro и дает представление о различных показаниях, которые могут быть выполнены.
Протокол
Следующий протокол соответствует руководящим принципам комитета по этике исследований человека iQ Bioscience.
1. Выделение НБМК и обогащение/очистка NK-клеток
ПРИМЕЧАНИЕ: Также могут быть выполнены другие методы выделения мононуклеарных клеток периферической крови (ПБМК) и обогащения/очистки.
- Втянуть 200 мл крови в регулируемых условиях в пробирку, содержащую гепарин.
- Добавьте 15 мл среды градиента плотности в трубку объемом 50 мл с включенным пористым барьером. Вращайте трубку при 1000 х г в течение 30 с.
- Добавьте 12,5 мл крови в пробирку, а затем еще 12,5 мл PBS и осторожно инвертируйте 3x. Вращайте трубку при 800 х г в течение 15 мин при комнатной температуре (RT) без перерывов.
- Подготовьте коническую трубку объемом 50 мл с 40 мл PBS для каждой трубки с пористым барьером во время вращения клеток.
- Осторожно снимите трубки и осмотрите после центрифугирования. Проверьте наличие тонкого, заметно белого слоя PBMCs над пористым барьером, между демаркациями 20 мл и 25 мл на трубке объемом 50 мл.
- Осторожно удалите как можно больше жидкости сверху с помощью пипетки, не нарушая тонкий белый слой PBMC.
- С помощью чистой серологической пипетки объемом 10 мл аккуратно удалите слой PBMC в дополнение к прозрачному желтоватым слою жидкости вниз к фильтру трубки.
- Выталкивают МПК и жидкость в конический 50 мл, содержащий PBS, приготовленный на этапе 1.4. Отжимные трубки при РТ и 300 х г в течение 5 мин.
- Аспирировать PBS вымыть и добавить дополнительно 40 мл PBS. Отжимные трубки при РТ и 300 х г в течение 5 мин.
- После промывки подсчитайте клетки и повторно суспендировали их в 40 мкл 2% BSA/PBS на 1 x 10⁷ клеток.
- Приступают к выделению NK-клеток с помощью метода выбора. Варианты включают ручную или автоматическую сортировку намагнитной основебусин9,21. Флуоресцентная активированная сортировка клеток также может быть выполнена22.
- Удаляют небольшую аликвоту клеток для определения чистоты NK-клеток с помощью проточной цитометрии. Стратегия гаширования включает в себя следующее: затвор на живых клетках на основе профиля прямого и бокового рассеяния, затем оценка чистоты на основе маркеров NK (например, CD3, CD56) в конкретной живой популяции. Типичная чистота составляет >95%.
- После завершения выделения отжимают ячейки на RT и 300 х г в течение 5 мин до гранул и аспирата.
- Повторно суспендировать клеточную гранулу до 1 х 107 клеток/мл в RPMI 1640 с питательными веществами, 10% термоинактивированным FBS, 1 мМ пирувата натрия, 55 мМ 2-ME и 10 мМ HEPES (pH = 7,2).
2. Антителоопосредовая активация NK-клеток через FcγRIIIa
- Установите охлажденный микроцентрифуг на 4 °C.
- Дозировать 1 х 106 (100 мкл) повторно суспендированных NK-клеток в трубку (трубки) 1,5 мл и поместить на лед.
ПРИМЕЧАНИЕ: Ячейки могут быть распределены в 96 скважин U-дную пластину, если есть многочисленные образцы. - Готовят 1 мкл 100 мкг/мл ритуксимаба (или интересующих антитела) на образец и добавляют 1 мкл к клеткам для получения конечной концентрации антитела 1 мкг/мл.
ПРИМЕЧАНИЕ: Другие молекулы могут быть добавлены к клеткам в этот момент или раньше для оценки комбинированных эффектов. Здесь ритиксумаб использовался для стимуляции. В предыдущих исследованиях ингибиторы малых молекул были добавлены к стимуляции9. - Инкубировать образец на льду в течение 30 минут. Во время инкубации готовят 50 мкл 50 мкг/мл античеловеческого антицепочечных антител на образец в среде и нагревают до 37 °C на тепловом блоке или на водяной бане.
- После инкубации клеток на льду добавляют 1 мл ледяной среды и вращают при 135 х г в течение 5 мин при 4 °C. Снова промыть 1 мл ледяной среды.
- Аспирировать супернатант после последней промывки и добавить 50 мкл античеловеческой κ легкоцепной смеси, приготовленной на этапе 2.5.
- Немедленно инкубируйте образцы для конечного пользователя, определяемые временными точками при 37 °C на тепловом блоке или на водяной бане.
- Прекратите стимуляцию, добавив 1 мл ледяной среды и немедленно вращайте образцы в охлажденном центрифуге при 135 х г в течение 5 мин. Еще раз промыть 1 мл ледяной среды.
3. Последующие приложения и считывания
- Опрос сигнальных молекул в FcγRIIIa-стимулируемых NK-клетках с помощью анализа вестерн-блот
ПРИМЕЧАНИЕ: Могут использоваться различные аппараты разделения белка и мембранного переноса.- После последней промывки ледяными средами (этап 2.8) лиз клетки с 20 мкл буфера RIPA, содержащего фосфатазу и ингибиторы протеазы, смешивают в течение 30 мин на льду.
- Отжимные трубки при 2100 х г в течение 15 мин при 4 °C. Переложите лизат в чистую пробирку объемом 1,5 мл и добавьте реагенты, необходимые для разделения белка.
- Разделите белки на геле SDS-PAGE и перенесите на нитроцеллюлозную или PVDF-мембрану в соответствии со стандартными протоколами.
- Блокируйте и зондируйте мембрану в соответствии с техническим описанием производителя для первичного обнаружения антител (здесь использовались pAKT, pPRAS 40 и pERK1/2).
- Добавьте HRP-конъюгированное вторичное антитело и реагент хемилюминесценции в соответствии с рекомендациями производителя на мембране PVDF. Используйте рентгеновскую пленку или детектор для визуализации (здесь pAKT был обнаружен при 60 кДа, pPRAS40 при 40 кДа и pERK1/2 при 42 кДа и 44 кДа).
- Выделение мРНК и подготовка к анализу экспрессии генов FcγRIIIa-стимулированных NK-клеток (Таблица материалов)
- После достижения временной точки стимуляции (этап 2.7) поместите трубку на лед и немедленно вращайте в охлажденном центрифуге при 135 х г в течение 5 мин (аналогично шагу 2.8).
- Удалите супернатант и промыть 2 раза 1 мл ледяного PBS.
- Клетки лизы с использованием экстракции ГВАНИДИЯ изотиоцианата РНК(Таблица материалов). Используйте 1 мкг мРНК для выполнения обратной транскрипции с использованием случайных гексамеров с коммерческим набором(Таблица материалов).
ПРИМЕЧАНИЕ: Любой метод экстракции РНК или синтеза кДНК может быть использован9,23,24. - Заморозить кДНК при -20 °C до анализа экспрессии генов.
- Оценка цитоскелетной перестройки в FcγRIIIa-стимулированных NK-клетках
- После последней промывки ледяными средами (этап 2.8) повторно суспендируют ячейку гранулы с 50 мкл 3,7% параформальдегида в течение 10 мин при РТ.
- Добавьте 1 мл PBS и открутите при 135 x g в течение 5 минут при RT. Повторите эту промывку еще раз.
- Добавьте 100 мкл 0,1% Triton X-100/PBS в течение 5 мин для проницания клеток и спиновые ячейки при 135 х г в течение 5 мин при RT до гранулы.
- Добавьте 100 мкл 5 единиц/мл af488-меченого фаллоидина, разведенного в 1% BSA/PBS, и инкубируют в течение 20 мин при RT.
- Добавьте 1 мл PBS и открутите при 135 х г в течение 5 мин при RT для промывки. Повторное суспендирование клеточной гранулы в нужном объеме для проточного цитометрического анализа.
- Оценка дегрануляции FcγRIIIa-стимулированных NK-клеток с использованием окрашивания поверхности CD107a
- Инкубируйте клетки с интересуемым антителом на льду, как описано на этапах 2.1–2.4. Во время инкубации готовят 50 мкл смеси антител на образец. Готовят смесь в клеточных средах с конечной концентрацией 50 мкг/мл античеловеческого κ легкоцепочечных антител и 1 мкг/мл фторхром-меченого CD107a.
- После инкубации клеток на льду добавляют 1 мл ледяной среды. Открутите при 135 х г в течение 5 мин при 4 °C, затем снова промыть 1 мл ледяной холодной среды.
- Аспирировать супернатант после последней промывки, затем добавить 50 мкл античеловеческой κ легкоцепной смеси и инкубировать при 37 °C в течение желаемых временных точек.
- В нужные моменты времени добавляют 1 мл PBS и вращают при 135 х г в течение 5 мин при RT. Аспират супернатант и добавляют 100 мкл 4% параформальдегида. Инкубировать в RT в течение 10 мин.
- Добавьте 1 мл PBS и открутите при 135 х г в течение 5 мин при RT для промывки. Повторное суспендирование клеточной гранулы в нужном объеме для проточного цитометрического анализа.
- Оценка продукции хемокина/цитокина из FcγRIIIa-стимулированных NK-клеток
ПРИМЕЧАНИЕ: Для оценки продукции хемокина и цитокина могут использоваться различные методы и/или наборы.- После достижения временной точки стимуляции (этап 2.7) немедленно поместите трубку на лед и вращайте в охлажденном центрифуге при 135 х г в течение 5 мин при 4 °C.
- Перенесите супернатант в чистый сосуд. Заморозьте супернатант до оценки хемокина или цитокина с использованием желаемого анализа.
ПРИМЕЧАНИЕ: Клеточные гранулы теперь можно промывать ледяным PBS и обрабатывать для передачи сигналов, экспрессии генов и исследований цитоскелетной перестройки.
Результаты
Важно, чтобы чистота NK-клеток была высокой, потому что Fc-часть антител может связывать FcγRIIIa, экспрессируемую на других типах клеток, таких как моноциты. С высокой чистотой сделанные наблюдения могут быть отнесены непосредственно к событиям, управляемым FcγRIIIa, в NK-клетках. Здесь NK-клетки имели чистоту более 90% на основе пятен CD56 и CD3(рисунок 1). Кроме того, жизнеспособность составила >95%. Следует соблюдать осторожность при использовании изоляции с более низкой жизнеспособностью. Чтобы гарантировать, что события были вызваны FcγRIIIa, были выполнены западные пятна для фосфо-AKT (pAKT), фосфо-PRAS40 (pPRAS40) и фосфо-ERK1/2 (pERK1/2), в которых NK-клетки активировались в течение 1-5 мин. Как показано, наблюдалось накопление этих молекул(рисунок 2). Аналогичным образом, активированные NK-клетки экспрессировали MIP-1α, MIP-1β, IFN-γ и TNF-α, как показано анализом экспрессии генов(рисунок 3).
Кроме того, в активированных клетках наблюдалась перегруппировка цитоскелета(рисунок 4). В процентном отношении NK-клеток стимулировали в течение 4 ч экспрессируемый CD107a на поверхности клетки(рисунок 5). Кроме того, IFN-γ, TNF-α, MIP-1α, MIP-1β и RANTES были обнаружены в супернатанте после 3 ч стимуляции(рисунок 6). Эти показания ожидаются на основе опубликованных исследований, поскольку активированные NK-клетки будут иметь эти фосфорилированные белки, а также экспрессию генов и продукцию упомянутых хемокинов и цитокинов8,9. Во всех экспериментах условия стимуляции должны включать античеловеческий контроль κ только легкой цепи и антитело без античеловеческого контроля κ легкого сшивания. Эти NK-клетки не должны демонстрировать какую-либо фосфо-сигнализацию, дегрануляцию, выработку хемокина / цитокина или экспрессию генов хемокина / цитокина.
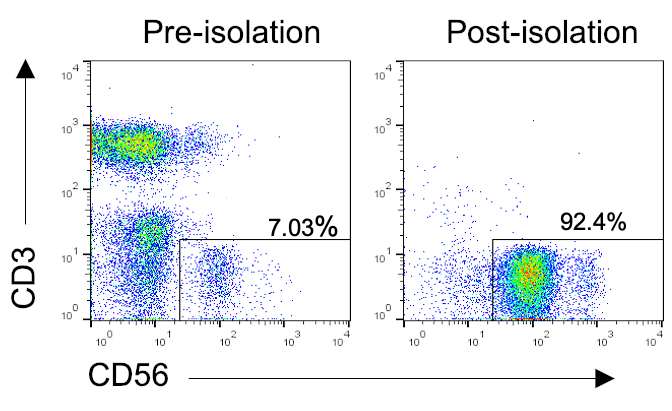
Рисунок 1: Репрезентативные профили потока чистоты NK-клеток после выделения из НБМК. НБМК были выделены из крови здорового донора с последующим обогащением NK-клеток с использованием метода отрицательного отбора для выделения NK-клеток человека(Таблица материалов). Клетки окрашивали CD56 и CD3 до и после обогащения для определения чистоты. Репрезентативные точечные графики CD56 против CD3 до и после изоляции. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
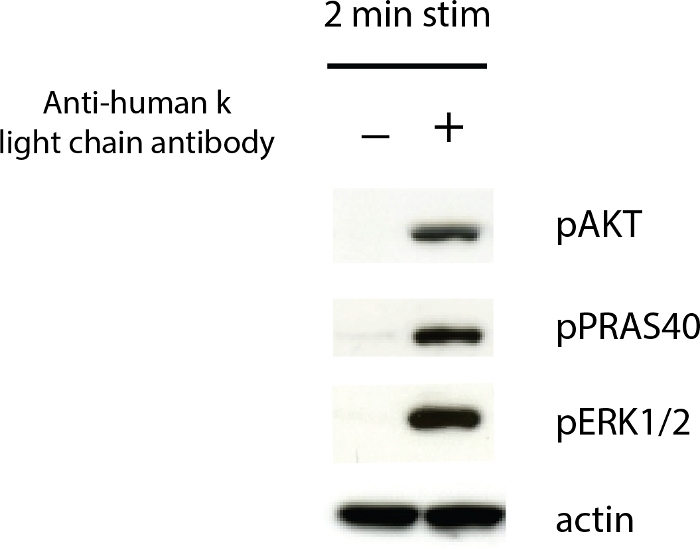
Рисунок 2: FcγRIIIa-активированные NK-клетки демонстрируют фосфорилированные сигнальные молекулы. Клетки стимулировали ритуксимабом в течение 2 мин, а клеточные лизаты делали по протоколу. Лизаты отделяли на 4-12% геля с последующим переносом на мембрану PVDF. Мембрану исследовали антителами против pAKT, pPRAS40, pERK1/2 и актина. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
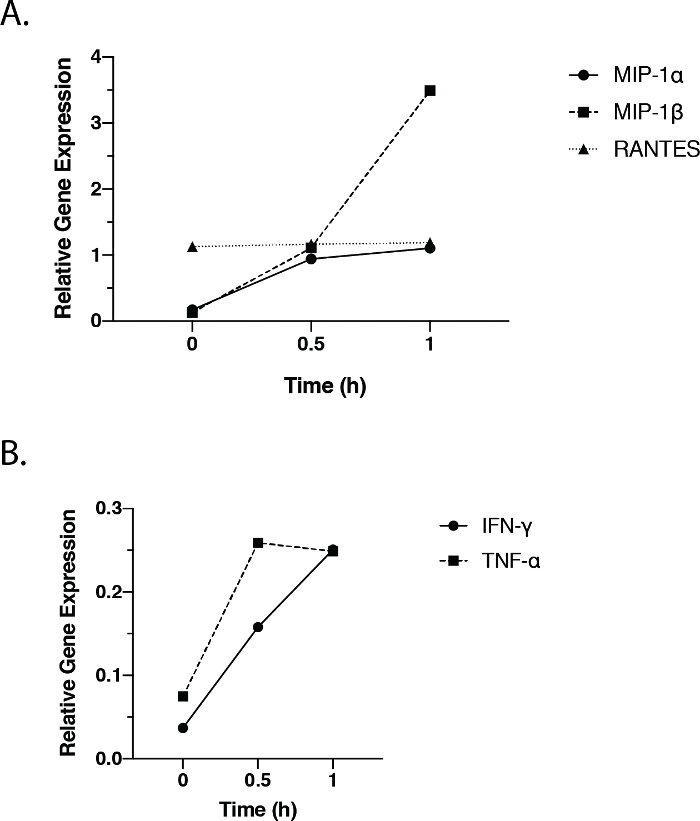
Рисунок 3: FcγRIIIa-активированные NK-клетки экспрессируют гены хемокина и цитокина. NK-клетки стимулировали ритуксимабом в течение 0 ч, 0,5 ч и 1 ч. мРНК собирали, реверсивно транскрибировали и подвергали qPCR-анализу на MIP-1α, MIP-1β, RANTES, IFN-γ и TNF-α(Таблица материалов). (A) Относительная экспрессия MIP-1α, MIP-1β и RANTES в каждой точке времени. (B)Относительное выражение IFN-γ и TNF-α в каждой точке времени. Значения нормализовались до гена актина. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
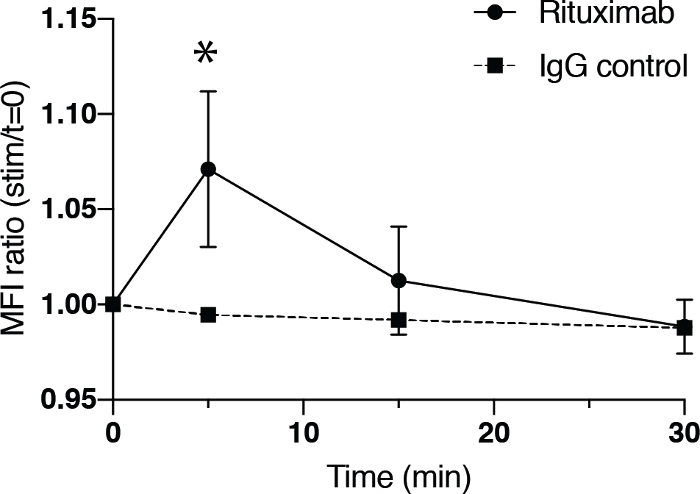
Рисунок 4: FcγRIIIa-активированные NK-клетки проявляют цитоскелетную перестройку. NK-клетки стимулировали ритуксимабом в течение 0 мин, 5 мин, 15 мин и 30 мин с последующей оценкой перегруппировки цитоскелета окрашиванием фаллоидином и проточной цитометрией. Отношение МФО в экспериментальной точке времени к МФО в момент времени 0 NK-клеток, стимулируемых ритуксимабом (круг, сплошная линия) или вторичным антителом в одиночку (квадратная, пунктирная линия). Полосы представляют SD четырех реплик. Звездочки представляют статистическую значимость, основанную на t-тесте двуххвостого непарного студента (*p < 0,05). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
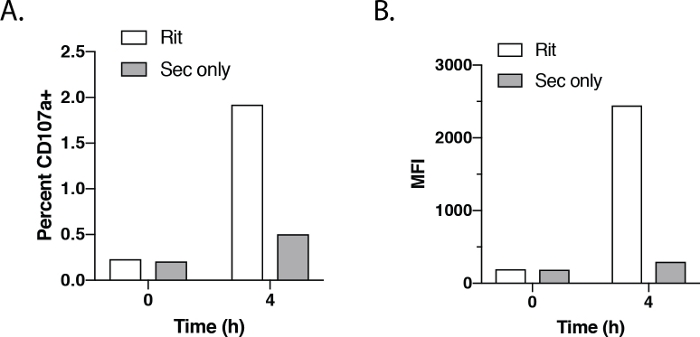
Рисунок 5: FcγRIIIa-активированные NK-клетки экспрессируют CD107a. NK-клетки стимулировали ритуксимабом в течение 4 ч с последующей оценкой дегрануляции с помощью CD107a и проточной цитометрии. (A)Процент NK-клеток, экспрессирующих CD107a после стимуляции ритуксимабом (белые полосы) или античеловеческим антителом κ со световой цепью (серые полосы) в течение 0 ч и 4 ч.(B)CD107a MFI NK-клеток, стимулируемых ритуксимабом (белые полосы) или античеловеческим антителом κ легкой цепи (серые полосы) после 0 ч и 4 ч лечения. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
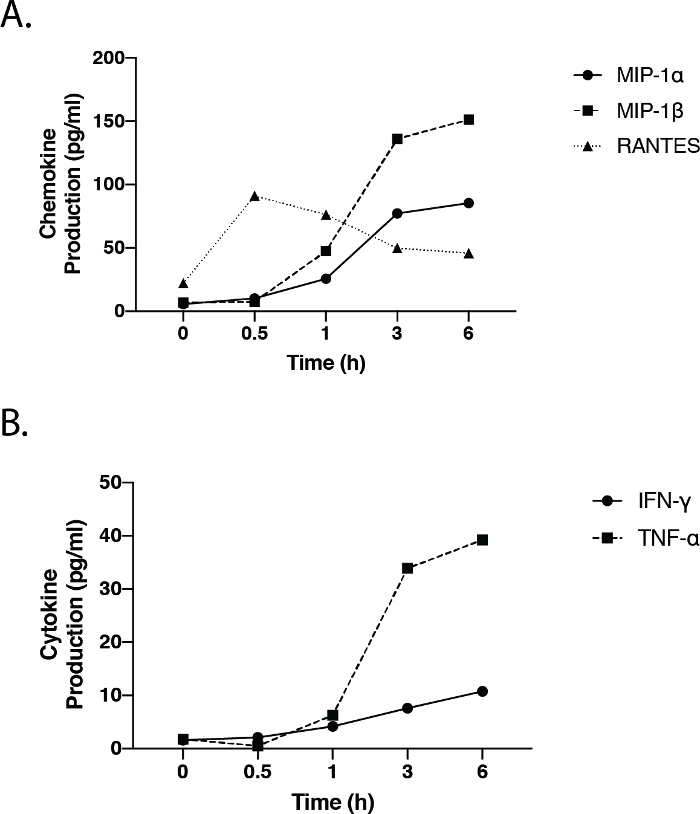
Рисунок 6: FcγRIIIa-активированные NK-клетки секретируют хемокины и цитокины. NK-клетки стимулировали в течение 0, 0,5, 1, 3 и 6 ч с помощью ритуксимаба. Супернатант собирали для измерения высвобождения MIP-1α, MIP-1β, RANTES, IFN-γ и TNF-α методом оценки цитокинов на основе потока ишарика (Таблица материалов). (A) Производство MIP-1α, MIP-1β и РАНТЕС в каждой точке времени. (B)IFN-γ и TNF-α производство в каждый момент времени. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
Этот протокол описывает методы изучения событий, управляемых FcγRIIIa, в NK-клетках, опосредованных антителами. Эти методики позволяют оценить потенциальные механизмы действия терапевтических антител, которые предполагается adcc1,2. В частности, эти методы обеспечивают гибкость в изучении основных молекулярных сигнальных путей и клеточных процессов, которые отвечают за ADCC. Они также позволяют наблюдать за другими эффекторными функциями, такими как производство хемокина и цитокинов. Кроме того, эти методы позволяют идентифицировать потенциальные биомаркеры и молекулы, которые могут быть нацелены на модуляцию ADCC.
Основой для этого протокола является искусственная стимуляция NK-клеток через FcγRIIIa антителами при отсутствии клеток-мишеней. Клетки-мишени, связанные с антителами, обычно служат для содействия сшиванию Fc-рецепторов с образованием платформы, которая управляет сигнальными и последующими эффектами. Вместо этого сшивание осуществляется с использованием античеловеческого антитела κ легкой цепи в этом анализе, минуя необходимость в клетках-мишенях для стимуляции NK-клеток. Без клеток-мишеней результаты и наблюдения могут быть отнесены непосредственно к NK-клеткам, предполагая, что процесс очистки будет успешным.
Важно отметить, что использование античеловеческого антитела κ легкой цепи для сшивания антитела не влияет на сродство связывания части Fc для FcγRIIIa, взаимодействие, которое диктует силу ответа10,11,12,13. Действительно, исследования показали, что афукозилированные антитела увеличивают ADCC из-за их повышенного сродства к FcγRIIIa10,11,12,13. Последующие исследования показали, что это повышенное сродство не зависит от античеловеческого κ заменителя вторичных антител легкой цепи и может быть использовано для изучения основы для повышения ADCC8. Чтобы гарантировать, что NK-клетка стимулируется путем сшивания антитела, следует включить два отрицательных контроля: 1) терапевтическое антитело только без вторичного античеловеческого антитела κ легкой цепи и 2) только вторичное античеловеческое антитело κ легкой цепи. В обоих случаях не следует генерировать сигнальную или эффекторную функцию.
Этот метод также обеспечивает гибкость для изучения влияния терапевтических антител на ингибиторы малых молекул. Ингибитор может быть добавлен перед сшивающимся с вторичным антителом, чтобы ингибитор успел зацепиться за свою мишень. Однако следует проводить исследования для определения оптимального времени предварительной обработки ингибитором; таким образом, ингибитор оказывает максимальное влияние на стимуляцию. С этим, исследователи могут также изучить эффекты ингибитора после стимуляции. В этом случае ингибитор может быть добавлен после сшивки для изучения того, как он влияет на сигналы и процессы, которые уже генерируются. В совокупности описанный здесь способ обеспечивает максимальную гибкость в изучении комбинаторных эффектов различных ингибиторов малых молекул с терапевтическими антителами.
Как уже упоминалось выше, после стимуляции могут быть выполнены различные показания. Вестерн-блоттинг может быть выполнен для изучения сигнализации с использованием SDS-PAGE и мембранных систем переноса от различных поставщиков. Аналогичным образом, экспрессия генов также может быть оценена с использованием различных методов экстракции РНК, реагентов обратной транскрипции и инструментов экспрессии генов. Наконец, окрашивание внутриклеточного или внеклеточного белка также может быть выполнено, в котором образцы могут быть проанализированы с использованием различных проточных цитометров. Для внутриклеточного окрашивания цитокином и CD107a (этап 3.4, который может быть оценен одновременно) следует добавлять моненсин и/или брефельдин А для максимизации сигналов. Мы использовали разные платформы для каждой экспериментальной цели и все еще наблюдали аналогичные результаты. Поэтому метод может быть дополнен различными реагентами, платформами и инструментами, в зависимости от исследования.
Время сшивания для стимуляции будет зависеть от цели исследования. Если необходимы сигнальные исследования, типичное время стимуляции сшивки составляет от 2 мин до 10 мин. накопление pAKT, pPRAS40 и pERK1/2 достигает пика через 2 мин и исчезает через 10 мин8,9. Для функциональных исследований (т.е. тех, которые включают выработку хемокина/цитокина) клетки должны стимулироваться в течение не менее 30 мин, в зависимости от анализируемого9. Анализ экспрессии генов также обычно требует 30 минут стимуляции9. Следует проявлять осторожность при использовании экспрессии гена RANTES в качестве считывания, так как продукция мРНК RANTES не зависит от транскрипционной активации, поскольку она уже хранится в клетках для быстрой трансляции и высвобождения белка при стимуляции25. Дегрануляция, напротив, требует не менее 3 ч стимуляции. Несмотря на эти общие наблюдения, исследователи должны выполнить кинетические исследования, чтобы определить оптимальное время стимуляции для конкретных молекул, представляющих интерес.
Аналогичным образом, исследователи должны титровать интересующее антитело, чтобы определить оптимальную концентрацию, потому что антитела с различной специфичностью связываются с FcγRIIIa с разными сродствами, даже если они имеют один и тот же изотип. Например, ритуксимаб и трастузумаб являются изотипом IgG1, но трастузумаб сильнее связывается с валиновым полиморфизмом FcγRIIIa, чем ритуксимаб26,27. Это различие в сродстве может привести к функциональным различиям, таким как дегрануляция, как это наблюдалось в опубликованных исследованиях8.
Определение оптимальной концентрации также важно из-за низкого сродства Fc-части антитела к FcγRIIIa. Это может привести к вымыванию антитела, поскольку протокол включает этапы промывки после связывания антитела с рецептором Fc. Это может привести к отсутствию чувствительности в анализах, о чем свидетельствует низкий процент cd107a положительных клеток после стимуляции(рисунок 5). Однако определение оптимальной концентрации должно обеспечивать уверенность в том, что результаты не обусловлены отсутствием чувствительности. Кроме того, клетки четко активируются в биохимических и функциональных анализах, которые используют объемные ячейки, в отличие от считывания одиночных клеток(Рисунок 2, Рисунок 3, Рисунок 6).
Протокол также ограничен, поскольку он не полностью имитирует то, что происходит физиологически. Вторичное античеловеческое K-антитело, используемое для имитации сшивки, генерируемой целевым антигеном, экспрессируемым на клетках. Здесь добавляется насыщенное количество вторичных антител для генерации максимального ответа. Тем не менее, различные клетки-мишени будут экспрессифицивать различные уровни антигена, что повлияет на сшивание и реакцию. В настоящее время эта платформа не оптимизирована для имитации эффектов различных уровней экспрессии антигена.
Другим фактором, который следует учитывать при проведении этих экспериментов, является изменчивость от донора к донору из-за различного генетического фона и иммунологической истории среди людей. Поэтому необходимо соблюдать осторожность при сравнении ответов NK-клеток от разных доноров в одних и тех же анализах. Аналогичным образом, при использовании различных доноров следует делать только общие выводы.
В целом, описанный метод представляет собой простую и гибкую платформу стимуляции для изучения fcγRIIIa-опосредованных антителами событий в NK-клетках. Он был использован для лучшего понимания основы повышения ADCC и эффективности, наблюдаемой с афукозилированными антителами8. Этот метод также использовался в исследовании, объединяющем терапевтические антитела и ингибиторы малых молекул PI3K9. Кроме того, был идентифицирован ранее неизвестный механизм производства хемокина и цитокинов, регулируемый pS69. Таким образом, будущие исследования с использованием этой искусственной сигнальной платформы могут дополнительно прояснить механизмы регуляции эффекторных функций, управляемых FcγRIIIa. Он также может потенциально идентифицировать новые молекулы, важные для этих механизмов, а также новые роли для известных молекул.
Раскрытие информации
Все авторы являются или были сотрудниками или консультантами iQ Biosciences.
Благодарности
Авторы благодарят Джеймса Ли и Кристофера Нга за комментарии и редактирование этой рукописи.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 16% параформальдегида | Thermo Fisher Scientific | 50-980-487 | |
| Alexa Fluor 488 фаллоидин | Thermo Fisher Scientific | A12379 | |
| антитело к HRP | мыши Cell Signaling Technologies | 7076 | |
| Инструмент AutoMACS | Miltenyi; | можно использовать | |
| другой инструмент для выделенияB-меркаптоэтанол | Thermo Fisher Scientific | 21985023 | |
| Сыворотка крупного рогатого скота Альбумин фракции V, без жирных кислот | Millipore Sigma | 10775835001 | |
| CD107a APC антитела | Biolegend | 328620 | |
| Цитокин 30-Plex Human Panel | Thermo Fisher Scientific | LHC6003M | метод хемокин/цитокин; может быть использован другой метод анализа хемокинов/цитокинов; может быть использован другой метод анализа хемокинов/цитокинов; может быть использован другой метод анализа хемокинов/цитокинов |
| FBS | Hyclone | SH30071.01 | |
| Goat anti-human κ антитела легкой цепи | Millipore Sigma | AP502 | |
| Halt Protease and Phosphatase Inginator Коктейль | Thermo Fisher Scientific | 78440 | |
| HEPES | Thermo Fisher Scientific | 15630080 | |
| High Capacity кДНК Набор для обратной транскрипции Thermo | Fisher Scientific | 4368814 | метод транскрипции кДНК; используется в соответствии с протоколом производителя |
| ИФН-?праймеры | Thermo Fisher Scientific | Hs00989291_m1 | |
| Leukosep tube (50 мл коническая форма с пористым барьером) | Greiner | 227290 | |
| Lymphoprep (среда с градиентом плотности) | Stemcell | 7851 | |
| MIP-1? праймеры | Thermo Fisher Scientific | Hs00234142_m1 | |
| Праймеры MIP-1&beta | Thermo Fisher Scientific | Hs99999148_m1 | |
| набор для выделения NK-клеток | Miltenyi | 130-092-657 | Набор для выделения NK-клеток; может быть использован другой набор для изоляции |
| NuPAGE 4-12% Bis-Tris Protein Gels | Thermo Fisher Scientific | может быть использована другая система разделения белков | |
| pAKT (S473) антитела | Cell Signaling Technologies | 4060 | |
| pERK1/2 антитело | Cell Signaling Technologies | 4370 | |
| антитело pPRAS40 | Cell Signaling Technologies | 13175 | |
| PVDF мембрана | Thermo Fisher Scientific | нитроцеллюлоза может быть использована | |
| RANTES праймеры | Thermo Fisher Scientific | Hs00982282_m1 | |
| RIPA буфер | Millipore Sigma | R0278 | |
| RPMI с глутамаксом | Thermo Fisher Scientific | 61870 | |
| Пируват натрия | Thermo Fisher Scientific | 11360070 | |
| TNF-? праймеры | Thermo Fisher Scientific | Hs00174128_m1 | |
| Triton X-100 | Thermo Fisher Scientific | 85111 | |
| TRIzol | Thermo Fisher Scientific | 15596018 | метод выделения РНК; используется в соответствии с протоколом производителя |
| Xcell Blot II Transfer Module | Thermo Fisher Scientific | может быть использована другая система разделения белков | |
| Xcell SureLock Protein Gel Electrophoresis Chamber System | Thermo Fisher Scientific | может быть использована другая система разделения белков | |
| beta;-actin HRP антитела | Abcam | ab6721 | |
| β-актин грунтовки | Thermo Fisher Scientific | Hs00982282_m1 |
Ссылки
- Hudis, C. A. Trastuzumab - Mechanism of Action and Use in Clinical Practice. New England Journal of Medicine. 357 (1), 39-51 (2007).
- Weiner, G. J. Rituximab: mechanism of action. Seminars inHhematology. 47 (2), 115-123 (2010).
- Orange, J. S. Formation and function of the lytic NK-cell immunological synapse. Nature Reviews Immunology. 8 (9), 713-725 (2008).
- Bonnema, J. D., Karnitz, L. M., Schoon, R. A., Abraham, R. T., Leibson, P. J. Fc receptor stimulation of phosphatidylinositol 3-kinase in natural killer cells is associated with protein kinase C-independent granule release and cell-mediated cytotoxicity. The Journal of Experimental Medicine. 180 (4), 1427-1435 (1994).
- Jiang, K., et al. Pivotal role of phosphoinositide-3 kinase in regulation of cytotoxicity in natural killer cells. Nature Immunology. 1 (5), 419-425 (2000).
- Kanakaraj, P., et al. Phosphatidylinositol-3 kinase activation induced upon Fc gamma RIIIA-ligand interaction. The Journal of Experimental Medicine. 179 (2), 551-558 (1994).
- Orange, J. S., Harris, K. E., Andzelm, M. M., Valter, M. M., Geha, R. S., Strominger, J. L. The mature activating natural killer cell immunologic synapse is formed in distinct stages. Proceedings of the National Academy of Sciences. 100 (24), 14151-14156 (2003).
- Liu, S. D., et al. Afucosylated Antibodies Increase Activation of FcγRIIIa-Dependent Signaling Components to Intensify Processes Promoting ADCC. Cancer Immunology Research. 3 (2), 173-183 (2015).
- Romeo, V., Gierke, S., Edgar, K. A., Liu, S. D. Effects of PI3K Inhibition on Afucosylated Antibody-Driven FcγRIIIa Events and Phospho-S6 Activity in NK Cells. The Journal of Immunology. 203 (1), 137-147 (2019).
- Mössner, E., et al. Increasing the efficacy of CD20 antibody therapy through the engineering of a new type II anti-CD20 antibody with enhanced direct and immune effector cell-mediated B-cell cytotoxicity. Blood. 115 (22), 4393-4402 (2010).
- Shields, R. L., et al. Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human Fcgamma RIII and antibody-dependent cellular toxicity. The Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. The absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. The Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Junttila, T. T., et al. Superior In vivo Efficacy of Afucosylated Trastuzumab in the Treatment of HER2-Amplified Breast Cancer. Cancer Research. 70 (11), 4481-4489 (2010).
- Goede, V., et al. Obinutuzumab (GA101) plus chlorambucil (Clb) or rituximab (R) plus Clb versus Clb alone in patients with chronic lymphocytic leukemia (CLL) and preexisting medical conditions (comorbidities): Final stage 1 results of the CLL11 (BO21004) phase III trial. Journal of Clinical Oncology. 31, 15_suppl 7004(2013).
- Sehn, L. H., et al. Randomized Phase II Trial Comparing Obinutuzumab (GA101) With Rituximab in Patients with Relapsed CD20+ Indolent B-Cell Non-Hodgkin Lymphoma: Final Analysis of the GAUSS Study. Journal of Clinical Oncology. 33 (30), 3467-3474 (2015).
- Pons-Tostivint, E., Thibault, B., Guillermet-Guibert, J. Targeting PI3K Signaling in Combination Cancer Therapy. Trends in Cancer. 3 (6), 454-469 (2017).
- Engelman, J. A. Targeting PI3K signalling in cancer: opportunities, challenges and limitations. Nature Reviews. Cancer. 9 (8), 550-562 (2009).
- Fruman, D. A., Rommel, C. PI3K and cancer: lessons, challenges and opportunities. Nature Reviews. Drug Discovery. 13 (2), 140-156 (2014).
- Janku, F., Yap, T. A., Meric-Bernstam, F. Targeting the PI3K pathway in cancer: are we making headway. Nature Reviews. Clinical Oncology. 15 (5), 273-291 (2018).
- Samuels, Y., et al. High frequency of mutations of the PIK3CA gene in human cancers. Science. 304 (5670), New York, N.Y. 554(2004).
- Kanevskiy, L. M., Telford, W. G., Sapozhnikov, A. M., Kovalenko, E. I. Lipopolysaccharide induces IFN-γ production in human NK cells. Frontiers in Immunology. 4, (2013).
- Romagnani, C., et al. Activation of human NK cells by plasmacytoid dendritic cells and its modulation by CD4+ T helper cells and CD4+ CD25hi T regulatory cells. European Journal of Immunology. 35 (8), 2452-2458 (2005).
- Sivori, S., et al. CpG and double-stranded RNA trigger human NK cells by Toll-like receptors: Induction of cytokine release and cytotoxicity against tumors and dendritic cells. Proceedings of the National Academy of Sciences. 101 (27), 10116-10121 (2004).
- Hanna, J., et al. Novel Insights on Human NK Cells' Immunological Modalities Revealed by Gene Expression Profiling. The Journal of Immunology. 173 (11), 6547-6563 (2004).
- Swanson, B. J., Murakami, M., Mitchell, T. C., Kappler, J., Marrack, P. RANTES production by memory phenotype T cells is controlled by a posttranscriptional, TCR-dependent process. Immunity. 17 (5), 605-615 (2002).
- Jo, M., Kwon, H. S., Lee, K. H., Lee, J. C., Jung, S. T. Engineered aglycosylated full-length IgG Fc variants exhibiting improved FcγRIIIa binding and tumor cell clearance. mAbs. 10 (2), 278-289 (2018).
- Isoda, Y., et al. Importance of the Side Chain at Position 296 of Antibody Fc in Interactions with FcγRIIIa and Other Fcγ Receptors. PLoS ONE. 10 (10), 0140120(2015).
Перепечатки и разрешения
