Разработан метод прямого скрининга жидкостных культур (ДЛК), который значительно сокращает время, необходимое для опосредованного полиэтиленгликолем (ПЭГ) протопласта нитчатого гриба Aspergillus oryzae при использовании для оценки секреторной продукции гетерологичных белков. Этот метод значительно увеличивает пропускную способность протокола оценки.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Прямой скрининг жидкостных культур для оценки продукции гетерологичных белков с использованием ауксотрофного мутанта Aspergillus oryzae
В этой статье
Краткое содержание
Аннотация
Aspergillus oryzae, нитчатый гриб, является одним из наиболее широко используемых хозяев для промышленного применения, включая крупномасштабное производство белков. Метод трансформации протопластов, опосредованный полиэтиленгликолем (ПЭГ), обычно используется для введения гетерологичных генов в A. oryzae. Традиционный метод обычно требует трех недель для скрининга благоприятных трансформаторов. Здесь представлен новый метод, метод прямого скрининга с использованием жидкостных культур (DLC), который сокращает время скрининга до шести дней в формате 200 мл или до 10 дней в формате 24 лунок на микропланшетах. Метод скрининга DLC обеспечивает получение положительных трансформантов и оценку секреторной продукции гетерологичных белков за один этап, в отличие от традиционного метода скрининга, где для одного и того же требуются два отдельных этапа. Описан протокол ПЭГ-опосредованного преобразования протопластов A. oryzae , который состоит из пяти этапов: приготовление свежей споровой суспензии, прекультура, подготовка протопластов, введение ДНК и DLC-скрининг. Для получения успешных результатов при скрининге DLC крайне важно использовать богатую питательными веществами среду с оптимизированным осмотическим давлением. Протокол должен еще больше популяризировать использование A. oryzae в качестве предпочтительного хозяина в промышленном производстве белков.
Введение
Aspergillus oryzae — важный микроорганизм в японской пищевой промышленности, который уже более 1 000 лет используется в производстве ферментированных продуктов, таких как саке (рисовое вино), сёю (соевый соус) и мисо (соевая паста)1,2. Он обладает способностью выделять большое количество белков, таких как протеазы и амилазы3. Также доступна информация о последовательности генома A. oryzae 4. Более того, для этого гриба были созданы мощные и практически полезные методы генной инженерии 5,6,7,8,9,10. Благоприятные трансформанты были использованы в качестве хозяев для секреторной продукции гетерологичных белков 11,12,13,14.
Электропорация, агробактериально-опосредованная трансформация и протопласт-опосредованная полиэтиленгликоль (ПЭГ) трансформация являются методами, используемыми для введения гетерологичных генов в A. oryzae 15,16,17. ПЭГ-опосредованный метод трансформации протопластов широко используется с тех пор, как в 1979-1979 гг. впервые был описан метод трансформации протопластов. В этом методе протопласты получают и смешивают с ПЭГ и гетерологичным геном, который должен быть введен в клетки. Стенки протопластов ферментативно скомпрометированы, что делает клетки уязвимыми к физическим нагрузкам и изменениям осмотического давления19,20. Традиционный метод скрининга, используемый при производстве секреторных гетерологичных белков, включает три этапа: получение положительных трансформантов (на мягкой агаровой пластине), отбор истинных и ложных трансформантов (на агаровой пластине) и оценка секреторной продукции гетерологичных белков (в жидкой культуре); каждый из этих шагов занимает семь дней (рисунок 1). Таким образом, традиционный метод обычно требует около трех недель.
Время, необходимое для скрининга трансформированных клеток A. oryzae , намного больше, чем для других микроорганизмов, обычно используемых в биотехнологических исследованиях, что делает процесс более громоздким. Например, при использовании Escherichia coli в качестве хозяина от введения ДНК до подтверждения ее эффекта21 проходит примерно два дня.
Чтобы обойти ограничение, связанное с использованием A. oryzae , как упоминалось выше, в настоящее время введен новый метод прямого скрининга на жидкостных культурах (DLC), который позволяет проводить более быстрый и простой скрининг для оценки секреторной продукции гетерологичных белков (рис. 1). В методе DLC используется уридин ауксотрофный мутант и богатая питательными веществами жидкая среда. Используя этот метод, этап скрининга может быть завершен в течение шести дней после введения ДНК в протопласты в формате 200 мл или в течение 10 дней в формате микропланшетов с 24 лунками. Кроме того, при этом методе не требуется трудоемкая и трудоемкая подготовка агарового тарелочного материала. Использование нового метода имеет огромное преимущество, особенно учитывая тот факт, что традиционный метод требует двух различных сред: мягкой агаровой пластины для получения положительных трансформаторов, которая требует осторожного обращения и контроля температуры, и твердой агаровой пластины для выбора истинных трансформаторов.
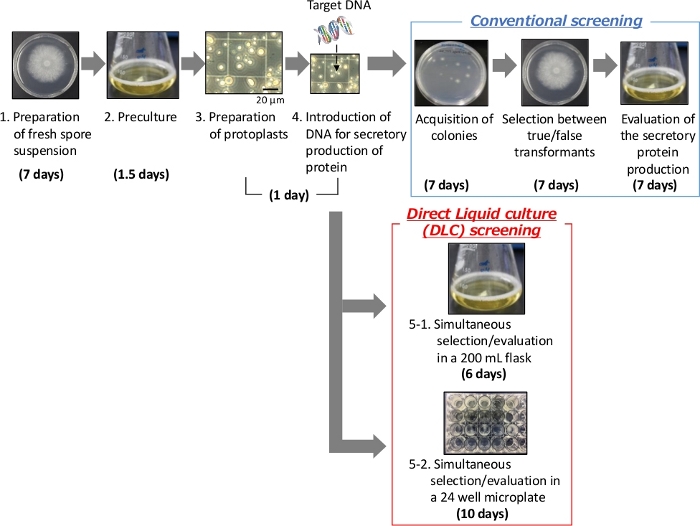
Рисунок 1: Схема опосредованного полиэтиленгликолем (ПЭГ) протопластного превращения нитчатого гриба Aspergillus oryzae.
(Верхняя панель) Традиционный метод скрининга. (Нижняя панель) Метод прямого скрининга жидкостных культур (DLC). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
1. Приготовление свежей споровой суспензии
- Инокулируйте 20 мкл суспензии спор (1 x 10⁷ спор/мл) в центр культурального планшета, содержащего среду Чапек-Докса (CD), 20 мМ уридина (автоклавированного при 121 °C в течение 20 мин, табл. 1).
- Инкубировать при 30 °C в течение 7 дней, чтобы способствовать образованию спор.
- Добавьте 1,5 мл 0,01 % раствора Tween 20 (автоклавированного при 121 °C в течение 20 мин) в культуральную пластину, содержащую споры, и суспензируйте споры путем соскабливания с помощью распространителя клеток.
- Соберите споровую суспензию в стерильную микроцентрифужную пробирку объемом 1,5 мл с помощью пипетки.
- Хранить суспензию при температуре 4 °C до использования.
ПРИМЕЧАНИЕ: Используйте споровую суспензию в следующей процедуре в течение 2 недель. Чтобы сделать запас для длительного хранения, добавьте в споровую суспензию глицерин до конечной концентрации 15% и храните при температуре -80 °С.
2. Предкультура
- Добавьте 100 мл среды полипептон-декстрин (ПД) (табл. 2) в колбу Эрленмейера объемом 500 мл и автоклавируйте при 121 °C в течение 20 мин.
- После подтверждения того, что температура среды снижена, добавляют раствор уридина, стерилизованный путем пропускания через фильтр с размером пор 0,22 мкм, до конечной концентрации 20 мМ.
- Добавьте 200 мкл споровой суспензии (1 x 10⁷ спор/мл), приготовленной на стадии 1.4, и инкубируйте при 30 °C с встряхиванием при 120 об/мин в течение 36 ч.
3. Приготовление протопластов
- Грибную биомассу, приготовленную на шаге 2.3, собирают на стеклянном фильтре с размером пор 30 мкм (автоклавируют при 121 °C в течение 20 мин).
- Налейте 100 мл дистиллированной воды (DW) (автоклавированной при 121 °C в течение 20 минут) на стеклянный фильтр и несколько раз перемешайте шпателем (автоклавированной при 121 °C в течение 20 минут).
- После промывки DW налейте на стеклянный фильтр 100 мл буфера хлорида натрия (NaCl) (автоклавированного при 121 °C в течение 20 мин, табл. 3) и несколько раз перемешайте шпателем.
- Перенесите около 1−2 мл (влажный объем) клеток в коническую пробирку объемом 50 мл с помощью шпателя (автоклавированную при 121 °C в течение 20 мин).
- После добавления 15 мл раствора фермента (стерилизованного путем пропускания через фильтр размером пор 0,22 мкм, табл. 4) в коническую пробирку объемом 50 мл добавляют буфер NaCl до тех пор, пока общий объем не достигнет 30 мл.
- Закройте крышку и запечатайте парафиновой пленкой. Инкубировать при 30 °C с встряхиванием при 60 об/мин в течение 2 ч.
- Пропустите полученный раствор через клеточное сетчатое фильтр 70 мкм, прикрепленное к конической трубке объемом 50 мл, чтобы удалить непрореагировавший мицелий.
- Центрифугируйте раствор протопласта в конической пробирке объемом 50 мл при температуре 2 150 x g и 4 °C в течение 20 минут.
- Аккуратно выбросьте надосадочную жидкость, чтобы предотвратить смещение гранул. Добавьте 1 мл холодно стерилизованного раствора B (автоклавированного при 121 °C в течение 20 мин, табл. 5) и аккуратно суспендируйте осажденные протопласты путем пипетирования.
- Перенесите взвешенные протопласты в стерильную пробирку объемом 1,5 мл.
- Центрифугируйте при температуре 2,220 x g и 4 °C в течение 5 мин и удалите надосадочную жидкость. Затем добавьте 1 мл ледяного раствора B и аккуратно подспендируйте гранулу с помощью пипетирования.
- Повторите шаг 3.9.
- С помощью гемоцитометра измерьте количество протопластов под микроскопом.
- Приготовьте суспензию протопластов (1−3 х 10,7 протопластов/мл) в растворе В и храните ее на льду до использования.
ПРИМЕЧАНИЕ: Используйте суспензию протопластов немедленно в следующей процедуре.
4. Введение ДНК для секреторной продукции белка
- Используя в качестве матрицы плазмиду, содержащую ДНК-кассету для секреторного производства белка, амплифицируйте фрагмент ДНК, необходимый для секреторного производства, методом ПЦР.
- Подготовьте образец ДНК для использования для трансформации путем обработки продукта ПЦР с помощью набора для очистки ПЦР.
- Добавьте 1 мл раствора протопласта, 200 мкл раствора C (автоклавированного при 121 °C в течение 20 мин, табл. 6) и 50 мкл образца ДНК (0,5−1 мкг/мкл) в стерильную, предварительно охлажденную коническую пробирку объемом 15 мл и аккуратно перемешайте раствор с помощью пипетирования.
ПРИМЕЧАНИЕ: Раствор C обладает высокой вязкостью и может быть сложным в обращении; Обеспечьте тщательное перемешивание с помощью пипетирования. - Инкубируйте трубку на льду в течение 30 минут.
- Добавьте 1,5 мл раствора С, аккуратно перемешайте с помощью пипетирования, а затем оставьте раствор при комнатной температуре на 20−30 минут.
5. Прямой скрининг жидких культур
ПРИМЕЧАНИЕ: Выберите систему культивирования с помощью колб Эрленмейера (раздел 5.1) или микропланшетов (раздел 5.2).
- Система культивирования с использованием колбы Эрленмейера объемом 200 мл
- Добавьте 50 мл среды PD, содержащей 0,8 М сорбита, в колбу Эрленмейера объемом 200 мл и стерилизуйте автоклавированием при 121 °C в течение 20 мин.
- После подтверждения того, что температура среды снижена, добавляют приготовленную на этапе 4.5 суспензию протопластов до конечной концентрации 1 х 105 протопластов/мл.
- Инкубируют культуру в течение 6 дней при 30 °С с встряхиванием при 120 об/мин.
- Соберите 1 мл среды и храните в пробирке объемом 1,5 мл при температуре 4 °C. Храните образец культуры при температуре -20 °С, если не анализируйте сразу.
- Смешать 20 мкл образца культуры и 20 мкл буфера для образца додецилсульфата натрия (ПДС) (табл. 7) в пробирке объемом 1,5 мл и кипятить при температуре 95 °С в течение 5 мин.
- После охлаждения на льду загрузите 20 мкл кипяченого образца и 5 мкл предварительно окрашенного стандарта белка в сборный гель и проанализируйте секреторную продукцию целевого гетерологичного белка методом электрофореза в геле додецилсульфата натрия и полиакриламида (SDS-PAGE)10.
- Система культивирования с использованием 24-луночного микропланшета
- Приготовленную на этапе 4.5 суспензию протопластов добавить в стерилизованную среду с содержанием сорбитола 0,8 М до конечной концентрации 1 x 10⁵ протопластов/мл и аккуратно перемешать с помощью пипетирования.
- Добавьте 1 мл приготовленного на шаге 5.2.1 раствора в три лунки в микропланшет на 24 лунки.
- Закройте крышкой и выдерживайте при температуре 30 °C с встряхиванием при 175 об/мин в течение 10 дней.
- Соберите 1 мл среды и храните в пробирке объемом 1,5 мл при температуре 4 °С. Храните образец культуры при температуре -20 °С, если не анализируйте сразу.
- Смешать 20 мкл образца культуры и 20 мкл буфера для образца SDS в пробирке объемом 1,5 мл и кипятить при 95 °C в течение 5 мин.
- После охлаждения на льду загрузите 20 мкл кипяченого образца и 5 мкл предварительно окрашенного стандартного белка в сборный гель и проанализируйте секреторную продукцию целевого гетерологичного белка с помощью SDS-PAGE10.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Ниже описаны результаты введения кассеты экспрессии ДНК, кодирующей целлобиогидролазу Talaromyces cellulolyticus cellobiohydrolase (CBH: GenBank Accession Number E39854), в уридиновый ауксотроф штамма A. oryzae HO422 и скрининга на секреторную продукцию гетерологичного белка.
Приготовление свежей споровой суспензии
Конечный выход споровой суспензии с одной агаровой пластины составил 1 мл (1 х 107 ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Мы разработали систему, которая позволяет проводить скрининг трансформантов A. oryzae быстрее, чем традиционным методом, путем проведения жидкой культуры протопластов. Наиболее важным аспектом этого метода является осмотическое давление жидкой среды. Осмотическое давление, пригодное для жидкой культуры, оптимизировали с помощью сорбита. Рост штамма A. oryzae HO4 был наиболее активным в присутствии 0,8 М сорбита (рис. 3А). При традиционном с...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Авторы выражают благодарность Ринкею Окано за помощь в проведении экспериментов. Авторы благодарят профессора Кацуя Гоми из Университета Тохоку и профессора Масаюки Матиду из Технологического института Канадзавы за ценные дискуссии. Эта работа была профинансирована Honda Research Institute Japan Co., Ltd.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 1 М NaOH | NACALAI TESQUE, INC. | 37421-05 | |
| 1 м трис-HCl (pH 7,5) | FUJIFILM Wako Pure Chemical Corporation | 318-90225 | |
| 1 M Tris-HCl (pH 6,8) | FUJIFILM Wako Pure Chemical Corporation | 2106-100 | |
| 1,5-мл микроцентрифужная трубка | AS ONE Corporation | 1-1600-03 | |
| 15-мл коническая центрифужная трубка | Becton, Dickinson and Company | 352196 | |
| 2- меркаптоэтанол | Bio-Rad Laboratories, Inc. | ||
| 24-луночный микропланшет | AGC TECHNO GLASS CO., LTD. | 3820-024 | |
| Коническая центрифужная трубка 50 мл | Becton, Dickinson and Company | 352070 | |
| 70-&микро; m Сетчатый фильтр | Becton, Dickinson and Company | 352350 | |
| Агар | FUJIFILM Wako Pure Chemical Corporation | 010-15815 | |
| Автоклав | TOMY SEIKO CO., LTD. | LSX-700 | |
| Бромфенол синий | FUJIFILM Wako Pure Chemical Corporation | 021-02911 | |
| CaCl2 | FUJIFILM Wako Pure Chemical Corporation | 038-24985 | |
| Казаминокислота | FUJIFILM Wako Pure Chemical Corporation | 393-02145 | |
| Целлюлаза R-10 | Cosmo Bio Co., Ltd. | 16419 | |
| Гидрат декстрина | FUJIFILM Wako Pure Chemical Corporation | 044-00585 | |
| D-сорбит | FUJIFILM Wako Pure Chemical Corporation | 191-14735 | |
| e-PAGEL | ATTO CORPORATION | E-T/R1020L | Используется для сборного геля в |
| устройстве для электрофореза | ATTO CORPORATION | WSE-1150 | Используется для SDS-PAGE |
| FeSO4· 7H2O | FUJIFILM Wako Pure Chemical Corporation | 098-01085 | |
| Стеклянный фильтр 17G3 | Tokyo Garasu Kikai Co., Ltd. | ||
| Глицерин | FUJIFILM Wako Pure Chemical Corporation | 070-04941 | |
| Гемоцитометр | Funakoshi Co., Ltd. | 521-10 | |
| Высокоскоростная рефрижераторная центрифуга | KUBOTA CORPORATION | 7780 | Используется для центрифугирования образцов в конических центрифужных пробирках объемом 50 мл |
| Инкубатор | TAITEC CORPORATION. | G· BR-200 | Используется для культивирования жидких колб и приготовления протопластов |
| в инкубаторе | TAITEC CORPORATION. | BR-43FL | Используется для жидкостной культуры микропланшетов и планшетной культуры |
| KCl | FUJIFILM Wako Pure Chemical Corporation | 163-03545 | |
| KH2PO4 | NACALAI TESQUE, INC. | 28721-55 | |
| Лизирующий фермент | Sigma-Aldrich | L1412-10G | |
| MgSO4· 7H2O | FUJIFILM Wako Pure Chemical Corporation | 131-00405 | |
| Микроцентрифуга для охлаждения | KUBOTA CORPORATION | 3740 | Используется для центрифугирования образцов в микроцентрифужных пробирках объемом 1,5 мл |
| Микроскоп | Leica Microsystems | DMI6000 B | |
| NaCl | FUJIFILM Wako Pure Chemical Corporation | 190-13921 | |
| 2PO4· 2H2O | NACALAI TESQUE, INC. | 31718-15 | |
| NaNO3 | FUJIFILM Wako Pure Chemical Corporation | 195-02545 | |
| Parafilm M | Bemis Company, Inc | PM-996 | |
| Набор для очистки ПЦР | QIAGEN K.K | 28104 | |
| Чашка Петри | Sumitomo Bakelite Co., Ltd. | MS-11900 | Используется в качестве культивальной пластины |
| полиэтиленгликоль | Sigma-Aldrich | P3640-500G | |
| Полипептонный пептон | Becton, Dickinson and Company | 211910 | |
| Белковые лестницы | Bio-Rad Laboratories, Inc. | 161-0377 | Используется в качестве маркера молекулярной массы в SDS-PAGE |
| Sodium dodecyl sulfate | Bio-Rad Laboratories, Inc. | ||
| Стерильный фильтр | Merck KGaA | SLGP033RB | |
| сахарозы | NACALAI TESQUE, INC. | 30404-45 | |
| Твин 20 | Токио Кемикал Индастри Ко., Лтд. | T0543 | |
| Уридин | Сигма-Олдрич | U3750-25G | |
| Яталасе | Такара Био Инк. | Т017 |
Ссылки
- Tsuboi, H., et al. Improvement of the Aspergillus oryzae enolase promoter (P-enoA) by the introduction of cis-element repeats. Bioscience, Biotechnology, and Biochemistry. 69, 206-208 (2005).
- Nemoto, T., Maruyama, J. -I., Kitamoto, K. Contribution ratios of amyA, amyB, amyC genes to high-level α-amylase expression in Aspergillus oryzae. Bioscience, Biotechnology, and Biochemistry. 76, 1477-1483 (2012).
- Shinkawa, S., Mitsuzawa, S. Feasibility study of on-site solid-state enzyme production by Aspergillus oryzae. Biotechnology for Biofuels. 13, 31(2020).
- Machida, M., et al. Genome sequencing and analysis of Aspergillus oryzae. Nature. 438 (7071), 1157-1161 (2005).
- Veenstra, A. E., van Solingen, P., Bovenberg, R. A. L., vander Voort, L. H. M. Strain improvement of Penicillium chrysogenum by recombinant DNA techniques. Journal of Biotechnology. 17 (1), 81-90 (1991).
- Takahashi, T., Masuda, T., Koyama, Y. Enhanced gene targeting frequency in ku70 and ku80 disruption mutants of Aspergillus sojae and Aspergillus oryzae. Molecular Genetics and Genomics. 275 (5), 460-470 (2006).
- Mizutani, O., et al. A defect of LigD (human Lig4 homolog) for nonhomologous end joining significantly improves efficiency of gene-targeting in Aspergillus oryzae. Fungal Genetics and Biology. 45 (6), 878-889 (2008).
- Bergès, T., Barreau, C. Isolation of uridine auxotrophs from Trichoderma reesei and efficient transformation with the cloned ura3 and ura5 genes. Current Genetics. 19 (5), 359-365 (1991).
- Takeno, S., et al. Cloning and sequencing of the ura3 and ura5 genes, and isolation and characterization of uracil auxotrophs of the fungus Mortierella alpina 1S-4. Bioscience, Biotechnology, and Biochemistry. 68 (2), 277-285 (2004).
- Ji, Y. W., et al. Application of membrane filtration method to isolate uninuclei conidium in Aspergillus oryzae transformation system based on the pyrG marker. Food Science and Biotechnology. 22 (1), 93-97 (2013).
- Mitsuzawa, S., Fukuura, M., Shinkawa, S., Kimura, K., Furuta, T. Alanine substitution in cellobiohydrolase provides new insights into substrate threading. Scientific Reports. 7 (1), 16320(2017).
- Fleissner, A., Dersch, P. Expression and export: recombinant protein production systems for Aspergillus. Applied Microbiology and Biotechnology. 87, 1255-1270 (2010).
- Yoon, J., Maruyama, J. -I., Kitamoto, K. Disruption of ten protease genes in the filamentous fungus Aspergillus oryzae highly improves production of heterologous proteins. Applied Microbiology and Biotechnology. 89, 747-759 (2011).
- Lin, H., et al. Engineering Aspergillus oryzae A-4 through the chromosomal insertion of foreign cellulase expression cassette to improve conversion of cellulosic biomass into lipids. PLoS One. 9, 108442(2014).
- Chakraborty, B. N., Patterson, N. A., Kapoor, M. An electroporation-based system for high-efficiency transformation of germinated conidia of filamentous fungi. Canadian Journal of Microbiology. 37 (11), 858-863 (1991).
- Sun, Y., et al. A dual selection marker transformation system using Agrobacterium tumefaciens for the industrial Aspergillus oryzae 3.042. Journal of Microbiology and Biotechnology. 29 (2), 230-234 (2019).
- Gomi, K., Iimura, Y., Hara, S. Integrative transformation of Aspergillus oryzae with a plasmid containing the Aspergillus nidulans argB Gene. Agricultural and Biological Chemistry. 51 (9), 2549-2555 (1987).
- Case, M. E., Schweizer, M., Kushner, S. R., Giles, N. H. Efficient transformation of Neurospora crassa by utilizing hybrid plasmid DNA. Proceedings of the National Academy of Sciences of the United States of America. 76 (10), 5259-5263 (1979).
- Lim, F. Y., Sanchez, J. F., Wang, C. C., Keller, N. P. Toward awakening cryptic secondary metabolite gene clusters in filamentous fungi. Methods in Enzymology. 517, 303-324 (2012).
- Li, D., Tang, Y., Lin, J., Cai, W. Methods for genetic transformation of filamentous fungi. Microbial Cell Factories. 16 (1), 168(2017).
- Chung, C. T., Niemela, S. L., Miller, R. H. One-step preparation of competent Escherichia coli: transformation and storage of bacterial cells in the same solution. Proceedings of the National Academy of Sciences of the United States of America. 86 (7), 2172-2175 (1989).
- Shinkawa, S., et al. Base sequence for protein expression and method for producing protein using same. U.S. Patent. , 15/745,030 Application No. 15/745,030. Minato-Ku, Tokyo, Japan (2018).
- Tamano, K., et al. The β-1, 3-exoglucanase gene exgA (exg1) of Aspergillus oryzae is required to catabolize extracellular glucan, and is induced in growth on a solid surface. Bioscience, Biotechnology, and Biochemistry. 71 (4), 926-934 (2007).
- Endo, Y., et al. Novel promoter sequence required for inductive expression of the Aspergillus nidulans endoglucanase gene eglA. Bioscience, Biotechnology, and Biochemistry. 72 (2), 312-320 (2008).
- Kubodera, T., Yamashita, N., Nishimura, A. Pyrithiamine resistance gene (ptrA) of Aspergillus oryzae: cloning, characterization and application as a dominant selectable marker for transformation. Bioscience, Biotechnology, and Biochemistry. 64 (7), 1416-1421 (2000).
- Yamada, O., Lee, B. R., Gomi, K. Transformation system for Aspergillus oryzae with double auxotrophic mutations, niaD and sC. Bioscience, Biotechnology, and Biochemistry. 61 (8), 1367-1369 (1997).
- Nødvig, C. S., Nielsen, J. B., Kogle, M. E., Mortensen, U. H. A CRISPR-Cas9 system for genetic engineering of filamentous fungi. PLoS One. 10 (7), 0133085(2015).
- Shi, T. Q., et al. CRISPR/Cas9-based genome editing of the filamentous fungi: the state of the art. Applied Microbiology and Biotechnology. 101 (20), 7435-7443 (2017).
- Katayama, T., et al. Forced recycling of an AMA1-based genome-editing plasmid allows for efficient multiple gene deletion/integration in the industrial filamentous fungus Aspergillus oryzae. Applied Environmental Microbiology. 85 (3), 01896-01918 (2019).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно