В этой статье описано, как выполнить хирургический метод ингибирования образования эпидермиса раны во время регенерации конечностей аксолотля путем немедленного наложения швов на всю толщину кожи над плоскостью ампутации. Этот метод позволяет исследователям исследовать функциональные роли раневого эпидермиса на ранних стадиях регенерации конечностей.
Методическая статья
Ингибирование образования эпидермиса раны с помощью операции по удалению полного кожного лоскута во время регенерации конечностей аксолотля
В этой статье
Краткое содержание
Аннотация
Классические эксперименты в регенеративной биологии саламандры за последнее столетие давно установили, что раневой эпидермис является важнейшей сигнальной структурой, которая быстро формируется после ампутации и необходима для регенерации конечностей. Однако методы изучения его точной функции на молекулярном уровне в течение последних десятилетий были ограничены из-за нехватки точных функциональных методов и геномной информации, доступной в модельных системах саламандр. Интересно, что недавнее множество технологий секвенирования в сочетании с выпуском различных геномов саламандр и появлением методов функционального генетического тестирования, включая CRISPR, позволяет повторно посетить эти основополагающие эксперименты с беспрецедентным молекулярным разрешением. Здесь я описываю, как выполнить классически разработанную операцию полного кожного лоскута (FSF) у взрослых аксолотлей, чтобы ингибировать образование эпидермиса раны сразу после ампутации. Раневой эпидермис обычно образуется в результате дистальной миграции эпителиальных клеток в коже проксимально к плоскости ампутации, чтобы изолировать рану от внешней среды. Операция влечет за собой немедленное наложение швов на кожу всей толщины (которая включает в себя как эпидермальные, так и дермальные слои) над плоскостью ампутации, чтобы препятствовать миграции эпителиальных клеток и контакту с основными поврежденными мезенхимальными тканями. Успешные операции приводят к ингибированию образования бластемы и регенерации конечностей. Комбинируя этот хирургический метод с современным молекулярным и функциональным анализом, исследователи могут начать раскрывать молекулярные основы функции эпидермиса раны и биологии во время регенерации конечностей.
Введение
С тех пор, как Лаззаро Спалланцани сообщил об этом в 17681 году, регенерация конечностей саламандры была одним из наиболее хорошо изученных природных регенеративных явлений, которое восхищало биологов на протяжении веков. Успешная регенерация конечностей зависит от формирования, роста и последующего формирования недифференцированной клеточной структуры, известной как бластема. Исследователи добились значительных успехов в понимании клеточного состава бластемы, а также того, какие поддерживающие ткани и типы клеток необходимы для ее формирования2,3,4,5,6,7,8,9,10,11,12,13 . Тем не менее, скоординированные сигнальные механизмы между различными тканями и типами клеток, которые приводят к инициации образования бластемы, остаются плохо изученными.
Ключевым требованием для успешного образования и регенерации бластемы является раневой эпидермис, преходящий и специализированный эпителий, который покрывает плоскость ампутации в течение 12 часов после ампутации10. После ампутации эпителиальные клетки из неповрежденной кожи проксимально к травме быстро мигрируют по плоскости ампутации, образуя тонкий раневой эпителий14. По мере того, как бластема образуется в последующие недели, ранний раневой эпидермис развивается в более толстую эпителиальную сигнальную структуру, называемую апикальной эпителиальной шапкой (AEC)15. В то время как кожа нормальной полной толщины содержит как эпителиальный, так и дермальный слой, разделенный базальной пластинкой, раневой эпидермис / AEC состоит только из эпителиального слоя и не имеет базальной пластинки16,17. Отсутствие базальной пластинки и дермы обеспечивает прямой контакт между эпителиальными клетками раны и подлежащими тканями, что облегчает двунаправленную передачу сигналов между двумя компартментами, что имеет решающее значение как для образования бластемы, так и для поддержания 17,18.
Классические экспериментальные исследования разработали различные инновационные хирургические методы для зондирования функции и необходимости эпидермиса / AEC раны путем ингибирования его образования. Эти методы включали наложение швов19 или пересадку кожи полной толщины 20,21 над плоскостью ампутации, немедленное зашивание ампутированной конечности в полость тела22 и непрерывное ежедневное удаление или облучение раннего раневого эпидермиса и AEC23,24. В целом, эти эксперименты не только установили важность раневого эпидермиса / AEC, но и дополнительно определили его роль в раннем гистолизе тканей, а также в поддержании пролиферации клеток-предшественников и бластемального роста13 на протяжении всей регенерации.
Однако эти предыдущие исследования были в значительной степени ограничены гистологическим окрашиванием, а также тритиированными импульсами тимидина для отслеживания пролиферации клеток. Фактически, пересмотр этих классических экспериментов с современными технологиями секвенирования и функциональными методами у саламандр был сделан только недавно и привел к открытию дополнительных ролей для эпидермиса раны в модуляции воспаления и деградации / осаждения ECM на ранних стадиях регенерации25. С высвобождением различных последовательностей генома саламандры и транскриптома26,27,28,29,30,31,32,33,34, а также растущим числом функциональных методов, доступных у видов саламандр11,35,36,37,38 В настоящее время исследователи имеют хорошие возможности для того, чтобы начать разгадывать молекулярные механизмы, приводящие к образованию, функции и развитию эпидермиса раны.
К сожалению, некоторые из этих классических методов, используемых для ингибирования образования эпидермиса раны, являются технически сложными, представляя трудности для воспроизводимости между биологическими репликами в одном и том же эксперименте. Например, поддержание кожных трансплантатов может быть сложной задачей, поскольку трансплантаты могут в конечном итоге упасть с конечности хозяина, а ежедневное удаление раневого эпидермиса / AEC затруднено без повреждения подлежащих тканей. Кроме того, зашивание ампутированной конечности в полость тела является сложной задачей, а также требует дополнительной травмы в месте введения. С другой стороны, наложение швов на всю толщину кожи непосредственно над плоскостью ампутации относительно просто, технически воспроизводимо и приводит к минимальному повреждению тканей. Этот хирургический метод полного кожного лоскута (FSF) был ранее разработан Энтони Мешером в 1976 году у взрослых тритонов (Notophthalmus viridiscens). Он продемонстрировал, что операция FSF ингибирует формирование и функцию эпидермиса раны, запрещая как миграцию эпителиальных клеток над плоскостью ампутации, так и прямой контакт между эпителиальными клетками и подлежащими тканями.
Здесь эта хирургическая процедура показана шаг за шагом с использованием конечности аксолотля. В сочетании с современными молекулярными технологиями и технологиями секвенирования этот метод может оказаться очень полезным для исследователей, чтобы углубить наше понимание формирования и функции эпидермиса / AEC раны во время регенерации конечностей.
Протокол
Все эксперименты на животных проводились в соответствии с IACUC (Протокол No: 11-32) и руководящими принципами AAALAC в Гарвардском университете.
1. Подготовка растворов и настройка для анестезии и восстановления
- Готовят свежий 0,1% раствор трикаина для анестезии и 0,5% раствор сульфамеразина натриевой соли для восстановления. Сделайте растворы с использованием воды, пригодные для выращивания аксолотля37 в соответствии с утвержденными протоколами IACUC в соответствующем научно-исследовательском учреждении (например, модифицированное решение Holtfreter). Убедитесь, что растворы хорошо перемешаны и что подготовлен достаточный объем для того, чтобы погрузить весь аксолотль.
- Для приготовления 0,1% раствора трикаина смешайте 1 г трикаина и 1 г бикарбоната натрия с 1 л воды. Раствор может быть увеличен в соответствии с этим рецептом.
- Для приготовления 0,5% раствора натриевой соли сульфамеразина смешайте 5 г сульфамеразина натриевой соли с 1 л воды. Раствор может быть увеличен в соответствии с этим рецептом. Раствор сульфамеразина является антибиотиком, который предотвратит бактериальную инфекцию во время хирургического восстановления.
- Продезинфицируйте хирургическую область, опрыскивая ее Clidox-S или 70% этанолом. Стерилизовать хирургические инструменты (щипцы, рассекающие ножницы, пружинные ножницы) методом автоклавирования. Если вы выполняете несколько операций, обязательно стерилизуйте хирургические инструменты горячим стерилизатором из бисера между животными.
- Чтобы создать зону восстановления, поместите 15-сантиметровую чашку Петри или любой контейнер, который поместится аксолотлю поверх ведра, наполненного влажным льдом. Наполните чашку Петри низким уровнем 0,5% раствора сульфамеразина натриевой соли, достаточно, чтобы аксолотль не был полностью погружен. Восстановление на льду после операции замедлит движение животного, пока оно пробуждается от анестезии, позволяя заживленной области заживать относительно спокойно.
ПРИМЕЧАНИЕ: Эта настройка может быть настроена исследователями в зависимости от того, какие материалы у них есть.
2. Выполнение хирургической процедуры полного лоскута кожи
- Обезболивают аксолотль, погружая его в емкость с 0,1% раствором трицина. Это займет примерно 15-20 минут. Убедитесь, что аксолотль действительно полностью обезболен, выполнив защемление хвоста. Если нет ответа от аксолотля, приступайте к операции.
ПРИМЕЧАНИЕ: Используйте более старые, более крупные аксолотли для этой операции (размером не менее 15 см). Убедитесь, что аксолотль остается хорошо увлажненным на протяжении всей операции, периодически смачивая кожу водой системы аксолотля с помощью пластиковой пипетки. Убедитесь, что вы асептически подготовили хирургический участок, орошая область стерильным PBS перед операцией. Животное также должно быть помещено на стерильную хирургическую драпировку для процедуры. - Выполняют ампутацию конечности на дистальном конце цеугоподиальных скелетных элементов с помощью рассекающих ножниц (рисунок 1.1).
- С помощью пружинных ножниц сделайте небольшой разрез (примерно 2 мм) на вентральной части кожи (рисунок 1.2).
- Используя щипцы, аккуратно отшелушите кожу примерно до средней линии цеугоподиальных скелетных элементов, обнажая подлежащие ткани конечностей (мышцы, кости и т. Д.). (Рисунок 1.3). Следите за тем, чтобы не повредить кожу. См. примечание после шага 2.8.
- Ампутировать обнаженные подлежащие ткани конечностей на средней линии зевгопода с помощью хирургических ножниц (рисунок 1.4).
- Оттолкните мышечную ткань хирургическими ножницами и обрежьте открытую кость.
ПРИМЕЧАНИЕ: Это необходимо для обеспечения улучшенного заживления, а также для увеличения успеха операции, поскольку выступающая кость может быть зазубрена против зашитого лоскута и нарушить целостность неповрежденного кожного лоскута в дальнейшем. - Используя щипцы, осторожно потяните кожу дополнительной полной толщины над плоскостью ампутации, чтобы покрыть открытые подлежащие ткани и зашить на месте, соединившись с вентральной кожей полной толщины (рисунок 1.5).
- Зашить оставшуюся правую и левую стороны кожи лоскутом в нижележащие вентральные участки неповрежденной кожи. Это можно сделать, либо зашивая стороны лоскута «крест-накрест» (рекомендуется) (рисунок 1.6-1.9), либо просто зашивая прямо в вентральную кожу. Используйте щипцы и изогнутые пружинные ножницы для наложения швов. Убедитесь, что не видно открытых подлежащих тканей и что швы завязаны плотно (завязаны по крайней мере три раза).
ПРИМЕЧАНИЕ: Крайне важно, чтобы неповрежденная кожа не была повреждена на шагах 2.4, 2.7-2.8. Мы обнаружили, что повреждение кожи полной толщины коррелирует с неудачными операциями, так как участки повреждения все еще могут образовывать небольшой раневой эпидермис. Если возможно, попробуйте использовать более тусклую пару щипцов при обработке кожного лоскута полной толщины. - Выполните ампутацию контралатеральной конечности (необязательный внутренний контроль животного), ампутируя ее на уровне среднего зевгопода хирургическими ножницами. Оттолкните мышечную ткань хирургическими ножницами и обрежьте открытую кость.
ПРИМЕЧАНИЕ: Внутренний контралатеральный контроль конечностей может быть выполнен для лучшей оценки успеха операции во время шага 4 у того же животного. Однако ампутация той же конечности у отдельного животного также может быть использована в качестве контроля.
3. Послеоперационное восстановление и уход
- Как только операция будет завершена, поместите Kimwipe или стерильное бумажное полотенце на дно контейнера или чашки Петри, чтобы намочить его. Поместите животное в контейнер на влажный лед и аккуратно оберните открытые концы Кимвипа или бумажного полотенца вокруг верхней части животного, чтобы оно было хорошо увлажнено раствором сульфамеразина. Оставить на влажном льду от 30 минут до 1 часа, чтобы обеспечить минимальное движение во время восстановления после анестезии.
- Поместите животное в статический контейнер с 0,5% раствором сульфамеразина. Аксолотли должны оставаться в этом растворе в течение первых 24 часов, чтобы предотвратить инфекцию.
- Поместите аксолотль в обычную системную воду и ежедневно следите за состоянием здоровья. Убедитесь, что швы не выпадают каждый день, так как это может привести к образованию небольшого раневого эпидермиса, что приведет к путанице в результатах.
ПРИМЕЧАНИЕ: Убедитесь, что в контейнере корпуса достаточно места для перемещения аксолотля, и сведите к минимуму вероятность того, что зашитая конечность на аксолотле может вступить в контакт с боковыми сторонами контейнера. Это поможет гарантировать, что швы останутся на месте, особенно в течение первой недели после операции.
4. Оценка успешности операции под стереомикроскопом
ПРИМЕЧАНИЕ: Мы рекомендуем проверять животных под стереомикроскопом не реже одного раза в неделю, чтобы оценить целостность полного лоскута кожи и успех операции.
- Обезболивают аксолотль в 0,1% трикаина, как на этапе 2.1. Убедитесь, что в контейнере достаточно места для перемещения аксолотля.
- При осмотре в течение первых двух недель после операции осмотрите шовную конечность с помощью стереомикроскопа, чтобы убедиться, что швы не выскочили и что нигде не виден прозрачный тонкий раневой эпидермис. При осмотре на третьей неделе после операции или позже убедитесь, что бластема не сформировалась, и сравните с тем, как нормальная контрольная ампутированная конечность (либо у того же животного, либо у другого животного) прогрессировала во время регенерации (т. Е. Сформировалась ли бластема).
- Когда это будет сделано, верните аксолотль к нормальным системам водоснабжения и условий ведения хозяйства.
Результаты
Этот хирургический протокол позволит полностью ингибировать формирование раневого эпидермиса (рисунок 1) и, в конечном счете, регенерацию конечностей. Успешная операция приводит к отсутствию образования бластемы примерно через 2-3 недели в зависимости от размера животного, в то время как контрольные регенерирующие конечности должны нормально образовывать бластему.
Исследователи должны осматривать зашитую конечность невооруженным глазом каждые 2-3 дня, чтобы убедиться, что швы не выскочили и что не образуется бластема. Если один или несколько швов выскакивают, раневой эпидермис все еще может образоваться, что приводит к небольшой или большой бластеме и неудачной операции (рисунок 2). Кроме того, исследователи должны осматривать зашитую конечность не реже одного раза в неделю под стереомикроскопом, чтобы убедиться, что тонкий раневой эпидермис не проявляется нигде на поверхности ампутации. Для сравнения, исследователи должны также изучить контрольную регенерирующую конечность, которая должна иметь раневой эпидермис над плоскостью ампутации и образовывать бластему в течение 2-3 недель. Раневой эпидермис будет казаться тонким и прозрачным, в то время как нормальная кожа будет казаться более непрозрачной и бледно-розовой (почти белой), светло-желтой или темно-зеленой у лейкозистических, альбиносных или диких аксолотлей соответственно.
Если исследователи хотят собрать ткань до стадии формирования бластемы через 2-3 недели, они должны осмотреть ошённые конечности перед сбором образца, чтобы убедиться, что швы остались на месте и что небольшой раневой эпидермис не сформировался. Кроме того, сечение сагитально через ушную ткань конечности и выполнение гистологических анализов в любой момент времени также может проверить наличие дермы из полного кожного лоскута, окружающего всю плоскость ампутации, и отсутствие раневого эпидермиса (рисунок 3).

Рисунок 1: Схема этапов операции полного лоскута кожи.
Шаги протокола пронумерованы и схемированы здесь. Пунктирные линии обозначают плоскости ампутации на этапах 1 и 3 протокола. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
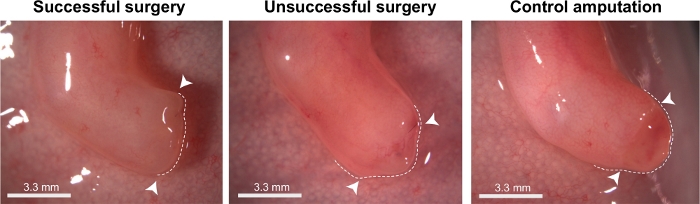
Рисунок 2: Примеры успешных и неудачных операций по полному лоскуту кожи.
Репрезентативное изображение конечности, которая перенесла успешную операцию (слева), неудачную операцию (справа) и контрольную регенерирующую конечность (без операции) через 25 дней после ампутации (dpa). Успешная операция имеет плоскую плоскость ампутации, где был наложен шов весь кожный лоскут, тогда как неудачная операция имеет небольшую бластему. Наконечники стрел обозначают плоскость ампутации, а белые пунктирные линии помогают визуализировать отсутствие бластемы в успешной операции и наличие бластем в неудачной операции и контролировать регенерирующие конечности. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.

Рисунок 3: Гистологическое окрашивание нормальных регенерирующих и ушибленных FSF конечностей.
(А-Б') Репрезентативные яркие изображения пикро-мальорных окрашенных участков от регенерирующих (A-A') и зашитых аксолотльных конечностей (B-B') при 7 дПа. Вставки в A и B показаны в A' и B' соответственно. Коллаген-тяжелый кожный слой выравнивает и покрывает всю плоскость ампутации в зашитых конечностях. Плоскость ампутации обозначается наконечниками стрел в A-B. Шкала брусков составляет 500 мкм. Эта цифра была адаптирована из Tsai et al.25. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
В этой статье описывается протокол выполнения операций по удалению лоскута кожи в аксолотльских конечностях для ингибирования образования эпидермиса раны. Хотя эта операция относительно проста и технически воспроизводима по сравнению с другими методами ингибирования образования раневого эпидермиса, существует несколько критических шагов, которые могут повлиять на успех операции. Во-первых, при вытягивании неповрежденного полного кожного лоскута над открытыми подлежащими тканями крайне важно, чтобы кожа всей толщины не была повреждена каким-либо образом. Повреждение кожного лоскута все еще может привести к образованию небольшого раневого эпидермиса, что может привести к небольшому бластемоподобному росту. Во-вторых, убедитесь, что швы не выпадают во время послеоперационного ухода, так как это также может привести к образованию небольшого раневого эпидермиса. К этому моменту важно свести к минимуму потенциальный контакт между ушной конечностью и любыми поверхностями, особенно в течение первой недели после операции. Несколько способов предотвратить это влечет за собой размещение и обезболивание аксолотля в достаточно большом контейнере, чтобы у аксолотля было достаточно места для перемещения после операции.
Эта операция также имеет несколько ограничений. Возможно, наиболее примечательным является то, что успех операций можно оценить только двумя способами: используя рассекающий прицел в течение первых двух недель операции для поиска отсутствия раневого эпидермиса и / или проверяя, образуется ли бластема в течение 3 недель. Хотя эти методы эффективны, они имеют относительно низкую пропускную способность. Разработка будущих трансгенных репортерных аксолотлей для раневых эпидермис-специфических маркеров может помочь в более быстром скрининге успешных и неудачных операций. Кроме того, эту операцию сложнее выполнить на молодых животных, так как неповрежденная кожа более хрупкая. Таким образом, рекомендуется использовать субвзрослые или взрослые аксолотли.
Хотя эта операция была первоначально разработана у N. viridiscens19, она была легко адаптирована для аксолотлей25,39 и, вероятно, может быть применена и к другим видам саламандр. В целом, применение этого метода к будущим регенеративным исследованиям конечностей позволит исследователям как разработать больше инструментов для решения биологии раневого эпидермиса, так и определить основные механизмы, определяющие его функцию в инициировании образования бластемы.
Раскрытие информации
Авторам нечего раскрывать.
Благодарности
Автор благодарит Дага за его постоянное ободрение и непоколебимую поддержку, а также членов лаборатории Мелтона за их полезные отзывы и комментарии к рукописи. Автор также хотел бы поблагодарить Гарвардское управление по ресурсам животных (OAR) за их самоотверженный уход за животными.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Изогнутые пружинные ножницы | Fine Scientific Tools | 15009-08 | |
| Этил-3-аминобензоат метансульфонат (трикаин) | Sigma-Aldrich | 886-86-2 | |
| Щипцы | Fine Scientific Tools | 11252-40 | Нужны две пары |
| нейлоновых монофиламентных швов (9-0) | Roboz | SUT-1000-21 | |
| Бикарбонат натрия | Sigma-Aldrich | S5761 | |
| Стереомикроскоп | Leica | MZ6 | |
| Сульфамеразин натриевая соль | Sigma-Aldrich | 127-58-2 | |
| Хирургические ножницы | Fine Scientific Tools | 14002-14 |
Ссылки
- Spallanzani, L. Prodromo Di Un'opera Da Imprimersi Sopra Le Riproduzioni Animali. , Nella Stamperia di Giovanni Montanari (1768).
- Gerber, T., et al. Single-cell analysis uncovers convergence of cell identities during axolotl limb regeneration. Science. , (2018).
- Leigh, N. D., et al. Transcriptomic landscape of the blastema niche in regenerating adult axolotl limbs at single-cell resolution. Nature Communications. 9 (1), 5153(2018).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- McCusker, C., Bryant, S. V., Gardiner, D. M. The axolotl limb blastema: cellular and molecular mechanisms driving blastema formation and limb regeneration in tetrapods. Regeneration (Oxford). 2 (2), 54-71 (2015).
- Endo, T., Bryant, S. V., Gardiner, D. M. A stepwise model system for limb regeneration. Developmental Biology. 270 (1), 135-145 (2004).
- Tsai, S. L. The molecular interplay between progenitors and immune cells in tissue regeneration and homeostasis. Journal of Immunology and Regenerative Medicine. 7, 100024(2020).
- Godwin, J. W., Pinto, A. R., Rosenthal, N. A. Macrophages are required for adult salamander limb regeneration. Proceedings of the National Academy of Sciences of the United States of America. 110 (23), 9415-9420 (2013).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Campbell, L. J., Crews, C. M. Wound epidermis formation and function in urodele amphibian limb regeneration. Cellular and Molecular Life Sciences. 65 (1), 73-79 (2008).
- Fei, J. F., et al. Efficient gene knockin in axolotl and its use to test the role of satellite cells in limb regeneration. Proceedings of the National Academy of Sciences of the United States of America. 114 (47), 12501-12506 (2017).
- Sandoval-Guzman, T., et al. Fundamental differences in dedifferentiation and stem cell recruitment during skeletal muscle regeneration in two salamander species. Cell Stem Cell. 14 (2), 174-187 (2014).
- Tassava, R. A., Mescher, A. L. The roles of injury, nerves, and the wound epidermis during the initiation of amphibian limb regeneration. Differentiation. 4 (1), 23-24 (1975).
- Hay, E. D., Fischman, D. A. Origin of the blastema in regenerating limbs of the newt Triturus viridescens. An autoradiographic study using tritiated thymidine to follow cell proliferation and migration. Developmental Biology. 3, 26-59 (1961).
- Christensen, R. N., Tassava, R. A. Apical epithelial cap morphology and fibronectin gene expression in regenerating axolotl limbs. Developmental Dynamics. 217 (2), 216-224 (2000).
- Repesh, L. A., Oberpriller, J. C. Scanning electron microscopy of epidermal cell migration in wound healing during limb regeneration in the adult newt, Notophthalmus viridescens. American Journal of Anatomy. 151 (4), 539-555 (1978).
- Neufeld, D. A., Day, F. A., Settles, H. E. Stabilizing role of the basement membrane and dermal fibers during newt limb regeneration. Anatomical Record. 245 (1), 122-127 (1996).
- Singer, M., Saltpeter, M. M. Growth in Living Systems. Zarrow, M. X. , Basic Books. New York. (1961).
- Mescher, A. L. Effects on adult newt limb regeneration of partial and complete skin flaps over the amputation surface. Journal of Experimental Zoology. 195 (1), 117-128 (1976).
- Tassava, R. A., Garling, D. J. Regenerative responses in larval axolotl limbs with skin grafts over the amputation surface. Journal of Experimental Zoology. 208 (1), 97-110 (1979).
- Tornier, G. Der Kampf der Gewebe im Regeneratbei Begunsiigung der Hautregeneralion. Arch. Entwmech. 22, 348-352 (1906).
- Goss, R. J. Regenerative inhibition following limb amputation and immediate insertion into the body cavity. Anatomical Record. 126 (1), 15-27 (1956).
- Thornton, C. S. The effect of apical cap removal on limb regeneration in Amblystoma larvae. Journal of Experimental Zoology. 134 (2), 357-381 (1957).
- Thornton, C. S. The inhibition of limb regeneration in urodele larvae by localized irradiation with ultraviolet light. Journal of Experimental Zoology. 137 (1), 153-179 (1958).
- Tsai, S. L., Baselga-Garriga, C., Melton, D. A. Midkine is a dual regulator of wound epidermis development and inflammation during the initiation of limb regeneration. Elife. 9, (2020).
- Nowoshilow, S., et al. The axolotl genome and the evolution of key tissue formation regulators. Nature. 554 (7690), 50-55 (2018).
- Elewa, A., et al. Reading and editing the Pleurodeles waltl genome reveals novel features of tetrapod regeneration. Nature Communications. 8 (1), 2286(2017).
- Bryant, D. M., et al. A Tissue-Mapped Axolotl De Novo Transcriptome Enables Identification of Limb Regeneration Factors. Cell Reports. 18 (3), 762-776 (2017).
- Looso, M., et al. A de novo assembly of the newt transcriptome combined with proteomic validation identifies new protein families expressed during tissue regeneration. Genome Biology. 14 (2), 16(2013).
- Abdullayev, I., Kirkham, M., Bjorklund, A. K., Simon, A., Sandberg, R. A reference transcriptome and inferred proteome for the salamander Notophthalmus viridescens. Experimental Cell Research. 319 (8), 1187-1197 (2013).
- Burns, J. A., Zhang, H., Hill, E., Kim, E., Kerney, R. Transcriptome analysis illuminates the nature of the intracellular interaction in a vertebrate-algal symbiosis. Elife. 6, (2017).
- Nakamura, K., et al. A transcriptome for the study of early processes of retinal regeneration in the adult newt, Cynops pyrrhogaster. PLoS One. 9 (10), 109831(2014).
- Smith, J. J., et al. A chromosome-scale assembly of the axolotl genome. Genome Research. 29 (2), 317-324 (2019).
- Arenas Gomez, C. M., Woodcock, R. M., Smith, J. J., Voss, S. R., Delgado, J. P. Using transcriptomics to enable a plethodontid salamander (Bolitoglossa ramosi) for limb regeneration research. BMC Genomics. 19 (704), (2018).
- Fei, J. F., et al. Application and optimization of CRISPR-Cas9-mediated genome engineering in axolotl (Ambystoma mexicanum). Nature Protocols. 13 (12), 2908-2943 (2018).
- Flowers, G. P., Timberlake, A. T., McLean, K. C., Monaghan, J. R., Crews, C. M. Highly efficient targeted mutagenesis in axolotl using Cas9 RNA-guided nuclease. Development. 141 (10), 2165-2171 (2014).
- Khattak, S., et al. Optimized axolotl (Ambystoma mexicanum) husbandry, breeding, metamorphosis, transgenesis and tamoxifen-mediated recombination. Nature Protocols. 9 (3), 529-540 (2014).
- Joven, A., Elewa, A., Simon, A. Model systems for regeneration: salamanders. Development. 146 (14), (2019).
- Johnson, K., Bateman, J., DiTommaso, T., Wong, A. Y., Whited, J. L. Systemic cell cycle activation is induced following complex tissue injury in axolotl. Developmental Biology. 433 (2), 461-472 (2018).
Перепечатки и разрешения
