Этот протокол описывает анализ на основе БРЭТ для измерения взаимодействий киназы CRAF с белками 14-3-3 в живых клетках. В протоколе изложены шаги по подготовке ячеек, считыванию излучений BRET и анализу данных. Также представлен пример результата с идентификацией соответствующих элементов управления и устранением неполадок для оптимизации анализа.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Биолюминесцентный резонансный перенос энергии (BRET) для измерения взаимодействий CRAF с белками 14-3-3 в живых клетках
В этой статье
Краткое содержание
Аннотация
CRAF является первичным эффектором ГТФаз RAS и играет решающую роль в онкогенезе нескольких видов рака, вызванных KRAS. Кроме того, CRAF является горячей точкой для мутаций зародышевой линии, которые, как показано, вызывают развитие RASopathy, синдром Нунан. Все RAF-киназы содержат множественные фосфорилирование-зависимые сайты связывания для 14-3-3 регуляторных белков. Дифференциальное связывание 14-3-3 с этими сайтами играет важную роль в образовании активных димеров RAF на плазматической мембране в условиях передачи сигналов и в поддержании аутоингибирования RAF в условиях покоя. Понимание того, как регулируются эти взаимодействия и как они могут быть модулированы, имеет решающее значение для определения новых терапевтических подходов, нацеленных на функцию RAF. В этой статье я опишу анализ на основе биолюминесцентного резонансного переноса энергии (BRET) для измерения взаимодействий CRAF с белками 14-3-3 в живых клетках. В частности, этот анализ измеряет взаимодействия CRAF, слитых с донором нанолюциферазы, и 14-3-3, слитых с акцептором метки Halo, где взаимодействие RAF и 14-3-3 приводит к передаче энергии от донора к акцептору и генерации сигнала BRET. Протокол также показывает, что этот сигнал может быть нарушен мутациями, которые, как было показано, предотвращают связывание 14-3-3 с каждым из его высокоаффинных стыковочных сайтов RAF. В этом протоколе описаны процедуры посева, трансфекции и повторного посева клеток, а также подробные инструкции по считыванию эмиссии BRET, выполнению анализа данных и подтверждению уровней экспрессии белка. Кроме того, приводятся примеры результатов анализа, а также шаги по оптимизации и устранению неполадок.
Введение
RAF-киназы (ARAF, BRAF и CRAF) являются прямыми эффекторами ГТФаз RAS и инициирующими членами каскада киназ RAF-MEK-ERK, способствующего пролиферации/выживанию. Недавние исследования показали, что экспрессия CRAF играет ключевую роль в онкогенезе нескольких видов рака, вызванных KRAS, включая немелкоклеточный рак легкого и протоковую аденокарциному поджелудочной железы 1,2,3,4,5. Кроме того, мутации зародышевой линии CRAF вызывают особенно тяжелую форму РАСопатии – синдромНунан 6,7. Понимание регуляции CRAF имеет решающее значение для разработки успешных терапевтических подходов, направленных на его функцию в клетках.
Все RAF-киназы можно разделить на два функциональных домена: С-концевой каталитический (CAT) домен и N-концевой регуляторный домен (REG), который контролирует его активность (рис. 1A). Домен REG включает в себя RAS связывающий домен (RBD), цистеин-богатый домен (CRD) и серин/треонин-богатую область (S/T-rich). Примечательно, что S/T-богатая область содержит N'-сайт, который связывается с 14-3-3 фосфорилированием-зависимым образом (S259 в CRAF; Рисунок 1А) 8. Домен CAT включает в себя домен киназы вместе со вторым высокоаффинным сайтом стыковки 14-3-3, называемым сайтом C' (S621 в CRAF; Рисунок 1А) 8. Дифференциальное связывание димерных белков 14-3-3 с сайтами N' и C', наряду с CRD, играет решающую роль как в активации, так и в ингибировании RAF 9,10,11,12,13. В нормальных сигнальных условиях активация RAF инициируется его привлечением к плазматической мембране RAS, что позволяет ему образовывать активные димеры, из которых гетеродимер BRAF-CRAF является преобладающей активной формой 14,15. Биохимические анализы с использованием BRAF и CRAF, наряду с криогенной электронной микроскопией (Cryo-EM) структур димерных BRAF, показывают, что димер 14-3-3 стабилизирует активные димеры RAF, связываясь одновременно с C'-сайтом обоих протомеров RAF (рис. 1B)9,13,16,17. И наоборот, исследования показали, что в условиях покоя RAF принимает цитозольное, аутоингибированное подтверждение, когда домен REG связывается с доменом CAT и ингибирует его активность 12,18,19,20. Это закрытое состояние стабилизируется димером 14-3-3, связанным с CRD и N' сайтом в домене REG и с сайтом C' в домене CAT (рис. 1B)10,13,21. В BRAF эта модель подтверждается недавними крио-ЭМ структурами аутоингибированных мономеров BRAF и нашими предыдущими биохимическими исследованиями 10,12,13,21,22. Однако, в то время как показано, что 14-3-3 играет ингибирующую роль в регуляции23 CRAF, аутоингибированное состояние, подобное BRAF, может играть меньшую роль в регуляции12 CRAF; поэтому необходимы дальнейшие исследования для уточнения механизмов, с помощью которых белки 14-3-3 регулируют активность CRAF. 14-3-3-опосредованная регуляция RAF-киназ требует множества событий фосфорилирования и дефосфорилирования RAF, связывания с различными регуляторными белками и взаимодействия с плазматической мембраной. Поэтому крайне важно, чтобы взаимодействия 14-3-3-RAF измерялись в физиологически значимых условиях и в присутствии интактного липидного бислоя.
Для решения этой проблемы была использована технология NanoBRET (далее именуемая N-BRET; подробную информацию о наборе см. в Таблице материалов) для разработки анализа на основе близости для измерения взаимодействий CRAF с белками 14-3-3 в живых клетках (рис. 1C). Эта система на основе БРЭТ измеряет взаимодействия двух представляющих интерес белков (POI), где один белок помечен донором нанолюциферазы (Nano), а другой — меткой Halo, для мечения лигандом22,24 акцептора энергии Halo618. Взаимодействие представляющих интерес белков приводит к передаче энергии от донора к акцептору, который, в свою очередь, генерирует сигнал BRET (рис. 1C). Чрезвычайно яркий донорский белок Nano (излучение (em) 460 нм) и лиганд Halo618 (em 618 нм) обеспечивают большее спектральное разделение и чувствительность по сравнению с обычным BRET, что делает его идеальной платформой для изучения более слабых взаимодействий и обнаружения тонких изменений в связывании24. Действительно, ранее мы разработали анализ на основе N-BRET для измерения аутоингибиторных взаимодействий доменов RAF REG и CAT, что было важно для характеристики панели мутаций RASopathy в BRAF CRD и продемонстрировало критическую важность этого домена для поддержания аутоингибирования и предотвращения конститутивной активации BRAF12.
Описанный здесь анализ измеряет взаимодействия CRAF, слитого с N-концевой Nano-меткой (Nano-CRAF), и дзета-изоформы 14-3-3, слитой с C-концевой Halo меткой (14-3-3ζ-Halo; Рисунок 1С). Мы показываем, что взаимодействие Nano-CRAF с 14-3-3ζ-Halo генерирует устойчивый сигнал BRET, который, в свою очередь, может быть нарушен мутациями, препятствующими связыванию 14-3-3 с сайтом N' (S259A) и/или сайтом C' (S621A). В следующем протоколе подробно описаны инструкции по выполнению, оптимизации и устранению неполадок этого анализа.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
ПРИМЕЧАНИЕ: Этот анализ проводится на клетках размером 293 фута. Хорошо охарактеризованная и легко трансфицируемая эпителиальная линия, полученная из эмбриональных клеток почек человека. Одна сливающаяся 10-сантиметровая чашка для культивирования этих клеток обычно обеспечивает достаточное количество клеток для засеивания 20 лунок 6-луночных тканевых культуральных планшетов. Шаги 1-3 должны быть выполнены с использованием стерильной техники в шкафу биологической безопасности.
1. Посев клеток (день 1)
ПРИМЕЧАНИЕ: На этом этапе клетки отделяют от чашки (чашек) для культуры тканей, подсчитывают и засевают в 6-луночные планшеты для культивирования тканей для трансфекции на этапе 2 (рис. 2).
- Отсасывайте среду из клеток в 10-сантиметровую чашку. Промойте клетки 5 мл фосфатно-солевого буфера (PBS) и аспиратуйте.
- Добавьте 1 мл трипсина-этилендиаминтетрауксусной кислоты (ЭДТА) и инкубируйте в течение 3-5 минут при 37 °C, чтобы отделить клетки от чашки.
- Добавьте 9 мл полной модифицированной орлиной среды Дульбекко (DMEM) в клетки для нейтрализации трипсина и многократно поднимайте и опускайте пипетку вверх и вниз для получения однородной суспензии одиночных клеток.
- Немедленно перенесите 20 мкл клеток в пробирку объемом 1,7 мл и смешайте с 20 мкл трипанового синего красителя. Подсчитывайте клетки с помощью автоматического счетчика клеток (Table of Materials) или гемоцитометра.
- Разбавьте клетки до 2 x 10⁵ клеток/мл в полной среде DMEM и добавьте по 2 мл в каждую лунку 6-луночного планшета для культуры тканей (4 x 10⁵ клеток/лунка). Инкубируйте клетки при 37 °C и 10%CO2 в течение ночи.
ПРИМЕЧАНИЕ: Рекомендуется использовать элементы 293FT, которые были пройдены менее чем в 20 раз. Ранее мы обнаружили, что использование ячеек с большим числом пассажей может привести к снижению коэффициентов BRET и увеличению вариабельности сигнала от скважины к скважине.
2. Клеточная трансфекция (день 2)
Примечание: Здесь клетки трансфицируются с помощью конструкций экспрессии pCMV5-NanoLuc-CRAF и pCMV5-14-3-3ζ-Halo, а также пустого вектора pCDNA3.1 (Рисунок 2).
- Перед трансфекцией разбавляют N-BRET плазмиды до 5 нг/мкл и pCDNA3,1 до 100 нг/мкл, а также нумеруют набор стерильных пробирок объемом 1,7 мл.
- Добавьте 100 мкл трансфекционной среды (подробнее см. Таблицу материалов ) в каждую пробирку, а также 5 нг pCMV5-NanoLuc-CRAF, 10 нг pCMV5-14-3-3ζ и 200 нг PCDNA3.1.
- Добавьте 2 мкл реагента для трансфекции (подробнее см. Таблицу материалов ) и осторожно перемешайте. Импульс кратковременно вращает пробирки в микроцентрифуге, чтобы убедиться, что вся жидкость собрана на дне пробирок, а затем инкубируется при температуре около 25 °C в течение 15 минут.
- Добавляйте трансфекционные комплексы в клетки по каплям и инкубируйте при 37 °C/10%CO2 в течение 16-20 часов, чтобы обеспечить экспрессию гало- и нано-помеченных белков.
Примечание: Добавление ДНК-носителя пустого вектора (pCDNA3.1) имеет важное значение для достижения высокой эффективности трансфекции конструкций экспрессии N-BRET. Отсутствие добавления пустого вектора приводит к снижению уровней экспрессии белков 14-3-3ζ-Halo и Nano-CRAF и, в свою очередь, приводит к слабым и непостоянным соотношениям BRET, как обсуждалось ранее22.
3. Регирование ячеек (День 3)
Примечание: На этом этапе клетки переносят на 384-луночный планшет и либо лиганд Halo 618 (+лиганд; Таблица материалов) или DMSO (+транспортное средство) добавляется для считывания выбросов BRET на шаге 4. Оставшиеся клетки переносят в свежие 6-луночные культуральные планшеты для вестерн-блоттинга на этапе 5 (рис. 2).
- Соберите следующие материалы и подготовьте рабочую зону, как описано ниже.
- Используя водяную баню при температуре 37 °C, предварительно подогрейте трипсин-ЭДТА, а также бессывороточный фильтрующий материал и 10% пробирный фильтрующий материал с добавлением FBS (подробнее см. Таблицу материалов ).
- В зависимости от количества измеряемых образцов предварительно промаркируйте три комплекта стерильных пробирок объемом 1,7 мл (наборы 1-3) и один комплект стерильных пробирок с коническим дном объемом 15 мл. Оснастите центрифугу с поворотным ведром со вставками для пробирок объемом 15 мл и предварительно охладите до 4 °C.
- Поместите в колпак для тканевых культур следующие предметы: резервуары с реагентами, 384-луночные планшеты для тканевых культур, 6-луночные планшеты для тканевых культур, многоканальную пипетку и наконечники, предметные стекла/камеры для подсчета клеток и трипановый синий краситель (Таблица материалов), а также наборы пробирок объемом 1,7 мл 1-3.
- Соберите и подсчитайте ячейки, как описано ниже.
- Отсадите среду из 6-луночных планшетов и добавьте в клетки 250 мкл трипсина-ЭДТА. Инкубируйте 6-луночные планшеты при температуре 37 °C до тех пор, пока клетки не начнут отделяться (3-5 минут).
- Добавьте 1 мл 10% фильтрующего материала с добавлением FBS в каждую лунку, чтобы нейтрализовать трипсин, и энергично двигайте пипеткой вверх и вниз для получения суспензии одиночных клеток.
- Перенесите 1 мл клеточной суспензии в предварительно помеченные пробирки объемом 15 мл. Добавьте еще 1 мл 10% фильтрующего материала с добавлением FBS в каждую из 15 мл пробирки.
- Переверните пробирки 5 раз, чтобы перемешать, и немедленно перенесите 20 μл клеточной суспензии в набор пробирок 1.
- Центрифугируйте в предварительно охлажденной центрифуге с качающимся ведром в течение 5 минут при ~250 x g. На этапе центрифугирования смешайте 20 мкл трипанового окрашивателя для голубых клеток с клетками в наборе пробирок 1, а затем подсчитайте клетки с помощью автоматического счетчика клеток или гемоцитометра. Типичным является выход 6-8 x 10⁵ клеток/мл.
- Извлеките пробирки объемом 15 мл из центрифуги и аспирируйте среду из клеточных гранул. Суспендируйте клеточные гранулы до концентрации 2 x 10⁵ клеток/мл в бессывороточной среде для анализа и энергично пипетке с получением одноклеточной суспензии.
ПРИМЕЧАНИЕ: Использование бессывороточных аналитических сред используется для замораживания нормальных клеточных сигнальных путей.
- Перепланируйте ячейки в 384-луночных и 6-луночных планшетах, как описано ниже.
- Переверните пробирки объемом 15 мл несколько раз, чтобы получить однородную клеточную суспензию, и перенесите пробирки объемом от 500 мкл до 1,7 мл в наборе 2 и наборе 3.
- Добавьте 0,5 мкл ДМСО (+носитель) в набор 2 и 0,5 мкл лиганда Halo 618 (+лиганд) в набор пробирок 3 и перемешайте пипетку.
- Перенесите суспензии ячеек +vehicle и +ligand в отдельные лунки резервуаров с реагентами. С помощью многоканальной пипетки (Таблица материалов) перенесите 40 мкл суспензии +vehicle cell из резервуаров с реагентами в четырехлуночные лунки 384-луночного планшета для культивирования. Повторите этот шаг для суспензий клеток +лиганда.
- Переложите оставшиеся клетки в свежие 6-луночные культуральные планшеты. Инкубируйте 384-луночные и 6-луночные планшеты в течение ночи при 37 °C и 5%CO2.
4. Чтение выбросов BRET (День 4)
Примечание: На этом этапе субстрат нанолюциферазы (подробнее см. Таблицу материалов ) добавляют к клеткам в 384-луночном культуральном планшете и считывают акцептор N-BRET (618 нм) и донорский (460 нм) излучения (рис. 2). Затем рассчитываются скорректированные коэффициенты BRET.
- Предварительно подогрейте бессывороточную среду для анализа на водяной бане при температуре 37 °C и разморозьте нанолюциферазный субстрат при 25 °C. Разведите субстрат нанолюциферазы в соотношении 1:100 в бессывороточной среде для анализа и перенесите в резервуар с реагентами. Приготовьте достаточное количество этой смеси для добавления 10 μL в каждую лунку 384-луночного планшета, плюс 10%-15% дополнительного объема.
- С помощью многоканальной пипетки (Таблица материалов) перенесите по 10 мкл субстратной смеси в каждую из лунок, содержащих клетки в 384-луночном культуральном планшете. Осторожно вращайте тарелку в течение 1 минуты вручную или с помощью орбитального шейкера.
- Вставьте 384-луночный планшет в многомодовый считыватель планшетов и зарегистрируйте выбросы 460 нм и 618 нм для всех лунок, содержащих ячейки.
ПРИМЕЧАНИЕ: Для многорежимного считывателя пластин, используемого на этом этапе (подробнее см. Таблицу материалов ), использовалась высота считывания 6,5 мм с измерением времени считывания 0,1 с, однако при использовании других считывателей пластин может потребоваться дальнейшая оптимизация. - Рассчитайте исходные соотношения BRET для +vehicle и + лиганда в единицах milliBRET (mBU) по отдельности, используя следующее уравнение:
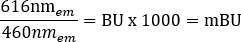
- Рассчитайте скорректированное отношение BRET путем вычитания +vehicle BRET ratio из коэффициента +Ligand (дополнительная таблица 1).
ПРИМЕЧАНИЕ: При сравнении результатов нескольких экспериментов скорректированные соотношения BRET могут быть объединены и нормализованы до среднего значения пары Wildtype (WT) N-BRET, состоящей из Nano-CRAFWT и 14-3-3ζWT-Halo (Дополнительная таблица 1).
5. Подтверждение уровня экспрессии белка (4 и 5 дни)
Примечание: На этом этапе клетки в 6-луночных планшетах лизируют, а уровни экспрессии белков Nano-CRAF и 14-3-3ζ-Halo определяют с помощью вестерн-блоттинга с использованием антител, специфичных к меткам Halo и Nano. (Рисунок 2).
- Добавьте ингибиторы протеазы и фосфатазы в буфер для лизиса NP40 (Таблица материалов), обеспечивая 200 мкл буфера для лизиса на образец.
- Аспиратные среды из 6-луночных планшетов, которые содержат клетки. Промойте клетки один раз 1 мл холодного PBS и аспиратуйте.
- Добавьте 125 мкл буфера для лизиса NP40 в каждую лунку и инкубируйте 6-луночные планшеты при 4 °C на качающейся платформе в течение 15 мин для лизина клеток.
- Перенесите лизаты в пробирки объемом 1,7 мл на льду и центрифугируйте при температуре 20 000 x g в течение 10 минут при 4 °C. Поместите очищенные лизаты обратно на лед и определите концентрацию белка с помощью коммерчески доступных анализов, таких как анализ Брэдфорда или бицинхониновая кислота (BCA).
- Нормализуйте концентрацию белка во всех образцах путем переноса соответствующего объема лизата и буфера для лизиса NP40 в свежие пробирки объемом 1,7 мл до общего объема 100 мкл.
- Вскипятите 5-кратный буфер для образцов белка (Таблица материалов) в течение 1 минуты и добавьте 25 мкл в каждый образец. Прокипятите образцы в течение 5-6 минут, а затем кратковременно центрифугируйте пробирки, чтобы убедиться, что весь образец собирается в основании пробирки.
- Загрузите 25 мкл образца в каждую лунку дубликатов белковых гелей (гель 1 и гель 2), а затем перенесите белки на мембраны из нитроцеллюлозы или PVDF, используя стандартные процедуры вестерн-блоттинга, как описано ранее22.
- Заблокируйте мембраны в 3% BSA-PBS при 25 °C в течение 30 минут, а затем инкубируйте мембраны в течение ночи с антителом Halo (разведение 1:1,000; Гель 1) и либо нанолюциферазу, либо антитела CRAF (разведение 1:500; Гель 2) в трис-буферном физрастворе, с добавлением 0,2% Tween-20 (TBST; Таблица материалов).
- Промойте мембраны 1 раз в течение 5 минут в 10 мл TBST, а затем инкубируйте при комнатной температуре в течение 1 ч с вторичным антителом против мышиного HRP, разведенным в соотношении 1:10 000 в TBST.
- Промойте мембраны 3 раза на качающейся платформе в 10 мл TBST при 25 °C в течение 5 минут каждая. Удалите TBST и визуализируйте белковые полосы с помощью реагентов ECL и либо рентгеновского процессора пленки, либо другой подходящей системы визуализации.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
При выполнении в соответствии с описанием в данном протоколе (рис. 2) взаимодействие Nano-CRAFWT и 14-3-3ζ-Halo должно привести к скорректированным соотношениям BRET 50-60 мБУ (рис. 3A; Дополнительная таблица 1). CRAF содержит два фосфорилированных 14-3-3 стыковочных сайта, N'-сайт и C'-сайт (рис. 1)8. Таким образом, соответствующие меры контроля для снижения связывания CRAF:14-3-3...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Предыдущие исследования показали, что белки 14-3-3 играют решающую роль как в активации, так и в ингибировании киназ RAF. Понимание того, как регулируются эти события связывания и влияние модуляции этих взаимодействий на передачу сигналов RAF и онкогенез, вызванный RAF, может выявить новые терапевтические уязвимости, нацеленные на функцию CRAF. Тем не менее, цикл активации Raf поддерживается множеством ассоциированных белков, посттрансляционных модификаций и изменений в субклеточной локализации8, ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Раскрывать нечего.
Благодарности
Этот проект был частично профинансирован за счет федеральных средств Национального института рака, Национальных институтов здравоохранения, под номером ZIA BC 010329.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| <сильные>антитела | |||
| HaloTag® мышиное моноклональное антитело | Promega | G9211 | Антитела для определения HaloTagged белки методом иммуноблоттинга |
| NanoLuc® мышиное моноклональное антитело | R& D Systems | MAB10026 | антитела для детектирования Nano-меченых белков методом иммуноблоттинга |
| CRAF мышиного моноклонального антитела (E10) | Santa Crus Biotechnology | sc-7267 | Антитело для непосредственного обнаружения белков CRAF с помощью иммуноблота |
| ECL против мышиного вторичного антитела | HRP Amersham | NA931-1ML | Вторичные конъюгированные антитела HRP у мышей (от овец) |
| Reagents | |||
| X-tremeGENE™ 9 | Roche/Sigma | 6365809001 | |
| NanoBRET™ kit | Promega | N1661 | Набор NanoBRET, содержащий лиганд Halo 618 и субстрат NanoGlo (нанолюциферазы) |
| DPBS, без Ca++ и Mg++ | Качественные биопрепараты | 114-057-101 | |
| Трипсин-ЭДТА (0,05%), фенол красный | Life Technologies | 25300120 | |
| среды для культивирования клеток DMEM | Life Technologies | 11995073 | высоким содержанием глюкозы, L-глютамина, фенолового красного, натрия и пирувата; без HEPES, вспомогательные среды с 10% FBS, 2 мМ L-глутамином и 100U пенициллин-стрептомицином |
| L-глютамином (200 мМ) | Life Technologies | 25030164 | |
| пенициллин-стрептомицин (10 000 ЕД/мл) | Технологии жизни | ||
| Opti-MEM™ Я уменьшил количество сывороточных сред | Gibco | 31985062 | для клеточной трансфекции |
| Opti-MEM с пониженным содержанием сывороточных сред, без фенола красного | Gibco | 11058021 | Для повторного покрытия клеток на 3-й день. Добавка с 2 мМ L-глютамина и 100 ЕД пенициллин-стрептомицина, а также 10% FBS (при необходимости). |
| Инвитроген Трипан Синий Морилка | Термо Научный | T10282 | |
| Буфер для лизиса NP40 | Н/Д | Н/Д | 20 мМ Трис (pH 8,0), 137 мМ NaCl, 10% глицерин, Альтернатива NP40 (Milipore, Cat# 492016). Хранить при температуре 4 градуса С. Добавьте следующую протеазу и фосфатазу непосредственно перед применением: 20 & микро; M. leupeptin, 0,5 мМ ортованидат натрия, 0,15 Ед/мл, 1 мМ PMSF. |
| 5x гелевый буфер для образцов | Н/Д | Н/Д | 240 мМ Трис (pH 8,0), 9,5% SDS, 30% глицерин, 500 мМ DTT, 3 мМ бромофеноловый синий. Хранить при температуре -20 градусов С. |
| Cell lines | |||
| 293FT клетки (человеческие) | Thermo Scientific | R70007 | |
| <сильные>векторы ДНК | |||
| pCMV5-Nano-CRAF WT и мутантные | н/ | д н/д | |
| ζ-Halo | н/д | н/д н/д | |
| Strong>Equipment | |||
| EnVision 2104 | 2104-0010 | 600LP NanoBRET & M460/50 нм фильтры излучения NanoBRET, Люминесцентное зеркало 404, высота измерения 6,5 мм и время измерения 0,1 с | |
| Invitrogen Countess™ II Автоматизированный счетчик ячеек | Thermo Scientific | AMQAX1000 | |
| ThermoFisher E1-ClipTip™ Многоканальность Пипеттор | Термо Научный | 4672070 | |
| Software | |||
| GraphPad Prism (версия 10.0.3) | ГрафПад | www.graphpad.com | |
| Other | |||
| ThermoFisher ClipTip Многоканальные наконечники для дозаторов | Термо Научный | ||
| Резервуар для реагентов, 25 мл разделенный, стерильный | Thomas Scientific | 1228K16 | |
| Perkin Elmer 384-well CulturPlate™ | PerkinElmer | 6007680 | White, полистирол, обработанная культура тканей |
| Камера для подсчета клеток Countess Slides | Thermo Scientific | С10228 |
Ссылки
- Blasco, R. B., et al. c-Raf, but not B-Raf, is essential for development of K-Ras oncogene-driven non-small cell lung carcinoma. Cancer Cell. 19, 652-663 (2011).
- Blasco, M. T., et al. Complete regression of advanced pancreatic ductal adenocarcinomas upon combined inhibition of EGFR and C-RAF. Cancer Cell. 35, 573-587 (2019).
- Karreth, F. A., Frese, K. K., DeNicola, G. M., Baccarini, M., Tuveson, D. A. C-Raf is required for the initiation of lung cancer by K-Ras(G12D). Cancer Discov. 1, 128-136 (2011).
- Lito, P., et al. Disruption of CRAF-mediated MEK activation is required for effective MEK inhibition in KRAS mutant tumors. Cancer Cell. 25, 697-710 (2014).
- Sanclemente, M., et al. c-RAF ablation induces regression of advanced Kras/Trp53 mutant lung adenocarcinomas by a mechanism independent of MAPK signaling. Cancer Cell. 33, 217-228 (2018).
- Razzaque, M. A., et al. Germline gain-of-function mutations in RAF1 cause Noonan syndrome. Nat Genet. 39, 1013-1017 (2007).
- Pandit, B., et al. Gain-of-function RAF1 mutations cause Noonan and LEOPARD syndromes with hypertrophic cardiomyopathy. Nat Genet. 39, 1007-1012 (2007).
- Terrell, E. M., Morrison, D. K. Ras-mediated activation of the Raf family kinases. Cold Spring Harb Perspect Med. 9 (1), 033746(2019).
- Kondo, Y., et al. Cryo-EM structure of a dimeric B-Raf:14-3-3 complex reveals asymmetry in the active sites of B-Raf kinases. Science. 366, 109-115 (2019).
- Park, E., et al. Architecture of autoinhibited and active BRAF-MEK1-14-3-3 complexes. Nature. 575 (7783), 545-550 (2019).
- Tzivion, G., Luo, Z., Avruch, J. A dimeric 14-3-3 protein is an essential cofactor for Raf kinase activity. Nature. 394, 88-92 (1998).
- Spencer-Smith, R., et al. RASopathy mutations provide functional insight into the BRAF cysteine-rich domain and reveal the importance of autoinhibition in BRAF regulation. Mol Cell. 82, 4262-4276 (2022).
- Martinez Fiesco, J. A., Durrant, D. E., Morrison, D. K., Zhang, P. Structural insights into the BRAF monomer-to-dimer transition mediated by RAS binding. Nat Commun. 13, 486(2022).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. The importance of Raf dimerization in cell signaling. Small GTPases. 4, 180-185 (2013).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. Effects of Raf dimerization and its inhibition on normal and disease-associated Raf signaling. Mol Cell. 49, 751-758 (2013).
- Rushworth, L. K., Hindley, A. D., O'Neill, E., Kolch, W. Regulation and role of Raf-1/B-Raf heterodimerization. Mol Cell Biol. 26, 2262-2272 (2006).
- Garnett, M. J., Rana, S., Paterson, H., Barford, D., Marais, R. Wild-type and mutant B-RAF activate C-RAF through distinct mechanisms involving heterodimerization. Mol Cell. 20, 963-969 (2005).
- Tran, N. H., Wu, X., Frost, J. A. B-Raf and Raf-1 are regulated by distinct autoregulatory mechanisms. J Biol Chem. 280, 16244-16253 (2005).
- Chong, H., Guan, K. L. Regulation of Raf through phosphorylation and N terminus-C terminus interaction. J Biol Chem. 278, 36269-36276 (2003).
- Cutler, R. E., Stephens, R. M., Saracino, M. R., Morrison, D. K. Autoregulation of the Raf-1 serine/threonine kinase. Proc Natl Acad Sci U S A. 95, 9214-9219 (1998).
- Park, E., et al. Cryo-EM structure of a RAS/RAF recruitment complex. Nat Commun. 14, 4580(2023).
- Spencer-Smith, R., Morrison, D. K. Protocol for measuring BRAF autoinhibition in live cells using a proximity-based NanoBRET assay. STAR Protoc. 4, 102461(2023).
- Clark, G. J., et al. 14-3-3 zeta negatively regulates raf-1 activity by interactions with the Raf-1 cysteine-rich domain. J Biol Chem. 272, 20990-20993 (1997).
- Machleidt, T., et al. NanoBRET--A novel BRET platform for the analysis of protein-protein interactions. ACS Chem Biol. 10, 1797-1804 (2015).
- Hekman, M., et al. Dynamic changes in C-Raf phosphorylation and 14-3-3 protein binding in response to growth factor stimulation: differential roles of 14-3-3 protein binding sites. J Biol Chem. 279, 14074-14086 (2004).
- Hatzivassiliou, G., et al. RAF inhibitors prime wild-type RAF to activate the MAPK pathway and enhance growth. Nature. 464, 431-435 (2010).
- Bondzi, C., Grant, S., Krystal, G. W. A novel assay for the measurement of Raf-1 kinase activity. Oncogene. 19, 5030-5033 (2000).
- Spencer-Smith, R., et al. Inhibition of RAS function through targeting an allosteric regulatory site. Nat Chem Biol. 13 (1), 62-68 (2016).
- Roy, S., et al. 14-3-3 facilitates Ras-dependent Raf-1 activation in vitro and in vivo. Mol Cell Biol. 18, 3947-3955 (1998).
- Durrant, D. E., et al. Development of a high-throughput NanoBRET screening platform to identify modulators of the RAS/RAF interaction. Mol Cancer Ther. 20, 1743-1754 (2021).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
