В этом исследовании мы представляем метод in vivo для оценки количества и размера моторных единиц для количественной оценки связности моторных единиц диафрагмы крысы. Описан пошаговый подход к этим методикам.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Оценка исходных показателей связности моторных единиц диафрагмы крыс в качестве количественных биомаркеров дегенерации и компенсации диафрагмальных моторных нейронов
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Потеря функции вентиляционных мышц является следствием повреждения двигательных нейронов и нейродегенерации (например, повреждения шейного отдела спинного мозга и бокового амиотрофического склероза соответственно). Диафрагмальные моторные нейроны являются конечным звеном между центральной нервной системой и мышцами, а их соответствующие моторные единицы (группы мышечных волокон, иннервируемых одним моторным нейроном) представляют собой самую маленькую функциональную единицу нервно-мышечной вентиляционной системы. Комбинированный потенциал действия мышц (CMAP), потенциал одиночной моторной единицы (SMUP) и оценка количества двигательных единиц (MUNE) являются установленными электрофизиологическими подходами, которые позволяют продольно оценивать целостность двигательных единиц в животных моделях с течением времени, но в основном применяются к мышцам конечностей. Таким образом, цели данного исследования заключаются в том, чтобы описать подход в доклинических исследованиях на грызунах, который может быть использован в лонгитюдном отношении для количественной оценки диафрагмального MUNE, размера моторной единицы (представленной как SMUP) и CMAP, а затем продемонстрировать полезность этих подходов в модели потери двигательных нейронов. Чувствительные, объективные и трансляционно значимые биомаркеры повреждения нейронов, дегенерации и регенерации при повреждении и заболеваниях двигательных нейронов могут значительно помочь и ускорить экспериментальные исследования до клинических испытаний.
Введение
Диафрагмальные моторные нейроны (МН), простирающиеся от уровня С3 до С6 миотома, образуют конечное звено от центральной нервной системы (ЦНС) к мышце диафрагмы1. Диафрагмальные моторные единицы (МЧ) состоят из одной спинномозговой МН и ее иннервированных мышечных волокон диафрагмы, образующих наименьшую функциональную единицу дыхательной нервно-мышечной системы. Вентиляционная функция требует адекватного сокращения мышцы диафрагмы, достигаемого за счет скоординированной активации диафрагмального пулаMU 2,3. Многие неврологические заболевания, включая боковой амиотрофический склероз (БАС), приводят к тяжелым нарушениям вентиляции, что в конечном итоге является причиной смерти4.
Для оценки и мониторинга целостности пула двигательных единиц (MU) in vivo можно использовать несколько электрофизиологических подходов. Потенциал действия сложных мышц (CMAP) отражает суммарную деполяризацию всех мышечных волокон в определенной мышце или группе мышц после стимуляции периферических нервов и чувствителен к ряду нервно-мышечных состояний, включая БАС 5,6 и спинальную мышечную атрофию (СМА)7,8,9. Ограничением оценки CMAP является то, что коллатеральное прорастание может привести к сохранению амплитуды и площади CMAP даже при наличии потери MU10. Чтобы преодолеть это ограничение, в метод CMAP были внесены изменения для оценки как номера моторного блока, так и размера11. Кроме того, исследование in vivo, посвященное функциональной оценке CMAP диафрагмы с помощью электрофизиологической системы, показало, что также может быть целесообразным использование описанного метода записи CMAP диафрагмы для оценки числа моторных единиц12.
Метод инкрементальной оценки числа моторных единиц (MUNE) был впервые представлен в начале 1970-х годов McComas et al. для мышцы-разгибателя пальца у человека13. Инкрементальный подход MUNE представлял собой модификацию традиционного метода регистрации CMAP, в ходе которого постепенно увеличивающаяся стимуляция доставлялась для записи количественных субмаксимальных приращений по принципу «все или ничего» в качестве индексов реакций одной моторной единицы. Суммированные и усредненные приращения использовались для расчета оценки величины потенциала одного моторного блока (SMUP). Затем этот рассчитанный размер был разделен на амплитуду CMAP для оценки количества МЕ, иннервирующих исследуемую мышцу11. MUNE демонстрирует высокую чувствительность в обнаружении и мониторинге потерь моторных единиц, что позволяет идентифицировать дисфункцию моторных единиц до того, как станут заметными изменения в таких показателях, как амплитуда CMAP или площадь14,15. У пациентов с БАС MUNE оказался исключительно чувствительным, выступая в качестве важного биомаркера начала, прогрессирования и прогноза заболевания16,17.
Были разработаны и широко используются многочисленные адаптации MUNE для оценки функции MU при таких состояниях, как нейродегенерация, повреждение нервной системы и естественный процесс старения 18,19,20,21. С момента первоначального описания различные адаптации, использующие как электрофизиологические реакции, так и инкрементальные силовые (механические) измерения, применялись как в исследованиях на людях, так ина животных моделях. MUNE обеспечивает неинвазивную функциональную оценку связи моторных нейронов с мышцей. Продольное применение MUNE позволяет понять прогрессирование заболевания или индуцированного фенотипа, а также оценить защитные или регенеративные эффекты терапевтических вмешательств, как в клинических, так и в доклинических условиях. Независимо от эффективности воспроизводимости измерений MUNE и клинической значимости метода для бассейнов MU на большей части тела человека, усилия в основном сосредоточены на мышцах конечностей в мышцах грызунов 10,23,24,25.
Таким образом, цели данного исследования заключались в том, чтобы описать подход к получению составного потенциала действия мышц (CMAP), SMUP и номера диафрагмальной моторной единицы (MUNE) в виде оценок in vivo , которые могут быть использованы в доклинических исследованиях на грызунах для количественной оценки MUNE, размера моторной единицы (представленной как SMUP) и CMAP. Кроме того, мы представляем репрезентативные данные, которые подчеркивают потерю числа MU диафрагмы после внутриплеврального введения диафрагмального дегенеративного агента MN, фрагмента холерного токсина B, конъюгированного с сапорином (CTB-SAP).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все процедуры были утверждены и проведены в соответствии с руководящими принципами, установленными Комитетом по институциональному уходу за животными и их использованию в Университете Миссури. Эксперименты проводились на взрослых самцах крыс Спрэг-Доули в возрасте от 11 до 15 недель. Эти крысы были размещены парами и содержались в соответствии с циклом свет-темнота 12:12, при этом доступ к стандартному коммерческому гранулированному корму и воде, обработанной HCl, был доступен в любое время.
1. Подготовка животных и проведение анестезии
- Надевайте подходящие средства индивидуальной защиты при работе с крысами.
- Ввести ингаляционный анестетик с 3-5% изофлураном, обеспечивая надлежащую индукцию. После того, как крыса будет адекватно обезболивана, поместите ее в лежачее положение и поддерживайте анестезию с помощью 1-3% ингаляционного изофлурана. Проверьте достаточность глубины анестезии, осторожно надавливая на подушечку задней конечности с помощью щипцов, чтобы убедиться в отсутствии реакции отмены.
ПРИМЕЧАНИЕ: В зависимости от размера и веса крысы следите за глубиной анестезии и соответствующим образом корректируйте концентрацию изофлурана. - Поддерживайте температуру на уровне 37 °C с помощью термостатической нагревательной пластины, чтобы предотвратить колебания температуры, которые могут повлиять на амплитуду и задержку CMAP.
- Нанесите на глаза ветеринарную мазь на нефтяной основе, чтобы предотвратить сухость. Контролируйте глубину анестезии, наблюдая за частотой дыхания и проверяя реакцию отмены при надавливании на подушечку стопы щипцами.
- Удаляют волосы с нижней трети груди и шеи для исследования с помощью машинки для стрижки. Следите за дыханием крысы в течение всего эксперимента.
ПРИМЕЧАНИЕ: После записи CMAP и MUNE и прекращения анестезии не оставляйте крысу без присмотра до тех пор, пока она не придет в сознание. Не возвращайте животное в домашнюю клетку до полного выздоровления.
2. Установка и настройка электродов
- Поместите пару монополярных игольчатых электродов 28 G для записи CMAP, SMUP и MINE, как показано на рисунке 1.
- Поместите активный игольчатый электрод (Е1) подкожно над средней ключичной линией ниже последней границы ребра, а референсный игольчатый электрод (Е2) подкожно в углу между кзифоидным отростком и последним грудинореберным хрящом.
ПРИМЕЧАНИЕ: Игольчатые электроды не следует вводить в мышцу диафрагмы; Вместо этого они должны располагаться в подкожной области.
- Поместите активный игольчатый электрод (Е1) подкожно над средней ключичной линией ниже последней границы ребра, а референсный игольчатый электрод (Е2) подкожно в углу между кзифоидным отростком и последним грудинореберным хрящом.
- Для стимуляции диафрагмального нерва на сонном листе используйте пару монополярных игольчатых электродов 28 G в качестве катода и анода для стимуляции нерва и поместите подкожно над боковой шейкой между передними и средними лестничными мышцами, разделенными примерно на 1 см. Следите за тем, чтобы расположение стимулирующих игл было на уровне ниже четвертого шейного позвонка (С4).
ПРИМЕЧАНИЕ: Избегайте слишком глубокого введения стимулирующих электродов, чтобы избежать травмирования диафрагмального нерва или другой структуры. На рисунке 1 показано размещение электродов. - Для заземляющего электрода поместите одноразовый поверхностный электрод на хвост.
3. Сбор данных
- Диафрагмальный CMAP
- Регистрация ответов диафрагмального CMAP путем применения монофазных катодных прямоугольных импульсов длительностью 0,1 мс и интенсивностью от 60 до 100 мА для стимуляции диафрагмального нерва.
- Получайте ответы CMAP, постепенно увеличивая интенсивность стимула до тех пор, пока амплитуда реакции не перестанет демонстрировать дальнейшее увеличение. Чтобы обеспечить сверхмаксимальную стимуляцию, увеличьте интенсивность стимула примерно до 120% от уровня, используемого для вызова максимальной реакции, и запишите дополнительную реакцию. Если размер CMAP больше не увеличивается, рассматривайте этот ответ как максимальный CMAP.
ПРИМЕЧАНИЕ: Стимуляция во время выдоха предпочтительна для минимизации сопутствующего шума мышечной активности во время записи CMAP. - Измерьте и задокументируйте размах амплитуды CMAP в милливольтах (мВ) (рис. 2).
ПРИМЕЧАНИЕ: Амплитуда CMAP может быть оценена от основания до пика и от пика до пика. Клинические электродиагностические системы часто по умолчанию используются для оценки соотношения от основания к пику, который рассчитывается от изоэлектрической базовой линии до начального отрицательного пика.
- Средний размер потенциала одного двигателя (SMUP) и расчет MUNE
- Рассчитайте средний размер SMUP с помощью метода инкрементальной стимуляции.
- Чтобы вызвать инкрементальные ответы, вводите субмаксимальную стимуляцию длительностью 0,1 мс на частоте 1 Гц, постепенно увеличивая интенсивность с шагом 0,03 мА до тех пор, пока не будет достигнут минимальный отклик «все или ничего». Получите первоначальный ответ с интенсивностью стимула в диапазоне от 2 мА до 10 мА.
- Если первоначальная реакция не возникает при интенсивности стимула от 2 до 10 мА, измените положение стимулирующего катода, либо приблизив его, либо переместив дальше от диафрагмального нерва в шее, чтобы уменьшить или увеличить необходимую интенсивность раздражителя соответственно.
- Если первая инкрементная реакция достигается с интенсивностью стимула в диапазоне от 2 мА до 10 мА, то следует сохранить первую реакцию и получить дополнительные приращения с постепенно более высокой интенсивностью стимула, корректируясь с шагом 0,03 мА, чтобы получить в общей сложности 9 дополнительных приращений, удовлетворяющих следующим критериям на шаге 3.2.2.
ПРИМЕЧАНИЕ: Каждый SMUP количественно оценивается путем вычитания каждого приращения из предыдущего.
- При измерении инкрементных реакций убедитесь, что каждый инкремент соответствует следующим критериям:
- Убедитесь, что начальный отрицательный пик инкрементных ответов совпадает по времени с отрицательным пиком максимального ответа CMAP.
ПРИМЕЧАНИЕ: Незначительные движения, наблюдаемые из-за фонового шума от дыхательных циклов, являются неотъемлемой частью характера эксперимента. Тем не менее, постоянное присутствие SMUP во время наблюдения в реальном времени подтверждает их идентичность для этого конкретного CMAP. - Поскольку диафрагма является динамичной мышцей, участвующей в дыхании, каждый дыхательный цикл может вызывать исходное движение. Таким образом, проверьте стабильность и отсутствие фракционирования в каждом инкрементном ответе, подтвердив согласованность трех повторяющихся ответов.
Примечание: Чтобы отличить низкоамплитудные вызванные потенциалы, особенно первый SMUP, от фонового шума, вызванного дыхательной активностью, важно сохранять бдительность и наблюдать в течение 3-4 дыхательных циклов. Также убедитесь, что пики совпадают с пиками CMAP для обеспечения точности. - Убедитесь, что каждый шаг отличается и больше предыдущего. Таким образом, визуально различайте инкрементные реакции в режиме реального времени, наблюдая за ними по мере их наложения на ранее записанные инкременты.
Примечание: Для обеспечения согласованности приращений и соответствия заранее определенным критериям может быть проведено многократное повторение стимула с каждой амплитудой. - После визуальной проверки каждого приращения по вышеупомянутым критериям убедитесь, что амплитуда приращения составляет не менее 25 мкВ. Если приращение ниже 25 мкВ, откажитесь от измерения и повторно оцените реакцию.
- После записи 10 инкрементных откликов убедитесь, что амплитуда каждого инкрементного отклика не превышает одной трети совокупной амплитуды всех 10 инкрементов, представляющей общую амплитуду конечного отклика. Если этот критерий не удовлетворяется, повторите измерение 10 инкрементных ответов.
Примечание: Порог в одну треть основан на предположении, что каждая инкрементальная реакция представляет собой активацию одной моторной единицы. Если амплитуда любого инкрементного отклика превышает одну треть совокупной амплитуды всех десяти инкрементов, это говорит о том, что реакция не может быть связана исключительно с активацией одного моторного блока. Вместо этого на него может влиять задействование дополнительных двигательных единиц или наличие неспецифической активности, такой как электрический шум или артефакты22,26. - Чтобы оценить среднюю амплитуду SMUP, усредните значения 10 приращений. Другим методом измерения средней амплитуды SMUP является деление всей амплитуды конечного инкрементного отклика на общее число приращений11.
- Убедитесь, что начальный отрицательный пик инкрементных ответов совпадает по времени с отрицательным пиком максимального ответа CMAP.
- Определите MUNE путем деления максимальной амплитуды CMAP (от пика к пику) на среднюю амплитуду SMUP (от пика к пику). В некоторых электрофизиологических системах SMUP регистрируются в микровольтах (мкВ), в то время как CMAP обычно выражается в милливольтах (мВ). При необходимости перед расчетом MUNE преобразуйте измерения CMAP и SMUP в одни и те же единицы измерения.
ПРИМЕЧАНИЕ: Пиковые значения CMAP, среднее значение SMUP и MUNE обычно автоматически рассчитываются клиническими электромиографическими системами):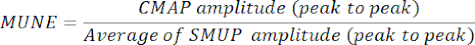
CMAP = Потенциал действия сложных мышц
SMUP = Потенциал одного двигателя
MUNE = Оценка числа моторных единиц
- Рассчитайте средний размер SMUP с помощью метода инкрементальной стимуляции.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Методы CMAP, SMUP и MINE, описанные в этом отчете, позволяют регистрировать нервно-мышечную функцию в мышце диафрагмы с использованием минимально инвазивного размещения электродов (Рисунок 1). Параметры амплитуды и площади могут быть использованы для характеристики сверхмаксимального размера CMAP, обеспечивая общую меру выхода мышечной группы (рис. 2). Тем не менее, в наших текущих методах мы полагаемся на амплитуду для количественной оценки размеров CMAP и SMUP...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
При дегенеративных заболеваниях МП, таких как БАС, крайне важно оценить МН, участвующие в вентиляциилегких 28. Несмотря на возникновение респираторной дегенерации МН у пациентов с БАС, конкретное начало и прогрессирование смерти от МН остаются до конца неизученными 29,30,31. Признавая важность этого аспекта, различные модели, как генетические (например, SOD1
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
WDA получила финансирование на исследования от NMD Pharma, Avidity Biosciences и консультационные гонорары от NMD Pharma, Avidity Biosciences, Dyne Therapeutics, Novartis, Design Therapeutics, Catalyst Pharmaceuticals и Novartis.
Благодарности
Эта работа была профинансирована грантом Программы исследований травм и заболеваний спинного мозга от Программы исследований травм и заболеваний спинного мозга штата Миссури (NLN и WDA).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Стеклянный шприц объемом 2 мл | Kent Scientific Corporation | SOMNO-2ML | |
| 50 мл, модель 705 RN шприц | Hamilton Company | 7637-01 | Используется для проведения внутриплевральных инъекций |
| 5008 - Formulab Diet | LabDiet | 0001325 | |
| автоклавируемые иглы 26 г (26S RN 9,52 мм 40&deг;) | Hamilton Company | 7804-04 | Используется для проведения внутриплевральной инъекции |
| В-субъединица (CTB) холерного токсина (CTB) | MilliporeSigma | C9903 | Используется для внутриплевральной инъекции для маркировки выживших моторных нейронов |
| В-субъединица холерного токсина, конъюгированная с сапорином (CTB-SAP) | Усовершенствованные системы нацеливания | IT-14 | Используется для внутриплевральной инъекции с целью вызвать гибель моторных нейронов |
| Съемный кабель | Technomed | 202845-0000 | для подключения электрода регистратора к электродиагностическому аппарату |
| Одноразовый дисковый электрод 2" x 2" с выводами | Cadwell | 302290-000 | заземляющий электрод |
| одноразовые монополярные иглы 28 G | Technomed | 202270-000 | катодные и анодные стимулирующие электроды- записывающие электроды |
| игольчатый кабель EMG (Amp/stim переключатель коробки) | Cadwell | 190266-200 | для подключения монополярных электродов к электродиагностическому стимулятору |
| Helping Hands зажим из кожи аллигатора с железным основанием | Radio Shack | 64-079 | Сохранение размещения записывающих электродов |
| Изофлуран (флакон 250 мл) | Piramal Healthcare | ||
| монопроектный шприц для орошения с изогнутым наконечником | Covidien | 81412012 | используется для нанесения электродного геля |
| PhysioSuite Система физиологического мониторинга с RightTemp Гомеотермический согревающий | Kent Scientific Corporation | PS-RT | Включает инфракрасную прогревающую подушку, ректальный зонд и прокладочный датчик температуры |
| Pro триммер Pet Набор для груминга | Oster | 078577-010-003 | машинки для стрижки волос |
| Saporin (SAP) | Усовершенствованные целевые системы | PR-01 | Используется для внутриплевральной инъекции (контролирующий агент при введении сам по себе) |
| Sierra Summit EMG система | Cadwell Industries, Inc., Кенневик, штат Вашингтон | портативная электродиагностическая система | |
| SomnoSuite Low-Flow Digital Anesthesia System | Kent Scientific Корпорация | SOMNO | Включает в себя адаптер для защиты от пролива, защиты от испарений на крышке бутылки; Y-образная переходная трубка; угольный фильтр для очистки |
| Sprague-Dawley rat | Envigo colony 208a, Индианаполис, Индианаполис, Индианаполис | ||
| Ветеринарная офтальмологическая мазь на нефтяной основе | Пуралуч | 26870 | применяется во время анестезии во избежание травмирования роговицы |
Ссылки
- Mantilla, C. B., Zhan, W. -Z., Sieck, G. C. Retrograde labeling of phrenic motoneurons by intrapleural injection. J Neurosci Methods. 182 (2), 244-249 (2009).
- Nichols, N. L., Satriotomo, I., Harrigan, D. J., Mitchell, G. S. Acute intermittent hypoxia induced phrenic long-term facilitation despite increased sod1 expression in a rat model of als. Exp Neurol. 273, 138-150 (2015).
- Nichols, N. L., Craig, T. A., Tanner, M. A. Phrenic long-term facilitation following intrapleural ctb-sap-induced respiratory motor neuron death. Respir Physiol Neurobiol. 256, 43-49 (2018).
- Kiernan, M. C., et al. Amyotrophic lateral sclerosis. Lancet. 377 (9769), 942-955 (2011).
- Boërio, D., Kalmar, B., Greensmith, L., Bostock, H. Excitability properties of mouse motor axons in the mutant sod1g93a model of amyotrophic lateral sclerosis. Muscle Nerve. 41 (6), 774-784 (2010).
- Shibuya, K., et al. Motor cortical function determines prognosis in sporadic als. Neurology. 87 (5), 513-520 (2016).
- Lewelt, A., et al. Compound muscle action potential and motor function in children with spinal muscular atrophy. Muscle Nerve. 42 (5), 703-708 (2010).
- Mcgovern, V. L., et al. Smn expression is required in motor neurons to rescue electrophysiological deficits in the smnδ7 mouse model of sma. Hum Mol Genet. 24 (19), 5524-5541 (2015).
- Arnold, W. D., et al. Electrophysiological biomarkers in spinal muscular atrophy: Preclinical proof of concept. Ann Clin Transl Neurol. 1 (1), 34-44 (2014).
- Harrigan, M. E., et al. Assessing rat forelimb and hindlimb motor unit connectivity as objective and robust biomarkers of spinal motor neuron function. Sci Rep. 9 (1), 16699(2019).
- Arnold, W. D., et al. Electrophysiological motor unit number estimation (mune) measuring compound muscle action potential (cmap) in mouse hindlimb muscles. J. Vis. Exp: JoVE. (103), e52899(2015).
- Martin, M., Li, K., Wright, M. C., Lepore, A. C. Functional and morphological assessment of diaphragm innervation by phrenic motor neurons. J. Vis. Exp: JoVE. (99), e52605(2015).
- Mccomas, A., Fawcett, P. R. W., Campbell, M., Sica, R. Electrophysiological estimation of the number of motor units within a human muscle. J Neurol Neurosurg Psychiatry. 34 (2), 121-131 (1971).
- Felice, K. J. A longitudinal study comparing thenar motor unit number estimates to other quantitative tests in patients with amyotrophic lateral sclerosis. Muscle Nerve. 20 (2), 179-185 (1997).
- Vucic, S., Rutkove, S. B. Neurophysiological biomarkers in amyotrophic lateral sclerosis. Curr Opin Neurol. 31 (5), 640-647 (2018).
- Carleton, S., Brown, W. Changes in motor unit populations in motor neurone disease. J Neurol Neurosurg Psychiatry. 42 (1), 42-51 (1979).
- Yuen, E. C., Olney, R. K. Longitudinal study of fiber density and motor unit number estimate in patients with amyotrophic lateral sclerosis. Neurology. 49 (2), 573-578 (1997).
- Gooch, C. L., et al. Motor unit number estimation: A technology and literature review. Muscle Nerve. 50 (6), 884-893 (2014).
- Henderson, R. D., Ridall, P. G., Hutchinson, N. M., Pettitt, A. N., Mccombe, P. A. Bayesian statistical mune method. Muscle Nerve. 36 (2), 206-213 (2007).
- Shefner, J., et al. Multipoint incremental motor unit number estimation as an outcome measure in als. Neurology. 77 (3), 235-241 (2011).
- Stein, R. B., Yang, J. F. Methods for estimating the number of motor units in human muscles. Ann Neurol. 28 (4), 487-495 (1990).
- Shefner, J. M. Motor unit number estimation in human neurological diseases and animal models. Clin Neurophysiol. 112 (6), 955-964 (2001).
- Ahad, M., Rutkove, S. Correlation between muscle electrical impedance data and standard neurophysiologic parameters after experimental neurogenic injury. Physiol Meas. 31 (11), 1437(2010).
- Kasselman, L. J., Shefner, J. M., Rutkove, S. B. Motor unit number estimation in the rat tail using a modified multipoint stimulation technique. Muscle Nerve. 40 (1), 115-121 (2009).
- Ngo, S., et al. The relationship between bayesian motor unit number estimation and histological measurements of motor neurons in wild-type and sod1g93a mice. Clin Neurophysiol. 123 (10), 2080-2091 (2012).
- Feasby, T., Brown, W. Variation of motor unit size in the human extensor digitorum brevis and thenar muscles. J Neurol Neurosurg Psychiatry. 37 (8), 916-926 (1974).
- Nichols, N. L., Vinit, S., Bauernschmidt, L., Mitchell, G. S. Respiratory function after selective respiratory motor neuron death from intrapleural ctb-saporin injections. Exp Neurol. 267, 18-29 (2015).
- Nichols, N. L., et al. Ventilatory control in als. Respir Physiol Neurobiol. 189 (2), 429-437 (2013).
- Cifra, A., Nani, F., Nistri, A. Respiratory motoneurons and pathological conditions: Lessons from hypoglossal motoneurons challenged by excitotoxic or oxidative stress. Respir Physiol Neurobiol. 179 (1), 89-96 (2011).
- Kobayashi, Z., et al. Fals with gly72ser mutation in sod1 gene: Report of a family including the first autopsy case. J Neurol Sci. 300 (1), 9-13 (2011).
- Su, M., Wakabayashi, K., Tanno, Y., Inuzuka, T., Takahashi, H. An autopsy case of amyotrophic lateral sclerosis with concomitant alzheimer's and incidental lewy body diseases. No to shinkei= Brain and nerve. 48 (10), 931-936 (1996).
- Lladó, J., et al. Degeneration of respiratory motor neurons in the sod1 g93a transgenic rat model of als. Neurobiol Dis. 21 (1), 110-118 (2006).
- Borkowski, L. F., Smith, C. L., Keilholz, A. N., Nichols, N. L. Divergent receptor utilization is necessary for phrenic long-term facilitation over the course of motor neuron loss following ctb-sap intrapleural injections. J Neurophysiol. 126 (3), 709-722 (2021).
- Nicolopoulos-Stournaras, S., Iles, J. F. Motor neuron columns in the lumbar spinal cord of the rat. J Comp Neurol. 217 (1), 75-85 (1983).
- Tosolini, A. P., Morris, R. Targeting motor end plates for delivery of adenoviruses: An approach to maximize uptake and transduction of spinal cord motor neurons. Sci Rep. 6 (1), 33058(2016).
- Mchanwell, S., Biscoe, T. The localization of motoneurons supplying the hindlimb muscles of the mouse. Phil. Trans. R. , 477-508 (1981).
- Nair, J., et al. Histological identification of phrenic afferent projections to the spinal cord. Respir Physiol Neurobiol. 236, 57-68 (2017).
- Courtine, G., et al. Can experiments in nonhuman primates expedite the translation of treatments for spinal cord injury in humans. Nat Med. 13 (5), 561-566 (2007).
- Friedli, L., et al. Pronounced species divergence in corticospinal tract reorganization and functional recovery after lateralized spinal cord injury favors primates. Sci Transl Med. 7 (302), 134(2015).
- Arnold, R., et al. Nerve excitability in the rat forelimb: A technique to improve translational utility. J Neurosci Methods. 275, 19-24 (2017).
- Boriek, A., Rodarte, J., Reid, M. Shape and tension distribution of the passive rat diaphragm. Am J Physiol Regul Integr Comp Physiol. 280, R33-R41 (2001).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Больше статей
Френические двигательные нейроныдвигательные единицы диафрагмыоценка количества двигательных единицсуммарный потенциал действия мышцыпотенциал единичной двигательной единицыэлектрофизиологическая оценканервно-мышечная функцияколлатеральное разрастаниемодель нейродегенерации у крыслонгитюдные биомаркеры
