Разработанный метод мечения 13C6-Glucose в сочетании с масс-спектрометрией высокого разрешения жидкостной хроматографии является универсальным и закладывает основу для будущих исследований первичных органов и путей, участвующих в синтезе вторичных метаболитов в лекарственных растениях, а также комплексной утилизации этих вторичных метаболитов.
Методическая статья
13МечениеC6-глюкозы, ассоциированное с LC-MS: идентификация первичных органов растений в синтезе вторичных метаболитов
В этой статье
Краткое содержание
Аннотация
В данной работе представлен новый и эффективный метод сертификации первичных органов, участвующих в синтезе вторичных метаболитов. В качестве важнейшего вторичного метаболита у Parispolyphylla var. yunnanensis (Franch.) Рука. -Mzt. (PPY), сапонин парижский (PS) обладает разнообразной фармакологической активностью, и PPY пользуется все большим спросом. В этом исследовании было установлено, что листья, корневище и стеблево-сосудистый пучок 13C6-глюкозы с кормлением и без кормления точно сертифицируют первичные органы, участвующие в синтезе парижских сапонинов VII (PS VII). Комбинируя жидкостную хроматографию-масс-спектрометрию (ЖХ-МС), были быстро и точно рассчитаны соотношения 13C/12C листьев, корневища, стебля и корня при различных обработках, а также были обнаружены четыре типа соотношений изотопических ионов PS (M-): (M+1) −/M−, (M+2) −/M−, (M+3) −/M− и (M+4) −/M−. Результаты показали, что соотношение 13С/12С в корневищах при лечении стволовым сосудистым пучком и корневищем было значительно выше, чем при лечении без кормления. По сравнению с обработкой без кормления, соотношение молекул PS VII (M+2) -/M− в листьях значительно увеличивалось при обработке листьев и стеблевых, сосудисто-пучковых пучков. В то же время, по сравнению с обработкой без подкормки, соотношение молекул PS VII (М+2) −/М− в листьях при обработке корневищем не показало существенной разницы. Кроме того, соотношение молекул PS VII (M+2) -/M− в стебле, корне и корневище не показало различий между четырьмя обработками. По сравнению с обработкой без подкормки, соотношение молекулы парижского сапонина II (PS II) (M+2) -/M− в листьях при листовой обработке не показало существенной разницы, а соотношение (M+3) -/M− молекул PS II в листьях при листовой обработке было ниже. Данные подтвердили, что первичным органом для синтеза PS VII являются листья. Это закладывает основу для будущей идентификации первичных органов и путей, участвующих в синтезе вторичных метаболитов в лекарственных растениях.
Введение
Пути биосинтеза вторичных метаболитов в растениях сложны и разнообразны, в них задействованы высокоспецифичные иразнообразные органы накопления. В настоящее время специфические места синтеза и органы, ответственные за вторичные метаболиты во многих лекарственных растениях, четко не определены. Эта неопределенность представляет собой серьезное препятствие для стратегического продвижения и внедрения методов выращивания, разработанных для оптимизации как урожайности, так и качества лекарственных материалов.
Молекулярная биология, биохимия и методы мечения изотопов широко используются для раскрытия путей синтеза и сайтов вторичных метаболитов в лекарственных растениях 2,3,4,5, и каждая из этих методологий демонстрирует уникальные сильные стороны и ограничения, такие как различия в эффективности и точности. Подходы молекулярной биологии, например, обеспечивают высокую точность в определении сайтов в биосинтетических путях, но требуют значительного времени. Их полезность еще больше ограничена для видов, у которых отсутствуют общедоступные геномные последовательности, что делает эти методы менее жизнеспособными длятаких случаев. В противоположность этому, методы мечения изотопов, использующие изотопные соотношения, такие как 3C/12C, 2H/1H и 18O/16O, обеспечивают быстрые и доступные средства для исследования механизмов синтеза, транспортировки и хранения вторичных метаболитов 7,8. Они могут выявить пространственное распределение органических соединений и стабильных изотопов в листьях, тем самым позволяя реконструировать условия окружающей среды, с которыми сталкиваются листья на протяжении всего ихжизненного цикла. Кроме того, применение внешних изотопных меток, таких как 13C6-Glucose 10 и 13C 6-Phenylalanine11, позволяет генерировать меченные углеродом вторичные метаболиты, улучшая наше понимание их производства и функции.
Традиционные методы мечения изотопов углерода сталкиваются с трудностями в определении конкретных органов, ответственных за синтез вторичных метаболитов, из-за высокой видоспецифичной природы их биосинтетических путей и механизмов транспортировки. Жидкостная хроматография-масс-спектрометрия (ЖХ-МС) приобрела известность в качестве ключевого аналитического инструмента в этой области, предлагая надежный метод отслеживания экзогенных изотопов в химическом синтезе лекарств и исследования in vivo таких процессов, как абсорбция, распределение, метаболизм и экскреция. Превосходная чувствительность, прямолинейность и надежность ЖХ-МС делают его идеальным выбором для мониторинга производства вторичных метаболитов на предприятиях13. В последнее время LC-MS становится все более предпочтительным для его применения в методах мечения внешними изотопами, что позволяет оценить эффективность мечения для различных образцов. Данная методология дает критическое представление о первичных органах, участвующих в синтезе вторичных метаболитов лекарственных растений, служа неоценимым дополнением к биологическим методам идентификации органов синтеза этих соединений14,15. Следовательно, такой подход не только облегчает сравнение эффективности мечения среди различных образцов, но и проливает свет на ключевые органы, участвующие в образовании вторичных метаболитов растений, тем самым улучшая наше понимание их биосинтеза.
Мы представили новый метод, который сочетает мечение изотопов углерода с обнаружением LC-MS для идентификации первичных органов, ответственных за синтез вторичных метаболитов в лекарственных растениях. Парижский сапонин (ПС) обладает различными фармакологическими свойствами, такими как противоопухолевое, иммуномодулирующее и противовоспалительное16, а ППИ пользуется все большим спросом17. Таким образом, мы использовали проростки PPY в качестве объектов исследования и расшифровали, что листья являются основным органом для синтеза парижского сапонина VII (PS VII) (рис. 1B) с помощью мечения 13C6-Glucose, связанного с методом LC-MS. Наш подход включал в себя четыре различных метода лечения, включающих подачу 13С-6-глюкозы в листья, корневище и стеблево-сосудистые пучки, а также контроль без кормления. Выбор 13С-6-глюкозы является стратегическим, так как она быстро метаболизируется в ацетилкоэнзим А посредством дыхания, что в свою очередь способствует синтезу ФС. Используя естественное содержание 13C, мы использовали систему газовой хроматографии и масс-спектрометра стабильных изотопных отношений (GC-IRMS) для оценки соотношений 13C/12C в различных органах растений и для анализа изотопных ионных пиковых отношений в молекулах PS VII и парижских сапонинов II (PS II) (рис. 1B). Наша методология, в которой используются 13меченых С предшественников вторичных метаболитов растений и передовые методы масс-спектрометрии, предлагает более простую и точную альтернативу традиционным методам мечения изотопами углерода. Этот новый подход не только углубляет наше понимание органов, участвующих в синтезе вторичных метаболитов в лекарственных растениях, но и закладывает прочную основу для будущих исследований биосинтетических путей этих соединений.
Протокол
1. Подготовка к эксперименту
- Убедитесь, что во время роста растений относительная влажность воздуха в теплице составляет 75%, дневная/ночная температура составляет 20 °C/10 °C, фотопериод состоит из 12 часов дня и 12 часов ночи, а интенсивность света составляет 100 моль·м-2·с-1. Обеспечьте излучение с помощью светодиодных (LED) ламп, соблюдая расстояние 30 см между светодиодной лампой и пологом растения.
ПРИМЕЧАНИЕ: Фотопериод и интенсивность света зависят от количества солнечных часов в течение вегетационного периода в Юньнани. Интенсивность излучения обычно измеряется квантовым датчиком (см. Таблицу материалов). Внесите необходимые изменения параметров окружающей среды в соответствии с особенностями лекарственного растения. После того, как эти условия окружающей среды были тщательно откалиброваны на основе характеристик растения и регионального профиля солнечного света, крайне важно поддерживать постоянство этих условий на протяжении всего эксперимента. Произвольные изменения параметров окружающей среды после их первоначального установления могут поставить под угрозу целостность эксперимента и достоверность результатов. - Используйте гидропонный подход18 , чтобы убедиться в точности и специфичности нашего эксперимента. Убедитесь, что промытые 2-летние саженцы PPY (собранные в Вэньшане, провинция Юньнань (104°11′ в.д., 23°04′ с.ш.) погружены в 1/4 стандартной концентрации питательного раствора Hoagland на 3 дня для адаптации.
- Приготовьте питательный раствор Хогланда (см. Таблицу материалов) в соответствии с инструкцией; добавьте 1,26 г порошка Hoagland и 0,945 г порошка нитрата кальция в 4 л очищенной воды. Приготовьте раствор 13C6-Glucose (см. Таблицу материалов), как описано в стандартном руководстве; добавьте 0,2 г порошка 13C6-Glucose в 100 мл очищенной воды или питательного раствора Hoagland.
- Подготовьте гидропонный баллон и кислородный насос (Рисунок 2; см. Таблицу материалов).
ПРИМЕЧАНИЕ: В гидропонной установке использование раствора 13C6-Glucose для мечения позволяет обойти влияние почвенных микроорганизмов, тем самым гарантируя, что раствор напрямую способствует быстрому синтезу вторичных метаболитов в лекарственных растениях. Для оптимизации условий усвоения растениями 13С6-глюкозы необходимо регулировать расход кислородного насоса в диапазоне от 4 до 8 л/мин. Этот контролируемый расход имеет решающее значение для предотвращения того, чтобы рассада плавала на поверхности воды, что может значительно затруднить ее способность эффективно поглощать 13C6-глюкозу. Поддержание погружения рассады на правильную глубину позволяет эффективно поглощать меченый состав, тем самым обеспечивая успех процесса синтеза метаболитов в гидропонной системе.
2. Проведение эксперимента по мечению углекислого газа
- Разработайте четыре метода лечения и проследите органы синтеза и пути синтеза PS VII и PS II в PPY, чтобы продемонстрировать, что листья являются основным органом для синтеза PSY.
- При обработке 1 рассада PPY не подкармливается; при обработке 2 опрыскать листья рассады PPY 0,2% 13C6-Glucose; в обработке 3 подкормить корневища проростков PPY 0,2% 13C6-глюкозой; в обработке 3 подкормите рассаду PPY в месте разреза стебля 0,2% 13C 6-глюкозой (рис. 2A).
ПРИМЕЧАНИЕ: Лечение 1 установлено в качестве контрольной группы. Обработка 2 организована для демонстрации того, что листья могут синтезировать PS. Обработка 3 и 4 предназначена для демонстрации того, что корневища могут поглощать 13C6-глюкозы. - При обработке 1 и 2 выращивайте рассаду PPY в обычном питательном растворе Hoagland. Распылите 5 мл 0,2% раствора 13C6-Glucose один раз утром, днем и вечером на листья Обработки 2.
- При обработке 3 и 4 выращивайте рассаду PPY в питательном растворе Hoagland, содержащем 0,2% 13C 6-глюкозы. В Обработке 4 с помощью скальпеля (см. Таблицу материалов) отрежьте стебли рассады PPY от середины, но не отрывайте сосудистые пучки.
- Оставьте маркировку на каждой обработке в течение 3 дней и меняйте питательный раствор каждые 1,5 дня. Проведите эксперимент с использованием рандомизированного блочного дизайна и повторите каждую обработку 3 раза.
ПРИМЕЧАНИЕ: При опрыскивании листьев важно поместить абсорбирующую бумагу позади опрыскиваемых листьев. Это предотвращает попадание капель воды в расположенный ниже питательный раствор, что в противном случае могло бы повлиять на результаты эксперимента. Надрезы на стеблях не все удалены, но к ним прикреплены кабелепроводы, которые видны невооруженным глазом.
- При обработке 1 рассада PPY не подкармливается; при обработке 2 опрыскать листья рассады PPY 0,2% 13C6-Glucose; в обработке 3 подкормить корневища проростков PPY 0,2% 13C6-глюкозой; в обработке 3 подкормите рассаду PPY в месте разреза стебля 0,2% 13C 6-глюкозой (рис. 2A).
3. Методы отбора проб и подготовки
- Соберите листья, стебли, корневища и корни от каждой обработки отдельно в конце 3-дневного эксперимента с 13C6-Glucose. Тщательно промойте собранные органы растения, чтобы удалить поверхностные загрязнения.
ПРИМЕЧАНИЕ: Отсутствие концентрации 13C может быть обнаружено с помощью анализа раствора для стирки с помощью LC-MS, который доказывает, что стирка является чистой19. - Используйте электрическую печь для доменной сушки с постоянной температурой (см. Таблицу материалов) для сушки промытых органов растения. Начните с 105 °C в течение 30 минут, а затем установите при 60 °C до постоянного веса. Измельчите высушенные органы растений в порошок с помощью полностью автоматической скоростной мельницы для образцов (см. Таблицу материалов).
Примечание: Порошок используется для количественного анализа соотношений PS VII, II и 13C/12C в различных органах растений. - Используйте электронные аналитические весы (см. Таблицу материалов), чтобы точно взвесить 30 мг порошка для каждого образца и поместить его в 2 мл 75% v/v этанол-воды. Используйте ультразвуковой очиститель с ЧПУ (см. Таблицу материалов) и выполните ультразвуковую экстракцию при 25 °C в течение 20 мин (60 кГц), повторите 2 раза; Соедините экстракционные растворы и приготовьте три параллельных образца20.
ПРИМЕЧАНИЕ: Погрешности в весе образца должны быть сведены к минимуму. - С помощью азота высушите экстракционный раствор феном, затем растворите в хроматографическом метаноле до объема 1 мл. Перед впрыском используйте для фильтрации фильтр с органической фазой 0,22 мкм (см. Таблицу материалов) (Рисунок 2B).
ПРИМЕЧАНИЕ: Не выдувайте экстракт при сушке феном с помощью газообразного азота; Экстракт должен быть пропущен через микропористую мембрану, чтобы примеси минимально мешали.
4. Настройка и эксплуатация LC-MS
- Настройка MS
- Активируйте вакуумный насос, переведя его переключатель в положение «включено». Откройте главный клапан на баллоне с аргоном, затем отрегулируйте клапан частичного давления, чтобы достичь целевого давления около 0,3 МПа. После этого убедитесь, что клапан газообразного азота также открыт.
- Запустите управляющее программное обеспечение MS (см. Таблицу материалов). Нажмите на нагреваемый источник ионизации электроспрея (HESI Source) в панели программного обеспечения, и введите параметры, в том числе капиллярное напряжение (3,0 кВ для отрицательной моды), температуру капилляра (350 °C), расход газа оболочки (N2) расход (35 условных единиц), расход вспомогательного газа (N2) расход (15 условных единиц)), путем полного сканирования на основе молекулярной массы PS (работает от m/z 100-1,500). Нажмите на кнопку «Применить», чтобы активировать источник ионов.
ПРИМЕЧАНИЕ: Подождите не менее 8 часов, чтобы обеспечить достаточную степень вакуума для экспериментальных условий. Перед анализом убедитесь, что давление газа аргона и азота достаточно высокое.
- Предварительный прогон LC
- Приготовьте подвижную фазу А, смешав 0,1% муравьиной кислоты с водой, и используйте ацетонитрил для подвижной фазы В (см. Таблицу материалов). Дегазируйте обе фазы в ультразвуковой ванне в течение 15 минут для удаления растворенных газов. Затем подключите подвижную фазу A к соответствующему проходу жидкости и проделайте то же самое с подвижной фазой B. Наконец, смешайте раствор метанола и воды в соотношении 1:9 в для очистки жидкости и вручную заполните бутылки насоса и инжектора.
ПРИМЕЧАНИЕ: Частота ультразвукового ультразвукового аппарата для ванны составляет 40 кГц.
- Приготовьте подвижную фазу А, смешав 0,1% муравьиной кислоты с водой, и используйте ацетонитрил для подвижной фазы В (см. Таблицу материалов). Дегазируйте обе фазы в ультразвуковой ванне в течение 15 минут для удаления растворенных газов. Затем подключите подвижную фазу A к соответствующему проходу жидкости и проделайте то же самое с подвижной фазой B. Наконец, смешайте раствор метанола и воды в соотношении 1:9 в для очистки жидкости и вручную заполните бутылки насоса и инжектора.
- Установление метода LC
- Нажмите кнопку «Настройка инструмента», чтобы получить доступ к окну редактирования метода.
- Нажмите кнопку "Создать", чтобы начать создание нового метода инструмента LC-MS.
- Задайте общее время выполнения для метода LC. Затем введите необходимые значения для предела давления, общего расхода, градиента потока, температуры образца, температуры колонки и готовой температурной дельты в окне редактирования метода.
ПРИМЕЧАНИЕ: Настройки метода прибора ЖХ-МС подбираются в зависимости от исследуемого аналита и типа используемой колонки жидкостной хроматографии. Для получения оптимальных результатов используйте расход 0,3 мл/мин при поддержании температуры 40 °C в колонке BEH C18 (см. Таблицу материалов). Градиентное элюирование настраивается следующим образом: начинайте с 10% В, линейно увеличивая до 30% В в течение 8 мин, затем до 45% В от 8 до 16 мин, до 50% В от 16 до 24 мин и до 70% В от 24 до 30 мин. Сразу после этого верните градиент к исходному состоянию 10% B в течение 0,1 минуты, удерживая его там еще 2,9 минуты. Для каждого анализа вводите образец объемом 5 мкл. Настройки метода прибора ЖХ-МС зависят от конкретного анализируемого вещества и типа используемой колонки жидкостной хроматографии21.
- Приобретение MS
- На вкладке Параметры выберите тип эксперимента Общий MS или MSn для конфигурации метода MS. Введите необходимые значения для настройки времени регистрации, полярности (положительной или отрицательной), диапазона масс, номера отводящего клапана и длительности отводного клапана. После ввода этих данных нажмите на кнопку «Сохранить», чтобы завершить и сохранить эти настройки в качестве метода инструмента.
ПРИМЕЧАНИЕ: Настройки по умолчанию без столбца хроматографии следующие: время сбора, 2 мин; полярность, положительная или отрицательная; диапазон масс, от 100 до 1 500.
- На вкладке Параметры выберите тип эксперимента Общий MS или MSn для конфигурации метода MS. Введите необходимые значения для настройки времени регистрации, полярности (положительной или отрицательной), диапазона масс, номера отводящего клапана и длительности отводного клапана. После ввода этих данных нажмите на кнопку «Сохранить», чтобы завершить и сохранить эти настройки в качестве метода инструмента.
- Выполнение многоступенчатой масс-спектрометрии по традиционным методам.
- Всегда используйте режим сбора данных в зависимости от данных (DDA) для сбора данных в многоступенчатой масс-спектрометрии. В режиме DDA масс-спектрометр идентифицирует пять наиболее интенсивных ионов во время каждого сканирования на первом этапе тандемной МС, которые впоследствии фрагментируются и исследуются на втором этапе тандемной масс-спектрометрии.
ПРИМЕЧАНИЕ: Собранные данные MS и MS/MS могут быть использованы для последующего анализа и поиска в базе данных.
- Всегда используйте режим сбора данных в зависимости от данных (DDA) для сбора данных в многоступенчатой масс-спектрометрии. В режиме DDA масс-спектрометр идентифицирует пять наиболее интенсивных ионов во время каждого сканирования на первом этапе тандемной МС, которые впоследствии фрагментируются и исследуются на втором этапе тандемной масс-спектрометрии.
5. Ручной сбор, анализ и расчет данных
- Сбор и анализ данных
- Дважды щелкните по необработанным файлам, чтобы открыть все масс-спектры из MS. Вручную рассчитайте значения разницы m/z между ионом и соответствующими ионами фрагмента.
- Импортируйте файлы исходных данных контрольных и образцовых обработок и заготовок в программное обеспечение для масс-спектрометрического анализа для идентификации PS путем точного расчета массы и фрагментов PS.
Примечание: PS VII и PS II идентифицируются путем сравнения сроков хранения и элюирования аутентичных стандартных решений. LC-MS обнаруживает ряд небольших пиков в положениях пиков молекулярных ионов. Соотношение пиков изотопных ионов каждого ряда является постоянным. Когда даются экзогенные изотопы 13С, общее содержание 13С в растении увеличивается, а соотношения ряда изотопных ионных пиков вторичных метаболитов растений изменяются. Максимальный допуск погрешности массы установлен на уровне 5 ppm. - Отсканируйте диапазон масс m/z 500-1,500, чтобы определить основной пик. Определите точную молекулярную массу с точностью до 4 знаков после запятой, в соответствии с точной молекулярной массой и временем удержания целевой молекулы. Поиск пиковой площади потока ионов серийных изотопов и получение значений для M−, (M+1) −, (M+2) −, (M+3) − и (M+4) −. Когда подвижная фаза содержит муравьиную кислоту, к отрицательным ионам также относятся (M+COOH) −, (M+COOH+1) −, (M+COOH+2) −, (M+COOH+3) − и (M+COOH+4) −.
Примечание: Выбор пиков в диапазоне масс m/z 500-1500 повышает точность идентификации пиков молекулярных ионов для PS VII и PS II. Например, масс-спектр отрицательных ионов PS VII (C51H82O21, 1030.5349) в основном ионизируется ионами COOH− в смеси муравьиной кислоты и воды. Наблюдаемые серийные изотопные ионы включают 1029,53−, 1030,54−, 1031,54−, 1032,55−, 1033,55−, а также простираются до 1079,56−.
- Расчет данных
- Чтобы уменьшить влияние естественной распространенности 13°C, рассчитайте отношения меченых и немеченых ионных токов для каждого органа при различных обработках, уделяя особое внимание соотношениям (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− и (M+4)−/ M−. Чтобы дифференцировать меченые и встречающиеся в природе изотопы для точной оценки включения 13C, рассчитайте эти отношения для n = 1, 2, 3, 4 с помощью уравнения (1).
Отношение = А (М+2) −/ АМ− (1)
PS: (M+2) − включают (M+2+COOH) − и (M+2) −; M− включают (M+COOH) - и M−.
ПРИМЕЧАНИЕ: Здесь M− относится к объединенным пиковым областям ионных токов для (M+COOH) − и M −, в первую очередь ионизированных COOH− в воде с муравьиной кислотой. A представляет собой область пика. Например, формулы для расчета коэффициентов PS VII проиллюстрированы следующим образом:
Передаточное число+1= (A1030.54+A1076.55)/(A1029.53+A1075.55)
Передаточное число+2= (A1031.54+A1077.55)/(A1029.53+A1075.55)
Соотношение+3= (A1032.55+A1078.56)/(A1029.53+A1075.55)
Соотношение+4= (A1033.55+A1079.56)/(A1029.53+A1075.55)
- Чтобы уменьшить влияние естественной распространенности 13°C, рассчитайте отношения меченых и немеченых ионных токов для каждого органа при различных обработках, уделяя особое внимание соотношениям (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− и (M+4)−/ M−. Чтобы дифференцировать меченые и встречающиеся в природе изотопы для точной оценки включения 13C, рассчитайте эти отношения для n = 1, 2, 3, 4 с помощью уравнения (1).
Результаты
Чтобы подтвердить, что поступление 13С-6-глюкозы в корневища было успешным, мы дополнительно проанализировали соотношения изотопов 13С/12С в корневищах. Соотношение изотопов 13C/12C в Обработке 3 и 4 было намного выше, чем в Обработке 2 (Рисунок 1A). Результаты показали, что 13С6-глюкоза из лечения 3 и 4 попала в корневища при проглатывании.
Отношения пиков изотопов 13C, таких как (M+1) −/M−, (M+2) −/M−, (M+3) −/M− и (M+4) −/M−, обычно остаются постоянными. Соединения, меченные экзогенно добавленным 13С, имеют ту же молекулярную структуру, аналогичную молекулярную массу, физико-химические свойства и время удержания, что и их немеченные аналоги. Однако, когда эти меченые соединения были проанализированы с помощью масс-спектрометрии, отношения их изотопного ионного пика изменились. В нашем исследовании мы использовали LC-MS для обнаружения PS VII и PS II в четырех различных органах PPY при различных методах лечения (рис. 3). По сравнению с обработкой 1, результаты показали значительное увеличение соотношения PS VII (M+2)-/M− в листьях PPY, обработанных экзогенным 13C (рис. 3B). В частности, в обработке 2, где листья PPY опрыскивали 13C 6-глюкозой, был синтезирован PS VII, помеченный двумя атомами 13C. Тем не менее, в обработке 4 соотношение молекул PS VII (M+2) −/M− в листьях не имело существенной разницы между корневищем и обработкой без питания, а соотношение молекул PS VII (M+1) −/M−, (M+3) −/M−, (M+4) −/M− в стебле, корневище и корне во всех четырех обработках не показало существенных различий (рисунок 3A, С,Г). Кроме того, соотношение молекул PS II (M+2) −/M− медленно увеличивалось при лечении 2 (рисунок 3F). Не было выявлено заметных различий в соотношении молекул PS II (M+1) −/M− и (M+4) −/M− в листьях между обработками 1 и 2 (рис. 3E, H), в то время как соотношение молекул PS II (M+3) −/M− показало заметное уменьшение количества листьев в обработке 2 по сравнению с обработкой 1 (рис. 3G). Эти результаты свидетельствуют о том, что синтез PS VII действительно происходит в листьях, обработанных 13C6-глюкозой, что согласуется с известным путем биосинтеза PS.
Наш подход предполагает, что лист является первичным органом для синтеза PS VII при PPY, в отличие от синтеза PS II. Примечательно, что меченый 13C PS VII отсутствовал в корневище после обработки листьев 13C 6-глюкозой, что подразумевает медленный транспорт PS VII из листьев в корневища. Напротив, меченный 13С-меченным PS II был обнаружен в корневище после лечения ствол-сосудистый пучок и мечение корневища, что указывает на возможный синтез корневища на этой стадии и требует дальнейшего изучения мест синтеза PS II. Обнаружение исключительного соотношения (M+2) −/M− для молекул PS VII в листьях согласуется с метаболической судьбой 13C6-глюкозы; после абсорбции он метаболизируется с помощью гликолиза с образованием ацетил-КоА с двумя изотопами 13С. Рассматривая PS как изопреноидное соединение, его биосинтез из ацетил-КоА происходит либо по пути мевалоновой кислоты (MVA), либо по пути 2-C-метил-D-эритритол-4-фосфата (MEP) (рис. 4), что приводит к образованию (M+2) −/M− PS VII. Таким образом, в нашем исследовании лист является определяющим органом для синтеза PS VII в PPY.

Соотношение изотопов 13С/12С в корневищах четырех обработок. (А) Соотношение изотопов 13С/12С в корневищах Обработок 4 и 3 было намного выше, чем в Обработках 1 и 2, что указывает на то, что 13С/6-глюкоза в значительной степени проникла в корневища через питание корнями. Каждый столбец представляет среднее значение (± SE) трех реплик. Буквы в столбцах означают значительно различающееся соотношение изотопа 13С/12С в четырех обработках (p < 0,05). Сокращение: PS = Парижские сапонины. (B) Масс-спектрометрия высокого разрешения PS VII (C51H82O21, 1030.5349) обнаружила его отрицательный ион с временем удержания 16,83 минуты. Из-за естественной распространенности 13C (с точной молекулярной массой 13,003, по сравнению с 12C при 12,000), ряд изотопных пиков, включая (M-), в основном (M+1)−, (M+2)−, (M+3)− и (M+4)−, появляются в то же время удержания, что и пик молекулярных ионов PS VII M−. Эти пики были в основном обусловлены ионизацией COOH в воде с муравьиной кислотой. Увеличенная гистограмма выделяет эти изотопные пики. Были рассчитаны коэффициенты ионных токов (M+1)−/M−, (M+2)−/M−, (M+3)−/M− и (M+4)−/M−. Анализируя изменения в этих соотношениях, мы могли отслеживать и делать выводы о биосинтезе сапонинов. Здесь M− представляет собой объединенные пиковые площади ионного тока для (M+COOH)- и M−. Рисунок 1B был изменен по Wen et al.24. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 2: Рабочий процесс маркировки 13C6-Glucose и интеграции данных. Рассаду маркировали путем опрыскивания и подкормки 0,2% 13С 6-глюкозой в течение 3 дней; затем экстракты из каждого органа были изотопно проанализированы с помощью LC/MS и GC/IRMS и объединены с пиковой интеграцией и данными для органоспецифичного анализа синтеза PS. (А) Схематическая диаграмма, иллюстрирующая питание глюкозой в различных органах. Обработки 1-4 были непитательными, подавались в лист, стебель-сосудистый пучок и корневище соответственно. (B) Этапы анализа LC-MS экстрагированной жидкости, полученной из высушенной ткани PPY с помощью инструмента для измельчения и продувки азотом. Сокращения: LC/MS = жидкостная хроматография-масс-спектрометрия; PPY = Parispolyphylla var. yunnanensis (Franch.) Рука. -Мзт.; PS = Парижский сапонин. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
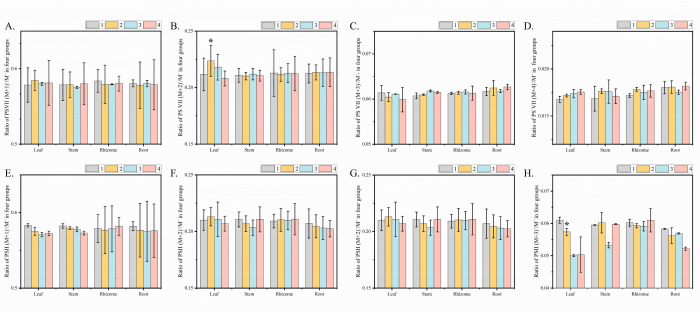
Рисунок 3: Отслеживание биосинтеза парижского сапонина VII и парижского сапонина II посредством питания 13C6-глюкозой органов растений. (А-Г) Соотношение молекул PS VII (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− в каждом органе из четырех обработок. Соотношение молекул PS VII (М+2) −/М− значительно увеличилось в листьях Обработки 2 и Обработки 3. В стебле, корне и корневище соотношение молекул PS VII (M+2) −/M− не показало явных различий между четырьмя обработками. (Э-Х) Соотношение молекул PS VII (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− в каждом органе из четырех обработок. По сравнению с обработкой 1, соотношения молекул PS II (М+2) −/М- в листьях не различались при обработке 2. В обработке 2 соотношение молекул PS II (M+1) −/M− и (M+4) −/M− не имеет явных различий в листьях по сравнению с обработкой 1. Соотношение молекул PS II (M+3) -/M− в листьях уменьшилось по сравнению с Лечением 1. Парис сапонин VII, ПС VII. Каждый столбец представляет среднее значение (± SE) трех реплик. «*» указывает на значительную разницу от лечения без кормления (t-критерий при p < 0,01). Сокращение: PS = Парижские сапонины. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.

Рисунок 4: Описание PS VII, генерируемого экзогенным 13C6-глюкозой, поступающим в путь MVA. Принципиальная диаграмма метаболизма 13C 6-меченного ацетилкоэнзима А с целью получения молекул PS VII (M+2) −/M− по пути MVA. Маркированный углерод показан красным цветом; Немаркированный углерод имеет серый цвет. Под действием гликолиза 13С6-Глюкоза расщепляется до двух молекул ацетилкоэнзима А(М+2)-, который затем генерирует изопентенилпирофосфат и диметилпропенилпирофосфат по пути MVA, а затем генерирует циклический атенол путем каталитической генерации геранилгеранилпирофосфатсинтазы, фарнезилпирофосфатсинтазы, скваленсинтазы, скваленэпоксигеназы, циклоатенолсинтазы циклоартенола, затем окисление, декарбоксилирование, восстановление и другие реакции с получением холестерина, холестерина через ряд ферментов цитохрома Р450, гликозилтрансфераз и фуростаноидной сапонин-26-О-β-глюкозидазы поздней модификации с образованием молекул ПС VII, содержащих два меченых углерода. (М+2) - указывает, что COOH- двух атомов углерода ионизируется в этой точке, и количество меток для двух углеродов может быть получено с помощью (M+2) −/M−. С помощью стандартных протоколов изотопное тело идентифицируется по отдельности и ионные токи разделяются для получения данных маркировки изотопов. Величина M' стабильна. Сокращение: PS = парижские сапонины; PS VII = Парижский сапонин VII; MVA = Мевалонатный путь; GPPS = геранилгеранилпирофосфатсинтаза; FPPS = фарнезилпирофосфатсинтаза; SQS = скваленсинтаза; SQE = сквалэпоксигеназа; CYPs = ферменты цитохрома Р450; UGTs = глюкуроновая трансфераза; F26G = фуростаноидный сапонин 26-O-β-глюкозидаза. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этой цифры.
Обсуждение
Успешная реализация этого протокола зависит от всесторонних исследований физиологических свойств растений, тканей, органов и вторичных метаболитов. Подход к планированию эксперимента, изложенный в протоколе, закладывает прочную основу для исследования путей биосинтеза вторичных метаболитов растений. Решающими факторами в этом эксперименте являются (1) определение возраста многолетних саженцев и (2) выбор правильного времени для мечения изотопов и их обнаружения. Лекарственные растения подразделяются на многолетние и однолетние, каждое из которых имеет различные модели синтеза и накопления вторичных метаболитов. Данный эксперимент направлен на уточнение первичных синтетических органов вторичных метаболитов в лекарственных растениях путем анализа скорости синтеза этих метаболитов. Поэтому важно тщательно выбирать годы и стадии роста, которые соответствуют этим схемам и темпам синтеза.
ППИ является многолетним лекарственным растением, и содержание ПС накапливается год от года. Однако было показано, что скорость синтеза ФС не отличается от таковой у многолетних растений PPY22. В то же время меньший размер 2-летних саженцев по сравнению со старыми способствует гидропонике. Так, в этом исследовании использовались 2-летние саженцы PPY. Это гарантирует, что выбранные растения демонстрируют самую высокую скорость синтеза вторичных метаболитов. Крайне важно признать различия в скорости синтеза и транспортировки вторичных метаболитов у разных видов23. По этим показателям определяется оптимальная продолжительность периода маркировки-детекции. Исследования показывают, что содержание сахара и полистирола в листьях ППИ снижается в течение 3 дней24, что свидетельствует о медленном процессе транспортировки ПС из-за их значительной молекулярной массы, который вряд ли будет завершен в течение этого срока. Продолжительность лечения короче нескольких часов может привести к неадекватному синтезу и трудностям обнаружения меченого PS 5,25. И наоборот, продление лечения более чем на 3 дня может привести к перемещению PS из листьев в корневище, что может исказить экспериментальные результаты. Таким образом, для минимизации вмешательства органов выбирается 3-дневный промежуточный период мечения, особенно для методов распыления листьев и мечения корневища, что обеспечивает более точные экспериментальные результаты.
Предыдущие исследования изотопного мечения Nicotiana tabacum26,27 и Brassica napus28 показали успешное поглощение 13C6-глюкозы и интеграцию в растительные ткани. В нашем исследовании мы сосредоточились на выращенных на гидропонике 2-летних саженцах PPY, применяя обработку 13C6-Glucose для листьев, корневищ и стеблевых сосудистых пучков, наряду с контрольной обработкой без подкормки. Используя обнаружение LC-MS, мы обнаружили, что на третий день после мечения соотношение 13C/12C в корневищах при лечении стволовым сосудистым пучком и корневищем было значительно выше, чем в контрольной группе, не получавшей питания, что подтверждает эффективную ассимиляцию 13C6-глюкозы и успех нашего подхода к мечению (рис. 2). В нашем исследовании мы одновременно проанализировали четыре типа изотопных ионных пиковых отношений для молекул PS VII и PS II в четырех различных органах PPY: (M+1) −/M−, (M+2) −/M−, (M+3) −/M− и (M+4) −/M−. Важно отметить, что при обработке листьев соотношения молекулы PS VII (M+2) −/M− в листьях были заметно выше, чем при обработке без подкормки. Соотношение молекул PS VII (M+2)−/M− в листьях под корневищем и без обработки без разницы (рис. 3B). Кроме того, по сравнению с обработкой без подкормки, соотношение молекулы парижских сапонинов II (PS II) (M+2) −/M− в листьях при обработке листовой подкормкой не имело существенной разницы, а соотношение молекул PS II (M+3) −/M− в листьях при обработке листовой подкормкой было ниже (рис. 3G). Лечение мечением ствол-сосудистый пучок и корневище показало значительные различия в соотношении молекул PS II (M+1) −/M− и (M+4) −/M− в корневищах по сравнению с лечением без кормления (рис. 3E, H).
При адаптации этого подхода к другим лекарственным растениям крайне важно подбирать маркерные соединения, адаптированные к предшественникам первичных вторичных метаболитов растения, обеспечивая маркерную специфичность. Если целевое соединение в первую очередь синтезируется в стебле, то меченое соединение должно быть способно эффективно транспортироваться в стебель и метаболизироваться в нем. Провести повторную оценку пути синтеза при отсутствии ожидаемых изотопных соотношений, таких как (M+2)-/M− для PS VII, что подтверждает пригодность меченых соединений. Концентрация меченого соединения в питательном растворе может потребовать корректировки для обеспечения адекватного поглощения и интеграции в целевые соединения в пределах желаемого органа. Параметры детектирования ЖХ-МС могут потребовать оптимизации для эффективного обнаружения специфических меченых метаболитов, представляющих интерес. Это может включать в себя корректировку настроек масс-спектрометрии, таких как режим ионизации, для повышения чувствительности и специфичности соединений, уникальных для исследуемых видов растений и органов. Если соотношение 13С/12С не обнаружено в корневищах в результате лечения мечением ствол-сосудистый пучок и корневище, концентрацию 13С-6-глюкозы в питательном растворе Хогланда и продолжительность мечения следует увеличить до тех пор, пока не станет возможным обнаружение. Методы кормления 13С-6-глюкозой и аналитические техники, разработанные в этом исследовании, должны направлять анализ и интерпретацию результатов для идентификации органов синтеза вторичных метаболитов в различных лекарственных растениях.
Лечение листьев, корневищ и стволовых пучков 13C6-Glucose в этом эксперименте обеспечивает большую специфичность в идентификации органов синтеза вторичных метаболитов по сравнению с традиционными методами мечения изотопов углерода. Тем не менее, проблемы остаются. Одним из ключевых ограничений является отсутствие универсальных временных рамок для маркировки и обнаружения, подходящих для всех лекарственных растений. Выбор оптимальных временных рамок повышает эффективность маркировки. Кроме того, использование соотношений для анализа результатов усложняет дифференциацию расположения функциональных групп в больших сложных изомерах. Таким образом, перед применением данной методологии рекомендуется провести тщательный обзор литературы и предварительные эксперименты. Эта стратегия не только обеспечивает точность и эффективность, но и имеет значительные последствия для биологии и фармакологии растений. Интеграция этого метода с спектроскопией ядерного магнитного резонанса, ведущим методом анализа структур органических соединений, позволяет точно идентифицировать места мечения 13C. Этот метод открывает путь к исследованию путей биосинтеза вторичных метаболитов растений, представляя подробный и эффективный подход к определению специфичности органов при синтезе вторичных метаболитов в лекарственных растениях.
Раскрытие информации
Авторы заявляют об отсутствии конкурирующих финансовых интересов.
Благодарности
Эта работа финансировалась Национальным фондом естественных наук Молодежной программы Китая (No 82304670).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,1 % Вода муравьиной кислоты | Фабрика химических реактивов Chengdu Kelong | 44890 | |
| 13C6-глюкозный порошок | MERCK | 110187-42-3 | |
| Ацетонитрил | Chengdu Kelong Chemical Reasset Factory | 44890 | |
| AUTOSAMPLER VIALS | Biosharp Biotechnology Company | 44866 | |
| BEH C18 колонна | Уотерс, Милфор, Массачусетс | 1,7μ m,2,1 * 100 мм | |
| ультразвуковой очиститель с ЧПУ | Kunshan Ultrasound Instrument Co., Ltd | KQ-600DE | |
| Compound DiscovererTM программное обеспечение | Thermo Scientific, Fremont,CA | 3 | |
| Compound DiscovererTM программное обеспечение | Thermo Scientific, Fremont, CA | 3 | |
| Электрическая печь для доменной сушки с постоянной температурой | DHG-9146A | ||
| Chengdu Kelong Chemical Reagent Factory | 44955 | ||
| Полностью автоматический быстрый измельчитель образцов | Shanghai Jingxin Technology | Tissuelyser-48 | |
| Газовая хроматография-Стабильное изотопное соотношение Масс-спектрометр | Thermo Fisher | Delta V Advantage | |
| Hoagland solution | Sigma-Aldrich | H2295-1L | |
| Гидропонный резервуар | JRD | 1020421 | |
| Программное обеспечение Isodat | Thermo Fisher Scientific | 3 | |
| жидкостная хроматография, масс-спектрометрия высокого разрешения | Agilent Technology | Agilent 1260 -6120 | |
| Прибор для производства азота | PEAK SCIENTIFIC | Genius SQ 24 | |
| Органический фазовый фильтр | Tianjin Jinteng Experimental Equipment Co., Ltd | 44890 | |
| Кислородный насос | Magic Dragon | MFL | |
| Квантовый датчик | Highpoint | UPRtek | |
| Scalpel | Handkit | 11-23 | |
| Посыпание может | CHUSHI | WJ-001 | |
| Xcalibur программное обеспечение | Thermo Fisher Scientific | 4.2 |
Ссылки
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
Перепечатки и разрешения
Теги
